酒精滥用会因抑制线粒体呼吸和生物能量代谢而损害肺泡巨噬细胞(AM)的免疫功能。我们近期研究发现,乙醇(EtOH)暴露会增加AM中线粒体呼吸对谷氨酰胺的依赖性。本文提供了利用细胞外通量生物分析仪检测经乙醇处理的AM中谷氨酰胺在线粒体呼吸中作用的方法。
本文内容
摘要
摘要
肺泡巨噬细胞(AMs)是下呼吸道抵御病原体的第一道细胞防线。然而,长期且过量饮酒会损害AMs吞噬和清除肺泡腔内病原体的能力,部分原因是细胞能量代谢和生物能量学的失调。我们先前的研究表明,长期乙醇(EtOH)摄入会损害AMs的线粒体生物能量功能,并导致乳酸水平升高。此外,我们最近还发现,EtOH会增加AMs对谷氨酰胺的依赖性,提升谷氨酰胺依赖性的最大呼吸速率,同时降低代谢灵活性,使呼吸底物由丙酮酸依赖性呼吸向谷氨酰胺依赖性呼吸转变。当丙酮酸被用于乳酸生成或其他燃料来源不足时,谷氨酰解是线粒体呼吸的重要代偿途径。本研究采用小鼠肺泡巨噬细胞系MH-S细胞,分别在无乙醇或含乙醇(0.08%)条件下处理72小时,利用细胞外通量生物分析仪评估线粒体呼吸和生物能量对谷氨酰胺作为燃料来源的依赖程度。实验中实时检测了在基础培养基条件下或加入谷氨酰胺酶1抑制剂——双(5-苯乙酰胺-1,3,4-噻二唑-2-基)乙基硫醚(BPTES)后的反应,该抑制剂可阻断谷氨酰胺转化为谷氨酸的酶促反应;随后进行溶剂对照处理,并进一步检测线粒体应激状态。本文提供的分步实验方案详细描述了我们用于分析多组生物学重复和实验重复中谷氨酰胺依赖性基础线粒体呼吸、线粒体ATP偶联呼吸、最大线粒体呼吸以及线粒体备用呼吸能力平均值的方法与计算过程。
引言
酒精使用障碍(AUD)影响了美国超过2800万人1。患有AUD的人发生呼吸道感染的风险增加至2-4倍2,3,从而提高了早发性发病和死亡的风险3,4,5。酒精滥用会增加个体对呼吸道感染的易感性,部分原因是其抑制了肺部的免疫功能。肺泡巨噬细胞(AMs)是抵御下呼吸道病原体的第一道细胞防线,能够吞噬并清除吸入的微生物。然而,长期饮酒会损害AMs吞噬和杀灭病原体的能力6,7。
肺泡巨噬细胞(AMs)的免疫功能(如吞噬作用)是高耗能过程,需要活跃的代谢通路以生成大量三磷酸腺苷(ATP)。线粒体氧化磷酸化是细胞内生成ATP效率最高的过程,但长期乙醇(EtOH)暴露会增加线粒体来源的氧化应激,可能导致AMs中线粒体功能障碍8,9,10。利用细胞耗氧率(OCR)来测量线粒体呼吸作用,可通过细胞外通量生物分析仪进行实时定量。通过依次加入寡霉素(ATP合酶抑制剂)、羰基氰化对三氟甲氧基苯腙(FCCP,质子解偶联剂)以及鱼藤酮/抗霉素A(R/A,分别为线粒体复合物I和III抑制剂)后所获得的线粒体呼吸谱,可用于评估线粒体生物能量状态。已有研究表明,长期EtOH暴露会降低AMs中的线粒体生物能量水平,表现为线粒体基础呼吸、ATP偶联呼吸、最大呼吸能力及备用呼吸能力均显著下降10。
细胞对丙酮酸、谷氨酰胺或脂肪酸等燃料来源在ATP生成中的依赖程度各不相同。同时,细胞也具有一定的灵活性,能够转换燃料的使用以调节细胞生物能量代谢。谷氨酰胺分解是线粒体呼吸的关键通路,尤其在丙酮酸被转向乳酸生成或脂肪酸供应不足的情况下更为重要。我们最近的研究表明,长期乙醇(EtOH)暴露会增加肺泡巨噬细胞(AM)对谷氨酰胺的依赖性,并降低其利用谷氨酰胺及其他燃料来源进行线粒体呼吸的灵活性11。这些结果,结合以下数据:与对照培养基处理的MH-S细胞相比,乙醇暴露的MH-S细胞经丙酮酸氧化抑制剂UK5099处理后,其线粒体生物能量代谢未发生改变,提示在乙醇处理的MH-S细胞中,呼吸作用从依赖丙酮酸转向依赖谷氨酰胺。然而,这种转变不足以满足AM的生物能量需求11。本文中,我们描述了使用细胞外通量生物分析仪评估长期乙醇暴露后AM中谷氨酰胺作为线粒体呼吸燃料来源的方法。该方案针对96孔板(每孔面积11.04 mm2)设计并优化,若用于更大规格的细胞培养孔,需进行相应调整。通过使用谷氨酰胺酶1抑制剂——双(2-(5-苯乙酰胺-1,3,4-噻二唑-2-基)乙基)硫醚(BPTES),选择性抑制谷氨酰胺向谷氨酸的酶促转化,从而确定线粒体生物能量代谢对谷氨酰胺的依赖性。本研究中展示的数据是对Crotty等人已发表研究中11未处理对照组和长期乙醇暴露的小鼠肺泡巨噬细胞系MH-S细胞在培养基对照组及BPTES处理组实验中的额外生物学重复数据。
方案
1. 慢性乙醇暴露 体外
- 在含有RPMI-1640培养基、10%胎牛血清、1%青霉素/链霉素、11.9 mM碳酸氢钠、40 mg/mL庆大霉素和50 µM 2-巯基乙醇的完全培养基中,于37°C、5% CO2的湿润培养箱中培养MH-S细胞(一种小鼠肺泡巨噬细胞系)。
- 用或不用乙醇(EtOH,0.8 mg/mL或0.08%)处理培养的MH-S细胞72小时,每24小时更换一次乙醇。将经乙醇处理的MH-S细胞置于另一湿润培养箱中,在37°C、5% CO2条件下孵育,且培养箱的水盘中含有0.08%的乙醇。
2. 使用细胞外通量分析仪评估谷氨酰胺作为能源物质时 MH-S 细胞的接种
- 确保未经处理的对照组(Con)和长期乙醇(EtOH)处理的 MH-S 细胞在 T-75 培养瓶中生长至至少 50% 汇合度(70%–90% 汇合度为最佳),以便传代至 96 孔细胞外通量微培养板。为每组生物学重复的 Con 和 EtOH 实验条件及其培养基对照设置 5–6 个技术重复,绘制板图,共设四组(生物学重复 n= 1),用于与 BPTES 注射结果进行比较。
- 用培养基或磷酸盐缓冲液清洗细胞。
- 向培养瓶中加入 6 mL 含血清的培养基。
- 刮取细胞直至其完全脱落且培养瓶底部清晰。MH-S 细胞无需使用胰蛋白酶即可脱落,但其他细胞类型可能需要胰蛋白酶辅助。
- 使用移液管或 1 mL 移液器将细胞充分分散。
- 将悬浮细胞转移至 15 mL 圆锥形离心管中,在 200 × g 条件下离心 6 分钟。
- 吸除上清液。
- 加入 1 mL 培养基,彻底重悬细胞。
- 取 10 µL 细胞悬液转移至微量离心管中,加入 10 µL 台盼蓝溶液,充分混匀。
- 将 10 µL 细胞与台盼蓝的混合液加入血细胞计数板或细胞计数仪的一侧。
- 使用光学显微镜或细胞计数仪计数细胞数量。
- 计算每毫升的平均活细胞数,得出细胞密度。
- 计算所需稀释倍数:
所需孔数 × 10000–15000 个细胞 = 所需总细胞数。
所需孔数 × 80 µL = 所需重悬细胞的总体积。 - 向 96 孔细胞外通量微培养板的相应孔中加入 80 µL 细胞悬液。
- 四个角孔不加任何细胞或培养基,用于背景信号测定。
- 将细胞置于 37 °C、含 5% CO2 的湿润培养箱中过夜培养,使细胞在 96 孔细胞外通量微培养板中充分贴壁并达到平衡状态。
- 在 96 孔细胞外通量微培养板中,按照步骤 1 对 MH-S 细胞进行 72 小时处理。
- 在运行细胞外通量生物分析仪实验前至少 4 小时至最多 24 小时,对 96 孔细胞外通量检测包(flux pak)进行水化处理。
- 取下细胞外通量检测包的上部,将带有探针的部分正面朝上放置于实验台面。向检测包底部的每个孔中加入 200 µL 细胞外通量校准液。
- 将两部分重新组装,并用封口膜包裹整个检测包。将其置于 37 °C 无 CO2 的湿润培养箱或 37 °C 珠浴装置中。
- 开启连接细胞外通量生物分析仪的计算机,打开实验设计及运行/分析软件,确保在实验开始前至少预热 4 小时。
3. 使用细胞外通量分析仪评估谷氨酰胺作为 MH-S 细胞线粒体呼吸燃料来源的作用
注意:本实验步骤的总体概述见图1。
- 在光学显微镜下检查经 Con 和 EtOH 处理的 MH-S 细胞培养物,确保细胞状态健康且以单层形式贴壁生长。为确保实验结果可靠,细胞融合度应至少达到 70%(理想状态为 90%)。
- 制备含以下添加剂的细胞外通量基础培养基:
- 将 35 mL 细胞外通量基础培养基分装至 50 mL 离心管中。
- 加入 350 µL 100 mM 丙酮酸钠(终浓度为 1 mM)、350 µL D-葡萄糖(终浓度为 10 mM)和 350 µL GlutaMAX(相较于 L-谷氨酰胺更稳定,终浓度为 2 mM)。
注:也可使用相同浓度的新鲜 L-谷氨酰胺。 - 将溶液预热至 37 °C,并确保在 37 °C 时 pH 值为 7.4 ± 0.05。
- 轻柔吸除细胞外微培养板中的生长培养基,尽量去除残留液体,但避免将细胞从孔底吸走。用最多 50 µL 的含添加剂细胞外通量基础培养基洗涤一次。
- 向每孔加入 180 µL 含添加剂的细胞外通量基础培养基,将微培养板置于 37 °C、无 CO2 的湿润培养箱中孵育 30 分钟至 1 小时,以实现环境平衡。
- 溶解谷氨酰胺氧化检测试剂:
- 向 BPTES 管中加入 700 µL 含添加剂的细胞外通量基础培养基,配制成 120 mM 储存液。上下吹打 10 次,充分溶解化合物。
注意:BPTES 可引起皮肤和眼睛刺激,可能引起呼吸道刺激。操作时应佩戴防护手套、护目镜和面部防护装备。内容物及容器应送至批准的废弃物处理设施处置。 - 向寡霉素(oligomycin)管中加入 630 µL 含添加剂的细胞外通量基础培养基,配制成 100 mM 储存液。上下吹打 10 次,充分溶解化合物。
- 向 FCCP 管中加入 720 µL 含添加剂的细胞外通量基础培养基,配制成 100 mM 储存液。上下吹打 10 次,充分溶解化合物。
注意:FCCP 吞咽有害,可导致严重皮肤灼伤和眼睛损伤,可能引起过敏性皮肤反应,并可能对水生生物造成长期有害影响。操作时应佩戴防护手套、防护服、护目镜和面部防护装备。内容物及容器应送至批准的废弃物处理设施处置。 - 向 R/A 管中加入 540 µL 含添加剂的细胞外通量基础培养基,配制成 50 mM 储存液。上下吹打 10 次,充分溶解化合物。
注意:鱼藤酮(Rotenone)吞咽或吸入可致死,引起皮肤刺激、严重眼刺激,可能引起呼吸道刺激,对水生生物毒性极高且具有长期持续影响。操作时应佩戴防护手套、护目镜、面部防护装备及呼吸防护设备。内容物及容器应送至批准的废弃物处理设施处置。抗霉素 A(Antimycin A)吞咽可致死,对水生生物毒性极高,具有长期持续影响。内容物及容器应送至批准的废弃物处理设施处置。
- 向 BPTES 管中加入 700 µL 含添加剂的细胞外通量基础培养基,配制成 120 mM 储存液。上下吹打 10 次,充分溶解化合物。
- 配制底物氧化和线粒体应激检测试剂的工作浓度:
- 对于 BPTES,将 1,500 µL 含添加剂的细胞外通量基础培养基与 500 µL 120 mM BPTES 储存液混合,配制成 30 µM BPTES 工作液。
- 对于寡霉素,将 2,520 µL 含添加剂的细胞外通量基础培养基与 480 µL 100 mM 寡霉素混合,配制成 16 mM 寡霉素工作液。
- 对于 FCCP,将 2,865 µL 含添加剂的细胞外通量基础培养基与 135 µL 100 mM FCCP 混合,配制成 4.5 mM FCCP 工作液。
- 对于 R/A,将 2,700 µL 含添加剂的细胞外通量基础培养基与 300 µL 50 mM R/A 混合,配制成 5 mM R/A 工作液。
- 将细胞外通量检测盒上部各孔按以下方式加样:
- 向背景对照孔和培养基对照孔的 A 孔加入 20 µL 含添加剂的细胞外通量基础培养基,B 孔加入 22 µL 寡霉素,C 孔加入 25 µL FCCP,D 孔加入 27 µL R/A。
- 向含细胞的实验孔中,A 孔加入 20 µL 培养基对照或 BPTES(BPTES 终浓度为 3 µM),B 孔加入 22 µL 寡霉素(终浓度为 2 µM),C 孔加入 25 µL FCCP(终浓度为 0.5 µM),D 孔加入 27 µL R/A(终浓度为 0.5 µM)。
- 使用连接仪器的计算机软件程序,按照以下时间设置和加样策略运行细胞外通量生物分析仪实验:
- 通过 A 孔加入 BPTES 时,设置测量次数为 6 次,混合时间为 3 分钟,等待时间为 0 分钟,测量时间为 3 分钟。
- 通过 B 孔加入寡霉素时,设置测量次数为 3 次,混合时间为 3 分钟,等待时间为 0 分钟,测量时间为 3 分钟。
- 通过 C 孔加入 FCCP 时,设置测量次数为 3 次,混合时间为 3 分钟,等待时间为 6 分钟,测量时间为 3 分钟。
- 通过 D 孔加入 R/A 时,设置测量次数为 3 次,混合时间为 3 分钟,等待时间为 0 分钟,测量时间为 3 分钟。
- 检查所有背景对照、培养基对照及实验组孔的设置是否正确。保存并启动实验。首先将含 A-D 加样试剂的细胞外通量检测盒装入仪器,校准将持续进行,直至细胞板准备就绪可以上机。
- 实验结束后立即取出细胞板。保存数据以便后续在其他设备上分析。
- 使用光学显微镜检查细胞是否仍保持贴壁。用磷酸盐缓冲液(PBS)洗涤一次,然后使用合适的细胞裂解缓冲液裂解细胞。样品可于 -80 °C 保存或立即测定蛋白浓度。
4. 分析结果以评估谷氨酰胺作为 MH-S 细胞线粒体呼吸燃料来源的作用
- 从每个孔的细胞中提取蛋白质,以便将耗氧率(OCR)数据归一化至蛋白含量:
- 计算每孔蛋白质的浓度(纳克/微升 [ng/µL])。
- 计算整个细胞外通量微孔板的平均蛋白质浓度(ng/µL)。
- 将每孔的蛋白质浓度除以整块板的平均蛋白质浓度,得到归一化因子。
- 使用实验设计与分析的计算机软件程序,将归一化因子应用于目标数据文件。
- 确保所有背景孔的OCR值接近于0。
- 取消选择基线OCR < 10 的任何细胞孔。数据不会被删除,但被高亮的孔将在导出的数据文件中显示。
- 将实验设计与分析的计算机软件程序中的数据导出至计算机电子表格程序。
- 在电子表格程序中打开文件,并按OCR值降序排列所有数据。删除背景孔、先前已取消选择(但未删除)的孔、细胞活力低的孔、细胞融合度低的孔、未完成全部加样策略的孔、蛋白质浓度读数不准确的孔、基线OCR < 10 的孔,以及其他任何预设标准的孔。
- 将剩余的所有数据按测量值排序,然后按组别排序,最后按OCR值排序。
- 按测量值独立计算每个生物学重复(N)的技术重复的平均值。在对技术重复进行平均后,确保每个实验组中每个生物学重复至少包含18个不同的数值(基线3个,加样培养基/BPTES后3个,寡霉素处理后3个,FCCP处理后3个,鱼藤酮/抗霉素A处理后6个)。对每个生物学重复分别进行此操作,以便后续能够计算分析数据的均值标准差或标准误。
- 将所有平均值复制到一个新的电子表格中,并按实验组分开。
- 在每个实验组内,按加样策略对OCR值进行平均。
- 根据氧气消耗计算线粒体生物能量学参数:
- 计算基础呼吸:
- 按如下方式计算基础线粒体呼吸:
基础线粒体呼吸(消耗的O2 pmol)= ([第1、2、3次OCR测量平均值 - 第16、17、18次OCR测量平均值] × [第3次时间 - 第1次时间])
注:由于抑制剂尚未加入,基础呼吸在培养基对照组和BPTES组之间应相近。 - 按如下方式计算不依赖谷氨酰胺的基础线粒体呼吸:
不依赖谷氨酰胺的基础线粒体呼吸(消耗的O2 pmol)= ([第4、5、6、7、8、9次OCR测量平均值 - 第16、17、18次OCR测量平均值] × [第9次时间 - 第4次时间])
注:除非细胞对谷氨酰胺依赖性不高,否则不依赖谷氨酰胺的基础线粒体呼吸应低于总基础线粒体呼吸。 - 按如下方式计算依赖谷氨酰胺的基础线粒体呼吸:
依赖谷氨酰胺的基础线粒体呼吸(消耗的O2 pmol)= ([第1、2、3次OCR测量平均值 - 第4、5、6、7、8、9次OCR测量平均值] × [第9次时间 - 第4次时间])
注:不应从总基础线粒体呼吸中减去不依赖谷氨酰胺的基础呼吸,因为它们是在不同时间点计算的,且不应相互依赖。
- 按如下方式计算基础线粒体呼吸:
- 计算ATP偶联呼吸:
- 按如下方式计算来自所有燃料的总线粒体ATP偶联呼吸:
来自所有燃料的总线粒体ATP偶联呼吸(消耗的O2 pmol)= ([第1、2、3次OCR测量平均值 - 第10、11、12次OCR测量平均值] × [第12次时间 - 第10次时间])
注:由于寡霉素强烈抑制ATP合酶,且抑制一种燃料通路不应改变总的ATP偶联呼吸,因此第10、11、12次OCR测量平均值在培养基对照组和BPTES组之间应相近。 - 按如下方式计算不依赖谷氨酰胺的ATP偶联线粒体呼吸:
不依赖谷氨酰胺的ATP偶联线粒体呼吸(消耗的O2 pmol)= ([第4、5、6、7、8、9次OCR测量平均值 - 第10、11、12次OCR测量平均值] × [第12次时间 - 第10次时间])
注:除非细胞对谷氨酰胺依赖性不高,否则不依赖谷氨酰胺的ATP偶联线粒体呼吸应低于总的ATP偶联线粒体呼吸。 - 按如下方式计算依赖谷氨酰胺的ATP偶联线粒体呼吸:
依赖谷氨酰胺的ATP偶联线粒体呼吸(消耗的O2 pmol)= 所有燃料来源的总ATP偶联线粒体呼吸 - 不依赖谷氨酰胺的ATP偶联线粒体呼吸
- 按如下方式计算来自所有燃料的总线粒体ATP偶联呼吸:
- 计算最大呼吸:
- 按如下方式计算总最大线粒体呼吸:
总最大线粒体呼吸(消耗的O2 pmol)= ([第13、14、15次OCR测量平均值 - 第16、17、18次OCR测量平均值] × [第15次时间 - 第13次时间]) - 按如下方式计算不依赖谷氨酰胺的最大线粒体呼吸:
不依赖谷氨酰胺的最大线粒体呼吸(消耗的O2 pmol)= ([BPTES组第13、14、15次OCR测量平均值 - BPTES组第16、17、18次OCR测量平均值] × [第15次时间 - 第13次时间]) - 按如下方式计算依赖谷氨酰胺的最大线粒体呼吸:
依赖谷氨酰胺的最大线粒体呼吸(消耗的O2 pmol)= 总最大线粒体呼吸 - 不依赖谷氨酰胺的最大线粒体呼吸
注:该计算可用于确定细胞对谷氨酰胺的备用能力依赖性,相较于其他燃料。最大线粒体呼吸越高,对谷氨酰胺的依赖性越强,可通过BPTES组与对照组的差值表示最大线粒体呼吸的损失,或以占总呼吸的百分比表示。
- 按如下方式计算总最大线粒体呼吸:
- 计算备用呼吸能力:
- 按如下方式计算总备用呼吸能力:
总备用呼吸能力(消耗的O2 pmol)= ([第13、14、15次OCR测量平均值 - 第1、2、3次OCR测量平均值] × [第15次时间 - 第13次时间]) - 按如下方式计算不依赖谷氨酰胺的备用呼吸能力:
不依赖谷氨酰胺的备用呼吸能力(消耗的O2 pmol)= ([BPTES组第13、14、15次OCR测量平均值 - BPTES组第1、2、3次OCR测量平均值] × [第15次时间 - 第13次时间]) - 按如下方式计算依赖谷氨酰胺的备用呼吸能力:
依赖谷氨酰胺的备用呼吸能力(消耗的O2 pmol)= 总备用呼吸能力 - 不依赖谷氨酰胺的备用呼吸能力
注:该计算反映了依赖谷氨酰胺的细胞在需要时能否在无谷氨酰胺条件下实现更高呼吸水平的灵活性。
- 按如下方式计算总备用呼吸能力:
- 计算基础呼吸:
- 如有需要,用抑制剂组减去培养基对照组,并将消耗的O2 pmol相对于对照组进行归一化。
- 绘制依赖谷氨酰胺的OCR生物能量谱图(pmol O2/min)、基础呼吸(pmol O2)、ATP偶联呼吸(pmol O2)、最大呼吸(pmol O2)和备用呼吸能力(pmol O2)的图表。
- 以柱状图展示线粒体生物能量终点值,或以抑制剂组相对于培养基对照组的均值表示。若每个生物学重复(N)已单独计算,则需计算所有生物学重复间分析数据的均值标准差或标准误。
5. 统计分析
- 使用适当的数据分析软件进行所有统计分析。
- 对于OCR生物能量谱的线性数据点,采用双因素方差分析(双因素ANOVA),随后进行Tukey多重比较检验,以比较以下四个实验组的数据,这两个因素分别为处理方式和注射策略:Con + media、Con + BPTES、EtOH + media 和 EtOH + BPTES。
- 对于依赖谷氨酰胺的基础呼吸、ATP偶联呼吸、最大呼吸及备用呼吸能力的柱状图,采用Student t-检验分析,比较两个实验组(Con + BPTES 与 EtOH + BPTES)的数据。
- 数据以均值 ± 均值标准误(SEM)表示。p < 0.05 视为具有统计学显著性。
结果
长期乙醇暴露降低 MH-S 细胞对谷氨酰胺的依赖性。
谷氨酰胺分解是线粒体呼吸的关键通路,表明谷氨酰胺是细胞生物能量的重要燃料来源。为了确定长期乙醇暴露是否改变 MH-S 细胞对谷氨酰胺作为线粒体呼吸燃料来源的依赖性,将 MH-S 细胞分别用无乙醇的对照(Con)或乙醇处理,并随时间测量其对与线粒体呼吸相关的试剂序贯注射所引起的氧消耗率(OCR)变化。通过序贯注射寡霉素(ATP合酶抑制剂)、FCCP(质子解偶联剂)以及R/A(分别为线粒体复合物I和复合物III抑制剂)所获得的OCR生物能量谱,可用于计算线粒体生物能量学的其他参数,例如ATP偶联呼吸、最大呼吸和备用呼吸能力。所示所有数据均为Crotty等人已发表研究中Con + 培养基、Con + BPTES、EtOH + 培养基、EtOH + BPTES MH-S细胞实验组的额外生物学重复数据11。如图2A所示,寡霉素因抑制复合物V而导致OCR下降,FCCP因破坏膜电位导致线粒体解偶联并促进线粒体依赖性ATP生成而使OCR升高12,R/A则有效抑制了线粒体依赖性OCR。这些对试剂序贯注射产生的OCR生物能量反应谱型,与使用细胞外通量生物分析仪评估线粒体应激的用户指南中的描述一致13,14。
在测定对照组(Con)和乙醇(EtOH)处理的 MH-S 细胞的基础耗氧率(OCR)后,分别加入培养基对照或谷氨酰胺酶1抑制剂 BPTES。Con + 培养基与 Con + BPTES 处理的 MH-S 细胞,以及 EtOH + 培养基与 EtOH + BPTES 处理的 MH-S 细胞之间,其OCR生物能量谱未显示出差异(图2A)。与 Con + BPTES 相比,EtOH + BPTES 处理的 MH-S 细胞表现出谷氨酰胺依赖性基础呼吸的降低(图2A 和 图2B 中测量值#4 与测量值#3 的比较),提示乙醇会减弱 MH-S 细胞中谷氨酰胺氧化对线粒体呼吸的贡献。与 Con + BPTES 相比,EtOH + BPTES 处理的 MH-S 细胞显示出谷氨酰胺依赖性ATP偶联的线粒体呼吸能力下降(图2C)。尽管与 Con + BPTES 相比,EtOH + BPTES 处理的 MH-S 细胞在谷氨酰胺依赖性最大呼吸的降低幅度上较小(图2D),但其谷氨酰胺依赖性备用呼吸能力仍较 Con + BPTES 下降(图2E)。这些结果提示,经乙醇处理的 MH-S 细胞在受到 FCCP 刺激等应激条件下可能更依赖谷氨酰胺进行呼吸,但由于谷氨酰胺需求增加的同时其生物可利用性下降,导致细胞无法有效满足该需求。
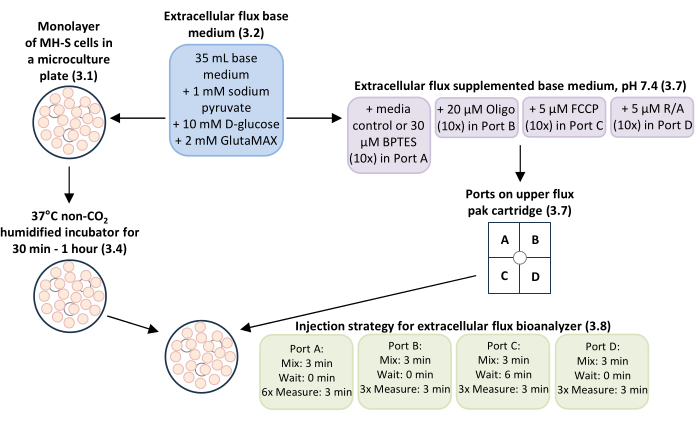
图1:在MH-S细胞(一种小鼠肺泡巨噬细胞系)中测定谷氨酰胺依赖性线粒体呼吸及生物能量学的实验流程总览。 将MH-S细胞单层培养于细胞外通量微孔板孔中(步骤3.1),加入含补充剂的细胞外通量基础培养基(步骤3.2),于37°C、无CO2的湿化培养箱中孵育30分钟至1小时(步骤3.4)。使用含补充剂的细胞外通量基础培养基(步骤3.2)作为空白对照,并用于将谷氨酰胺氧化抑制剂BPTES稀释至终浓度3 µM,线粒体复合体V抑制剂寡霉素(Oligo)稀释至终浓度0.5 µM,线粒体解偶联剂羰基氰化对三氟甲氧基苯腙(FCCP)稀释至终浓度0.5 µM,以及线粒体复合体I和复合体III抑制剂鱼藤素/抗霉素A(R/A)稀释至终浓度0.5 µM,分别加入细胞外通量分析仪上部试剂盒的A-D加样孔中(步骤3.7)。使用细胞外通量生物分析仪进行实验运行时,各加样孔的混合、等待和检测时间设置如下:A孔(培养基对照或BPTES)为3分钟混合时间、0分钟等待时间、6次检测,每次检测时间为3分钟;B孔(Oligo)为3分钟混合时间、0分钟等待时间、3次检测,每次检测时间为3分钟;C孔(FCCP)为3分钟混合时间、6分钟等待时间、3次检测,每次检测时间为3分钟;D孔(R/A)为3分钟混合时间、0分钟等待时间、3次检测,每次检测时间为3分钟。请点击此处查看该图的放大版本。
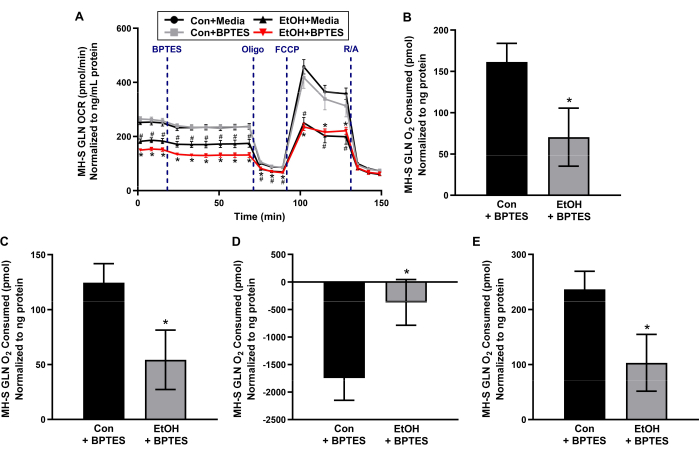
图2:慢性乙醇(EtOH)可降低小鼠肺泡巨噬细胞系 MH-S 细胞中谷氨酰胺依赖性线粒体呼吸。 MH-S细胞未经处理(Con)或经EtOH(0.08%,72 h)处理,使用细胞外通量分析仪检测注射培养基对照或谷氨酰胺(GLN)氧化抑制剂前后随时间变化的氧消耗率(OCR)3 µM BPTES),随后进行线粒体复合体V抑制剂的连续注射(0.5 µM 寡霉素(Oligo)、线粒体解偶联剂(0.5 µM 羰基氰化物-对-三氟甲氧基苯腙(FCCP)以及线粒体复合物I和复合物III抑制剂(0.5 µM 鱼藤酮/0.5 µM 抗霉素A,R/A)。A) 利用OCR生物能量谱计算谷氨酰胺依赖性(B基础呼吸,(C) ATP偶联呼吸,(D) 最大呼吸,以及(E) 备用呼吸能力。线性点表示均值 ± 标准误(n = 4, #p < 0.05 与 Con + media 相比,*p < 0.05 对比 Con + BPTES,单因素方差分析结合 Tukey 事后检验)。数据以均值 ± 标准误表示(n = 4,*p < 0.05 对比 Con + BPTES,Student's t-测试)。所展示的数据为未处理对照组和慢性乙醇暴露的MH-S细胞在培养基对照组和BPTES处理实验组中的额外生物学重复,这些数据已发表于Crotty等人研究中。11. 请点击此处以查看此图的放大版本。
讨论
本文所提供的数据是未经处理及长期乙醇(EtOH)暴露的 MH-S 细胞在培养基对照或 BPTES 处理下的额外生物学重复实验,相关结果已发表于 Crotty 等人的研究11。所描述的实验方案用于评估乙醇暴露的 MH-S 细胞对谷氨酰胺作为线粒体呼吸和生物能量学燃料来源的依赖性,检测工具为细胞外通量生物分析仪。该方案包含若干关键步骤。首先,MH-S 细胞的贴壁状态和汇合度至关重要。MH-S 细胞最初以较低密度接种于细胞外通量微孔板中培养,并在细胞达到约 90% 汇合度形成单层时使用。由于 MH-S 细胞的乙醇暴露时间为 72 小时,因此在进行细胞外通量生物分析仪检测前,细胞应已达到 90% 的最终汇合度。这一标准与其他文献中报道的细胞单层形成要求一致,即实验前细胞汇合度应达到 90%–100%15,16,17。其次,将线粒体呼吸值归一化至各样品中的蛋白含量至关重要。部分研究将线粒体生物能量学参数归一化至细胞数量18,19,20。然而,本实验采用的序贯加药策略旨在逐步对线粒体施加应激。对于主要依赖氧化磷酸化的细胞(如肺泡巨噬细胞 AMs),该过程可能导致细胞在检测过程中发生死亡。因此,实验开始至结束时的细胞数量可能不一致,将线粒体呼吸值以蛋白含量进行归一化更为合理21,22。本文建议采用所有孔的平均蛋白量作为归一化因子,以更准确地呈现细胞特异性的耗氧率(OCR)谱型。第三,跨生物学重复实验的结果分析至关重要。有时研究仅展示代表性的线粒体生物能量谱图22,23,而非多个生物学重复实验的平均线粒体呼吸值10,11,24。然而,此类代表性图像无法全面反映实验间的变异情况。通过分别计算每个生物学重复的数据,可利用均值的标准误反映所有生物学重复间平均线粒体呼吸值的变异程度,并用于计算不同线粒体生物能量谱型之间的统计学差异。
在使用细胞外通量生物分析仪进行检测之前,需要确定MH-S细胞在细胞外通量微孔板中培养时的最佳细胞密度,以确保每个孔中的细胞形成单层。由于还需确定Oligo和FCCP对MH-S细胞的合适浓度,因此进行了不同MH-S细胞密度与Oligo及FCCP系列稀释浓度组合的测试21,25。初步实验显示,接种10,000至15,000个MH-S细胞后,经72小时培养,无论是否添加EtOH,细胞均能达到约90%融合度的单层状态10。根据这些优化实验结果,确定2 µM Oligo和0.5 µM FCCP为能够引起线粒体呼吸变化的这两种试剂的最低有效浓度10。
通过实时检测线粒体呼吸作用,比较基础状态及使用谷氨酰胺酶1抑制剂BPTES处理后的呼吸变化,可确定对照组和乙醇暴露的MH-S细胞中基础呼吸对谷氨酰胺的依赖性;BPTES可抑制谷氨酰胺向谷氨酸的酶促转化。本研究数据的一个局限性在于,尚未探讨短链和中链脂肪酸作为乙醇暴露的MH-S细胞中线粒体呼吸和生物能量学的燃料来源(除谷氨酰胺外)所起的作用。Crotty等人先前的研究结果11表明,乙醇处理的MH-S细胞表现出从丙酮酸依赖性呼吸向谷氨酰胺依赖性呼吸的转变,但并未完全代偿线粒体总呼吸能力的下降。此外,通过联合注射UK5099(丙酮酸氧化抑制剂)和依托莫西(长链脂肪酸氧化抑制剂)进行相同实验,可进一步确定在丙酮酸和脂肪酸均不能作为燃料来源的情况下,谷氨酰胺在乙醇暴露的MH-S细胞中对线粒体呼吸的贡献。
线粒体呼吸的测量已使用克拉克电极近七十年26,此外也有基于微孔板的荧光检测法用于测量线粒体呼吸27。然而,这些方法显著耗时更长和/或缺乏细胞外通量生物分析仪所能达到的检测灵敏度。使用细胞外通量生物分析仪评估谷氨酰胺作为线粒体呼吸和生物能量学燃料来源的优势在于,可同时进行多个生物学重复的实验。此外,细胞外通量生物分析仪具有灵活性,可用于分离的线粒体或完整细胞的实验。对于线粒体含量较低的细胞,例如肺动脉平滑肌细胞,从有限样本中分离出足够数量的线粒体具有挑战性。使用细胞外通量生物分析仪,可在完整的肺动脉平滑肌细胞28或原代小鼠肺泡巨噬细胞(AMs)10,11中测量线粒体呼吸。本研究中采用的方案可用于评估谷氨酰胺作为其他样本量有限样品的线粒体呼吸和生物能量学燃料来源,例如原代人肺泡巨噬细胞(AMs)。我们先前已证明,乙醇(EtOH)诱导的MH-S细胞中线粒体来源的氧化应激及功能紊乱,与原代小鼠AMs和人AMs中的线粒体功能失调具有相似的特征6,7,11,28,29,30。综上所述,这些研究支持在以线粒体来源氧化应激为特征的病理条件下,采用该方法评估谷氨酰胺作为肺泡巨噬细胞(AMs)线粒体呼吸和生物能量学燃料来源的应用。
披露
所有作者均无任何相关的财务利益冲突需要申报。
致谢
我们感谢张莎拉(Sarah S. Chang,理学学士)在初始细胞培养及实验用 MH-S 细胞制备方面所做的贡献。本研究由美国国家酒精滥用与酒精中毒研究所(NIAAA)R01-AA026086 项目资助 SMY(ORCID: 0000-0001-9309-0233),NIAAA F31-F31AA029938 项目资助 KMC,以及美国国家普通医学科学研究所(NIGMS)T32-GM008602 项目资助兰迪·霍尔(Randy Hall),埃默里大学药理学与化学生物学系。本报告内容不代表美国退伍军人事务部或美国政府的观点。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 15 mL 锥形管 | VWR International, Inc. | 21008-670 | 用于配制线粒体相关试剂的储备浓度。 |
| 2-巯基乙醇 | Sigma Aldrich Co. | M6250 | 用于 MH-S 细胞的培养。 |
| 细胞刮刀 | Dot Scientific, Inc. | 70-1180 | 用于从 T-75 培养瓶中刮取 MH-S 细胞。 |
| Countess 3 FL 仪器:细胞计数仪 | Fisher Scientific Company | AMQAF2000 | 用于计数待接种进行实验的 MH-S 细胞数量。 |
| D-葡萄糖 | Sigma Aldrich Co. | G8270 | 用于细胞外通量基础培养基。 |
| 乙醇 | Fisher Scientific Company | 4355720 | 对 MH-S 细胞进行实验处理。 |
| 胎牛血清 | Sciencell Research Laboratories | 500 | 用于 MH-S 细胞的培养。 |
| 庆大霉素 | Sigma Aldrich Co. | G1397 | 用于 MH-S 细胞的培养。 |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | 用于细胞外通量基础培养基。 |
| GraphPad Prism 10.2.3 | GraphPad Software | N/A | 用于统计分析的软件。购买后可从 https://www.graphpad.com/features 下载。 |
| MH-S 细胞 | American Type Culture Collection | CRL-2019 | 小鼠肺泡巨噬细胞系。 |
| 微量离心管 | USA Scientific, Inc. | 4036-3212 | 用于配制线粒体相关试剂的工作浓度。 |
| Microsoft 365 Excel:计算机电子表格程序 | Microsoft | N/A | 用于数据整理及线粒体生物能量学计算的软件。购买后可从 https://www.microsoft.com/en-us/microsoft-365/excel 下载。 |
| 青霉素/链霉素 | Fisher Scientific Company | 15140122 | 用于 MH-S 细胞的培养。 |
| 磷酸盐缓冲液 | VWR International, Inc. | 45000-446 | 用于清洗 MH-S 细胞。 |
| RPMI-1640 | VWR International, Inc. | 45000-396 | 用于 MH-S 细胞的培养。 |
| Seahorse Wave Pro 软件:用于实验设计与分析的计算机软件程序 | Agilent Technologies, Inc. | N/A | 该计算机连接 Seahorse XF Pro 分析仪。可从 https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523 下载。 |
| Seahorse XF 基础培养基:细胞外通量基础培养基,pH 7.4 | Agilent Technologies, Inc. | 103334-100 | 用于配制线粒体相关试剂的储备和工作浓度,并在实验前用于 MH-S 细胞的培养。 |
| Seahorse XF 谷氨酰胺氧化应激检测试剂盒 | Agilent Technologies, Inc. | 103674-100 | 包含储备液 BPTES、寡霉素、FCCP 和鱼藤酮/抗霉素 A。 |
| Seahorse XF Pro 分析仪:细胞外通量生物分析仪 | Agilent Technologies, Inc. | N/A | 细胞外通量生物分析仪。 |
| Seahorse XFe96 FluxPak:96 孔细胞外通量检测用卡盒、96 孔细胞外通量微培养板及校准液 | Agilent Technologies, Inc. | 102416-100 | 用于使用细胞外通量生物分析仪前对 MH-S 细胞进行准备。 |
| 移液管 | Santa Cruz Biotechnology, Inc. | sc-550678 | 用于移除 MH-S 细胞的培养基。 |
| 碳酸氢钠 | Sigma Aldrich Co. | S6014 | 用于 MH-S 细胞的培养。 |
| 丙酮酸钠 | Sigma Aldrich Co. | P4562 | 用于细胞外通量基础培养基。 |
| T-75 培养瓶 | Santa Cruz Biotechnology, Inc. | sc-200263 | 用于 MH-S 细胞的培养。 |
参考文献
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
重印与许可
