本方案提供了一种标准化的方法,用于在秀丽隐杆线虫(C. elegans)衰老过程中对其多种组织内的线粒体形态进行成像。
本文内容
摘要
摘要
线粒体是大多数真核细胞中重要的细胞器,主要通过有氧呼吸产生能量。除了作为“细胞动力工厂”这一广为人知的功能外,线粒体还参与多种其他关键的细胞过程,包括细胞代谢、增殖、免疫信号传导以及激素信号传导的调控。在衰老过程中或线粒体应激状态下,线粒体功能的退化通常表现为线粒体形态和体积的显著变化。由于秀丽隐杆线虫(C. elegans)具有透明的身体和较短的寿命,便于在其整个生命周期中进行活体显微观察,因此是研究这些变化的理想模型。然而,即使在 C. elegans 研究领域内,也存在多种用于线粒体成像的转基因构建体和方法,每种方法均有其局限性。本文提出使用单拷贝、定位于线粒体基质的绿色荧光蛋白(GFP)构建体,作为在 C. elegans 中成像线粒体形态的一种稳定且可靠的方法。本研究特别关注可实验控制的因素,以在衰老过程中的线粒体成像实验中最大限度地减少误差,并降低重复实验之间以及不同研究之间的变异性。此外,推荐使用 mitoMAPR 作为一种稳健的方法,用于量化衰老过程中不同组织类型中线粒体形态的变化。
引言
线粒体是由双层磷脂膜包被的细胞器,在细胞生物能量稳态中发挥重要作用,是代谢和能量生成的关键场所1。大量线粒体持续以ATP形式产生能量,以满足细胞的需求2。除这些重要功能外,线粒体还参与多种复杂的细胞过程,如信号转导、自噬、先天免疫、细胞周期以及细胞死亡通路2,3。线粒体具有多种形态,可从微小的独立细胞器到广泛连接的管状网络结构,其形态取决于不同的能量需求和线粒体健康状况4。
线粒体的一个重要特征是其动态性,即通过一系列紧密协调且持续进行的分裂与融合事件,在不同形态之间相互转换4。这两种相对过程之间的精确平衡,调控着线粒体的形态、数量、大小以及在细胞质中的定位5。此外,线粒体的融合与分裂过程对于维持线粒体的质量控制也具有重要意义5。例如,线粒体分裂是通过线粒体自噬(mitophagy)以及通过自噬选择性清除受损线粒体的必要组成部分2。线粒体动态过程还在细胞分裂、发育、对多种应激因素的抵抗以及细胞代谢稳态的维持中发挥重要作用6。
线粒体动力学的紊乱与多种疾病相关,包括神经退行性疾病、代谢性疾病、心血管疾病和癌症4。此外,衰老过程伴随着线粒体结构的显著重塑,这在很大程度上归因于融合-分裂动力学的变化7。因此,在各种应激或疾病条件下以及在整个衰老过程中,对线粒体形态变化进行可视化和监测,有助于深入理解细胞功能、疾病机制以及潜在的治疗策略。
与许多分子通路一样,线粒体的动态变化及其功能在真核生物中也高度保守,包括线虫 Caenorhabditis elegans 等模式生物。类似于人类细胞,C. elegans 中的线粒体融合依赖于动力相关鸟苷三磷酸酶(GTPase)蛋白的作用,其中包括FZO-1(哺乳动物Mfn1/2的同源物)和EAT-3(哺乳动物Opa1的同源物),它们分别调控线粒体外膜(OMM)和内膜(IMM)的融合8。线粒体分裂则由动力相关蛋白(DRP-1,人类Drp1的同源物)调控,该蛋白通过在线粒体外膜周围形成环状复合物,收缩并最终分离线粒体膜,从而促进分裂9。线粒体融合在维持线粒体质量控制中起关键作用,它允许线粒体内容物(包括线粒体DNA、蛋白质和脂质)混合,使部分受损的线粒体可通过健康线粒体的内容物实现功能互补9。另一方面,线粒体分裂使线粒体能够分裂增殖,不仅促进其在细胞质内的分布,也在细胞分裂过程中将其传递至子代细胞,从而确保线粒体的正常遗传与功能9。这一过程对于分离受损或功能异常的线粒体片段也至关重要,这些片段随后可被靶向通过线粒体自噬(mitophagy)途径降解9。
秀丽隐杆线虫 长期以来,由于其完整的基因组,一直被认为是最强大的遗传学模型系统之一, 以及多种遗传学工具的可用性,包括有助于基因修饰的 CRISPR/Cas910,多种基因过表达方法,以及基于细菌食物的RNA干扰(RNAi)方法11此外,它们透明的解剖结构使得在活体生物中进行显微成像成为可能12最后,由于它们的寿命相对较短、维护成本低,且易于产生大量年龄匹配的个体,因此成为研究衰老生物学的优良模型系统。13这些优势,加之主要线粒体调控通路在进化上的保守性,使得 秀丽隐杆线虫 研究衰老过程中线粒体动态的极具吸引力的模型系统。
荧光标记物在生物研究中被广泛用于可视化和研究细胞组分,包括线粒体。一些特定的细胞通透性染料,如 MitoTracker 和四甲基罗丹明乙酯(TMRE),常被使用14。前者用于染色整体带负电荷的线粒体基质15,而后者则通过其带正电荷的三苯基磷𬭩离子来评估相对线粒体膜电位16。尽管这些染料无需转基因操作即可使用,但线虫具有较厚的角质层,其结构和通透性会随衰老而改变,且不同组织间染料渗透程度存在差异,这使得基于染料的方法在 C. elegans 中应用困难17。此外,染料可能产生脱靶效应(如染料聚集),从而干扰对线粒体形态的评估17。因此,在线虫模型中通常采用遗传学方法表达定位于线粒体的荧光蛋白。
本研究重点在于利用细胞类型特异性启动子,突出显示表达线粒体基质定位绿色荧光蛋白(下文简称 MLS::GFP)的转基因品系。重要的是,这些转基因品系采用 MosSCI 方法构建,以确保报告基因在已知基因组位点上以单拷贝形式表达,从而避免了其他现有品系存在的问题。例如,某些线粒体靶向蛋白的高拷贝表达会因染色体外质粒阵列随机整合到基因组中且拷贝数未知,导致表达水平存在较大变异性18。此外,已有研究表明,过量表达的线粒体蛋白会给细胞带来较高负担,难以正确将其靶向定位至线粒体,从而可能诱导线粒体损伤19。因此,MosSCI 转基因品系具有基因表达精确、稳定、水平低以及易于与已知位点品系杂交 等优势,成为首选方法。利用这些品系,本研究建立了在秀丽隐杆线虫(C. elegans)肌肉、肠道和表皮中成像线粒体的标准化方法。此外,本文还强调了在研究 C. elegans 衰老过程中线粒体变化时,需重点关注的关键技术应用及故障排除方法,以确保实验结果的可重复性。
方案
本研究中所用试剂和设备的详细信息见材料表。
1. C. elegans 的培养与维持
- 制备线虫生长培养基(NGM)平板
- 用于培养 秀丽隐杆线虫,使用含1 mM CaCl的NGM标准2%琼脂平板2,12.93 μM(5 µg/mL)胆固醇,25 mM KPO4 (pH 6.0),1 mM MgSO₄4,2.5 mM(0.25% w/v)蛋白胨,以及 51.3 mM NaCl。NGM 平板制备的详细方法见 Castro Torres 等人的描述。20.
注意:进行RNA干扰(RNAi)实验时,每升NGM-agar平板中加入1 mL 1 M IPTG和1 mL 100 mg/mL氨苄青霉素(Carbenicillin)。 - NGM 平板凝固后,在室温下于溶菌肉汤(LB)中培养 OP50 菌株 24–48 小时,或在 37 °C 振荡培养携带 pL4440 空载体质粒的 HT115 菌株于含抗生素(氨苄青霉素/羧苄青霉素 100 µg/mL + 四环素 5 µg/mL)的 LB 培养基中 12–16 小时。
注意:该质粒可从商业来源获得(参见 材料表). - 将200 µL OP50或HT115菌液接种至60 mm培养皿,或将1 mL接种至100 mm培养皿。
- 将平板干燥至不再湿润,然后置于密封容器中,在4 °C下保存,最长可保存2个月。
- 可选:将 100 µL 10 mg/mL 的 5-氟-2'-脱氧尿苷(FUDR)直接加入已接种细菌的 NGM 琼脂平板中,以化学方法阻断 L4/成虫期线虫的繁殖,防止幼虫发育。
注意:本研究中开发和使用的菌株包括:
(1) RHS191 - uthSi17[myo3p::MLS::GFP::unc-54 3'UTR::cb-unc-119(+)] I
(2) RHS192 - uthSi83[col19p:: MLS::GFP::unc-54 3'UTR::cb-unc-119(+)]I
(3) RHS193 - uthSi80[vha-6p:: MLS::GFP::unc-54 3'UTR::cb-unc-119(+)] IV
- 用于培养 秀丽隐杆线虫,使用含1 mM CaCl的NGM标准2%琼脂平板2,12.93 μM(5 µg/mL)胆固醇,25 mM KPO4 (pH 6.0),1 mM MgSO₄4,2.5 mM(0.25% w/v)蛋白胨,以及 51.3 mM NaCl。NGM 平板制备的详细方法见 Castro Torres 等人的描述。20.
- 同步化 秀丽隐杆线虫 通过漂白
- 对于需要大量线虫的大规模实验,将长满线虫的60 mm NGM-琼脂平板切成小块,转接到已接种细菌的100 mm平板上进行扩增。在20 °C条件下培养,转接后2–3天即可使100 mm平板长满线虫。有关线虫扩增的更详细建议,请参阅Castro Torres等人的文献。20.
- 为收集用于同步化的线虫,倒入5-10 mL M9溶液(22 mM KH2PO4 一元碱,42.3 mM Na2HPO4,85.6 mM NaCl,1 mM MgSO₄4) 转移至含有线虫的100 mm NGM-琼脂平板上,轻轻摇动M9溶液以使线虫从细菌菌苔上脱落。
- 用移液管吸取线虫,并转移至15 mL锥形管中。
注意:建议使用玻璃血清移液管,因为塑料血清移液管容易导致线虫黏附在管壁内侧。 - 离心30秒,1,100 x g 在室温下离心以沉淀线虫,并使用真空泵吸除上清液。
- 配制 5 mL 漂白溶液,其中包含 1.5 mL 6% 次氯酸钠、0.75 mL 5 M NaOH 或 KOH,以及 2.75 mL dH₂O2将5 mL漂白液加入到线虫沉淀中。
注意:此步骤建议佩戴手套和实验服,因为次氯酸钠和氢氧化物溶液具有腐蚀性。 - 将线虫与漂白液混合物孵育约4-6分钟,直至所有虫体完全溶解,仅剩卵。剧烈振荡混合物以促进溶解过程。
注意:在解剖显微镜下每分钟检查一次线虫。根据成虫虫体溶解程度调整漂白时间的长短。将卵长时间留在漂白液中会导致卵受损,影响线虫的存活率。 - 将卵/漂白液混合物在1,100 x g下离心30秒 g 在室温下离心以沉淀卵子,然后使用真空泵小心吸除上清液,注意不要吸走卵子沉淀。
注意:建议快速进行洗涤操作,以避免卵长时间暴露于漂白液中。 - 用5-10 mL M9溶液清洗卵4次。
- 将卵重悬于少量M9溶液中,用移液器取最多50 µL滴加到接种有细菌的NGM平板上。取3–5 µL卵悬液滴于平板上,计数该体积内的卵数,据此粗略估算卵的总数。加入M9溶液稀释卵悬液,使该体积内的卵数达到可计数范围。
注意:建议每皿接种少于100条线虫,因为接种动物过多时,线虫可能在成虫第1天前因食物耗尽而饥饿死亡。有关动物接种数量的更详细建议,请参见Castro Torres等人的研究。20. - 或者,将线虫进行L1期阻滞以实现更紧密的年龄同步。对于L1期阻滞,向15 mL锥形管中的卵沉淀中加入适量M9溶液,使总体积达到10–12 mL。将线虫在20 °C下于旋转仪中旋转孵育16–24小时。离心(同步骤1.2.7)并吸除上清液。计算L1期线虫的浓度,并参照步骤1.2.9中关于卵的操作方法将其接种至NGM平板上。
- 年龄淘汰 秀丽隐杆线虫 将种群培养至目标年龄:按照步骤1.1.6所述,将L4期或成虫期线虫转移至含有5-氟-2'-脱氧尿苷(FUDR)的培养板中,以抑制子代产生并清除已产生的后代。如需不使用FUDR进行线虫衰老的替代方法,可参考Castro Torres等人的研究。20.
注意:在选择使用次氯酸钠漂白法作为同步化线虫至其第一幼虫阶段的方法之前,需考虑一些重要因素。如前所述,过度暴露于漂白剂会损伤胚胎、降低孵化率,并对耐漂白品系产生选择压力,从而可能改变种群的遗传特性。此外,若胚胎长时间未给予食物,营养耗竭将会影响其代谢与发育。因此,可采用产卵法或 NemaSync 方法作为漂白法的替代方案。产卵操作的具体步骤已在 Castro Torres 等人的相关研究中逐步描述。20NemaSync 是一种较新且更昂贵的商业方法,该方法使用手动线虫同步仪对线虫进行同步化,无需使用化学试剂。21.
2. 在 C. elegans中对线粒体进行成像
- 用于成像的玻片制备 秀丽隐杆线虫
- 在载玻片上加入10–20 μL M9溶液,将特定年龄的适量成虫转移至载玻片上的溶液中。建议数量约为25条线虫。
注意:使用传统方法使线虫麻痹(例如四甲咪唑或叠氮化钠)在某些条件下可能导致线粒体断裂(见下文)。建议改用 HistoBond 载玻片,其表面具有永久性正电荷,可在不使用可能引入人为假象的药物的情况下减少线虫的移动。添加线虫与 M9 溶液的比例应适当,体积过低可能导致线虫在载玻片与盖玻片之间被压碎,而体积过高则会导致成像过程中线虫移动。相关建议可参见 表1. - 或者,若使用可麻痹线虫的药物,可参考本文稿件中的代表性结果,其中提供了在有限线粒体碎片化的条件下可采用的药物浓度范围和时间点。
注意:尽管在健康的野生型动物中未观察到明显的线粒体碎片化,但需注意某些突变体或特定条件下,使用相同浓度的这些药物可能会导致线粒体碎片化,因此在使用这些药物时需进行必要的测试。 - 在载玻片上用盖玻片覆盖含有线虫的M9溶液,并用指甲油密封盖玻片四周,防止M9溶液蒸发。
- 可选:进行肌肉成像时,可轻轻推动盖玻片使线虫翻转,从而使线虫体壁侧面的肌肉更充分地与焦平面平行,获得更高质量的图像。
- 在载玻片上加入10–20 μL M9溶液,将特定年龄的适量成虫转移至载玻片上的溶液中。建议数量约为25条线虫。
- 使用复合显微镜对线粒体进行成像
- 使用标准的宽场显微镜观察肌肉和下皮层线粒体(myo-3p::MLS::GFP 和 col-19p::MLS::GFP).
注意:使用了 commercially available imager,配备 63x/1.4 Plan Aprochromat 物镜、GFP 滤光片(11525314)、DFC9000 GT 相机和 LED5 光源, 使用了兼容的显微镜软件。 - 针对每台显微镜和实验装置优化成像参数设置。
注意:然而,作为起始点,本文所用成像仪的成像参数如下:表皮下线粒体的成像尺寸为2048 (x) × 2048 (y) 像素,步长为0.50 μm, "系统优化" 由软件自动计算肌肉线粒体相关参数。肌肉线粒体的曝光时间为50 ms,皮下线粒体的曝光时间也为50 ms。475 nm LED光源功率设置为50%,中性密度滤光片对于肌肉线粒体设置为30%,对于皮下线粒体设置为17%。Z轴扫描范围从GFP信号开始出现的位置延伸至信号消失的位置。为减少最大强度投影(max-projection)中的背景噪声,可减少用于最大强度投影的z平面数量。 - 用于肠道线粒体的成像(vha-6p::MLS::GFP),使用共聚焦显微镜。
注意:成像使用配备63x/1.4 Plan ApoChromat物镜、白光激光器(WLL)、声光偏转器(Acousto-Optical Beam Splitter)、HyD S探测器的商用共聚焦显微镜,并在显微镜软件上运行。如前所述,应针对每个独立的实验系统进行参数优化,但作为起始参考,本研究中使用Stellaris探针的成像参数如下:白光激光器设置为最大功率的85.00%,485 nm激光线强度为3.00%。HyD S探测器检测范围设为490–590 nm,模拟增益设为25。采用单向扫描,扫描范围为1024 (x) × 1024 (y) 像素,对应82.01 μm (x) × 82.01 μm (y),z轴方向采集5个层面,步长为0.495 μm(z轴维度可根据线虫或组织的大小调整),扫描速度为1,000 Hz,放大倍数为2.25,线平均为2,针孔大小为1 AU(95.5 μm)。Z轴扫描范围从GFP信号开始出现的位置至信号消失的位置。为减少最大投影(max-projection)中的噪声,可减少用于最大投影的z平面数量。
- 使用标准的宽场显微镜观察肌肉和下皮层线粒体(myo-3p::MLS::GFP 和 col-19p::MLS::GFP).
- 线粒体形态的定量分析
注:详情请参见 Schindelin 等人。22 并观察 补充图 1A-D.- 下载并安装 FIJI(Fiji is just ImageJ,https://fiji.sc/)软件。然后 打开 FIJI.
- 要下载和安装 MitoMAPR 宏,请从源代码 1 下载 https://doi.org/10.7554/eLife.49158.033. 然后复制下面提到的所有代码 "A.)MitoMAPR-1.0 的 IJM 代码。" 接下来,打开 Fiji,转到 插件 > 新 > 大体,并将之前复制的代码粘贴到宏窗口中。转到 文件 > 保存为 选项,并将宏保存以供将来使用。
- 通过将文件拖放到FIJI工具栏,或通过以下步骤在FIJI中打开带有Z-stack的3D显微图像: 文件 > 打开.
- 通过执行以下操作创建图像的最大投影: 图像 > 堆叠 > Z 项目,然后选择包含清晰图像的切片范围进行最大投影,并选择 最大强度 作为投影类型。
- 通过以下步骤将图像另存为 TIFF 格式: 文件 > 另存为 > Tiff.
- 使用以下方法从完整图像中裁剪出感兴趣的区域(ROI): "矩形" 工具,绘制一个感兴趣区域(ROI),然后前往 图像 > 作物.
- 通过以下步骤将图像另存为 TIFF 格式: 文件 > 另存为 > Tiff.
- 运行之前保存的 MitoMAPR 宏,方法是将宏文件拖放到 Fiji 工具栏上,然后单击 运行将弹出一个新窗口,提示选择在步骤 2.3.6 中保存 Tiff 文件的文件夹。
- 将弹出一个新窗口提示选择区域;使用前文2.3.4步骤中提到的矩形工具在图像上创建一个矩形,然后按 好的.
注意:如果图像已按照步骤 2.3.6 中所述进行过裁剪,则可选择整幅图像。保存 "数据" 通过前往将所有与线粒体形态相关的数值以 Excel 文件形式保存在窗口中 文件 > 保存为 > 保存.
- 使用 FIJI 宏批量处理样本
- 创建一个宏以指定待分析图像的区域。打开 Fiji 并前往 插件 > 新 > 大体. 将以下代码粘贴到文本框中,并按照 2.3.2 节所述保存宏补充图1E-H).
注意:制作 矩形 (100, 100, 200, 200);运行(指定...,宽度 = 100,高度 = 100,x = 100,y = 100,已缩放). - 创建一个将所有已打开的图像保存为 TIFF 文件的宏。在宏窗口中,转到 文件 > 新 并将以下代码粘贴到文本框中。按照 2.3.2 节所述保存该宏。
注意:dir = getDirectory("选择 一个文件夹"); ids = newArray(nImages); for (i = 0; i < nImages; i++) { ids[i] = i; }<nImages;i++) { selectImage(i+1); title = getTitle; print(title); Stack.setChannel(1); ids[i]=getImageID; saveAs("tiff",dir+title.replace("/", "-"));}. - 为批量MitoMAPR创建一个宏。转到 https://doi.org/10.7554/eLife.49158.033 源代码1,复制其中列出的全部代码 B.)MitoMAPR-1.0_Batch 的 IJM 代码"在宏窗口中,转到 文件 > 新,将源代码1中的代码粘贴到文本框中,并按照步骤2.3.2所述保存宏。
- 创建一个用于迭代裁剪的宏。转到 https://doi.org/10.7554/eLife.49158.033 源代码 1,复制其中列出的所有代码 C.) CropR 的 IJM 代码"在宏窗口内, 转到“文件” > 新,将源代码1中的代码粘贴到文本框中,并按照步骤2.3.2所述保存宏。
- 开始批量处理时,首先通过打开所有待处理图像并运行步骤 2.4.2 中保存的宏,将所有图像另存为 TIFF 格式。所有图像将被保存至指定文件夹中。保存完成后关闭所有图像。
- 如果在步骤 2.4.5 中保存的图像是 3D 图像(包含 z 层堆栈的图像),则通过生成 Z 投影将其转换为 2D 图像。要批量进行 Z 投影,请通过以下路径打开批量处理窗口: 过程 > 批次 > 大体 在主 FIJI 窗口中。
- 对于 "输入",从2.4.5中选择包含所有待处理3D图像的文件夹位置。 "输出",选择处理后保存图像的目标位置。将输出格式选择为 TIFF。将以下代码粘贴到窗口中的大文本框内,然后按下 过程 按钮: 运行"Z 投影...", "投影方式=[最大强度投影]").
- 使用 2.4.4 步骤中的迭代裁剪宏,结合 2.4.3 步骤中的指定区域宏,从所有待处理的二维图像中裁剪出尺寸相同的感兴趣区域。运行 2.4.4 步骤中的迭代裁剪宏,此时将弹出一个窗口,提示选择目录。
- 选择仅包含步骤 2.4.5 中的二维图像或步骤 2.4.6 中二维 Z 投影图像的文件夹,然后按下 选择 按钮。该宏将打开所选文件夹中的其中一幅图像,并弹出一个标记为 "进行选择" 会出现两个按钮。
- 运行步骤 2.4.3 中指定的选择宏。根据需要修改该宏文本框中的宽度和高度值,以更改选择区域的尺寸,然后按 运行 观察新的选区。在宏中更改X和Y值将修改选区左上角的位置。
- 当选择的尺寸合适后,将矩形拖动到目标区域,然后按压 好的 按钮 "进行选择" 窗口。裁剪区域将保存至步骤 2.4.7 中选定的文件夹。
- 该宏将遍历文件夹中所有剩余的图像。对于每幅图像,运行步骤 2.4.8 中的宏,且不更改尺寸数值,以确保所有图像裁剪的尺寸相同。对于每幅图像,将选择矩形拖动至所需位置,然后按下 好的 按钮在 "进行选择" 窗口。
- 打开包含步骤 2.4.8-2.4.9 中裁剪图像的文件夹,将所有裁剪后的图像移至一个新文件夹。
- 通过运行步骤 2.4.3 中的批量 MitoMAPR 宏来分析所有裁剪后的图像。此时将弹出一个新窗口,提示您选择一个目录。请选择步骤 2.4.10 中包含所有裁剪图像的文件夹。完成后,将出现一个名为 "数据" 将弹出包含所有与线粒体形态相关数值的窗口。按照步骤 2.3.9 中所述,将所有数据保存为 Excel 文件。
- 创建一个宏以指定待分析图像的区域。打开 Fiji 并前往 插件 > 新 > 大体. 将以下代码粘贴到文本框中,并按照 2.3.2 节所述保存宏补充图1E-H).
结果
C. elegans 是进行线粒体成像的优良模型,因其身体透明,便于在无需复杂样品制备的情况下对完整活体动物进行全 organism 成像。此外,通过使用组织特异性启动子驱动线粒体靶向荧光蛋白的表达,可轻松观察不同组织中的线粒体形态。本研究中,分别利用 myo-3p(用于肌肉线粒体)、vha-6p(用于肠道线粒体)和 col-19p(用于表皮下层线粒体)启动子驱动表达一种线粒体靶向的绿色荧光蛋白(GFP),该蛋白融合了ATP-1蛋白的线粒体定位序列。C. elegans 体壁肌肉中的线粒体呈管状结构,沿肌纤维(肌原纤维)排列(图1A);肠道线粒体则呈现高度互联的网状结构,排列较为不规则(图1B);而表皮下层的线粒体虽也为管状,但相较于肠道或肌肉中的线粒体,其形态更趋圆形或椭圆形(图1C)。在线粒体形态方面,肌肉和肠道沿虫体长度方向通常保持一致,但表皮下层在虫体近端与远端之间的线粒体连接程度存在轻微差异。因此,为获得可重复的实验结果,建议聚焦于虫体的特定区域进行观察。本文中, consistently 对咽部下方约 100–200 μm 处、位于咽部与阴门之间的区域进行成像。
对于肌肉和下皮层线粒体,由于细胞扁平且离焦光较少,使用复式显微镜观察即可获得足够的分辨率。然而,由于肠道体积较大,来自肠道其他部位的大量离焦光会限制分辨率,因此很难通过复式显微镜观察肠道线粒体(图2)。因此,建议使用共聚焦显微镜观察肠道线粒体,以减少离焦光的影响,从而清晰呈现线粒体的正确形态。
线粒体的形态具有高度动态性,会根据动物的代谢环境23,甚至因暴露于不同硬度的基质而发生变化24。因此,将动物长时间置于显微镜载玻片上,且在缺乏食物来源以及处于玻璃等坚硬基质的条件下,可能会影响线粒体的形态。本研究发现,线虫在M9溶液中的载玻片上放置约30分钟后,其线粒体会发生断裂,其中表皮细胞线粒体的断裂最为明显(图3)。因此,样品制备后应尽快进行线粒体成像。
用于限制线虫运动的化学试剂,包括叠氮化钠和四咪唑,常被用于秀丽隐杆线虫(C. elegans)的活体成像,因为获取动物的三维图像需要采集多个z轴层面,而这一过程要求线虫保持静止。先前的研究表明,暴露于叠氮化钠或四咪唑可导致线粒体断裂25。令人意外的是,研究发现即使在高浓度下,叠氮化钠对肌肉或肠道中的线粒体形态影响有限。然而,与M9对照组相比,表皮组织表现出更早的线粒体断裂现象(图3)。重要的是,高浓度四咪唑(100 mM)在施加后立即导致所有细胞类型中出现显著的线粒体断裂。相比之下,中等浓度(10 mM)引起的断裂速度也快于M9对照组,而低浓度(1 mM)对线粒体形态的影响较小。这些数据表明,在快速线粒体成像中使用叠氮化钠可能是一种可行的选择,而四咪唑则应尽量避免使用。
C. elegans 所有组织的线粒体在自然衰老过程中均表现出碎片化现象(图4A)。这种碎片化表现为线粒体呈现为更短小且接近球形的结构,与年轻个体中所见的线性管状线粒体形成显著差异。需要注意的是,肠道在较晚龄期会增加球形自发荧光结构的数量,因此需谨慎避免将自发荧光与真实的线粒体结构相混淆。由于线粒体结构在不同线虫个体间可能存在变异,因此应对足够大的样本量进行线粒体形态的定量分析,而不仅仅观察少数个体。本研究采用了 mitoMAPR 方法,该方法可利用多种参数对线粒体形态进行自动化定量分析,包括对象数量、网络结构、每网络的连接点数、连接点总数、对象长度、线粒体足迹、线粒体覆盖率以及对象面积(补充表1 和 补充表2)。自动化分析可消除人为判断带来的主观偏差。本文报道,对象长度参数最适合用于定量评估肌肉和肠道线粒体在衰老过程中的形态变化,而连接点参数则适用于评估表皮下层线粒体在衰老过程中的形态变化(图4B)。
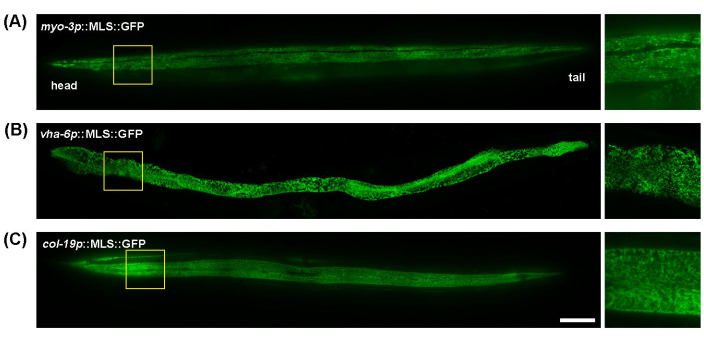
图1:C. elegans 全身线粒体图像。对从L1阶段起在EV培养基上生长至第5天成虫期的转基因动物进行全身线粒体成像,这些动物在肌肉(A)、肠道(B)和表皮(C)中表达MLS::GFP。比例尺:100 μm。请点击此处查看该图的放大版本。
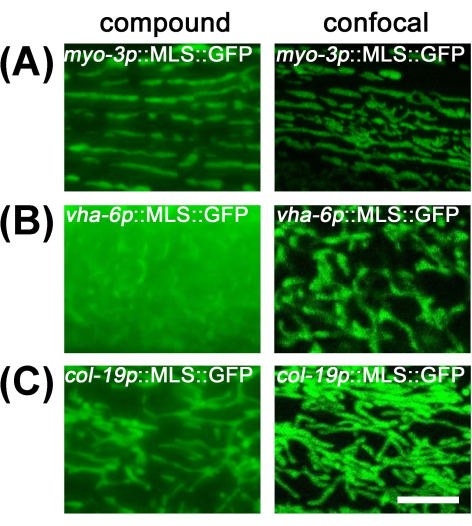
图2:复合显微镜与共聚焦显微镜在线粒体成像中的比较。 对从L1期开始在EV上培养的转基因动物进行线粒体成像,这些动物在肌肉(A)、肠道(B)和表皮(C)中表达MLS::GFP。比例尺:5 μm。 请点击此处查看该图的放大版本。
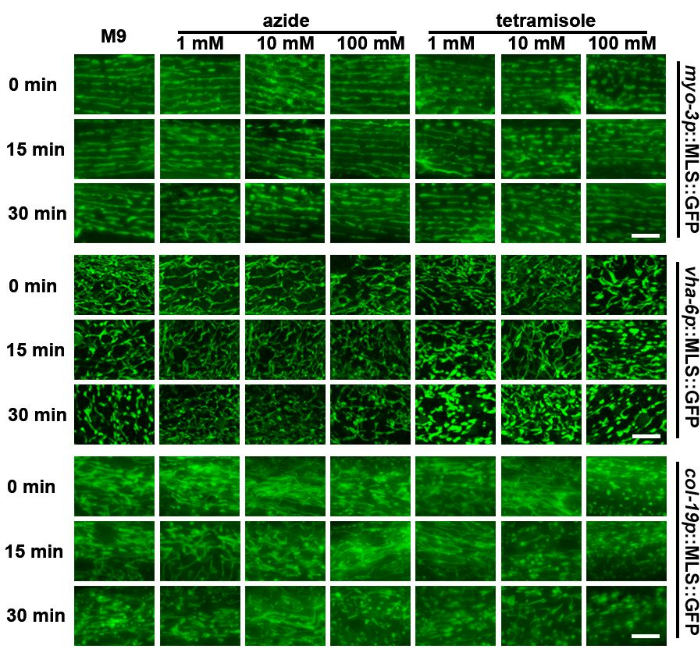
图3不同组织经 M9、叠氮化钠和四咪唑处理后线粒体断裂的评估 在成年动物发育的第1天,对在肌肉、肠道和表皮中表达MLS::GFP的个体进行线粒体成像。动物自L1阶段起在EV上培养。将动物置于载玻片上,载玻片内含有M9、叠氮化钠(1 mM、10 mM和100 mM)或四咪唑(1 mM、10 mM和100 mM),并在制片后立即(0分钟)、15分钟或30分钟进行成像。图中展示了代表性图像,n > 每品系5只动物,共2个生物学重复。比例尺: 5 μm. 请点击此处查看此图的放大版本。
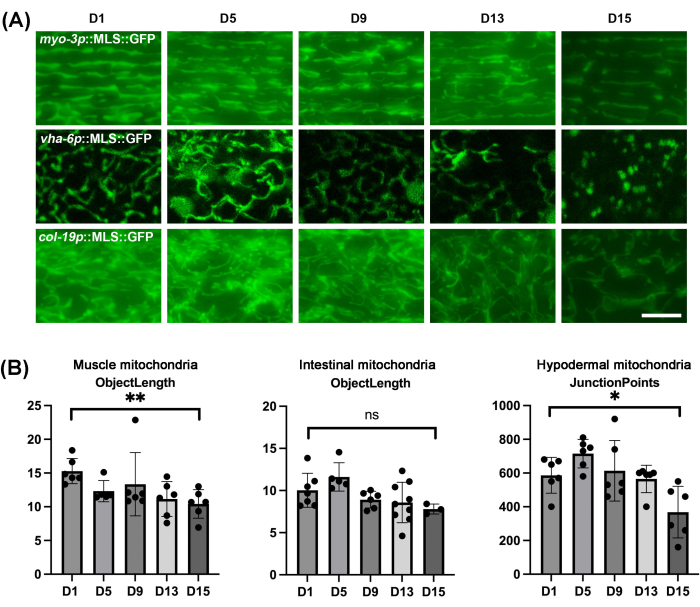
图 4:不同组织中秀丽隐杆线虫(C. elegans)衰老过程中的线粒体成像,以及使用 MitoMAPR 对线粒体形态的定量分析。(A)在成虫期第1、5、9、13和15天,对表达肌肉、肠道和表皮组织中MLS::GFP的成年线虫进行线粒体成像。动物从L1阶段起培养于含空载体(EV)的培养基上,并从成虫第1天起转移至含有氟脱氧尿苷(FUDR)的EV平板上。图像代表每种品系每次实验 ≥ 5只动物的结果,且实验重复 ≥ 3次生物学重复。比例尺:5 μm。(B)对成虫期第1、5、9、13和15天的肌肉线粒体和肠线粒体的对象长度,以及表皮线粒体连接点数量的定量分析。所有单个数据点均显示,并叠加均值 ± 标准差(SD)。图表使用学生t检验(t-test)进行绘制和统计分析。ns = 无显著性差异,*p < 0.03;**p < 0.002;***p < 0.0002;****p < 0.0001。请点击此处查看此图的高清版本。
| 线虫培养天数 | 线虫数量 | 缓冲液体积 (mL) |
| 1 | 25 | 13 |
| 5 | 25 | 14 |
| 9 | 20 | 15 |
| 13 | 20 | 15 |
表1:制备玻片时推荐使用的线虫数量及缓冲液体积。
补充图1:使用MitoMAPR进行单张图像定量分析及多图像批量处理的工作流程。(A)使用MitoMAPR宏对单张图像中的线粒体形态进行定量分析的工作流程。(B)使用Fiji软件对原始3D图像文件进行Z轴投影(最大强度投影)。(C)从Z轴投影图像中裁剪出感兴趣区域。(D)通过MitoMAPR宏获得的骨架化图像。比例尺:5 μm。(E)使用MitoMAPR宏通过批量处理对多张图像中的线粒体形态进行定量分析的工作流程。(F)裁剪宏的截图。(G)Z轴投影批量处理的截图。(H)批量裁剪宏的选择确认窗口截图。请点击此处下载该文件。
补充表 1:秀丽隐杆线虫(C. elegans)肌肉组织中线粒体形态学指标的定量分析。记录的指标包括对象数量、网络结构、每个网络的连接点数、连接点总数、对象长度、线粒体投影面积、对象面积以及线粒体覆盖率,以上数据在不同时间点进行测量。这些数据为评估线粒体形态随衰老发生的变化提供了依据。请点击此处下载该文件。
补充表 2:固定化学试剂对 C. elegans 线粒体形态的影响。 数据包括在使用 M9 缓冲液或不同浓度的四咪唑和叠氮化钠处理样品后,在不同浓度和时间点测得的对象数量、网络结构、每个网络的连接点、连接位点、对象长度、线粒体投影面积、对象面积以及线粒体覆盖范围等指标。请点击此处下载该文件。
讨论
线粒体形态的荧光成像技术是检测线粒体变化最常用的方法。尽管透射电子显微镜(TEM)、原子力显微镜和冷冻电镜等先进显微技术可提供更高的分辨率,但荧光显微镜对大多数研究人员而言成本更低且更易获得。此外,荧光显微镜可用于活细胞成像,对于如C. elegans这类透明的模式生物,还可实现对完整个体的成像26,27。转基因C. elegans的成像操作十分简便,且由于使用基因编码的荧光标记物,线粒体成像更加可靠和稳定,无需复杂的样品处理,也避免了传统线粒体染料(如MitoTracker或TMRE)在不同细胞类型或实验条件下染色不均的问题28,29,30。基因编码的荧光标记通常通过将荧光蛋白直接标记在线粒体蛋白上,或将荧光蛋白与最小线粒体定位序列(MLS)融合来实现。这些构建体通常由组织特异性启动子驱动,从而可在肌肉、肠道或表皮等不同组织中实现线粒体的可视化31。通常情况下,这些荧光标记蛋白会被过表达,若全长线粒体蛋白过量表达,可能产生非预期的生理效应;因此,使用最小MLS序列是更优的选择32。然而,即使使用最小MLS与荧光蛋白的融合蛋白,也应避免过高表达,因为大量蛋白导入线粒体可能导致线粒体膜电位崩溃,进而影响动物健康33。尽管全面表征目前所有可用的C. elegans品系超出了本文范围,但有关多种线粒体报告系统的详细比较分析及其各自的优缺点可参见此处31。
对于秀丽隐杆线虫(C. elegans)中线粒体的活细胞成像,由于标准复式显微镜或宽场显微镜在成像速度和操作简便性方面优于共聚焦显微镜,因此可能是更优选的方法。本研究表明,对于肌肉和表皮等扁平细胞,共聚焦显微镜带来的优势有限,而复式显微镜即可获得足够分辨率,用于观察正常的线粒体形态。然而,对于肠道等较大的细胞,由于存在焦外光干扰,复式显微镜成像较为困难。因此,可靠地观察肠道线粒体形态需要采用共聚焦显微镜。
在活体动物中对组织全厚度进行三维成像时,一个重要考虑因素是防止蠕虫在图像采集过程中移动。研究人员常使用使蠕虫麻痹的方法,例如使用四甲咪唑(tetramisole)或叠氮化钠(sodium azide)34。叠氮化钠通过抑制线粒体电子传递链中的关键酶——细胞色素c氧化酶(复合体IV),导致ATP生成不足,从而引起肌肉收缩及其他细胞功能所需的能量缺乏,最终造成整体麻痹34,35。四甲咪唑则通过在神经肌肉接头处模拟乙酰胆碱的作用,引起持续性去极化和肌肉收缩36。然而,暴露于这些药物可能因引发氧化应激而导致线粒体断裂23。本研究发现,四甲咪唑会极快速地诱导线粒体断裂,而叠氮化钠的影响则显著较小。
C. elegans 因其寿命短且易于实现动物衰老,为研究衰老对线粒体形态的影响提供了极为简单便捷的途径。在此,我们选择使用氟脱氧尿苷(FUDR)处理,这是一种通过抑制DNA复制来实现动物化学性不育的可靠方法20,37,38。然而,FUDR可能对某些特定的衰老参数产生非预期的影响;对于关注FUDR脱靶效应的研究者,可采用其他去除子代的方法39。例如,可使用不育突变体,包括温度敏感型生殖系突变体glp-4,或精子缺陷型突变体(如CF512)40,41,42。作为替代方案,也可通过每天手动将成虫从其子代中挑出,使其自然衰老。
线粒体形态变化的定量分析同样至关重要,因为不同动物之间的线粒体形态可能存在显著差异。因此,对足够大的样本量进行定量分析和统计,对于得出有关线粒体形态变化的可靠结论是必不可少的。然而,图像分析与定量可能受到主观偏差的严重影响,且对高度复杂的结构(如相互连接的线粒体)成像也存在挑战。为此,本文总结了由Mair实验室开发的、利用多种参数对线粒体形态进行自动定量分析的方法。MitoMAPR可实现对线粒体形态的客观、自动化定量,测量线粒体的多个方面,包括线粒体网络、 对象长度、分布、网络覆盖范围以及线粒体占据面积。MitoMAPR是ImageJ的一个免费宏工具,因此所有具备正常计算机设备的实验室均可使用。使用MitoMAPR的一个重要方面是在大样本量基础上进行定量分析,以确定哪种线粒体形态参数在检测实验条件下变化时最具稳健性43,44。本研究发现,在肌肉、肠道和表皮中,对象长度和连接点数量是判断衰老过程中线粒体形态变化的最佳参数。分析线粒体形态变化的另一种方法是基于z轴层扫图像构建线粒体的三维(3D)结构,随后进行三维分析16,45。该方法可借助商业软件实现,例如配备SharpStack Total Deconvolution和3D Constructor模块的Image-Pro Plus。研究表明,对线粒体三维结构的定量分析能够更准确地揭示线粒体的形状和网络特性46。然而,与半三维方法相比,该方法在技术上更为复杂且成本更高;半三维方法是将宽场或共聚焦显微镜获得的z轴层扫图像的多个切片合并为单一的二维投影图像,并使用如mitoMAPR等工具进行分析。本研究总结了线粒体基质靶向GFP的单拷贝表达的应用,并详细说明了成像过程中应避免的一些常见问题。
局限性与时间考量
尽管共聚焦显微镜适用于肠道组织等大而厚的组织,但标准的逐线扫描共聚焦显微技术可能成像速度过慢,难以快速获取线粒体的动态图像。这一点尤其重要,因为我们的数据表明,将线虫长时间置于载玻片上会导致线粒体发生断裂。尽管共聚焦显微技术已取得显著进展,但能够实现快速成像的显微镜(如转盘式共聚焦、Airyscan,或本研究中所使用的设备)对部分实验室而言可能成本过高。在此情况下,可将复式显微镜与计算去模糊技术相结合,以去除离焦光信号,例如反卷积方法47。
此外,如前所述,MitoMAPR 是一种强大的自动化宏工具,可对线粒体长度及线粒体网络的相互连接性进行定量测量。然而,在使用时应谨慎考虑此处列出的局限性。首先,使用基质靶向的 GFP 仅能观察到线粒体内膜的断裂情况,这可能无法完全反映线粒体外膜的形态,因为内膜的分裂事件可能在缺乏外膜分裂的情况下发生。因此,为了更精确地对两层膜同时成像,应同时使用靶向基质和靶向线粒体外膜的荧光标记物。由于线粒体外膜标记物在过表达水平较高时可能产生与基质定位蛋白类似的不良影响,建议使用单拷贝标记物,尤其是那些采用最小线粒体定位序列而非完整蛋白的标记物(如本文所用的标记物)31。
如图3所述,在显微镜下,线粒体可迅速发生断裂,而不同的样品载玻片制备方法会因所用缓冲液的不同而显著影响其形态。本文所展示的代表性数据表明,在M9缓冲液和低浓度叠氮化钠条件下,线虫的线粒体仅发生轻微的断裂。另一种广泛用于麻痹线虫的化学试剂——四咪唑(tetramisole),则会迅速引起线粒体断裂,因此通常应避免使用。尽管M9缓冲液和叠氮化钠未表现出明显的线粒体断裂,但需注意的是,不同品系的反应可能与本文所示结果存在差异。虽然已有其他研究显示叠氮化钠可导致线粒体断裂,但本研究中所用品系可能由于构建体表达水平较低,因而对叠氮化钠暴露未表现出显著的线粒体断裂。高表达定位于线粒体的蛋白可能导致膜电位崩溃,因此其他研究中使用的不同品系可能使线粒体对本研究所用浓度的叠氮化钠更为敏感,从而更易发生断裂。因此,在所有研究中,使用任何用于麻痹线虫的化学试剂前,均应预先验证其在特定实验条件下是否会引起线粒体断裂,因为特定突变体或实验条件可能对药物诱导的线粒体断裂更为敏感。此外,即使将线虫置于M9缓冲液中,也可能改变其天然的线粒体形态和活性,因为先前研究已表明线虫在M9缓冲液中的游动行为会影响线粒体的分裂与融合动态。同时,长时间将线虫留在M9缓冲液中还可能激活缺氧应答,导致线粒体蛋白质稳态紊乱,从而显著影响线粒体功能48,49。
最后,另一个重要的考虑因素是,尽管线粒体形态的变化通常与线粒体功能的变化相关,但两者之间并不总是存在直接关联。因此,建议对线粒体功能进行更全面的分析。例如,可使用Seahorse仪器测量氧气消耗速率50,利用JC9或TMRE等膜电位染料检测线粒体膜电位51,使用对氧化还原敏感的染料(如roGFP)评估线粒体氧化状态52,并通过检测对鱼藤酮等应激因子的敏感性来衡量线粒体应激耐受能力53。由于线粒体成像速度较快,我们在此提供的方法可作为快速初筛手段,用于判断实验条件是否影响线粒体形态。这些方法甚至适用于药物或基因的大规模筛选,但建议后续结合其他指标进行更深入的线粒体功能分析。总体而言,本文综述了目前认为在C. elegans中成像线粒体形态最简便且实验误差最小的方法。
披露
作者无任何利益冲突需要披露。
致谢
J.K. 由南加州大学校长奖学金资助;M.A. 和 G.G. 由 T32AG052374 项目资助;M.V. 由 1R25AG076400 项目资助;R.H.S. 由美国国家老龄化研究所的 R01AG079806 项目以及 Larry L. Hillblom 基金会的 2022-A-010-SUP 项目资助。部分线虫品系由线虫遗传中心(CGC)提供,CGC 由美国国立卫生研究院研究基础设施项目基金 P40 OD010440 资助。部分基因分析使用 Wormbase 完成,Wormbase 由 U41 基金 HG002223 资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 5-氟-2'-脱氧尿苷(FUDR) | Spectrum Chemical | F2026-10GMBL | 用于抑制增殖 |
| APEX IPTG | Genesee | 18-242 | 用于RNAi |
| Bacto 琼脂 | VWR | 90000-764 | 用于NGM平板 |
| Bacto 蛋白胨 | VWR | 97064-330 | 用于NGM平板 |
| 二水合氯化钙 | VWR | 97061-904 | 用于NGM平板 |
| 羧苄青霉素 | VWR | 76345-522 | 用于RNAi |
| 胆固醇 | VWR | 80057-932 | 用于NGM平板 |
| 共聚焦显微镜 | Stellaris 5 | ||
| DMSO | VWR | BDH1115-1LP | 药物溶剂 |
| HistoBond 显微镜载玻片 | VWR | 16005-110 | 用于制备载玻片 |
| LB肉汤 | VWR | 95020-778 | 用于LB培养基 |
| LEICA S7E 体视显微镜 | Leica | 10450840 | 标准体视显微镜 |
| LEICA STELLARIS 5 | Leica | 158101100 | 共聚焦显微镜 |
| LEICA THUNDER | Leica | 11525679 | 复合显微镜 |
| 七水合硫酸镁 | VWR | 97062-132 | 用于NGM平板和M9培养基 |
| pL4440 空载体质粒 | addgene | 质粒 #1654 | 用于空载体对照 |
| 氯化钾 | VWR | 97061-566 | 用于漂白溶液 |
| 磷酸氢二钾 | VWR | EM-PX1570-2 | 用于NGM平板 |
| 磷酸二氢钾 | VWR | EM-PX1565-5 | 用于M9培养基 |
| 叠氮化钠 | VWR | 97064-646 | 用于麻痹线虫 |
| 氯化钠 | VWR | EM-SX0420-5 | 用于NGM平板和M9培养基 |
| 次氯酸钠 | VWR | RC7495.7-32 | 用于漂白溶液 |
| 磷酸氢二钠 | VWR | 71003-472 | 用于M9培养基 |
| 盐酸四环素 | VWR | 97061-638 | 用于RNAi |
| WOB-L¬Æ 干式真空泵,标准型,Welch¬Æ | VWR | 80077-612 | 用于抽吸 |
参考文献
- Protasoni, M., Zeviani, M. Mitochondrial structure and bioenergetics in normal and disease conditions. Int J Mol Sci. 22 (2), 586(2021).
- Wang, Y., et al. The role of mitochondrial dynamics in disease. MedComm. 4 (6), e462(2023).
- Kamer, K. J., Mootha, V. K. The molecular era of the mitochondrial calcium uniporter. Nat Rev Mol Cell Biol. 16 (9), 545-553 (2015).
- Chen, W., Zhao, H., Li, Y. Mitochondrial dynamics in health and disease: mechanisms and potential targets. Signal Transduct Target Ther. 8 (1), 333(2023).
- Adebayo, M., Singh, S., Singh, A. P., Dasgupta, S. Mitochondrial fusion and fission: The fine-tune balance for cellular homeostasis. FASEB J. 35 (6), e21620(2021).
- Madan, S., Uttekar, B., Chowdhary, S., Rikhy, R. Mitochondria lead the way: mitochondrial dynamics and function in cellular movements in development and disease. Front Cell Dev Biol. 9, 781933(2021).
- Sharma, A., Smith, H. J., Yao, P., Mair, W. B. Causal roles of mitochondrial dynamics in longevity and healthy aging. EMBO Rep. 20 (12), e48395(2019).
- Rolland, S. G., Lu, Y., David, C. N., Conradt, B. The BCL-2-like protein CED-9 of C. elegans promotes FZO-1/Mfn1,2- and EAT-3/Opa1-dependent mitochondrial fusion. J Cell Biol. 186 (4), 525-540 (2009).
- Labrousse, A. M., Zappaterra, M. D., Rube, D. A., van der Bliek, A. M. C. elegans dynamin-related protein DRP-1 controls severing of the mitochondrial outer membrane. Mol Cell. 4 (5), 815-826 (1999).
- Dickinson, D. J., Pani, A. M., Heppert, J. K., Higgins, C. D., Goldstein, B. Streamlined genome engineering with a self-excising drug selection cassette. Genetics. 200 (4), 1035-1049 (2015).
- Bosher, J. M., Labouesse, M. RNA interference: Genetic wand and genetic watchdog. Nat Cell Biol. 2 (2), E31-E36 (2000).
- Yu, C. C. J., et al. Expansion microscopy of C. elegans. eLife. 9, e46249(2020).
- Zhang, S., Li, F., Zhou, T., Wang, G., Li, Z. Caenorhabditis elegans as a useful model for studying aging mutations. Front Endocrinol. 11, 554994(2020).
- Dingley, S., et al. Mitochondrial respiratory chain dysfunction variably increases oxidant stress in Caenorhabditis elegans. Mitochondrion. 10 (2), 125-136 (2010).
- Presley, A. D., Fuller, K. M., Arriaga, E. A. MitoTracker Green labeling of mitochondrial proteins and their subsequent analysis by capillary electrophoresis with laser-induced fluorescence detection. J Chromatogr B Anal Technol Biomed Life Sci. 793 (1), 141-150 (2003).
- Mitra, K., Lippincott-Schwartz, J. Analysis of mitochondrial dynamics and functions using imaging approaches. Curr Protoc Cell Biol. Chapter 4, Unit 4.25.1-Unit 4.25.21 (2010).
- Valera-Alberni, M., Yao, P., Romero-Sanz, S., Lanjuin, A., Mair, W. B. Novel imaging tools to study mitochondrial morphology in Caenorhabditis elegans. Life Sci Alliance. 7 (11), e202402918(2024).
- Benedetti, C., Haynes, C. M., Yang, Y., Harding, H. P., Ron, D. Ubiquitin-like protein 5 positively regulates chaperone gene expression in the mitochondrial unfolded protein response. Genetics. 174 (1), 229-239 (2006).
- Begelman, D. V., et al. An aco-2::gfp knock-in enables the monitoring of mitochondrial morphology throughout C. elegans lifespan. microPublication Biol. 2022, (2022).
- Castro Torres, T., et al. Surveying low-cost methods to measure lifespan and healthspan in Caenorhabditis elegans. J Vis Exp. 183, e64091(2022).
- Rasmussen, N. R., Reiner, D. J. Nuclear translocation of the tagged endogenous MAPK MPK-1 denotes a subset of activation events in C. elegans development. J Cell Sci. 134 (17), jcs258456(2021).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Luz, A. L., et al. Mitochondrial morphology and fundamental parameters of the mitochondrial respiratory chain are altered in Caenorhabditis elegans strains deficient in mitochondrial dynamics and homeostasis processes. PLoS One. 10 (6), e0130940(2015).
- Oorloff, M., et al. Mechanical stress through growth on stiffer substrates impacts animal health and longevity in C. elegans. bioRxiv. , (2024).
- Chu, X., Wu, S., Raju, R. NLRX1 regulation following acute mitochondrial injury. Front Immunol. 10, 2431(2019).
- Shah, P., Bao, Z., Zaidel-Bar, R. Visualizing and quantifying molecular and cellular processes in Caenorhabditis elegans using light microscopy. Genetics. 221 (4), iyac068(2022).
- Wang, Y., Wang, P., Li, C. Fluorescence microscopic platforms imaging mitochondrial abnormalities in neurodegenerative diseases. Adv Drug Deliv Rev. 197, 114841(2023).
- Ding, J., et al. An expanded GCaMP reporter toolkit for functional imaging in Caenorhabditis elegans. G3 (Bethesda, Md). 13 (10), jkad183(2023).
- Sarasija, S., Norman, K. R. Analysis of mitochondrial structure in the body wall muscle of Caenorhabditis elegans. Bio-Protocol. 8 (7), e2801(2018).
- Chaweeborisuit, P., Suriyonplengsaeng, C., Suphamungmee, W., Sobhon, P., Meemon, K. Nematicidal effect of plumbagin on Caenorhabditis elegans: A model for testing a nematicidal drug. Z Naturforsch C J Biosci. 71 (5-6), 121-131 (2016).
- Valera-Alberni, M., Yao, P., Romero-Sanz, S., Lanjuin, A., Mair, W. B. Novel imaging tools to study mitochondrial dynamics in Caenorhabditis elegans. 7, 11(2024).
- Bolognesi, B., Lehner, B. Reaching the limit. eLife. 7, e39804(2018).
- Jishi, A., Qi, X. Altered mitochondrial protein homeostasis and proteinopathies. Front Mol Neurosci. 15, 867935(2022).
- Morton, K. S., Wahl, A. K., Meyer, J. N. The effect of common paralytic agents used for fluorescence imaging on redox tone and ATP levels in Caenorhabditis elegans. PLoS One. 19 (4), e0292415(2024).
- Noumi, T., Maeda, M., Futai, M. Mode of inhibition of sodium azide on H+-ATPase of Escherichia coli. FEBS Lett. 213 (2), 381-384 (1987).
- Siete, C., Xiong, R., Khalid, A., Hsieh, Y. -W., Chuang, C. -F. Immobilization of C. elegans with different concentrations of an anesthetic for time-lapse imaging of dynamic protein trafficking in neurons. microPublication Biology. 2024, (2024).
- Mitchell, D. H., Stiles, J. W., Santelli, J., Sanadi, D. R. Synchronous growth and aging of Caenorhabditis elegans in the presence of fluorodeoxyuridine. J Gerontol. 34 (1), 28-36 (1979).
- Santi, D. V., McHenry, C. S. 5-Fluoro-2'-deoxyuridylate: covalent complex with thymidylate synthetase. Proc Natl Acad Sci U S A. 69 (7), 1855-1857 (1972).
- Wang, H., Zhao, Y., Zhang, Z. Age-dependent effects of floxuridine (FUdR) on senescent pathology and mortality in the nematode Caenorhabditis elegans. Biochem Biophys Res Commun. 509 (3), 694-699 (2019).
- Beanan, M. J., Strome, S. Characterization of a germ-line proliferation mutation in C. elegans. Development (Cambridge, England). 116 (3), 755-766 (1992).
- Austin, J., Kimble, J. glp-1 is required in the germ line for regulation of the decision between mitosis and meiosis in C. elegans. Cell. 51 (4), 589-599 (1987).
- Garigan, D., et al. Genetic analysis of tissue aging in Caenorhabditis elegans: A role for heat-shock factor and bacterial proliferation. Genetics. 161 (3), 1101-1112 (2002).
- Zhang, Y., et al. Neuronal TORC1 modulates longevity via AMPK and cell nonautonomous regulation of mitochondrial dynamics in C. elegans. eLife. 8, e49158(2019).
- Dutta, N., et al. Investigating impacts of the mycothiazole chemotype as a chemical probe for the study of mitochondrial function and aging. GeroScience. 46 (6), 6009-6028 (2024).
- Tronstad, K., et al. Regulation and quantification of cellular mitochondrial morphology and content. Curr Pharm Des. 20 (35), 5634-5652 (2014).
- Nikolaisen, J., et al. Automated quantification and integrative analysis of 2D and 3D mitochondrial shape and network properties. PLoS One. 9 (7), e101365(2014).
- Lee, J. S., Wee, T. L. E., Brown, C. M. Calibration of wide-field deconvolution microscopy for quantitative fluorescence imaging. J Biomol Tech. 25 (1), 31-40 (2014).
- Hong, M., Kwon, J. Y., Shim, J., Lee, J. Differential hypoxia response of hsp-16 genes in the nematode. J Mol Biol. 344 (2), 369-381 (2004).
- Yan, J., Sun, C. L., Shin, S., Van Gilst, M., Crowder, C. M. Effect of the mitochondrial unfolded protein response on hypoxic death and mitochondrial protein aggregation. Cell Death Dis. 12 (7), 711(2021).
- Koopman, M., et al. A screening-based platform for the assessment of cellular respiration in Caenorhabditis elegans. Nat Protoc. 11 (10), 1798-1816 (2016).
- Shpilka, T., et al. UPRmt scales mitochondrial network expansion with protein synthesis via mitochondrial import in Caenorhabditis elegans. Nat Comm. 12 (1), 479(2021).
- Braeckman, B. P., Smolders, A., Back, P., De Henau, S. In vivo detection of reactive oxygen species and redox status in Caenorhabditis elegans. antioxidants & redox signaling. 25 (10), 577-592 (2016).
- Bar-Ziv, R., et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 159, e61001(2020).
重印与许可
