本文介绍了一种制备双乳液滴的方法,该液滴包封单个T细胞和一个癌细胞靶标,用于在单细胞水平上研究细胞杀伤作用。该方法能够在大量T细胞中同时定量检测细胞毒性分子和靶细胞的凋亡情况。
本文内容
摘要
摘要
评估基于T细胞的疗法(如嵌合抗原受体(CAR)T细胞治疗)的细胞毒性潜力,对于评价其疗效至关重要,也是临床应用的前提条件。然而,传统的细胞毒性检测通常以群体实验形式进行,无法提供关于CAR T细胞群体功能异质性的详细信息。在本研究中,我们描述了一种基于双重乳液微滴的方法,可实现单个效应CAR T细胞与单个靶细胞的大规模共包封,同时能够对T细胞分泌的细胞毒性效应分子和靶细胞的死亡情况进行双重定量分析。该方案概述了生成和纯化靶向CD19的CAR T细胞的方法,随后将其与CD19+细胞系JeKo-1以及可视化试剂共同包封于微滴中,以检测细胞毒性效应分子的分泌(颗粒酶B)和细胞死亡(使用碘化丙啶,PI)。我们展示了如何利用 commercially available 微流控装置生成包含单个CAR T细胞和靶细胞的双重乳液微滴。此外,我们还提供了使用常规流式细胞仪设备在微滴中检测CAR T细胞功能多样性的示例。最后,我们简要描述了靶向CD19的CAR T细胞杀伤作用的时间动力学特征及其异质性。尽管本方法主要聚焦于CAR T细胞攻击后的细胞死亡过程,但也可适用于研究其他类型的T细胞、细胞毒性免疫细胞以及效应细胞功能(如细胞因子分泌)。
引言
嵌合抗原受体(CAR)T细胞疗法是细胞癌症免疫治疗中迅速发展的领域,已证实对多种类型的白血病、淋巴瘤1和多发性骨髓瘤2具有疗效。CAR T细胞是通过用一种合成的抗原受体对T细胞进行改造而产生的,该受体可选择性地结合表达于B细胞、浆细胞及其恶性对应细胞表面的蛋白质,例如CD19或B细胞成熟抗原(BCMA)。近年来CAR设计的进步使得能够同时靶向多个抗原3,依赖于多个输入信号,或特异性结合肿瘤相关抗原(如特定的蛋白质异构体)4。此外,目前已有多种CAR正在针对非血液系统肿瘤的靶点进行测试5。
细胞毒性检测对于CAR的开发以及临床产品释放前的质量控制至关重要6,7,8。然而,目前大多数检测方法依赖于将过量的效应CAR T细胞群体作用于肿瘤细胞系,这种方法可能因旁观者效应而产生假阳性结果9,并导致体外(in vitro)与体内(in vivo)结果之间相关性较差10。由于T细胞的增殖和长期存续依赖于初始激活过程中接收到的信号11,12,因此在单细胞水平上深入研究细胞毒性事件具有重要意义。
为克服传统整体方法的局限性,可在单细胞水平上通过流式细胞术13,14,15,16,17和基于成像的检测方法18开展细胞毒性研究。然而,尽管标准流式细胞术能够以单细胞分辨率对效应细胞和靶细胞进行定量与表征,却无法直接确定单个CAR T细胞对靶细胞的特异性细胞毒能力。此外,由于细胞持续运动,在群体中对单个CAR T细胞与其相应靶细胞相互作用进行成像具有挑战性且耗时。为应对这些挑战,已开发出依赖于在空间受限环境中配对效应细胞与靶细胞的新型单细胞分析工具,这些工具包括微孔阵列19,20,21、微筏阵列22、微芯片23以及液滴微流控技术24,25,26。这些工具提高了测量灵敏度,使得使用更少的试剂体积即可分析更少量的细胞。然而,仍存在若干挑战,包括细胞高效配对困难、可分析样本数量有限、仅依赖基于成像的分析,以及难以回收存活细胞群体用于后续分析。
本文采用一种市售的微流控装置,可极大地简化基于液滴的微流控操作。该装置能够利用高度稳定的双重乳液(DE)液滴,实现先进的单细胞分析和检测。与微孔板和传统液滴微流控检测相比,本文所述方案无需复杂的微流控专业技术。
双乳液(DE)液滴是由油壳包裹水核并悬浮于水相溶液中的微小球形结构。每个水相液滴可容纳并保留细胞、细胞分泌物、细胞培养基及检测试剂,从而可在每个独立微区室中进行复杂的检测分析。利用微流控装置,可生成体积恒定(约100 pL)的DE液滴,适用于哺乳动物单细胞或细胞间相互作用的检测;一般实验室人员无需微流控专业技术知识,即可在短时间内(8个样本约10分钟)生成大量液滴(每个样本约75万个)。生成的液滴可悬浮于细胞培养基中,允许O2和CO2通过油壳扩散,实现内部环境的气体交换与缓冲,同时保留亲水性分子及较大分子(如细胞分泌的效应分子)。因此,被检测的细胞可维持稳定的微环境,便于对细胞间相互作用及动态变化过程进行长时间观察。与单乳液液滴(例如水包油型液滴)27相比,DE液滴结构稳定,在常规细胞培养箱中不会发生融合或合并。由于其良好的稳定性及外层为水相的特性,DE液滴也适用于后续分析流程,例如传统的流式细胞术。因此,该微流控装置生成的皮升级液滴可用于高通量单细胞功能分析,揭示传统群体检测中难以发现的功能异质性。
本文概述了一种利用液滴微流控(DE)技术检测靶向CD19的嵌合抗原受体(CAR)对淋巴瘤细胞杀伤潜能的实验方案。该方案可实现对靶细胞杀伤及颗粒酶B(GzmB)分泌的单细胞水平分析,结果表明,本研究中约20%的CAR T细胞具有即时杀伤能力。
方案
本研究中使用的CAR T细胞是在经认证的生物安全GMO 2级实验室中,通过慢病毒转导将CD19scFv-CD28-CD3ζ-tNGFR CAR结构导入原代T细胞而生成的,并在培养4天后根据机构标准解除分类。纯化的T细胞来源于匿名献血者废弃的多余血液材料,根据丹麦法律,无需进一步伦理审批。
1. CAR T 细胞的制备
注意:以下所用试剂的名称采用通用名和缩写名。完整的商品名见材料表中的括号标注。
- T细胞激活、转导与扩增
注意:通过使用阴性选择T细胞分离试剂盒从新鲜外周血单个核细胞(PBMCs)中分离的原代人T细胞进行慢病毒转导,实现CD19 CAR T细胞的稳定表达。所使用的抗CD19 CAR为第二代结构,包含FMC63单链可变区片段(scFv)、CD28铰链区和跨膜区、CD28共刺激结构域、CD3ζ激活结构域28,以及用于监测和富集CAR表达细胞的截短型神经生长因子受体(tNGFR)29。转移载体质粒为从头合成,第三代慢病毒通过将该质粒与pMDLg/pRRE(Addgene质粒#12251)、pRSV-Rev(Addgene质粒#12253)和pMD2.G(Addgene质粒#12259)30共转染而制备。后三种质粒由Didier Trono惠赠。粗制病毒使用基于聚乙二醇(PEG)的试剂进行浓缩,并通过转导SUP-T1细胞并采用标准方案流式细胞术检测tNGFR表达水平来确定感染复数(MOI)31。- 将2 × 10⁶个原代人T细胞转移至12孔培养板中,以CD3/CD28包被的磁珠按1:1的磁珠-细胞比例在1 mL完全RPMI-1640培养基(含10%热灭活胎牛血清、1%青霉素/链霉素)中刺激细胞,并补充100单位/mL重组人白细胞介素-2(IL-2)。将细胞置于37°C、5% CO2的湿润培养箱中孵育24小时。
- 向激活的T细胞中加入慢病毒颗粒,MOI为5–10。轻轻混匀后继续孵育72小时。设置未转导(NTD)T细胞作为阴性对照。
- 转导后第3天,通过将T细胞收集至1.5 mL离心管中并置于磁力架上1–2分钟,去除CD3/CD28激活磁珠。将含有细胞的上清液转移至新的1.5 mL离心管中。
- 使用自动细胞计数仪进行细胞计数,并用补充了100 U/mL IL-2的完全RPMI-1640培养基将细胞密度调整至1 × 10⁶个细胞/mL。继续扩增T细胞,直至悬浮液中总CAR T细胞数达到至少1.5 × 10⁶(通常总T细胞数约为6 × 10⁶)后再进行NGFR富集(见下文)。
- 每隔一天监测一次细胞数量,并通过添加补充了100单位/mL IL-2的新鲜培养基将细胞浓度维持在1 × 10⁶个细胞/mL,以确保扩增期间细胞处于最佳状态。
- CAR表达T细胞的富集
- 将6 × 10⁶个或更多转导后的T细胞转移至15 mL离心管中,以300 x g离心5分钟。弃去上清,将细胞沉淀重悬于320 µL含0.5%牛血清白蛋白(BSA)的PBS(即PBSA)中,加入40 µL抗NGFR磁珠。充分混匀后冰上孵育15分钟。
注意:本方案假设转导效率约为25%,富集后可获得>1.5 × 10⁶个CAR T细胞。不建议起始细胞数少于6 × 10⁶个,否则可能导致CAR T细胞回收率不佳。 - 加入1640 µL PBSA使终体积达到2 mL,随后根据制造商说明书使用分离柱进行磁性分离。
- 将6 × 10⁶个或更多转导后的T细胞转移至15 mL离心管中,以300 x g离心5分钟。弃去上清,将细胞沉淀重悬于320 µL含0.5%牛血清白蛋白(BSA)的PBS(即PBSA)中,加入40 µL抗NGFR磁珠。充分混匀后冰上孵育15分钟。
- 通过流式细胞术检测CAR表达
注意:建议在此阶段检测CAR表达细胞的比例及其活力,以确保后续实验所用细胞状态良好。同时可检测CD4与CD8比例及记忆表型。代表性图谱见图1。- 分别从转导和未转导的培养物中取2.5 × 10⁵个T细胞,转移至不同的流式细胞术检测管中。用200 µL PBS洗涤细胞两次,每次洗涤后以300 x g离心5分钟。
- 配制抗体混合液:将抗CD19 CAR FMC63独特型PE抗体、抗CD3 BV480抗体和抗NGFR FITC抗体分别按1:100比例稀释于PBS中。将细胞重悬于50 µL抗体混合液中,4 °C避光孵育20分钟。
- 用200 µL PBS洗涤细胞两次,每次洗涤后以300 x g离心5分钟。将细胞重悬于200 µL PBS中,立即进行流式细胞术分析。
2. 生成包裹T细胞和靶细胞的液滴
注意:在包封之前,T细胞和JeKo-1细胞需用不同的细胞染料进行染色,以监测液滴中的细胞组成。将细胞与检测试剂共同包封后,在流式细胞仪上分析液滴前孵育2-6小时(见图2)。
- 封装前对细胞进行染色
- 将两种荧光染料(我们使用了一种紫色染料和一种远红染料)的储存液(按制造商说明配制)用dPBS按1:5,000比例稀释,制备工作液。
- 对于每位供者,转移 2.5 x 10⁶ CAR T,2.5 × 106 NTD T 和 15 × 106 将JeKo-1细胞分装至不同的离心管(15 mL或50 mL离心管)中,于300 ×g离心 x g 5分钟。在此实验中,0.5 × 106 效应细胞以1.5 x 10⁶ 每个样本制备的靶细胞
注意:此处转移的细胞数量适用于每位供体每种效应细胞类型进行4次包封实验。请根据所需样本数量按比例减少细胞和试剂的用量。此外,每个样本的细胞确切数量可根据实验需求进行调整。 - 去除上清液,将效应细胞沉淀重悬于紫荧光染料1:5,000工作液中,将靶细胞(JeKo-1)沉淀重悬于远红荧光染料1:5,000工作液中。用移液器充分重悬细胞,并调整细胞浓度至1 × 10⁶ 细胞/毫升染色液
- 在37 °C、湿润的CO₂培养箱中孵育细胞20分钟2 培养箱。在300 × g条件下离心细胞 x g 5分钟,弃上清,加入15 mL完全RPMI-1640培养基重悬细胞以洗涤。
- 重复洗涤并以300 × g离心 x g 孵育5分钟。弃去上清液,将效应细胞沉淀重悬于225 µL完全RPMI-1640培养基中,将靶细胞沉淀重悬于450 µL完全RPMI-1640培养基中。
- 向效应细胞悬液中加入30 µL梯度介质,向靶细胞悬液中加入60 µL相同梯度介质。移液前需充分重悬梯度介质储备液。
- 向效应细胞悬液中加入15 µL浓度为20 µg/mL的PI储存液,向靶细胞悬液中加入30 µL该PI储存液。在后续加入颗粒酶B(GzmB)底物后,PI的终浓度将为1 µg/mL。
- 将GzmB底物用完全RPMI-1640培养基稀释至1:10,取30 µL该稀释液加入效应细胞悬液中,取60 µL加入靶细胞悬液中。用移液器充分混匀。
注意:加入每个效应细胞沉淀的试剂总体积应为 300 µL,加入靶细胞沉淀的试剂总体积应为 600 µL。这些溶液中梯度介质的浓度应为 10%,PI 浓度为 1 µg/mL,GzmB 底物浓度为 1:100。 - 使用CD3、CD4和CD8抗体的替代标记方法
注意:在某些情况下,可能需要在效应细胞与靶细胞共包封前对其进行进一步标记。本文以CD3、CD4和CD8抗体及外周血单个核细胞(PBMC)为例,展示了此类标记的原理验证(参见 图3).- 转移 2.0 × 10⁶ 将PBMC加入1.5 mL离心管中,300 x g离心5分钟 g. 吸除上清液,将细胞沉淀重悬于200 µL含0.5% BSA的dPBS中,分装至两个2 mL离心管中。
- 向其中一管加入 5 µL anti-CD3-APC 和 5 µL anti-CD4-StarBright Violet 760。向另一管加入 20 µL anti-CD3-FITC 和 5 µL anti-CD8-StarBright Violet 760。
- 充分混匀,室温避光孵育30分钟。向细胞中加入1 mL洗涤缓冲液,300 x g离心沉淀 g 5分钟,弃上清,将细胞沉淀重悬于1 mL含0.5% BSA的dPBS中。
- 300 x g 离心细胞 g 孵育5分钟,弃去上清液,将细胞沉淀重悬于150 µL不含酚红的RPMI及10%梯度培养基中。按照步骤2.2所述方法进行包封,包封时使用不含酚红的RPMI、33%细胞稳定溶液和10%梯度培养基作为外相培养基.
- 包裹细胞
- 将包封卡盒和细胞稳定液于包封前预热至室温。准备外层培养基,包含完全RPMI-1640培养基、33%细胞稳定液和10%梯度介质。
- 为每个包封样品制备含有混合靶细胞与效应细胞的细胞样品溶液。用移液器充分重悬步骤2.1中制备的细胞溶液,取65 µL已制备的效应细胞悬液与65 µL已制备的靶细胞悬液于1.5 mL离心管中混合。
- 立即按照以下顺序向封装试剂盒的指定孔中加入试剂,以确保正确封装。每个制备的封装样品需对应加载一组孔.
第A孔:400 µL外层培养基。
孔D:在小架上加入40 µL外层培养基。
C孔:含靶细胞(JeKo-1)和效应细胞的预混溶液120 µL。加样前需用移液器充分重悬细胞。
B孔:250 µL 油。
注意:每个 cartridge 最多可并行加载 8 个样品进行包封。 - 立即进行垫圈密封,并将 cartridge 装载至仪器中,避免倾斜、晃动或碰撞已装载的 cartridge。小心地将垫圈完全密封到 cartridge 上。
- 将微流控芯片小心转移至微流控装置中,并按照用户手册中的说明启动封装程序。
- 生成的液滴密度高于周围的外部介质,会迅速沉降到收集孔(D孔)底部。通过将D孔中沉降的液滴重新悬浮于上层介质中,并转移至带盖的2 mL低吸附DNA管,收集每次液滴生成产物(包括所有液滴及其周围的外部介质)。用A孔中剩余的外部介质冲洗D孔,以收集残留的液滴。
- 当液滴在收集管中沉降后(约需1分钟),通过明场显微镜观察液滴以确认液滴生成情况。操作时,用10 µL移液枪头吸取样品:约1/3枪头体积取自液滴相(白色相)表面的液滴,约2/3枪头体积取上层覆盖的外部培养基以充满枪头。立即把样品加载到8孔玻片上,使用4倍和20倍物镜进行明场显微镜观察,以确认液滴中已成功载入细胞。
注意:以这种方式吸取液滴时,必须将其吸入较大体积的周围培养基中。
- 孵育
注意:现在可将液滴置于2 mL DNA低吸附管中,在标准的37 °C、5% CO2湿化培养箱中孵育。我们推荐使用此类试管,因其具有适合液滴培养的最优表面特性。- 使用23G注射器针头,小心且安全地刺穿所需数量的2 mL低吸附DNA管的管盖。这将确保自由CO2/02 在防止培养基蒸发的同时允许扩散。
- 向每支孵育管中加入1 mL外层培养基。为确保充分缓冲,液滴应与至少5倍体积的外层培养基共同孵育。根据所用细胞的代谢情况,可适当增加外层培养基的加入体积。
- 将覆盖培养基中生成的液滴重新悬浮,并将每份产物均分至三根已准备好的孵育管中(每个时间点测量使用一根)。由于液滴密度较大且沉降迅速,因此在每次转移之间必须充分重悬原液。
注意:可将液滴生成产物分装至不同数量的孵育管中,但建议每份产物分装不超过4根孵育管,以确保每个样本含有足够用于分析的事件数量。 - 在液滴生成后,将试管直立放置于培养箱中孵育2 h、4 h或6 h。
3. 液滴的下游分析
- 显微镜观察
- 孵育后,按照步骤 2.2.7 所述方法,将少量液滴转移至显微镜载玻片上,并使用配备适当激光和滤光片配置的标准荧光显微镜,通过明场和荧光显微镜进行分析。
注意:可通过明场显微镜检测液滴。经紫染的 T 细胞可使用 DAPI 滤光片检测,远红染色的 JeKo-1 细胞可使用 APC 滤光片检测,GzmB-FAM 信号可使用 FITC 滤光片检测,PI 信号可使用 PE 滤光片检测。由于早期凋亡细胞的峰值发射强度低于晚期凋亡细胞,因此显微镜下观察最重要的 PI 信号可能较难识别。代表性数据见图 4。
- 孵育后,按照步骤 2.2.7 所述方法,将少量液滴转移至显微镜载玻片上,并使用配备适当激光和滤光片配置的标准荧光显微镜,通过明场和荧光显微镜进行分析。
- 流式细胞术
- 孵育后,将每个液滴样品重悬于上层培养基中,并转移至 5 mL FACS 管中。按照以下列出的一般指南,使用标准流式细胞仪分析液滴。
- 使用具有适当激光和滤光片配置的流式细胞仪。本实验所用的细胞染料组合和检测方案在此流式细胞仪上无需进行颜色补偿。若使用其他荧光染料或流式细胞仪配置不同,则可能需要进行补偿。
- 使用 FSC-H 作为阈值触发信号,以排除来自微小油滴事件的背景噪声。
- 液滴较重,会沉降至 FACS 管底部。确保进样探针(SIP)能够接触到液滴。在上机前,液滴应至少以 5 倍体积的外层缓冲液重悬。
- 以高速采集液滴事件。记录 FSC 和 SSC 以及所检测荧光染料的荧光强度高度(H)信号,因为液滴分析时采用的是强度高度测量值。调节增益以实现阳性和阴性事件之间的适当分离。
注意:我们使用 FITC 通道检测 GzmB 信号,Pacific Blue 通道检测紫染 T 细胞,APC 通道检测远红染色的 JeKo-1 细胞,PE 通道检测 PI 信号。 - 采集足够数量的事件以供后续分析。本实验中,每个时间点记录了 4.5 - 8.3 × 10³ 个共包封液滴。
- 每次液滴采集结束后,使用标准清洗和冲洗溶液通过 SIP 清洗流式细胞仪。实验结束时需彻底清洁流式细胞仪。代表性数据见图 4 和 图 5。
- 孵育后,将每个液滴样品重悬于上层培养基中,并转移至 5 mL FACS 管中。按照以下列出的一般指南,使用标准流式细胞仪分析液滴。
- 数据分析
- 根据 GzmB 阳性 T 细胞与 JeKo-1 细胞共包封的比例,归一化至相应时间点仅含 T 细胞的液滴群体中测定的 T 细胞存活率,计算分泌 GzmB 的 T 细胞百分比,公式如下:
液滴T 细胞+, JeKo-1+, GzmB+ / (液滴T 细胞+, JeKo-1+ - 液滴死亡 T 细胞+, JeKo-1+)
其中,液滴死亡 T 细胞+, JeKo-1+ 由仅含 T 细胞的液滴中的死亡率估算:液滴死亡 T 细胞+, JeKo-1+ = 液滴T 细胞+, JeKo-1+ × 液滴死亡 T 细胞+, JeKo-1- / 液滴T 细胞+, JeKo-1-。 - 按下式计算杀伤靶细胞的 T 细胞百分比:
细胞毒性 T 细胞百分比 = (观察到的死亡率 - 背景死亡率) / (100 - 背景死亡率)
其中,背景死亡率是指 (T 细胞+, JeKo-1+) 液滴中由于非杀伤相关死亡或包封前已发生的死亡所导致的细胞死亡。 - 根据 (T 细胞+, JeKo-1-) 液滴和 (T 细胞-, JeKo-1+) 液滴中的细胞死亡率估算背景死亡率:
背景死亡率 = (1 - (1 - 液滴T 细胞-, JeKo-1+中的死亡率) × (1 - 液滴T 细胞+, JeKo-1-中的死亡率)) × 100
其中,死亡率直接测量为仅含 T 细胞液滴和仅含 JeKo-1 细胞液滴中 PI 阳性液滴的百分比。所有计算均使用特定采样时间的数据进行。
- 根据 GzmB 阳性 T 细胞与 JeKo-1 细胞共包封的比例,归一化至相应时间点仅含 T 细胞的液滴群体中测定的 T 细胞存活率,计算分泌 GzmB 的 T 细胞百分比,公式如下:
结果
转导后,使用抗 CD3 和抗 NGFR 抗体通过流式细胞术分析 T 细胞的 CAR 表达。随后使用抗 NGFR 磁珠富集 CAR T 细胞群体,两位供体的细胞纯度均超过 98%(图 1A-B)。还使用基于 CCR7 和 CD45RA 抗体的标准设门策略,对分选后的 CAR 细胞的 CD4/CD8 比例和记忆表型进行了定量分析。这些数据显示,所用 CAR T 细胞的 CD4/CD8 比例为 0.73,细胞主要为类初始记忆表型(图 1C-E)。
CAR T 细胞和 JeKo-1 细胞分别用紫色和远红染料进行染色,并与颗粒酶 B 底物(GzmB substrate)和碘化丙啶(PI)等检测试剂共同包封于 DE50 液滴中(图 2)。 alternatively,CAR T 细胞也可使用抗体标记,例如抗 CD4 或抗 CD8 抗体(图 3),从而实现对 T 细胞更详细的表征。每种 T 细胞悬液(CAR T 或 NTD)在包封前立即与 JeKo-1 细胞悬液混合,效应细胞与靶细胞的比例为 1:3(0.5 × 10⁶ 个 T 细胞和 1.5 × 10⁶ 个 JeKo-1 细胞)。包封后,每组液滴生成物(CAR T 细胞 + JeKo-1 和 NTD + JeKo-1)均分为三份,分别在 37 °C、5% CO2 条件下孵育 2 h、4 h 和 6 h,随后在指定时间点通过显微镜和流式细胞术进行分析。
我们在孵育4 h后对双重乳化液滴进行了荧光显微镜观察(图4)。绿色荧光信号(FITC)的强度反映了CAR T细胞或NTD在DE50液滴内分泌的GzmB活性水平。图4B展示了单个GzmB阳性液滴的相差显微镜与荧光显微镜图像,该液滴内含有一个CAR T细胞和一个JeKo-1靶细胞,二者处于紧密接触状态。
接下来,通过流式细胞术分析 DE50 微滴,以定量具有早期颗粒酶 B(GzmB)分泌和细胞毒性杀伤活性的 CAR T 细胞比例(图 5)。在封装前,使用远红染料对 JeKo-1 靶细胞进行预孵育染色,并使用紫染料对效应 T 细胞染色,从而便于识别三种不同的含细胞微滴群体,因为细胞在微滴中的分布遵循泊松分布。所识别的微滴群体包括:仅含 T 细胞的微滴、仅含 JeKo-1 细胞的微滴,以及同时含有 T 细胞和 JeKo-1 细胞的微滴(图 5A)。对共封装 T 细胞与 JeKo-1 细胞的微滴进行设门并分析其 GzmB 活性信号(图 5B)以及由碘化丙啶(PI)指示的细胞死亡信号(图 5C)。
细胞在液滴中的包封遵循泊松分布,可获得四种不同的液滴群体(图6A)。图6B显示了所有液滴群体中GzmB阳性液滴的比例,该比例基于液滴孵育6小时后的结果,可用于确定自发分泌GzmB的T细胞百分比。这些数据表明该方法具有高特异性,因为只有CAR T细胞会分泌GzmB。
最后,我们在共孵育 2 h、4 h 和 6 h 后,对不同时间点的 GzmB 和 PI 水平进行了定量分析。作为对照,我们分析了仅含有 T 细胞或仅含有 JeKo-1 细胞的液滴,以评估各细胞群体中的背景细胞死亡情况(图 6C)。利用背景细胞死亡率,可确定效应细胞群体中分泌 GzmB 并杀伤靶细胞的活 T 细胞所占百分比(图 7),具体方法如步骤 3.3 所述。来自两位供体的 CAR T 细胞均表现出随时间延长而增加的靶细胞诱导 GzmB 分泌和细胞杀伤活性。在与靶细胞共包封 6 h 后,供体 1 的活 CAR T 细胞中近 36%,供体 2 中为 31% 已分泌 GzmB,显著高于 NTD 对照 T 细胞(图 7A)。相应地,约 21% 的供体 1 活 CAR T 细胞和 22% 的供体 2 活 CAR T 细胞已杀伤靶细胞,表现为 PI 信号阳性(图 7B)。在各个时间点,分泌 GzmB 的 CAR T 细胞比例均高于被杀伤的靶细胞比例,这与 GzmB 介导的细胞毒性事件的预期顺序一致。综上所述,这些数据表明,本文所介绍的方法可用于表征细胞群体中单个 T 细胞细胞毒性的异质性,并实现不同细胞群体之间的比较。
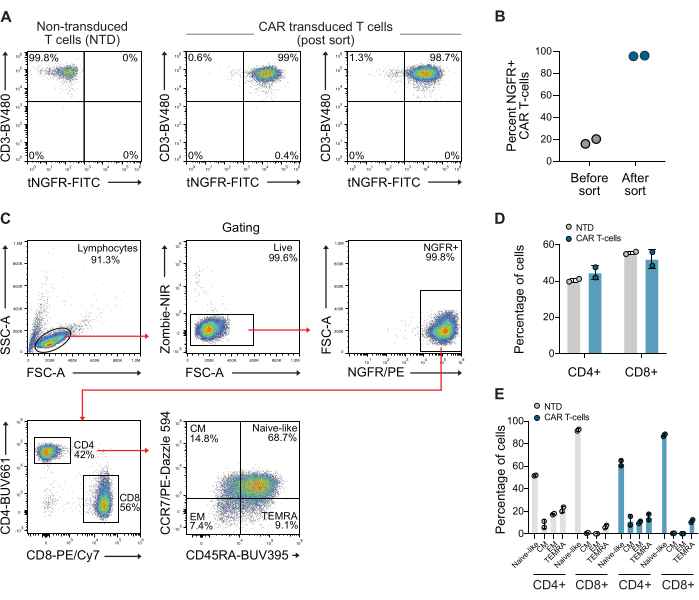
图1:NGFR 分选后具有代表性的流式细胞术图谱。 (A经过约10天的扩增后,使用NGFR特异性磁珠和磁性分选法对CAR T细胞进行分选,获得的CAR T细胞群体为 >98% CAR T细胞。B) 本研究中使用的两名供体的CAR T细胞在分选前后的定量分析。C) 用于分析T细胞CD4/CD8比值及记忆表型的设门策略。D) 所用T细胞中CD4和CD8的定量分析。E) 所用T细胞记忆表型的定量分析。缩写:CM = 中央记忆性,EM = 效应记忆性,NTD = 非转导,TEMRA = 终末分化的效应细胞。 请点击此处查看该图的放大版本。
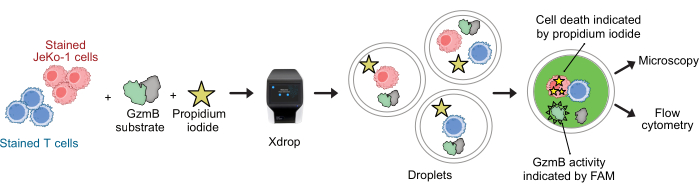
图2:在液滴中以单细胞分辨率联合检测GzmB分泌与细胞毒性的实验流程。在将细胞包封于DE液滴之前,靶细胞和效应细胞分别使用紫色和远红细胞染料进行染色。利用微流控装置和包封卡盒,将效应细胞与靶细胞共同包封于液滴中,并同时加入细胞培养基、碘化丙啶(PI)以及FAM标记的GzmB多肽底物。实验反应与孵育过程均在液滴内进行。当分泌的GzmB切割底物后,会发出绿色荧光,从而指示GzmB的活性;细胞死亡则通过PI染色显示。孵育结束后,采用显微镜和/或流式细胞术对DE50液滴进行分析。 请点击此处查看该图的高清版本。

图3:预先用抗CD3、抗CD4和抗CD8抗体标记的外周血单个核细胞(PBMC)液滴封装后的分析。(A)预先用抗CD3(APC)和抗CD4(NIR)抗体标记并封装了PBMC的液滴显微图像。比例尺 = 100 µm。(B)同(A),但使用CD3(FITC)和抗CD8(NIR)标记。比例尺 = 100 µm。(C)相同液滴的流式细胞术分析。请点击此处查看该图的放大版本。
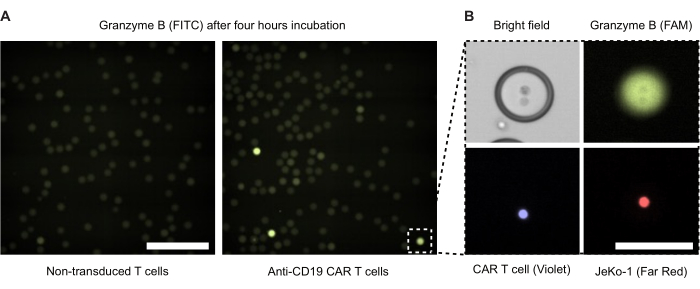
图4:含有效应细胞和靶细胞的液滴显微镜图像。图像在标准37 °C、5% CO2湿化细胞培养箱中孵育4小时后采集。(A)通过荧光显微镜使用FITC通道检测GzmB阳性(绿色)液滴,分别显示封装了NTD细胞和JeKo-1细胞的样本液滴(左)或CAR T细胞和JeKo-1细胞的样本液滴(右)。比例尺 = 500 µm。(B)单个液滴的相衬、FITC(GzmB)、APC(JeKo-1细胞)和DAPI(CAR T细胞)荧光图像。比例尺 = 100 µm。 请点击此处查看该图的放大版本。
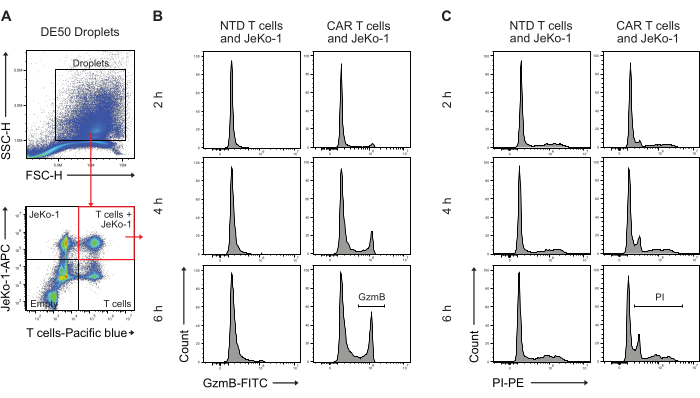
图5:孵育后通过流式细胞术分析液滴的设门策略。(A)通过前向散射光和侧向散射光进行设门以识别液滴,随后选择包含液滴的门。门以外的事件代表双乳液液滴生成过程中作为副产物产生的油滴。在对应于所用细胞染料的荧光通道中对液滴进行后续荧光分析,可鉴定出四类液滴群体:同时含有T细胞和JeKo-1细胞的液滴(红色方框);仅含JeKo-1细胞的液滴;仅含T细胞的液滴;以及空液滴。(B)在不同时间点以及NTD与CAR T细胞之间,双阳性液滴中GzmB信号的代表性直方图。(C)在不同时间点以及NTD与CAR T细胞之间,双阳性液滴中PI信号的代表性直方图。所有液滴测量均以荧光强度高度(H)方式进行。请点击此处查看该图的放大版本。
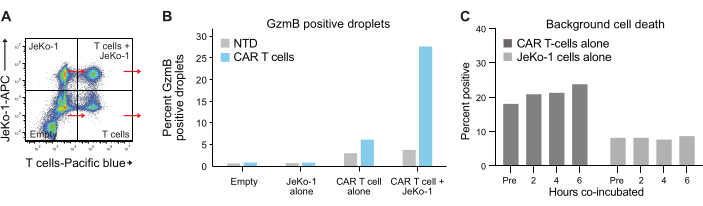
图6:内部对照与参考群体。(A)从图5A中选择四个象限中的每一个,并分别测量其中的GzmB和PI信号。此类定量方法可在对T细胞效应功能进行最终分析之前,测量并扣除背景信号。(B)图示四种微滴群体在6小时孵育后GzmB阳性微滴的频率,以供体1的CAR T细胞样本数据为例。(C)在每个时间点测定仅含JeKo-1细胞和仅含T细胞的对照微滴群体中的背景细胞死亡率,数据来自供体1。该背景细胞死亡率用于计算活的、分泌GzmB并具有杀伤功能的效应细胞频率,结果见图7,具体计算方法见步骤3.3。缩写:Pre = 包封。 请点击此处查看该图的放大版本。
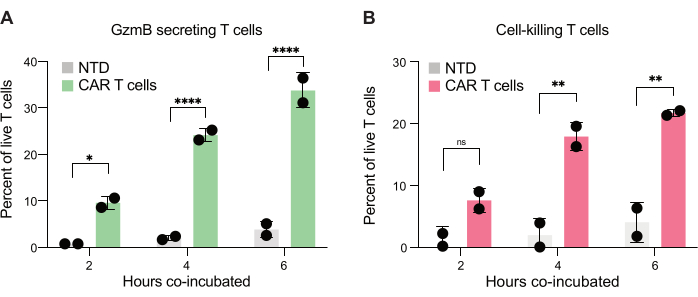
图7:双阳性液滴中能够分泌GzmB并杀伤JeKo-1细胞的T细胞定量分析。 来自两个供体的双阳性液滴在液滴中共孵育2 h、4 h和6 h后进行分析。(A) 与靶细胞相遇并分泌GzmB的T细胞频率,以及NTD T细胞与CAR T细胞之间的比较。(B) 与共包封的靶细胞相遇并将其杀伤的T细胞频率。缩写:GzmB = granzyme B,NTD = non-transduced,PI = propidium iodide。* = P值 < 0.05,** = P值 < 0.005,**** = P值 < 0.0001,采用双向ANOVA分析。请点击此处查看该图的放大版本。
讨论
本文介绍一种利用易于使用的市售微流控装置,在单细胞水平上检测T细胞杀伤潜能的方法,用于评估CD19-CD28-CD3z嵌合抗原受体T细胞与CD19阳性套细胞淋巴瘤细胞系JeKo-1共包封后的细胞毒活性。
本实验方案中有若干关键步骤。首先,我们建议在进行任何检测前至少48小时将刺激磁珠从T细胞中去除,以避免出现假阳性结果。其次,使用CAR或T细胞受体等载体对T细胞进行转导的效率可能存在较大差异。若未对转导后的T细胞进行后续纯化步骤,结果可能难以解释。本研究中使用了高度纯化的CAR T细胞群体,因此在各个时间点将CAR T细胞明确区分为杀伤性或非杀伤性细胞时,可获得较高的可信度。 alternatively,可通过在CAR上标记荧光蛋白或遗传标签,以标识CAR阳性的细胞,并在分析液滴时进行门控。若采用标记策略,所选荧光分子不应干扰实验中其他荧光染料的发射光谱。例如,使用GFP标记会干扰本实验中使用的FAM标记的GzmB底物,因此不推荐使用。
本方案的一个主要优势在于液滴生成过程本身得到了简化和自动化。然而,为了确保单细胞包封,样品在上样前必须充分重悬细胞。因此,建议在准备上样时保持适当的操作速度。添加颗粒酶B(GzmB)底物时也需考虑类似因素,因为某些细胞会大量分泌GzmB。细胞的充分重悬还有助于防止微流控芯片内微小通道发生堵塞。如上所述,可通过显微镜观察轻松检查细胞包封是否恰当。
由于液滴能够包裹细胞培养基并保留细胞分泌的产物,因此还可分析其他细胞因子、抗体和化合物。事实上,我们已测试过其他相关的免疫细胞分泌分子,例如 IFN-γ 和 TNF-α,但这些分子的检测需要对现有方案进行修改。对于细胞因子的检测,可采用不同于本研究中用于 GzmB 的检测方法,例如在效应细胞表面构建 ELISA 夹心结构32。此外,细胞染料和检测荧光颜色也可更换,例如使用羧基荧光素琥珀酰亚胺酯(CFSE),但需确保不同荧光组合之间的串色最小或不存在,这与标准流式细胞术中的要求一致。
此外,该方案不仅限于分析CAR T细胞,还可扩展用于研究其他T细胞与靶细胞的相互作用,或其他免疫细胞,例如CAR NK细胞。还可以设计更高级的实验,例如使用额外的荧光染料标记CD4和CD8 T细胞亚群,以进行更广泛的效应免疫表型分析。事实上,本文结果显示CD4和CD8可在微滴中被检测到,从而能够进一步表征效应T细胞及其细胞毒活性。
在优化本方案时,我们特别旨在使其适用于标准的流式细胞仪。尽管液滴式流式细胞术并不复杂,但我们注意到,如果未在每个时间点分析样本后按照本文推荐的间隔或建议对流式细胞仪进行充分冲洗,则可能会发生油渍积聚。最佳的冲洗程序可能因不同型号的流式细胞仪而异。
该方法的一个显著优势是具有高通量能力,能够在无需 extensive 专业知识或高度专业化设备的情况下,监测单个效应细胞对靶细胞的杀伤作用。该检测可利用现有的工具(如流式细胞术或显微镜)轻松完成。双乳液液滴也适用于使用细胞分选仪进行分选30,31,这可能实现对具有特定功能的细胞(例如具有或不具有细胞毒性潜能的CAR T细胞)的分离,进而开展单细胞转录组分析。
该技术并非没有局限性。尽管某些细胞系可以在液滴中培养24小时甚至更长时间,但原代细胞在24小时后活力可能显著降低。这通常对实验造成时间上的限制;然而,在本实验中,通常在4至6小时内即可观察到明显的颗粒酶B(GzmB)释放及细胞杀伤活性,这可能是因为微小的液滴空间可确保效应细胞与靶细胞迅速接触。同样,微小的液滴体积也有助于分泌的GzmB切割底物快速积累至可检测水平。该技术的另一局限性在于,使用常规流式细胞仪时无法检测效应细胞的连续杀伤行为。不过,这一问题或许可通过成像流式细胞仪或成像细胞计量技术实现,有待进一步研究验证。
CD19 CAR T细胞的过继转移在治疗血液系统恶性肿瘤患者中已显示出显著疗效。尽管如此,患者之间的治疗反应存在较大差异,且毒性反应难以预测32,这可能部分归因于CAR T细胞输注产品内部的异质性。因此,人们对分析群体中单个CAR T细胞的表型组成及其细胞毒能力的兴趣日益增加。随着CAR疗法在自身免疫性疾病及其他类型癌症中的应用不断拓展,这一分析将尤为重要。本文所述的微流控装置及实验方案为研究CAR T细胞及其他细胞治疗产品的异质性提供了一种可靠且多功能的方法。
披露
作者声明存在以下竞争利益:M.B.B. 收到了来自强生、罗氏和凯特/吉利德的咨询费,但这些与本研究无关。D.L.P. 和 P.M. 是 Samplix 公司的员工。
致谢
作者谨此感谢CITCO和Samplix的成员及员工提供的有益讨论和建议。M.B.B. 获得伦德贝克基金会早期职业临床科学家奖学金(项目编号 R381-2021-1278)的支持。本工作还获得了欧登塞大学医院精英研究基金的资助。此外,本研究获得了欧洲创新理事会向Samplix ApS提供的项目资助(项目编号 190144395)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 试剂 | |||
| 封闭用 BSA (BSA) | Thermo Scientific | 37525 | |
| CellTrace 远红细胞增殖试剂盒(远红荧光染料) | Invitrogen | C34564 | |
| CellTrace 紫色细胞增殖试剂盒(紫色荧光染料) | Invitrogen | C34557 | |
| DE 稳定溶液(稳定溶液) | Samplix | REDIVSTABSOL1500 | |
| DPBS (dPBS) | Gibco | 14190-094 | |
| Dulbecco’s PBS (dPBS) | Capricorn Scientific | PBS-1A | |
| Dynabeads 人 T 细胞激活剂(CD3/CD28 激活磁珠) | Gibco | 11132D | |
| 胎牛血清(FBS) | Capricorn Scientific | FBS-HI-12A | |
| Lenti-X 浓缩试剂(基于 PEG 的试剂) | Takara Bio | 631232 | |
| MACSelect LNGFR 微珠(抗 NGFR 磁珠) | Miltenyi Biotec | 130-091-330 | |
| OptiPrep 密度梯度介质(梯度介质) | Stemcell | 7820 | |
| 青霉素-链霉素(P/S) | Capricorn Scientific | PS-B | |
| 碘化丙啶(PI) | Invitrogen | BMS500PI | |
| 重组人 IL-2(IL-2) | Peprotech | 200-02 | |
| 含稳定型谷氨酰胺的 RPMI-1640 培养基(RPMI-1640) | Capricorn Scientific | RPMI-STA | |
| 不含 L-谷氨酰胺和酚红的 RPMI-1640 培养基 | Gibco | 32404-014 | |
| Xdrop DE 油 I(油) | Samplix | REOILDEC1900 | |
| Xdrop 颗粒酶 B 底物(GzmB 底物) | Samplix | REGRB100 | |
| Zombie-NIR 活性染料(活性染料) | BioLegend | 423106 | |
| 塑料器皿等 | |||
| 8 孔玻璃载片 | Chemometec | 942-0003 | |
| 细胞培养板,12 孔 | TH Geyer | 7696791 | |
| DNA LoBind 管,2 mL(DNA 管) | Eppendorf | 30108078 | |
| Eppendorf 管,1.5 mL(1.5 mL 管) | Eppendorf | 30108051 | |
| Falcon 管,15 mL(15 mL 管) | TPP | 91015 | |
| Falcon 管,5 mL(5 mL 管) | Falcon (VWR) | 734-0443 | |
| 用于细胞孵育的绿色细胞悬浮培养瓶(T75 培养瓶) | Sarstedt | 148.19.22 | |
| 用于细胞孵育的绿色细胞悬浮培养板(96 孔板) | Sarstedt | 148.32.20 | |
| LS 分离柱(分离柱) | Miltenyi Biotec | 130-042-401 | |
| Xdrop DE 密封垫圈(垫圈) | Samplix | #GADEA100 | |
| Xdrop DE50 芯片(包封芯片) | Samplix | #CADE50A100 | |
| 抗体 | |||
| anti-CCR7 PE-Dazzle 594 | BioLegend | 353236 | |
| anti-CD19 CAR FMC63 型特异性抗体,PE 标记 | Miltenyi Biotec | 130-127-342 | |
| anti-CD3 APC | Biolegend | 300439 | |
| anti-CD3 BV480 | BD Biosciences | 566105 | |
| anti-CD3 FITC | BD Biosciences | 345763 | |
| anti-CD4 BUV661 | BD Biosciences | 612962 | |
| anti-CD4 StarBright Violet 760 | Bio-Rad | MCA1267SBV760T | |
| anti-CD45RA BUV395 | BD Biosciences | 740298 | |
| anti-CD8 PE-Cy7 | BioLegend | 344712 | |
| anti-CD8 StarBright Violet | Bio-Rad | MCA1226SBV760 | |
| anti-NGFR FITC | BioLegend | 345106 | |
| anti-NGFR PE | BioLegend | 345106 | |
| 细胞 | |||
| JeKo-1 套细胞淋巴瘤细胞系(JeKo-1) | ATCC | CRL-3006 | |
| 原代外周血单个核细胞(PBMCs) | |||
| 设备 | |||
| Countess 3 自动细胞计数仪 | Thermo Fisher Scientific | A50298 | |
| DynaMag-2 磁力架 | Invitrogen | 12321D | |
| NovoCyte Quanteon 流式细胞仪(流式细胞仪) | Agilent | 2010011AA | |
| Xdrop(微流控装置) | Samplix | IN00110-EU |
参考文献
- Pasqui, D. M., Latorraca, C. D. O. C., Pacheco, R. L., Riera, R. CAR-T cell therapy for patients with hematological malignancies. A systematic review. Eur J Haematol. 109 (6), 601-618 (2022).
- Krejcik, J., et al. Harnessing the immune system to fight multiple myeloma. Cancers. 13 (18), 4546(2021).
- Tokarew, N., Ogonek, J., Endres, S., von Bergwelt-Baildon, M., Kobold, S. Teaching an old dog new tricks: next-generation CAR T cells. British J Cancer. 120 (1), 26-37 (2019).
- Bogetofte Barnkob, M., Vitting-Seerup, K., Rønn Olsen, L. Target isoforms are an overlooked challenge and opportunity in chimeric antigen receptor cell therapy. Immunother Adv. 2 (1), ltac009(2022).
- Daei Sorkhabi, A., et al. The current landscape of CAR T-cell therapy for solid tumors: Mechanisms, research progress, challenges, and counterstrategies. Front Immunol. 14, 1113882(2023).
- Considerations for the Development of Chimeric Antigen Receptor (CAR) T Cell Products. , Center for Biologics Evaluation and Research. https://www.fda.gov/regulatory-information/search-fda-guidance-documents/considerations-development-chimeric-antigen-receptor-car-t-cell-products (2024).
- Roddie, C., O'Reilly, M., Dias Alves Pinto, J., Vispute, K., Lowdell, M. Manufacturing chimeric antigen receptor T cells: issues and challenges. Cytotherapy. 21 (3), 327-340 (2019).
- Wang, L., et al. Improvement of in vitro potency assays by a resting step for clinical-grade chimeric antigen receptor engineered T cells. Cytotherapy. 21 (5), 566-578 (2019).
- Burrows, S. R., Fernan, A., Argaet, V., Suhrbier, A. Bystander apoptosis induced by CD8+ cytotoxic T cell (CTL) clones: implications for CTL lytic mechanisms. Int Immunol. 5 (9), 1049-1058 (1993).
- Gattinoni, L., et al. Acquisition of full effector function in vitro paradoxically impairs the in vivo antitumor efficacy of adoptively transferred CD8+ T cells. J Clin Invest. 115 (6), 1616-1626 (2005).
- Chen, G. M., et al. Integrative bulk and single-cell profiling of premanufacture T-cell populations reveals factors mediating long-term persistence of CAR T-cell therapy. Cancer Dis. 11 (9), 2186-2199 (2021).
- Frazer, G. L., Gawden-Bone, C. M., Dieckmann, N. M. G., Asano, Y., Griffiths, G. M. Signal strength controls the rate of polarization within CTLs during killing. J Cell Biol. 220 (10), e202104093(2021).
- Hermans, I. F., et al. The VITAL assay: a versatile fluorometric technique for assessing CTL- and NKT-mediated cytotoxicity against multiple targets in vitro and in vivo. J Immunol Meth. 285 (1), 25-40 (2004).
- Zaritskaya, L., Shurin, M. R., Sayers, T. J., Malyguine, A. M. New flow cytometric assays for monitoring cell-mediated cytotoxicity. Expert Rev Vaccines. 9 (6), 601-616 (2010).
- Piccinini, C., et al. In vitro CAR-T cell killing: validation of the potency assay. Cancer Immunol Immunother CII. 73 (9), 168(2024).
- Martinez, E. M., et al. High-throughput flow cytometric method for the simultaneous measurement of CAR-T cell characterization and cytotoxicity against solid tumor cell lines. SLAS Disc Adv Life Sci. 23 (7), 603-612 (2018).
- Jedema, I., van der Werff, N. M., Barge, R. M. Y., Willemze, R., Falkenburg, J. H. F. New CFSE-based assay to determine susceptibility to lysis by cytotoxic T cells of leukemic precursor cells within a heterogeneous target cell population. Blood. 103 (7), 2677-2682 (2004).
- Liu, L., et al. Cellular and molecular imaging of CAR-T cell-based immunotherapy. Adv Drug Delivery Rev. 203, 115135(2023).
- Liadi, I., et al. Defining potency of CAR+ T cells: Fast and furious or slow and steady. Oncoimmunology. 8 (10), e1051298(2019).
- Xhangolli, I., et al. Single-cell analysis of CAR-T cell activation reveals a mixed TH1/TH2 response independent of differentiation. Genom Proteom Bioinfo. 17 (2), 129-139 (2019).
- Zhou, Y., et al. Evaluation of single-cell cytokine secretion and cell-cell interactions with a hierarchical loading microwell chip. Cell Rep. 31 (4), 107574(2020).
- LaBelle, C. A., Zhang, R. J., Hunsucker, S. A., Armistead, P. M., Allbritton, N. L. Microraft arrays for serial-killer CD19 chimeric antigen receptor T cells and single cell isolation. Cytometry J Int Soc Anal Cytol. 103 (3), 208-220 (2023).
- Hellmann, M. J., et al. Heterogeneously deacetylated chitosans possess an unexpected regular pattern favoring acetylation at every third position. Nat Comm. 15 (1), 6695(2024).
- Wong, K. U., et al. Assessment of chimeric antigen receptor T cytotoxicity by droplet microfluidics in vitro. Antibody Therapeut. 5 (2), 85-99 (2022).
- Antona, S., Platzman, I., Spatz, J. P. Droplet-based cytotoxicity assay: Implementation of time-efficient screening of antitumor activity of natural killer cells. ACS omega. 5 (38), 24674-24683 (2020).
- Subedi, N., et al. An automated real-time microfluidic platform to probe single NK cell heterogeneity and cytotoxicity on-chip. Sci Rep. 11 (1), 17084(2021).
- Zhang, Y., et al. Enhanced CRISPR/Cas12a-based quantitative detection of nucleic acids using double emulsion droplets. Biosens Bioelect. 257, 116339(2024).
- Kochenderfer, J. N., et al. Construction and preclinical evaluation of an anti-CD19 chimeric antigen receptor. J Immunother. 32 (7), 689-702 (2009).
- Michaels, Y. S., et al. Precise tuning of gene expression levels in mammalian cells. Nat Comm. 10 (1), 818(2019).
- Yuan, Y., et al. Droplet encapsulation improves accuracy of immune cell cytokine capture assays. Lab on a Chip. 20 (8), 1513-1520 (2020).
- Brower, K. K., et al. Double emulsion flow cytometry with high-throughput single droplet isolation and nucleic acid recovery. Lab on a Chip. 20 (12), 2062-2074 (2020).
- Kirouac, D. C., et al. Deconvolution of clinical variance in CAR-T cell pharmacology and response. Nat Biotechnol. 41 (11), 1606-1617 (2023).
重印与许可
