序列双光子断层成像(STPT)是一种结合双光子成像、自动载物台控制和切片机切片技术,用于以三维形态对大体积组织进行成像的技术。本文介绍了一种应用于狨猴脑组织的STPT实施方案,旨在更深入地理解其结构特征。
本文内容
摘要
摘要
序列双光子断层扫描(STPT)是一种结合双光子成像、自动载物台控制和切片机切片的技术,用于以三维形态对大体积组织进行成像。我们已成功应用该技术追踪狨猴脑中的轴突投射。本文详细描述了实现全狨猴脑可靠体积成像的实验步骤。成功成像的一个关键步骤是去除包裹大脑的脑膜,因为脑膜会干扰切片过程。该方法的一大优势在于切下的片层可用于额外染色。在原始装置中,切下的片层会在水浴中发生顺序混乱,但可根据皮层中的血管模式将其准确恢复至原始顺序。有效的组织学示例之一是通过简单的光反射实现髓鞘结构的可视化,该方法可与尼氏染色结合使用,以界定解剖边界。这些片层还可用于非荧光顺行和逆行示踪剂的免疫学检测,并可将检测结果与STPT数据配准,实现多组数据的叠加分析。
引言
在神经解剖学研究中,研究人员需要在全脑背景下观察微米级结构(例如轴突和突触小体)。这一困难的任务通常通过肉眼检查连续切片,并寻找感兴趣区域以进行详细成像、分析和拍照来完成。然而,随着技术的进步,现已能够以高分辨率对整个大脑进行成像,从而实现全脑分析。Oh 等人的一项开创性研究1中,对数百只小鼠大脑进行了示踪剂注射以开展连接组学分析,并采用连续双光子断层扫描(STPT)成像技术2进行处理。该研究的特点是选用顺行性示踪剂来量化"连接性"。尽管顺行性示踪剂能够提供关于轴突分布的非常详细的空间信息,但神经解剖学家长期以来依赖费力的手动分割方法进行分析。通过自动化包括分割步骤在内的多种分析流程,他们成功实现了即用型高分辨率示踪数据的"大规模生产",可用于多种用途。考虑到已有大量研究使用了他们的示踪数据3,4,5以及标准脑图谱6,其方法的有效性显而易见。
从20世纪50年代退行性变方法的出现,到70年代顺行/逆行物质运输技术的发展,直至当前的病毒示踪策略7,8,非人灵长类动物大脑的神经连接性一直受到众多神经解剖学家的关注。因此,已有大量文献致力于研究灵长类动物的神经连接。特别是,许多研究人员深入探讨了猕猴大脑复杂的皮层-皮层连接,并将其结果整理成表格形式(例如CoCoMac9)。尽管这些经典研究具有重要价值,但仍存在若干局限性。首先,由于每项研究仅聚焦于有限的脑区,所获得的信息不可避免地呈现碎片化。其次,各研究采用的方法和实验条件各不相同,导致跨研究的定量评估变得复杂。第三,连接性结果通常仅以代表性切片的透射绘图(camera lucida)形式,或以研究者自定义脑区的半定量表格/图表形式呈现。换言之,发表的文献中仅提取了复杂脑结构中极为有限的信息进行展示。随着磁共振成像(MRI)技术的发展,全脑尺度的低分辨率研究逐渐兴起。然而,目前在小鼠与灵长类动物神经连接研究的细节水平之间,仍存在巨大差距。
基于上述背景,我们着手对普通狨猴脑进行系统的顺行示踪研究10,11。尽管狨猴脑比猕猴脑更小且表面更平滑,但它仍表现出明确的灵长类特征,例如存在中颞区(MT区)和颗粒状前额叶区域,而这些结构在啮齿类动物中均不明显12,13。在此,较小的脑体积成为一大优势,因为即使如此,狨猴脑的重量仍比小鼠脑大十倍。幸运的是,我们能够对整个狨猴脑进行成像,仅需对STPT成像所用的商用显微镜TissueCyte1000的原始版本操作软件(下文简称全组织成像系统)进行少量升级即可实现2。此次升级主要是允许切片前载物台进行额外移动。目前的版本已足以处理狨猴脑。本文分享了一套用于STPT成像的狨猴脑组织处理方案,并提供了进一步提升该方法应用价值的成像后处理流程。
方案
所有实验操作均遵循1996年修订的《美国国立卫生研究院实验动物护理与使用指南》(NIH出版物第80-23号)以及日本生理学会的 "生理科学领域动物护理与使用的指导原则" 并经理化学研究所实验动物委员会批准(W2020-2-009(2))。
1. 示踪剂注射
- 根据先前报道的方法14,向狨猴脑内注射荧光性和非荧光性示踪剂。
- 若需与STPT方法结合使用,应确保示踪剂的荧光强度足够强,无需增强即可检测。可采用双载体TET-Off系统10以增强表达。
注意:也可注射非荧光性示踪剂,在完成STPT并制备出切片后进行检测。非荧光性示踪剂的示例包括生物素标记的葡聚糖胺(Biotinylated Dextran Amine, BDA)、用于逆行标记输入神经元核的AAV2 retro载体携带的cre表达AAV10,以及基于GFP的smFP-tag AAVs(见下文)。
- 若需与STPT方法结合使用,应确保示踪剂的荧光强度足够强,无需增强即可检测。可采用双载体TET-Off系统10以增强表达。
- 注射4周后进行灌流固定并取出狨猴脑组织。
- 为麻醉狨猴,肌肉注射Medetomidine(0.04 mg/kg)、midazolam(0.4 mg/kg)和butorphanol(0.4 mg/kg),即MMB混合制剂,随后腹腔注射硫喷妥钠(Thiopental Sodium,100 mg/kg)。
- 确认痛觉反射消失后,切开胸腔暴露心脏,并剪开右心房以使血液和固定液顺利流出。
- 随后剪开左心室,插入灌流针,先用预冷的前固定液(250 mM 蔗糖,5 mM MgCl2 溶于0.02 M 磷酸缓冲液[PB, pH 7.4])冲洗血液数分钟(约50–100 mL),然后使用4%多聚甲醛/0.1 M 磷酸缓冲液(PB;灌注量约为动物体重的2–3倍,持续约20分钟)进行固定。
- 良好的灌流对获得理想结果至关重要。插入灌流针时,应沿室间隔推进至主动脉,以确保固定液流动通畅。当针尖到达主动脉时会变得可见,此时应稍作回撤,使针尖 barely visible,避免越过颈动脉。
- 将脑组织在4%多聚甲醛/0.1 M PB中4 °C下保存48小时,随后转移至50 mM PB中。若不立即使用,应将脑组织储存在0.75%甘氨酸/0.1 M PB溶液中,以防止因过度固定导致自发荧光。
2. 样品制备(图1)
- 将固定的大脑与胶原酶(1 mg/mL,溶于3 mM CaCl₂中)孵育2 在37 °C下,用10 mL Tris缓冲盐水(TBS)孵育1小时。
注意:孵育前将脑组织在37 °C预热5 min。 - 用棉签轻轻擦拭脑表面,以剥离软脑膜及其他脑膜组织(图1A, 补充视频)。使用精细镊子剥离已分离的脑膜。
注意:必须去除围绕中脑(包括上丘或丘脑顶部)的脑膜。由于这些结构深藏于内部,暴露起来较为困难。然而,应尽可能彻底清除脑膜,否则残留的脑膜常无法被完全切断,会漂浮起来,干扰成像和切片操作。图2A). - 当大脑受到处理时需格外小心 离体 包埋前进行 MRI 扫描,期间将脑组织浸入氟溶液中15残留的氟化物若直接包埋,可能在成像时于物镜下形成微小气泡。为避免此问题,应在包埋前将脑组织在PB中保存1周。
注意:此等待步骤通常并非必要,但在与其他步骤联合使用时至关重要 离体 磁共振成像(MRI) - 将 0.2 g NaBH4 溶解于 100 mL 预热至 40°C 的 50 mM 硼酸盐缓冲液(pH 9.2)中,配制 NaBH4 缓冲液。瓶盖留松,以释放 CO2 排出气体。将溶液盖子稍松,放置过夜。 用铝箔包裹瓶子,以避光保存至使用。
- 通过搅拌2.25 g琼脂糖和0.21 g NaIO制备氧化琼脂糖4 在100 mL PB中孵育2-3小时。用真空抽滤法过滤溶液,并用PB换液洗涤三次。将琼脂糖重悬于50 mL PB中。
- 在微波炉中彻底融化琼脂糖,并冷却至60–65 °C。
- 将脑组织放入定制的切片室中,并用琼脂糖包埋脑组织。注意将琼脂糖注入胼胝体下方的空腔内。图1B).
注意:先将脑组织在室温下预热,然后在 65 °C 下预热 5 分钟,以使琼脂糖在脑表面沉降而不凝固。 - 拆卸反应室,将琼脂糖块浸入 NaBH4 缓冲液中,在 4 °C 下过夜。
- 在4 °C下,于1至2周内多次更换为PB缓冲液。
注意:如果缓冲液置换不完全,组织自发荧光会变得非常微弱。 - 使用环氧树脂瞬干胶将四块钕磁铁固定,制作一个载玻片台。
- 将琼脂糖块用强效粘合剂(例如,超级胶水)固定到载物台上图1C).
3. 组织处理
- 按照制造商的说明操作整个组织成像系统。相关详细方案已有发表16。当前流程主要适用于 TissueCyte1000,但也可用于其他型号,例如 TissueCyte 1600FC。
- 不同型号之间的操作略有差异,但请遵循以下共通的重要步骤:
- 无需更改硬件,即可将整个狨猴脑从前端至后端进行冠状面切片。放置脑组织时,确保不超出载物台的移动范围。
- 精细调节刀片角度,确保刀片两端表面深度差异在 10 µm 以内。由于存在致密的髓鞘化结构,即使 10 µm 的深度差异也可能导致激光在成年狨猴白质中的穿透程度不同。基于相同原因,应将成像平面设置在距表面约 25–35 µm 处。
- 使用陶瓷刀片(推荐)以 50 µm 间隔对整个脑组织进行切片(约产生 650 片以上)。
- 若未彻底清除脑膜,则其将保持完整并干扰切片过程(图 2)。某些脑膜(例如围绕海马或丘脑枕的脑膜)较难去除。一旦发现,应使用精细镊子手动清除。
4. 辅助组织学技术
- 切片获取
- 回收组织切片以进行各种组织学染色。将这些切片按切割顺序准确排列。通过追踪皮层各层中的血管进行对齐(图3)。
- 切除每个切片上多余的琼脂糖,以便于操作。
注意:此过程无需过度。琼脂糖的作用是固定组织片段,同时不影响组织学处理。 - 透射光成像
- 将切片置于载玻片上并干燥。
- 用PBS重新水化切片,并加盖盖玻片进行成像。
- 在明场模式下使用荧光显微镜对切片成像时,可观察到未染色情况下的髓鞘化模式(图4)。调整曝光时间,使光反射可见。
注意:只要显微镜具备暗场照明功能,均可使用。 - 移除盖玻片后,进行尼氏染色或其他染色。任何标准染色程序均可满足要求。
- 利用该方法可将不同染色模式与髓鞘化模式直接比较(图4)。
- BDA成像
- 详细步骤参见 表1。
- 首先,用Dent's溶液(20% DMSO,80%甲醇)处理切片。Dent's溶液中的甲醇可显著增强轴突中BDA信号。
- 采用酪胺信号放大法(TSA)增强BDA信号,以便进行荧光检测17。
注意:TSA-生物素溶液可从供应商处购买,但自制试剂更经济且效果更佳。 - 为与STPT图像配准,需在将切片用封片介质固定于载玻片后,采集透射光图像。
- 意大利面怪兽荧光蛋白(smFP)染色
注意:“意大利面怪兽”荧光蛋白(smFPs)是一类带有多个表位标签的非荧光GFP变体18。它们在免疫检测时可产生优异的荧光信号,适合作为荧光示踪剂的配套示踪工具。Addgene提供的AAV构建体详见 表2。- 按照 表1 中提供的详细步骤操作。
5. 成像后数据处理
- 数据完整性测试
注意:STPT 会产生大量图像文件。当以 50 µm 的间隔对成年狨猴脑进行冠状切片时,通常需要超过 650 个切片才能覆盖整个大脑。每个切片的数据由在三个通道中捕获的一系列拼接图像组成。这些图像文件与一个记录每个图像块位置的元数据文件一起存储在单个文件夹中。为了最小化总数据量和处理时间,成像以运行区块的方式进行,在每个区块中,拼接图像的 X 和 Y 方向步数逐渐变化。通常,20 至 30 个运行区块,每个区块包含 30 至 50 个切片的成像,构成单个大脑的完整数据集。要使用这些数据,需要进行多个图像处理步骤,包括拼接图像的拼合、荧光信号的分割以及体数据与标准模板的配准等。- 使用各种软件工具或根据研究人员的具体需求定制的专用流程,分别执行图像处理步骤。图像处理的详细信息不在本文讨论范围内,可参见其他出版物11,19。
- 无论采用何种流程,都应确保数据组织的一致性。
注意:由于整个成像过程涉及多个运行区块,并持续数天,运行中途取消并重新开始的情况并不少见。在这种情况下,数据结构可能遭到破坏,从而妨碍图像处理流程的正常执行。 - 为降低数据结构被破坏的风险,运行一个 Python 脚本来检查数据结构的完整性(kn_pipeline_check_mosaic.py),该脚本可在 GitHub 上获取(github.com/watkarbey/STPT_depo)。
- 染色图像与 STPT 图像的配准
注意:可使用 ImageJ 的 bUnwarpJ 插件对染色图像进行非线性变换以匹配 STPT 图像。- 调整目标图像(STPT)和源图像(染色)的大小,使其大致相等。
- 对每幅图像进行二值化处理,以显示切片的轮廓。
- 运行 bUnwarpJ。请务必勾选 保存变换 选项。
- 再次启动 bUnwarpJ。选择二值化前的原始图像作为源图像,然后点击 加载弹性变换,并选择之前保存的变换文件。
结果
在本实验常用的设置中,可在约1周内以约1.3 × 1.3 µm/像素的分辨率、50 µm的切片间隔,完成对成年狨猴全脑的成像(图5),共获得约650张三通道冠状面图像(经图像拼接后)。使用16倍物镜(Nikon 16xW CFI75 LWD;NA = 0.80)时,单次拍摄的视场约为1 × 1 mm。通过拼接这些图像可获得整个冠状面的完整图像(图5A)。Z方向的对齐效果极佳,仅需将冠状面图像数据堆叠即可获得高质量的三维图像(图5B、E)。为实现标准化,可采用狨猴脑的STPT模板11进行三维到三维的配准(图5F)。这种数据转换是全脑神经解剖学的关键环节之一,其核心在于为感兴趣区域分配独立于解剖标注的绝对空间坐标。一旦样本脑与标准空间完成配准,即可便捷地提取特定子区域用于进一步分析(图5F、G)。特别是,利用预设参数可将皮层区域转换为平面图(图5H)。
成像过程中生成的切片可用于多种组织学目的。如图4A、B所示,无需染色的背光成像可提供与真实的髓鞘染色非常相似的模式,因此可作为髓鞘染色的优良替代方法。此外,若在尼氏(Nissl)染色前获取背光图像,则同一张切片可用于同时获得髓鞘和尼氏染色的图像模式,从而提供有助于识别脑区和皮层层的信息(图5C-E)。这些切片还可用于免疫组织化学染色。在图5J中,对注射中心周围的切片使用NeuN抗体进行复染,以评估AAV病毒的转导效率。此外,在注射荧光示踪剂的同时额外注射非荧光示踪剂,并在切片回收后通过组织学方法检测,也是一种有效的策略。在我们之前的研究中,我们将顺行性绿色示踪剂与逆行性“cre”载体结合使用,后者通过抗-cre抗体进行检测10。在图6A-E的示例中,将BDA注射至绿色示踪剂(clover)对侧,并通过荧光方法检测其投射。需注意的是,红色的BDA信号可注册至TissueCyte图像中,从而在全脑坐标系中进行精确定位。在另一个示例(图6F-I)中,将smFP-myc注射至顶叶区域(图6G),而将绿色示踪剂注射至额叶区域。通过这种方式,可在同一只动物中注射多种示踪剂,且不会干扰成像过程。利用STPT切片进行额外染色的一大优势在于,能够在同一脑组织中确定荧光与非荧光示踪剂之间的关系。因此,我们能够以高精度确定皮质-皮质投射的双向性10。另一优势在于,染色切片的三维坐标可被映射回STPT数据,进而映射至标准脑模板。因此,可能无需对所有回收的切片均进行染色处理。为了更好地解释结果,可选择部分切片进行染色,以进一步补充STPT数据的解剖学背景信息。

图1:STPT的样本制备。(A)使用棉签去除软脑膜。脑干周围的软脑膜可用尖头镊子去除。狨猴大脑周围的软脑膜通过棉签擦拭手动去除。照片显示的是从外侧沟内剥离的软脑膜。(B)用于琼脂糖包埋的丙烯酸盒。盒上的插针可移动,用于调整大脑的角度,使其接近立体定位固定时的位置20。(C)由76 mm x 52 mm载玻片和四个用环氧树脂粘合的钕磁铁制成的磁性载片。琼脂糖块用强力胶粘附在磁性载片上。请点击此处查看该图的放大版本。

图2:脑膜对成像的影响。(A)未被切断的脑膜会漂浮上升,如白色箭头所示。本例中可见脑膜明显突出,这是因为在琼脂糖包埋前未将其去除。通常情况下,仅在几个较难处理的区域才会保留未切断的脑膜。(B)由于胼胝体与丘脑上部之间存在脑膜,导致切片质量差的一个示例。本例中,切片不良导致一个深切片(329)与一个相对正常的切片(330)交替出现。“#78-329”表示Brain/MINDS数据门户中的样本编号78、切片编号329。(C)另一个成像质量差的示例。在更严重的情况下,红箭头所示的枕核可能完全脱落。比例尺:0.5 mm(上图),0.5 µm(下图)。(D)另一个成像质量差的示例。位于距状沟深部的脑膜难以完全清除。在切片469和470中观察到的阴影是由漂浮的脑膜进入物镜下方所引起的。比例尺:0.5 mm(上图),0.5 µm(下图)。请点击此处查看该图的放大版本。

图3:组织切片的顺序排列。(A)最多50个狨猴冠状切片可在塑料容器(31 cm × 22.5 cm)中按正确顺序排列。为清晰显示细微结构,将容器置于黑色纸张上,并从侧面打光。这些切片首先进行粗略排序,随后进行精确对齐。(B)精确对齐以血管作为标记。大脑皮层中含有许多垂直贯穿皮层层的血管,表现为细长的孔状结构,其在皮层层内的位置呈系统性变化(白色箭头)。利用该方法,即使间隔为50 µm的切片也能准确对齐。这些血管孔结构可在SPTP切片图像中识别以作确认。比例尺:5 mm(上图),1 mm(下图)。请点击此处查看该图的放大版本。

图4:背光图像作为髓鞘染色的替代方法。 (A,B) 用于透射光成像和髓鞘染色的为同一组织切片。首先将切片贴附于载玻片上,干燥后用 PBS 缓冲液复水,加盖盖玻片,然后使用光学显微镜进行成像(材料表)。取下盖玻片后,同一组织切片用于髓鞘染色21 并使用荧光显微镜成像。背光图像通过ImageJ的bUnwarpJ插件与髓鞘图像进行配准。绿色方框显示了各图像的放大视图。请注意,这些图像显示出几乎相同的模式,只是髓鞘染色能更清晰地显示纤维结构。C-E) 用于透射光成像和尼氏染色的是同一脑片。首先使用 bUnwarpJ 插件将透射光图像的低阈值掩膜与尼氏图像的低阈值掩膜进行配准,然后将相同的变换参数应用于原始图像。请注意,两幅图像中的血管(白色箭头)匹配良好。由于这两幅图像来自同一脑片,配准结果几乎完美,因此可直接比较髓鞘和尼氏染色的模式以识别皮层层状结构。比例尺:5 mm(图 A-E)。 请点击此处以查看此图的放大版本。
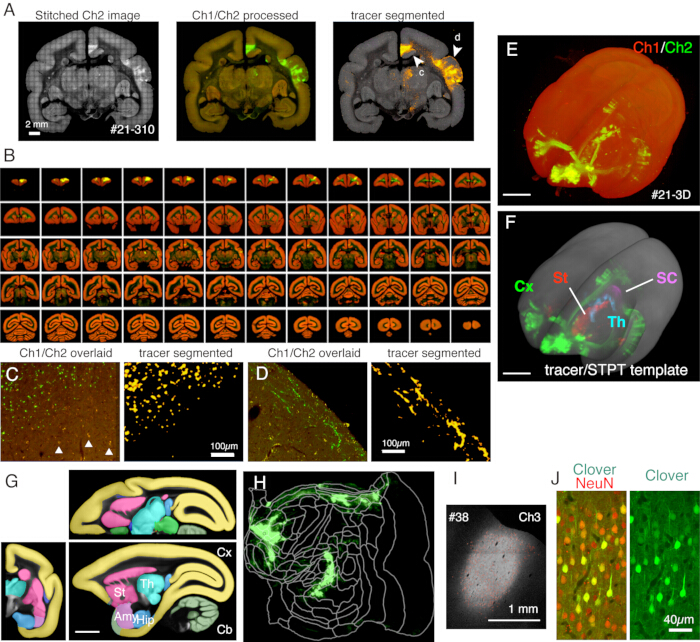
图 5:STPT 成像的典型结果。(A)一个示例切片(样本 #21 的第 310 号切片)的 Ch2(绿色)图像的简单拼接。未进行背景校正时,每个图像块的边界清晰可见。中间一列图像在拼接时分别对 Ch1(红色)和 Ch2(绿色)进行了背景校正。为降低脂褐素信号(见 C 面板),将 Ch1 信号从 Ch2 中扣除,最终显示为绿色。为减少 Ch1 的脂褐素信号,在 ImageJ 拼接前使用了“Remove Outliers..”命令。右列图像通过图像处理流程对示踪剂信号进行了分割11。箭头(c, d)指示了 C 和 D 面板中放大视图的位置。比例尺:2 mm。(B)样本 #21 的连续切片概览。STPT 为此样本生成了 635 张高分辨率冠状图像。(C)A 面板中箭头 c 所示位置的高倍放大视图。此图为 Ch1(红色)和 Ch2(绿色)的简单叠加,未经进一步处理。三角形标记处为脂褐素自发荧光信号,其光谱范围广泛。尽管示踪剂与脂褐素形态极为相似,示踪剂分割算法仍能准确区分两者(右侧面板)。比例尺:100 µm。(D)另一高倍放大视图示例。注意第 1 层中的细小轴突纤维清晰可见。比例尺:100 µm。(E)原始 STPT 图像的三维重建。使用 B 面板所示的 635 张低分辨率冠状图像作为 TIFF 图像栈,通过 fluorender22 进行三维可视化。比例尺:5 mm。(F)分割后的示踪剂信号经配准至 STPT 模板(灰色)后的三维重建。不同脑区的示踪剂信号以不同颜色显示。这些区域根据 G 面板中的标注进行裁切。比例尺:5 mm。(G)STPT 模板叠加不同脑区的标注。比例游戏副本:5 mm。(H)F 面板中显示的皮层示踪剂信号以平面图形式呈现。(I)通过 Ch3 荧光识别注射位点,该通道对示踪剂荧光敏感性较低且未饱和。比例尺:1 mm。(J)使用 NeuN 抗体对注射中心附近切片进行染色,结果显示约 30% 的神经元表现出强烈的 Clover 绿色荧光。比例尺:40 µm。缩写:Cx;皮层,St;纹状体,Th;丘脑,SC;上丘。Amy;杏仁核,Hip;海马,Cb;小脑。请点击此处查看此图的放大版本。
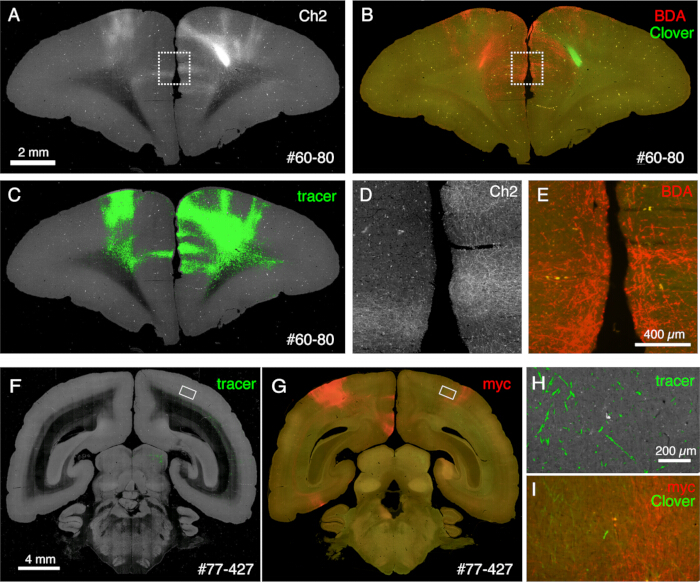
图6:STPT后组织学成像显示多种非荧光示踪剂。(A-C)STPT图像与BDA染色图像的比较。在该样本中,BDA被注射至Clover注射对侧。图A和图C显示STPT数据的Ch2图像及示踪剂分割结果。图B显示STPT后BDA的染色结果。由于切片经过甲醇处理,Clover荧光减弱。比例尺:2 mm。(D、E)图A和图B中的虚线框区域被放大。比例尺:100 µm。(F、G)STPT图像与抗myc标签抗体染色的比较。在该样本中,Clover注射至PFC,而AAV-smFP-myc注射至对侧顶叶皮层。白色矩形区域在图H和图I中被放大。比例尺:4 mm。(H)示踪剂分割结果以绿色显示。比例尺:200 µm。(I)myc染色以红色显示,Clover荧光以绿色显示。比例尺:200 µm。图H和图I中的绿色信号位置相似但不完全重合,因为STPT仅获取约10 µm的光学切片。请点击此处查看该图的放大版本。
| BDA 荧光染色方案 | |
| 去除琼脂糖 | |
| TBS 洗涤 | 10 分钟(2 次) |
| 1% H2O2 的 Dent's 溶液 | 10 分钟 |
| TBS 洗涤 | 短暂洗涤 |
| 0.5% TNB 封闭 | 1 小时 |
| StAvHRP(1:4000)溶于 TNB | 2 天,过夜 |
| TNT 洗涤 | 10 分钟(3 次) |
| TSA 生物素(1:4000)溶于 0.1 M 硼酸缓冲液(pH 8.5)+ 0.003% H2O2 | 2 小时 |
| TNT 洗涤 | 10 分钟(3 次) |
| Cy3-链霉亲和素(1:1000)溶于 TNT | 3 小时 |
| TNT 洗涤 | 10 分钟(2 次) |
| TBS 洗涤 | 保存切片直至封片 |
| 使用抗荧光淬灭封片剂将切片封固于载玻片上 | |
| 抗 myc 荧光染色方案 | |
| 去除琼脂糖 | |
| TBS 洗涤 | 10 分钟(2 次) |
| IB 中封闭 | 1 小时 |
| 抗 myc 抗体(1:4000)溶于 IB | 2 天,过夜 |
| TNT 洗涤 | 10 分钟(3 次) |
| 抗小鼠 Cy3(1:1000)溶于 TNT | 3 小时 |
| TNT 洗涤 | 10 分钟(2 次) |
| TBS 洗涤 | 保存切片直至封片 |
| 使用抗荧光淬灭封片剂将切片封固于载玻片上 | |
| 缓冲液/溶液 | 成分 |
| 0.5% TNB | TS7.5 中含 0.5% TSA 封闭试剂 |
| Dent's 溶液 | 20% DMSO,80% 甲醇 |
| 浸渍缓冲液(IB) | TBS 中含 10% FBS、2% BSA、0.5% Triton X-100 |
| TBS(Tris 缓冲盐水) | 25 mM Tris,137 mM NaCl,2.7 mM KCl(pH 7.4) |
| TNT | TS7.5 中含 0.05% Tween 20 |
| TS7.5 | 0.1 M TRIS-HCl(pH 7.5),0.15 M NaCl |
表1:BDA荧光染色与抗myc荧光染色方案
| AAV 示踪剂质粒 | Addgene 编号 | 推荐抗体 | 建议稀释比例 | 预期结果 |
| pAAV-EF1_Cre | 201198 | Millipore clone 2D8 | 1:1000 | 适用于细胞 |
| pAAVCam1.3_smFP_Myc | 201205 | MBL M192 My3 (mouse) | 1:4000 | 极好 |
| pAAVCam1.3_smFP_HA | 201206 | CST C29F4 (rabbit) | 1:1000 | 适用于细胞 |
| pAAVCam1.3_smFP_FLAG | 201207 | MBL PM020B (rabbit) | 1:1000 | 尚可 |
| AAVTRE3_smFP_Myc | 201208 | |||
| AAVTRE3_smFP_HA | 201209 | |||
| AAVTRE3_smFP_FLAG | 201210 |
表2:可用于制备非荧光示踪剂的Addgene质粒列表。cre载体靶向细胞核,适用于被AAV2 retro包裹的逆向示踪。smFP_HA载体适用于细胞体检测(及逆向示踪)。
补充视频:脑膜剥离的显微镜视野。 请点击此处下载该视频。
讨论
本文阐述了处理狨猴大脑以进行全脑加工的实用解决方案,以及可增强STPT技术应用价值的辅助组织学技术。该方法的优势在于 "全脑神经解剖学" 使用STPT的优势在于,无论感兴趣区域是否经过解剖学标注,均可获取其三维坐标。通过高精度的三维到三维配准,可将这些坐标转换至标准模板,从而实现多组数据集的叠加。由此,标准模板便成为数据整合的媒介。这一点在我们的前额叶皮层(PFC)定位图谱项目中至关重要。10,其中对来自多个个体的数据进行了分析。此外,映射到标准模板的信息可与各种已映射的数据进行比较,无论是尼氏染色、髓鞘模式、示踪剂数据、磁共振成像(包括弥散磁共振成像)数据,还是解剖学注释。11重要的是,该数据还可与未来通过尚未出现的技术获得的数据进行比较。目前已有多种基于尼氏染色的狨猴脑图谱模板。23,MRI23,24,25,26,27,28,以及 STPT11但可根据图像对比度和预先计算的参数将其相互转换为对方的坐标系11在全脑尺度上整合不同研究的数据有助于更全面地理解脑作为一个系统的功能。实现这一策略的前提是在全脑范围内获得可靠的数据。以下将讨论当前方案中相关的关键步骤及潜在问题。
STPT成像中最容易出现问题的步骤之一是组织切片。如上所述,脑膜常常未能完全切开,可能会干扰切片过程。特别是丘脑枕核和上丘是两个最容易受到影响的脑区:根据脑膜去除和琼脂糖包埋的彻底程度,这些区域可能在切片过程中从组织块上脱落。这些深层区域从外部难以处理,在去除脑膜时容易破裂。仔细而彻底地去除脑膜对于成功成像至关重要。另一个需要注意的问题是切片后的组织片翻转回贴到组织块表面,这种情况有时会在切片完成后仍发生,尤其是当组织片未完全分离时。通过调整组织块的形状,使刀片在最后阶段以倾斜角度切割,可以最大限度地减少这一问题。
通过深入组织块内部成像,STPT 可避免其表面不平整的影响。荧光信号虽然能够较容易地穿透皮层区域,但在髓鞘化区域会显著减弱。因此,需要仔细确定成像深度,以在整块组织表面成像的一致性与富含髓鞘区域(如白质)的信号亮度之间取得平衡。在本实验所用的系统中,我们通常将成像深度设定为距表面 25–35 µm。还需注意,切面在长时间储存后可能出现不均匀收缩。为了尽量减少成像区域,我们将成像过程分为 20–30 次运行,每次使用不同的载物台设置,持续 5–6 天。我们要么将各次运行之间的间隔控制在 2 小时以内,要么在每次运行前确认表面深度并调整载物台高度。
在本实验方案中,BDA信号通过TSA方法进行扩增。该方法效果显著,即使在相对较低的分辨率下也能检测到顺行运输的BDA信号(例如,图6B)。TSA生物素试剂可从Akoya Biosciences公司购得,但自制溶液的增强效果更佳。另一方面,抗体和溶液的稀释比例需仔细优化,以获得最佳结果。切片用甲醇溶液进行预处理至关重要。若不进行预处理,在有髓轴突中几乎无法检测到BDA信号。
使用顺行示踪剂时,由于荧光信号饱和,通常难以确定确切的注射位点。在本研究采用的全组织成像系统设置中,我们利用蓝色通道来识别被感染的细胞(图5I)。即使红色和绿色通道出现信号饱和,单个被感染的神经元通常仍可在蓝色通道中被检测到。这一点在艾伦小鼠脑连接图谱中同样成立1。检查起源细胞至关重要,因为感染有时仅涉及特定的皮层层次。我们在使用小鼠脑连接图谱时较常遇到此类局部感染,这可能是由于采用了离子电渗法所致29。病毒示踪剂的侧向扩散程度可能因注射操作而存在一定程度的变异。这种变异性可能影响示踪结果,因此需要进行仔细的标准化处理。
成功将获取的三维图像配准至标准模板是全脑神经解剖学中的关键步骤。STPT图像与STPT模板的配准可达到较高的准确性,对于具有高图像对比度的边界区域,我们仅观察到数个体素(50 µm各向同性立方体素)的偏差。10然而,图像配准的作用仍存在局限性。由于去除了脑膜,STPT样本通常在半球之间以及皮层与中脑/后脑之间存在间隙,而正常脑组织在体内是紧密排列的 体内 MRI图像。此类差异很难通过配准进行校正。狨猴大脑皮层大多缺乏脑沟,但在某些个体中,顶内沟非常深。此类脑沟在配准过程中会消失(发生顶-顶融合)。尽管配准是一种强大的技术,但仍有必要返回原始数据以确认所得结果。
大量图像数据的生成既是该技术的优势,也是一种局限性。虽然这增强了数据集的完整性,但也需要对所获取的数据进行仔细管理,并开发自动化的图像处理流程,以实现高效的数据解读。未来,生成式人工智能(AI)在构建图像处理流程中的应用可能会显著简化这一过程。系统性的全脑成像也已通过基于切片扫描仪的方法实现21,30。与这些方法相比,STPT无需额外的三维重建计算。结合光学切片技术,我们已证明STPT具备跨切片重建轴突片段的潜力31。进一步结合组织透明化技术后,Economo等人开发出一种方法,可用于对稀疏标记的神经元进行完整成像32,33。目前最新版本的TissueCyte现已提供额外激光选项,以增强对红色荧光蛋白的激发,或配备切片捕获单元以实现切片的自动回收。随着这些技术进步,全脑成像方法将变得更加高效,为全面理解包括人类在内的灵长类动物大脑奠定基础。
披露
作者无任何利益冲突需要披露。
致谢
我们衷心感谢山森实验室及动物设施(RRD)技术人员提供的帮助。感谢理化学研究所CBS-奥林巴斯联合中心在共聚焦图像采集方面的技术支持。本研究由日本文部科学省创新领域科学研究中心项目(课题编号22123009)、日本医学研究开发署(AMED)的Brain/MINDS和Brain/MINDS2.0项目(JP15dm0207001、JP23wm0625001和JP24wm0625218)以及日本学术振兴会(JSPS)科研费资助项目(课题编号24K09678)资助,特此致谢。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂糖I型 | Sigma | A6013 | |
| 一体化荧光显微镜 | Keyence | BZ-X 系列 | 本研究使用了BZ-X710 |
| 抗小鼠Cy3 | 杰克逊免疫研究实验室股份有限公司 | 115-165-003 | |
| 抗myc抗体 | MBL | M192 | 小鼠单克隆 |
| 布托啡诺 | 明治动物健康 | Vetorphale | |
| 陶瓷刀片 | 组织视觉 | N/A | |
| I型胶原酶 | 和光纯药工业 | #031-17601 | 分装至100 µL × 10,100 mg/mL,溶于PBS中 |
| 棉签(HUBY-340) | HUBY | BB-013SP | 微型棉签 |
| 定制腔室 | N/A | N/A | 该腔室由四块侧板和一块底板组成,所有部件均采用1厘米厚的亚克力板制成,可通过螺栓牢固地固定在一起。腔室内还放置有一块额外的亚克力板,并配有三根金属杆 通过其插入以固定狨猴脑的倒置位置。 |
| Cy3-链霉亲和素 | 杰克逊免疫研究实验室股份有限公司 | 016-160-084 | |
| Dumont #5 镊子,Inox | N/A | N/A | |
| 环氧树脂速混剂 | Locktite | N/A | |
| FIJI | 美国国立卫生研究院 | https://imagej.net/software/fiji/downloads | |
| kn_pipeline_check_mosaic.py | N/A | N/A | github.com/watkarbey/STPT_depo;这是一个用于检查 TissueCyte 数据的脚本。 |
| 美托咪定 | Zenoaq | 多米托 | |
| 咪达唑仑 | Sandoz | N/A | |
| NaBH4 | Sigma | #452882 | |
| NaIO4 | Sigma | S1878 | |
| 灌注针 | Natsume Seisakusho Co., Ltd | KN-348,20G-50 | |
| 载玻片(76 mm × 52 mm) | Matsunami | S9111 | |
| StAvHRP | 杰克逊免疫研究实验室股份有限公司 | 016-030-084 | HRP-链霉亲和素(滴定浓度需仔细确定) |
| TissueCyte1000 | 组织视觉 | https://www.tissuevision.com/tissuecyte | |
| TSA封闭试剂 | Kiko Tech | FP1012 | 参照 TSA-biotin 试剂盒(Akoya Biosciences) |
| TSA-生物素 | 自制 | N/A | 参见 Okamoto 等人(参考文献 16) |
| VECTASHIELD HardSet 封片剂 | Vector Laboratories Inc | N/A | 抗荧光淬灭封片剂 |
参考文献
- Oh, S. W., Harris, J. A., Ng, L., Winslow, B., Cain, N., et al. A mesoscale connectome of the mouse brain. Nature. 508 (7495), 207-214 (2014).
- Ragan, T., et al. Serial two-photon tomography for automated ex vivo mouse brain imaging. Nat Methods. 9 (3), 255-258 (2012).
- Liang, Z., Arefin, T. M., Lee, C. H., Zhang, J. Using mesoscopic tract-tracing data to guide the estimation of fiber orientation distributions in the mouse brain from diffusion MRI. Neuroimage. 270, 119999(2023).
- Watakabe, A., Hirokawa, J. Cortical networks of the mouse brain elaborate within the gray matter. Brain Struct Funct. 223 (8), 3633-3652 (2018).
- Ypma, R. J. F., Bullmore, E. T. Statistical analysis of tract-tracing experiments demonstrates a dense, complex cortical network in the mouse. PLoS Comput Biol. 12 (9), e1005104(2016).
- Wang, Q., et al. The Allen mouse brain common coordinate framework: A 3D reference atlas. Cell. 181 (4), 936-953.e20 (2020).
- Köbbert, C., Apps, R., Bechmann, I., Lanciego, J. L., Mey, J., Thanos, S. Current concepts in neuroanatomical tracing. Prog Neurobiol. 62 (4), 327-351 (2000).
- Lanciego, J. L., Wouterlood, F. G. Neuroanatomical tract-tracing techniques that did go viral. Brain Struct Funct. 225 (4), 1193-1224 (2020).
- Bakker, R., Wachtler, T., Diesmann, M. CoCoMac 2.0 and the future of tract-tracing databases. Front Neuroinform. 6, (2012).
- Watakabe, A., et al. Local and long-distance organization of prefrontal cortex circuits in the marmoset brain. Neuron. 111 (14), 2258-2273.e10 (2023).
- Skibbe, H., et al. The Brain/MINDS marmoset connectivity resource: An open-access platform for cellular-level tracing and tractography in the primate brain. PLoS Biol. 21 (6), e3002158(2023).
- Mitchell, J. F., Leopold, D. A. The marmoset monkey as a model for visual neuroscience. Neurosci Res. 93, 20-46 (2015).
- Okano, H. Current status of and perspectives on the application of marmosets in neurobiology. Annu Rev Neurosci. 44, 27-48 (2021).
- Watakabe, A., et al. Comparative analyses of adeno-associated viral vector serotypes 1, 2, 5, 8 and 9 in marmoset, mouse and macaque cerebral cortex. Neurosci Res. 93, 144-157 (2015).
- Hata, J., et al. Multi-modal brain magnetic resonance imaging database covering marmosets with a wide age range. Sci Data. 10, 221(2023).
- Liwang, J. K., Bennett, H. C., Pi, H. -J., Kim, Y. Protocol for using serial two-photon tomography to map cell types and cerebrovasculature at single-cell resolution in the whole adult mouse brain. STAR Protoc. 4 (1), 102048(2023).
- Okamoto, S., et al. Exclusive labeling of direct and indirect pathway neurons in the mouse neostriatum by an adeno-associated virus vector with Cre/lox system. STAR Protoc. 2 (1), 100230(2021).
- Viswanathan, S., et al. High-performance probes for light and electron microscopy. Nat Methods. 12 (6), 568-576 (2015).
- Kuan, L., et al. Neuroinformatics of the Allen mouse brain connectivity atlas. Methods. 73, 4-17 (2015).
- Paxinos, G., Watson, C., Petrides, M., Rosa, M., Tokuno, H. The Marmoset Brain in Stereotaxic Coordinates. , Academic Press. London, Waltham, MA. (2012).
- Abe, H., et al. 3D reconstruction of brain section images for creating axonal projection maps in marmosets. J Neurosci Methods. 286, 102-113 (2017).
- Wan, Y., et al. FluoRender: Joint freehand segmentation and visualization for many-channel fluorescence data analysis. BMC Bioinformatics. 18 (1), 280(2017).
- Majka, P., et al. Towards a comprehensive atlas of cortical connections in a primate brain: Mapping tracer injection studies of the common marmoset into a reference digital template. J Comp Neurol. 524 (11), 2161-2181 (2016).
- Liu, C., Yen, C. C. -C., Szczupak, D., Tian, X., Glen, D., Silva, A. C. Marmoset brain mapping V3: Population multi-modal standard volumetric and surface-based templates. Neuroimage. 226, 117620(2021).
- Liu, C., et al. A digital 3D atlas of the marmoset brain based on multi-modal MRI. Neuroimage. 169, 106-116 (2018).
- Liu, C., et al. A resource for the detailed 3D mapping of white matter pathways in the marmoset brain. Nat Neurosci. 23 (2), 271-280 (2020).
- Woodward, A., et al. The Brain/MINDS 3D digital marmoset brain atlas. Sci Data. 5, 180009(2018).
- Saleem, K. S., Avram, A. V., Glen, D., Schram, V., Basser, P. J. The subcortical atlas of the marmoset ("SAM") monkey based on high-resolution MRI and histology. Cereb Cortex. 34 (4), bhae120(2024).
- Watakabe, A., Hirokawa, J. Cortical networks of the mouse brain elaborate within the gray matter. Brain Struct Funct. 223 (8), 3633-3652 (2018).
- Lin, M. K., et al. A high-throughput neurohistological pipeline for brain-wide mesoscale connectivity mapping of the common marmoset. eLife. 8, e40042(2019).
- Skibbe, H., et al. PAT-probabilistic axon tracking for densely labeled neurons in large 3-D micrographs. IEEE Trans Med Imaging. 38 (1), 69-78 (2019).
- Economo, M. N., et al. A platform for brain-wide imaging and reconstruction of individual neurons. eLife. 5, e10566(2016).
- Winnubst, J., et al. Reconstruction of 1,000 projection neurons reveals new cell types and organization of long-range connectivity in the mouse brain. Cell. 179 (1), 268-281.e13 (2019).
重印与许可
