由小鼠胚胎干细胞衍生的三维神经管类器官(NTOs)是研究中枢神经系统早期发育的有力工具。本文逐步演示一种优化的NTOs培养方案 体外,提供了稳定的培养条件以及可靠的、可重复的NTO生成的故障排除策略。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
哺乳动物的发育是一个高度复杂的过程,其特征在于需要精确的浓度和时间依赖性信号传导,以实现正确的模式形成和形态发生。尽管技术不断进步并积累了大量知识,哺乳动物发育的许多方面仍然不甚清楚。在研究整个生物体时,很难解析个别信号通路的作用,或阐明外部刺激如何引导周围组织和因子相互作用的机制。为应对这一复杂性,三维(3D) 体外 类器官等模型已成为重要的研究工具。类器官源自胚胎干细胞(ESCs)或诱导性多能干细胞(iPSCs),具有类似组织的特征,与其来源组织高度相似 体内 在表达模式和功能方面与其对应物相似。重要的是,它们可在受控的实验条件下进行操作并开展广泛的生物学研究。尽管来源于多能性细胞培养,类器官系统常表现出异质性和显著的变异性,这限制了其在研究复杂精细生物学问题时的应用。因此,迫切需要制定详细的实验方案,以统一操作流程,获得高质量且可重复的数据,减少材料使用,并能够深入探究复杂的生物学现象。在此背景下,本文提供了一种优化的神经管类器官(NTOs)培养方案 体外 本文介绍了一种通过建立稳定的培养条件并提供全面的故障排除策略,以可靠且可重复地生成神经管类器官(NTOs)的方法。该模型适用于研究神经诱导、模式形成及中枢神经系统早期发育等相关科学问题。
引言
哺乳动物的发育始于一个单一的全能性干细胞,是一个涉及模式形成和形态发生诱导的复杂过程1,2。这一发育过程需要严格调控的细胞程序,以协调细胞与其环境之间的动态相互作用。干细胞具有内在能力,可感知、整合并响应包括形态发生素浓度梯度3、机械边界4、细胞增殖以及环境重塑5在内的系统性和局部信号。外部的时空信号同样驱动多细胞协同响应,最初在均质组织中发挥作用,以确保复杂结构的精确构建。干细胞以其自我更新6,7和分化能力为特征,在胚胎发育和成体组织修复中发挥关键作用,主要包括胚胎干细胞(ESCs)、成体干细胞(ASCs)和诱导性多能干细胞(iPSCs)。
胚胎干细胞(ESCs)从囊胚的内细胞团(ICM)中分离获得,通常使用特定培养基在饲养细胞或细胞外基质上进行二维(2D)培养,以维持其多能性8近年来,对更接近生理条件的细胞培养环境和技术的需求急剧增加,因此建立了三维(3D)细胞和组织模型,用于研究基本的生物医学过程9在发育生物学中,类器官等三维模型为研究组织形态发生和器官形成提供了强有力的方法 离体9类器官通过增殖性干细胞的自我组织形成,这些干细胞自发地通过对称性破缺和模式形成发展为复杂的三维结构。这一过程与体内所观察到的现象相似,但并不完全相同 体内,且大多在无外部引导的情况下发生,而是由内部动力学和相互作用驱动10由于类器官在结构和功能上高度模拟真实器官,与传统的二维细胞培养相比,能够更准确地反映哺乳动物的生物学特性。11此外,其主要优势之一在于伦理学上的优点,因为类器官减少了对动物模型的需求,从而缓解了与动物实验相关的伦理关切。12,13此外,类器官为高通量药物筛选提供了平台,有助于提高对药物有效性和毒性的预测能力。然而,类器官的应用也面临若干挑战。尽管其相较于二维培养更具生理相关性,但仍无法完全模拟活体中完整器官的复杂性及其相互作用。14此外,即使类器官来源于相同类型的细胞,它们之间也可能存在显著差异,从而导致实验结果的不一致15因此,以稳定且可重复的方式培养类器官至关重要,这需要高超的技术水平、专用设备和详细的实验方案。
神经系统是一个复杂的网络,通过向全身发送和接收信号来协调动作并处理感觉信息,从而控制和协调所有必需的功能,包括运动、感觉、思维以及心跳和消化等自主功能。中枢神经系统(由脑和脊髓组成)的前体是神经管。深入理解早期神经管发育过程中神经结构的形成与功能,对于揭示多种神经系统疾病和发育异常具有重要意义。神经发育障碍在体内(in vivo)研究中具有挑战性,尤其是当研究对象为人类时,常因伦理问题而受限。神经类器官(如脑类器官16,17)通过提供可及性强、多功能的模型,能够高度模拟人类脑组织,显著推动了对神经系统发育与疾病的理解。这些由多能干细胞(PSCs)衍生而来的三维结构,能够复制大脑发育的多个方面,包括不同脑区的形成、细胞多样性以及复杂的神经网络16,18,19。通过使研究人员能够实时观察发育阶段并研究关键调控机制,这些类器官为正常脑发育过程提供了深刻见解。脑类器官还可用于建模神经发育19和神经退行性疾病20,例如小头畸形16,21、寨卡病毒感染22、自闭症谱系障碍23等,有助于阐明疾病机制并识别潜在的治疗靶点。此外,脑类器官作为药物测试与开发的宝贵平台,可在类人脑环境中评估药物的有效性和毒性,加速个体化医疗的发展。同时,它们还提供了可控的实验环境,用于研究基因与环境的相互作用,从而加深对由遗传与环境因素共同作用引起的复杂疾病的理解。然而,由于神经类器官(如脑类器官)通常由细胞聚集体形成,往往表现出显著的细胞异质性和实验结果的变异性,进而影响所生成数据的可解释性,给研究人员带来重大挑战17。因此,优化实验方案并建立精确的质量控制标准,对于获得能够充分代表体内(in vivo)状态的高质量数据至关重要。
Meinhardt 及其同事24首次报道了一种克隆性神经类器官培养方案,该方案通过单个胚胎干细胞(ESCs)形成,模拟早期神经管发育过程,显著降低了类器官间的异质性,从而产生了重要影响。这一创新使研究人员能够在精确且明确的环境中,以极高的分辨率研究发育过程、机制以及神经模式的形成。迄今为止,许多实验室已开发出多种神经类器官,主要来源于小鼠或人类,用于模拟神经管的不同区域及其发育过程,相关研究已由文献25进行了总结。然而,根据现有信息,Meinhardt 等人24建立的方案是目前唯一能够使神经类器官(NTOs)稳定地从单个细胞起源、自发组织,并在仅接受一次全局性视黄酸(RA)脉冲刺激后高效地分化为背腹侧命运的方法,无需添加其他腹侧化因子(如Sonic Hedgehog激动剂SAG)26,也无需使用可因浓度梯度形成而提供空间信息的微流控装置。本文所提供的方案改编自 Meinhardt 等人24的方法,并如 Krammer 等人26所述进行优化。在此方案中,将单个小鼠 ESC 接种于细胞培养基质中,并置于明确的神经分化条件下。两天内,这些细胞通过克隆扩增并发生上皮化,形成具有单一管腔、呈圆形至椭球形的三维结构,其周围细胞呈现顶端-基底极性分层。在第2天施加一次持续18小时的全局性信号分子RA脉冲处理,可促进神经分化,使NTOs从前脑/中脑水平后化至后脑/颈段脊髓水平,并在第6天诱导形成功能性的单一底板,从而实现NTO从腹侧到背侧的模式建立。
优化后的方案具有多项关键优势。该方法可在前三天内实现稳定的上皮化,并生成直径约200 µm、相对较小且呈球形的组织,每个组织均含有单一管腔。类器官由单个细胞克隆性地形成,并在无血清、化学成分明确的培养基中维持培养。在六天内,可实现从多能性培养细胞逐步向神经分化的进程,到第6天时类器官表现出前脑中脑特征,而在接受全反式维甲酸(RA)脉冲处理后,可进一步形成背腹模式化的后脑或颈段脊髓样结构26。
为提高可重复性和通量,本方案在多个方面对原始实验流程22,25进行了调整和改进。这些改进包括优化的胚胎干细胞(ESC)培养条件、减少起始细胞数量、改进的分化培养基,以及调整后的分化方案——该方案在第0至2天省略了Noggin的添加(此方法已在文献26中使用)。此外,接种密度已针对96孔板的应用进行了优化,从而实现高通量分析。综合这些改进措施,神经胚体(NTO)形成与模式化效率从最初的大约40%24提升至目前的约80%26,提高了约40%。
此处(图1)提供了一种优化方案的详细描述,该方案可在细胞培养基质中稳定且可重复地生成神经类器官(NTOs)。本方案涵盖了NTO操作的各个阶段,从胚胎干细胞(ESCs)的初始接种以进行分化实验,到后续的培养维持、固定和分析。此外,还包括通过每日对NTO形态进行视觉评估来实施质量控制的指南,以及利用抗体染色对类器官身份进行关键性表征,以验证其正确的模式形成和神经分化。同时提供了全面的故障排查方法,可在方案的每一步进行关键性评估,这对于确保实验方案的可重复性和可靠性至关重要。这些详细的说明有助于识别并解决潜在问题,减少误差,并优化实验结果。这对于维护科学实验的完整性,以及使其他科研人员能够成功重复该工作并从所生成的数据中得出全面结论,从而推动该领域的发展,具有重要意义。
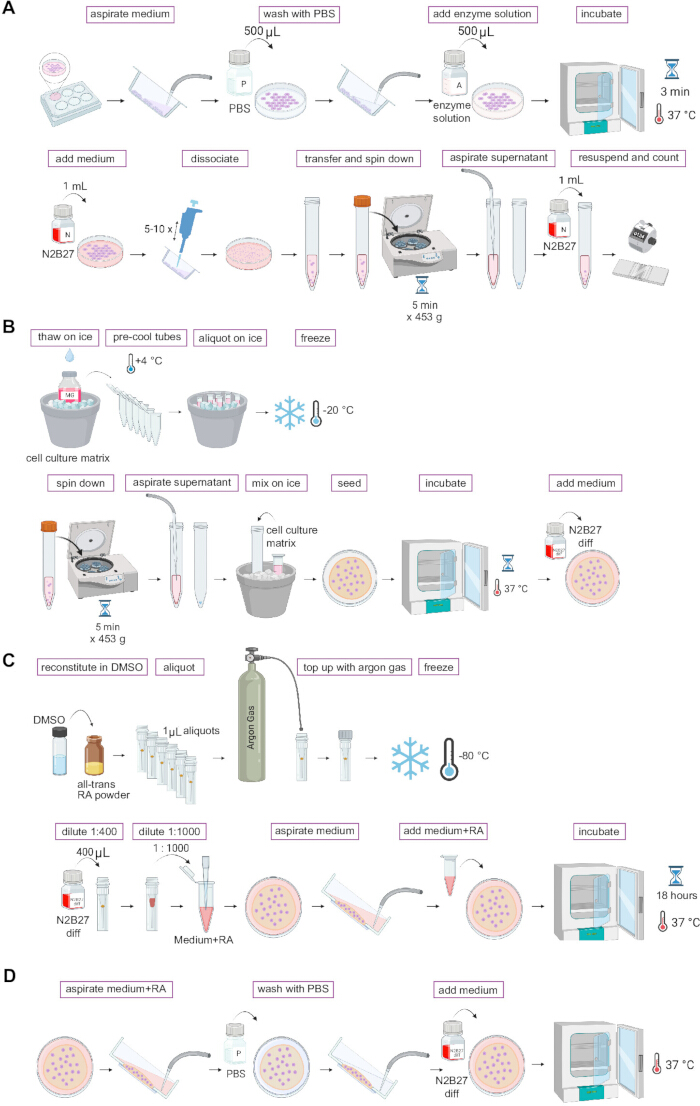
图1:实验方案概览。(A)ESC传代(见步骤1.1)。(B)分装细胞培养基质并接种单个ESC以分化为NTO(见步骤1.2)。(C)分装RA及RA处理(见步骤2)。(D)去除RA并进行每日常规培养基更换(见步骤3)。本图使用BioRender.com绘制。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
注意:在进行任何后续操作(如更换培养基、处理、固定等)之前,需每天检查细胞和神经管类器官(NTOs)的质量。所有需要将细胞直接暴露于空气中的操作均须在生物安全柜内进行,以确保无菌并防止培养物污染。
1. 神经管类器官分化用小鼠 ESC 的维持、传代与接种
- 传代
- 将胚胎干细胞(ESCs)培养在预先用0.15%明胶在37℃下孵育30分钟的细胞培养皿或6孔板的孔中 °C.
- 每2-3天传代一次胚胎干细胞,从第2天开始每日更换培养基。
- 预热所有试剂(培养基、PBS、酶溶液)至至少 21 °C 和最高 37 °使用前置于冰上。
- 在相差显微镜下观察细胞(参见代表性图像, 图2)。确保细胞集落具有适当的大小和正确的形态(图 2A),同时确认其已贴附于培养皿底部。
注意:如果超过10%的小鼠ESC发生分化,则弃去该培养物图2B),并准备新复苏的培养物,在将胚胎干细胞(ESCs)接种用于分化实验之前,至少传代两次。有经验的研究人员可通过视觉评估进行判断(另请参见 Mulas 等人)。28)或 通过 标志物表达的抗体染色(例如 OCT4,另见 Ying 等)29). - 打开培养皿/板的盖子,轻轻倾斜,小心吸除培养基。尽可能缩短细胞在培养箱外停留的时间。为避免培养物干燥,应尽量减少无培养基状态下的暴露时间。
- 用500 μL洗涤克隆集落 µ预热的 PBS 1 升(加入 6 孔板一个孔中的细胞),立即再次吸除。
注意:此步骤至关重要,原因如下:i) 必须避免在分化实验前残留胚胎干细胞培养基(2iLIF)(否则会阻碍神经管类器官的形成);ii) 培养基中的胎牛血清(FBS)或牛血清白蛋白(BSA)会抑制细胞解离。此注意事项适用于在含FBS或BSA的其他胚胎干细胞培养基中培养的胚胎干细胞。 - 加入500 µ加入预热的酶溶液 L,并将细胞放回培养箱。
- 在 37 ℃ 培养细胞 °使用计时器,于 C 条件下孵育 3 分钟。
- 孵育结束后,取出培养板,在相差显微镜下观察细胞。
注意:胚胎干细胞应已从培养板上脱落;若未脱落,可轻轻但有力地敲击培养皿/板图 2C). - 加入1 mL N2B27培养基(表1通过将液体直接移液至细胞表面。
注意:配制培养基(N2B27)时,谷氨酰胺在37℃下最长保留5-10分钟 °C,最好在室温下进行。应将胚胎干细胞从培养板上冲洗下来,使培养皿中留下“空白”区域。 - 使用 P1000 移液器并轻微倾斜培养板,使所有贴附在培养皿上的集落均能被冲洗下来。
- 为解离细胞团块,将培养皿略微倾斜,将移液器吸头(P1000)置于培养皿中央,使吸头轻触皿底但偏离垂直轴线,冲洗细胞。重复操作五至十次,以打散细胞团块。
- 在相差显微镜下检查细胞是否已充分解离为单细胞图 2D)如果仍有团块,则重复此步骤。
- 完全解离后,将细胞悬液转移至一支洁净无菌的15 mL圆锥形离心管中,用1 mL N2B27培养基洗涤细胞原培养孔,并将洗涤液一并转移至盛有细胞悬液的同一离心管中。
- 离心细胞5分钟,453 x g g 在超速离心机中。
- 小心吸除上清液。
- 用适量 N2B27 培养基(例如 1 mL)重悬细胞,并进行细胞计数(参见 表2 有关神经管类器官(NTOs)分化实验推荐的细胞数量)。
- 胚胎干细胞向神经管类器官(NTOs)的分化
- 分装细胞培养基质
- 将细胞培养基质溶液瓶置于冰上,在 4 ℃ 过夜解冻 °C(切勿在室温下或用手解冻)。切勿将细胞培养基质置于4℃过夜。 °C 的保存时间不宜过长;应尽快分装并冷冻,以保持其活性。
- 在生物安全柜中,将1.5–2 mL微量离心管置于冰上预冷,同时将细胞培养基质瓶放在新鲜冰上。
- 小心混合解冻的细胞培养基质,避免产生气泡,因为气泡可能导致凝胶化后细胞从孔板或培养皿中脱落。
- 按所需体积分装细胞培养基质(推荐 0.5–1 mL),于 -20 ℃ 冻存 °C 以备后续使用。分装时避免更换枪头,因为室温枪头可能导致细胞培养基质在枪头内凝固,造成显著损失。相反,应将移液器枪头预冷至 4 °使用前将它们存放在冰箱中。
- 在细胞培养基质中接种单细胞
- 量化所需的细胞数量(100 个细胞/µL细胞培养基质,参见 表 2).
- 将适当数量的细胞(细胞悬液)转移至洁净的15 mL圆锥形离心管中,并用N2B27补足至1 mL。
- 离心细胞,453 × g,5 分钟 g 在离心机中。
- 吸除上清液,将锥形离心管置于冰上。
- 在冰上用适量解冻并呈液态的细胞培养基质重悬细胞沉淀,注意避免产生气泡。
- 将适量的细胞外基质-细胞悬液均匀铺展成薄层,置于适用于成像的玻璃底或塑料底培养皿中(参见 表2, 图3A- C),切勿触碰多孔板的孔壁。由于表面张力较高,若移液时接触孔壁,细胞培养基质液滴可能从孔中央移向孔壁,导致细胞/NTOs分布不均。
注意:若使用多孔板,应先用P20(96孔板)或P200移液器吸头在孔中画一个细胞培养基质的圆圈,再用细胞培养基质-细胞悬液“填充”该圆圈图3B). - 将多孔板/培养皿放入37℃培养箱中 °C,使细胞培养基质凝固。每孔预计需要1分钟 µL细胞培养基质用于较小用量,最多40分钟内不超过15分钟 µL 或更多。
- 孵育时间结束后,取出培养板并加入适量培养基(参见 表2)。在将ESCs接种至细胞培养基质以进行NTO分化实验或更换培养基时,细胞培养基质中的ESCs不得干燥。凝胶化完成后,应尽快加入培养基。通常在37 °C下1分钟内即可完成凝胶化。 °C 每 1 µL细胞培养基质,40-100个样本最长不超过15分钟 µL细胞培养基质在铺成薄层时的状态。
注意:为避免胚胎干细胞在细胞培养基质中干燥,使用多通道移液器操作时最多处理96孔板中的8个孔,或任何其他多孔板中的一个35 mm玻璃底培养皿/孔。应尽量缩短细胞在培养箱外的暴露时间。 - 在相差显微镜下检查细胞培养基质中的接种密度和细胞分布图 3C,D建议的最佳接种密度为(表 2 以及 图3然而,对于某些应用(如早期分析),接种密度最高可增加10倍,可能更具优势。
注意:在接种分化实验前,为避免不同孔/培养皿间的细胞数量差异,需用P300或P1000移液器枪头轻轻吹打重悬细胞培养基质-细胞悬液使其充分混匀。但不建议在接种每一个单独孔时重复此操作,以防止细胞培养基质损失,因其可能凝固并黏附于移液器枪头。
- 分装细胞培养基质
表1:培养基成分(N2B27基础培养基、2iLIF、N2B27diff)。 请点击此处下载该表格。
表2:每皿细胞数量、细胞培养基质用量、培养基体积及胶化时间信息。 请点击此处下载该表格。
2. 使用RA处理NTOs以增强神经分化并诱导后部化和腹侧化
- 分装视黄酸(RA)
- 将全反式RA粉末置于室温下(储存于-20℃) °C)。
- 将粉末溶于适量体积的DMSO中,使其终浓度为100 mM。
- 分装1 µ将100 mM RA各1 L分装至1.5 mL螺口小瓶中。
- 通入氩气直至试管充满。
注意:由于氩气比氧气重,它会沉降到管底,覆盖并保护视黄酸(RA)免受空气接触。当试管充满时,若氩气泄漏,可在手上感觉到。 - 将小瓶 tightly 密封。RA 对光和空气极为敏感。
- 将分装样品避光保存于 -80 °C,直至进一步使用。或者,重悬的RA可分装于1.5 mL微量离心管中,保存于液氮中2.
注意:重悬并稀释后的视黄酸(RA)可在避光条件下于冰箱中保存最多2天。
- NTOs经RA处理18小时(图4A)
- 取出 1 µ-80℃保存的100 mM浓度分装液的升数 °C,并在室温下避光融化(例如置于手掌中,或置于未开启照明的生物安全柜内的试管架上)。
注意:如果RA分装液保存在液氮中2立即打开微量离心管管盖以避免管体爆炸,然后再次盖紧,并进行步骤 2.2.2。 - 解冻后,加入400 µ升预热的 N2B27diff 培养基,配制成 250 的浓度 µ使用 P1000 移液器混匀,确保充分混合以达到均一性。
注意:视黄酸(RA)也可用纯DMSO而非N2B27diff培养基进行重悬和稀释,但此操作会增加培养体系中DMSO的浓度。配制培养基(N2B27diff)时,谷氨酰胺在37 °C下暴露时间不应超过5–10分钟。 °C,并且最好在室温下。 - 从培养箱中取出培养神经管类器官(NTOs)的培养板/培养皿,放入无菌生物安全柜中。
- 在相差显微镜下观察正在生长的神经管类器官(NTOs)。NTOs的形态对于评估培养物的存活状态以及实验的有效性至关重要。图4B- D).
- 移去培养板/培养皿的盖子,将培养板轻轻侧向倾斜。使用P200移液器或抽吸装置小心吸除培养基,避免扰动细胞培养基质。神经管类器官(NTOs)暴露于无培养基状态的时间应尽可能短,以防止培养物或细胞培养混合物干燥。
- 加入适量的N2B27diff培养基,并补充250 nM RA溶液(参见 表格 2),盖上盖子,将神经管类器官(NTOs)放回培养箱中。
注意:有时,特别是当视黄酸(RA)未完全混匀时,可能会形成较难在正常N2B27diff中溶解的沉淀物。此时应弃去该份样品,并重新制备新的RA分装样品,因为这些沉淀物中的RA浓度未知且无法控制。
- 取出 1 µ-80℃保存的100 mM浓度分装液的升数 °C,并在室温下避光融化(例如置于手掌中,或置于未开启照明的生物安全柜内的试管架上)。
3. NTOs 的 RA 去除及每日培养基更换流程
- 将培养板从培养箱转移至无菌生物安全柜中。
- 取下盖子,并将培养板轻轻向一侧倾斜。
- 使用P200移液器或抽吸装置小心吸除含有视黄酸(RA)的N2B27diff培养基,注意不要触碰细胞培养基质。
- 加入预热的PBS(加入量应足以覆盖细胞培养基质液滴,或参照表2中的说明),再次倾斜培养板,小心吸除PBS以洗去残留的RA。
- 加入适量N2B27diff培养基(参照表2中的说明),沿孔/皿壁缓慢加入,避免直接冲击细胞培养基质液滴,以防损伤。
- 每天重复步骤3.1–3.3,更换培养基时,沿孔/皿壁轻柔加入新鲜预热的N2B27diff培养基,然后将神经管类器官(NTOs)放回培养箱。直接、剧烈地移液或向细胞培养基质液滴上加入冷的培养基或PBS,可能导致液滴破裂或从培养板/皿上脱落。
注意:当使用小分子或重组蛋白干扰信号通路时,必须每天更换培养基。若药物处理时间超过一天,药物溶液应每天新鲜配制,或至少每两天更换一次,以确保蛋白/药物的稳定性及有效浓度的持续存在。
4. 神经管类器官的固定
注意:神经管类器官(NTOs)的固定参照 Krammer 等人26所述方法进行。根据后续所用抗体的不同,可能需要使用不同来源的多聚甲醛(PFA)(市售、自配等)。
- 将PFA分装液在4 °C下过夜解冻。
- 使用前将PFA恢复至室温。
- 若使用更高浓度的PFA储备液,需在通风橱中用N2B27diff培养基或PBS将其稀释至4%。
- 从培养箱中取出NTOs,并转移至通风橱中。
- 打开盖子,按1:1比例直接向NTOs中加入4% PFA,使终浓度为2%(例如,在96孔板中含100 µL N2B27diff的孔中加入100 µL 4% PFA)。
- 盖上盖子,在室温下孵育30分钟。请设置计时器,因固定时间过长可能影响某些抗体处理的效果。
注意:PFA具有毒性,不可吸入。请在通风橱内谨慎操作。某些抗体要求使用特定浓度的PFA或更短/优化的固定时间。 - 30分钟后,打开盖子并将培养板轻轻倾斜一侧,随后进行步骤3.3–3.4。
- 小心加入预热的PBS(加入足够体积以覆盖细胞培养基质液滴,或参照Table 2中的建议),在室温下孵育5分钟。重复此步骤3次,以彻底去除残留的PFA。
- 最后一次洗涤后,加入适量PBS(见Table 2),用封口膜密封培养板,并于4 °C保存,待后续使用。
5. 神经管类器官的抗体染色
- 抗体染色是评估神经管类器官(NTOs)身份正确性以及实验/检测成功与否的重要工具。抗体染色可参照Meinhardt等人的方法进行。24 和 Krammer 等人26.
注意:如果神经管类器官(NTOs)形态欠佳(图4E-)或未显示正确的时空标志物表达(图5 至 图7),应丢弃该材料,因其未达到质量标准。 - 将封闭/通透溶液(1x PBS 含 1% BSA 和 0.5% Triton-X)置于 4℃ 保存 °C,并在使用前适应至室温。
- 为实现完整的三维重建与分析,抗体(1st 和 2nd) 在 4 °在4°C下孵育至少1晚,但最好为2-3晚,以确保抗体充分渗透。
注:Alexa Fluor anti-561 2nd 抗体可能在分化实验的前3天内在细胞培养基质中产生较强的背景信号。
6. 神经管类器官的透明化
- 准备进行透明化处理26
- 在开始透明化步骤之前完成抗体染色过程(确保两者均已完成)st 和 2nd 抗体经充分孵育后彻底洗去。
- 在透明溶液中加入没食子酸丙酯(每毫升透明溶液加2 mg没食子酸丙酯),以减少神经管类器官的光漂白。
注意:成像前1-2小时进行透明化处理,以防止透明化溶液氧化(液体由浅黄色/乳白色变为深亮黄色甚至棕色)或结晶。若发生结晶,可通过向孔中加入PBS溶解。
- 溶液 pH 值与混合注意事项
- 保持透明溶液的正确pH值,以避免细胞培养基质过快氧化或溶解。
- 避免剧烈振荡或强力混匀溶液,以防止气泡形成。
7. 神经管类器官的分析
- 显微镜样品制备
- 完成抗体染色和整体组织透明化后,使用配备10-40倍物镜的共聚焦显微镜进行成像。
- 视觉评估
- 通过视觉评估和人工定量,高效判断神经管类器官(NTOs)是否表现出适当的神经标志物表达及背腹侧结构组织。
- 三维分析软件
- 对于三维分析,可使用CellProfiler28,29、Imaris(文件转换器和查看器)或类似工具,以评估空间标志物和结构细节。
- NTO身份验证
- 通过评估神经标志物的时间表达模式以及特定背腹侧模式化标志物的时空表达,确认NTO的正确身份。此步骤对于确保分化实验成功至关重要,是开展后续研究的前提。
- 表征要点:请参考图4、图6和图7,以验证以下培养成功的关键方面:
- 请参考图4以及Meinhardt等24中所示的ZO-1染色,验证上皮化成功及管腔形成情况。
- 成功的神经分化特征表现为OCT4表达下调,SOX1表达上调,并随后出现β3TUBULIN表达(详见于24)。请参考图6和图7,验证神经分化的成功。
- 背腹侧模式化的确认依据为:腹侧存在FOXA2+/SHH+的底板结构,而在相对的背侧极表达PAX3+(腹侧模式化细节见26)。请参考图6和图7,验证背腹侧模式化的成功。
访问受限。请登录或开始试用以查看此内容。
结果
本研究中所有图示的代表性示例均使用R1小鼠胚胎干细胞(ESCs)。其他类型的小鼠ESCs在用于NTOs培养时,可能在上皮化时间、神经分化或模式形成效率方面表现出轻微差异,但结果应与本文所示数据无显著差异。
只有高质量的 ESC(图 2A)以适当的细胞密度接种(图 3)才能形成高质量的 NTO(图 4B)。当高质量的 ESC(图 2)以适当的密度(图 3)接种于细胞培养基质中时,这些单个细胞将在两天内发生克隆性扩增并发生上皮化(图 4B、C)。NTO 呈光滑、圆形至椭圆形,具有单个腔室。未能完成上皮化的 NTO 缺乏腔室形成,仍可见单个细胞(图 4E
访问受限。请登录或开始试用以查看此内容。
讨论
在此,针对原始方案进行了多项优化改进,以生成高质量的NTOs,从而促进各实验室间的标准化。关键修改包括不同的ESC培养条件、减少起始细胞数量、改进的分化培养基、优化的分化流程,以及为使用多孔板进行高通量分析而调整的接种密度。该方案中多个环节对于获得可靠且可重复的结果尤为关键。首先,必须使用具有适当蛋白浓度的正确细胞培养基质,因为不合适的浓度会负面影响NTO的模式形成效率(参见 表3。其次,细胞必须以单细胞形式按正确密度接种;若接种细胞团块,则可能导致 "葡萄状" 类器官形成及具有多个腔室的非上皮化 NTOs32第三,接种前必须完全去除ESC维持培养基中的2iLIF,因为任何残留都可能影响NTO上皮化(参见 表3第四,第2天使用250 nM视黄酸(RA)处理18小时对正确的模式形成至关重要,这与参考文献24中的发现一致,因为较低浓度或较短的处理时间会降低模式形成的效率。第五,固定应使用2% PFA进行,因为较高浓度可能溶解细胞培养基质。第六,建议进行长时间染色,即抗体孵育过夜,以确保充分渗透,便于后续三维分析...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
我们感谢Tanaka实验室现任及前任成员在本实验方案开发过程中提供的支持与讨论。特别感谢A. Pelzl对稿件的审阅、提出建议以及协助绘制示意图;感谢E. Chatzidaki对稿件的审阅、编辑、示意图协助,并与Juergen A. Knoblich共同申请获得PUD 25资助。本出版物由奥地利科学基金(FWF)资助:"独立出版项目编号PUD 25"。此外,本项目还获得了欧洲研究理事会(ERC)在欧盟“地平线2020”研究与创新计划(资助协议ERC AdG 742046)以及奥地利科学基金(FWF)[10.55776/F7803-B](干细胞调控)的资助。为实现开放获取,作者已对本投稿所产生的任何作者接受稿件(AAM)版本应用了CC BY公共版权许可。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 35 mm 培养皿 | 1.5 号盖玻片 | 14 mm 玻璃直径 | 未包被 | MatTek Corporation | Cat# P35G-1.5-14-C | |
| Accutase | Invitrogen | Cat# 00-4555-56 | |
| 牛血清白蛋白(BSA)V 组分(pH 7.0) | Panreac AppliChem | Cat# A1391 | |
| 全反式维甲酸 | Merck | Cat# R2625 | |
| B-27 添加剂(50X),无血清 | Gibco | Cat# 17504044 | |
| 基底膜基质(Matrigel) | Corning | Cat# BDL354234 | 蛋白浓度 10 mg/ml |
| CellCarrier-96 超微孔板 | PerkinElmer | Cat# 6055302 | |
| CellProfiler 4 | Stirling et al. 2021 | https://cellprofiler.org | |
| CHIR 99021 | Tocris | Cat# 4423 | |
| CUBIC-R+(N) | Matsumoto et al, 2019 | N/A | |
| 二甲基亚砜 | Sigma Aldrich | Cat# D2650 | |
| DMEM/F-12,无谷氨酰胺 | Gibco | Cat# 21331020 | |
| Dulbecco’s 磷酸盐缓冲液(DPBS, 1X) | Gibco | Cat# 14190144 | |
| Eppendorf 离心机 5810 R | Eppendorf | Cat# 5811000015 | |
| Eppendorf 微量离心管 3810X | Merck | Cat# EP0030125150 | |
| Falcon 锥形离心管 | Corning | Cat# 352095 | |
| 明胶 | Merck | Cat# G2500 | |
| L-谷氨酰胺(200 mM) | Gibco | Cat# A2916801 | |
| HeracellVIOS 160i CO2 培养箱,165 L | ThermoFisher Scientific | Cat# 51033557 | |
| Imaris | Oxford Instruments | https://imaris.oxinst.com | |
| 倒置 LED 相差显微镜(CKX53) | Olympus | ||
| 2-巯基乙醇(50 mM) | Gibco | Cat# 31350010 | |
| 单克隆小鼠抗 OCT-3/4 | Santa Cruz Biotechnology | Cat# sc-5279; RRID:AB_628051 | 使用比例 1:200 |
| 单克隆小鼠抗 PAX3 | DSHB | Cat# PAX3-C; RRID:AB_528426 | 使用比例 1:100 |
| 单克隆兔抗 SHH | Cell Signalling Technologies | Cat# 2207; RRID:AB_2188191 | 使用比例 1:300 |
| 单克隆兔抗-β3-微管蛋白 | Cell Signalling Technologies | Cat# 5568; RRID:AB_10694505 | 使用比例 1:500 |
| 单克隆小鼠抗 ZO-1 | Invitrogen | Cat# 33-9100; RRID:AB_2533147 | 使用比例 1:200 |
| 小鼠白血病抑制因子(LIF) | Qkine | Cat# Qk018-1000 | |
| N-2 添加剂(100X) | Gibco | Cat# 17502048 | |
| Neurobasal 培养基 | Gibco | Cat# 21103049 | |
| 多聚甲醛,试剂级,结晶状 | Merck | Cat# P6148 | |
| PD 0325901 | Tocris | Cat# 4192 | |
| 青霉素-链霉素溶液 | Gibco | Cat# 15140130 | |
| 相差显微镜 | |||
| 多克隆山羊抗 FOXA2 | R&D | Cat# AF2400; RRID:AB_2294104 | 使用比例 1:400 |
| 多克隆山羊抗 SOX1 | R&D Systems | Cat# AF3369; RRID:AB_2239879 | 使用比例 1:200 |
| 与图6相关的RNA-Seq数据 | Ishihara et al., 2022 | GEO: GSE214368 | |
| SafeFAST Premium 微生物安全柜 | Dasit group FASTER | Cat# F00025200000 | |
| 丙酮酸钠(100 mM) | Gibco | Cat# 11360070 | |
| 转盘共聚焦倒置显微镜(IX3) | Olympus | ||
| Triton X-100 | Sigma Aldrich | Cat# 9036-19-5 |
参考文献
- Hiiragi, T., Solter, D. First cleavage plane of the mouse egg is not predetermined but defined by the topology of the two apposing pronuclei. Nature. 430 (6997), 360-364 (2004).
- Louvet-Vallée, S., Vinot, S., Maro, B. Mitotic spindles and cleavage planes are oriented randomly in the two-cell mouse embryo. Curr Biol. 15 (5), 464-469 (2005).
- Sagner, A., Briscoe, J. Morphogen interpretation: concentration, time, competence, and signaling dynamics. Wiley Interdiscip Rev Dev Biol. 6 (4), e271(2017).
- Anlaş, A. A., Nelson, C. M. Tissue mechanics regulates form, function, and dysfunction. Curr Opin Cell Biol. 54, 98-105 (2018).
- Haupt, A., Minc, N. How cells sense their own shape: mechanisms to probe cell geometry and their implications in cellular organization and function. J Cell Sci. 131 (6), jcs214015(2018).
- Lajtha, L. G. Stem cell concepts. Differentiation. 14 (1-3), 23-33 (1979).
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292 (5819), 154-156 (1981).
- Thomson, J. A., et al. Embryonic stem cell lines derived from human blastocysts. Science. 282 (5391), 1145-1147 (1998).
- Kretzschmar, K., Clevers, H. Organoids: modeling development and the stem cell niche in a dish. Dev Cell. 38 (6), 590-600 (2016).
- Zhao, Z., et al. Organoids. Nat Rev Methods Primers. 2 (1), 94(2022).
- Jensen, C., Teng, Y. Is it time to start transitioning from 2D to 3D cell culture. Front Mol Biosci. 7, 33(2020).
- Clevers, H. Modeling development and disease with organoids. Cell. 165 (7), 1586-1597 (2016).
- Park, G., Rim, Y. A., Sohn, Y., Nam, Y., Ju, J. H. Replacing animal testing with stem cell-organoids: advantages and limitations. Stem Cell Rev Rep. 20 (6), 1375-1386 (2024).
- Xu, Z., et al. Merits and challenges of iPSC-derived organoids for clinical applications. Front Cell Dev Biol. 11, 1188905(2023).
- Phipson, B., et al. Evaluation of variability in human kidney organoids. Nat Methods. 16 (1), 79-87 (2019).
- Lancaster, M. A., et al. Cerebral organoids model human brain development and microcephaly. Nature. 501 (7467), 373-379 (2013).
- Lancaster, M. A., Knoblich, J. A. Organogenesis in a dish: modeling development and disease using organoid technologies. Science. 345 (6194), 1247125(2014).
- Lancaster, M. A., et al. Guided self-organization and cortical plate formation in human brain organoids. Nat Biotechnol. 35 (7), 659-666 (2017).
- Eichmüller, O. L., et al. Amplification of human interneuron progenitors promotes brain tumors and neurological defects. Science. 375 (6579), eabf5546(2022).
- Reumann, D., et al. In vitro modeling of the human dopaminergic system using spatially arranged ventral midbrain-striatum-cortex assembloids. Nat Methods. 20 (12), 2034-2047 (2023).
- Esk, C., et al. A human tissue screen identifies a regulator of ER secretion as a brain-size determinant. Science. 370 (6519), 935-941 (2020).
- Krenn, V., et al. Organoid modeling of Zika and herpes simplex virus 1 infections reveals virus-specific responses leading to microcephaly. Cell Stem Cell. 28 (8), 1362-1379.e7 (2021).
- Li, C., et al. Single-cell brain organoid screening identifies developmental defects in autism. Nature. 621 (7978), 373-380 (2023).
- Meinhardt, A., et al. 3D reconstitution of the patterned neural tube from embryonic stem cells. Stem Cell Rep. 3 (6), 987-999 (2014).
- Wu, Y., Peng, S., Finnell, R. H., Zheng, Y. Organoids as a new model system to study neural tube defects. FASEB J. 35 (4), e21545(2021).
- Krammer, T., et al. Mouse neural tube organoids self-organize floorplate through BMP-mediated cluster competition. Dev Cell. 59 (15), 1940-1953.e10 (2024).
- Ishihara, K., Ranga, A., Lutolf, M. P., Tanaka, E. M., Meinhardt, A. Reconstitution of a patterned neural tube from single mouse embryonic stem cells. Organ Regen. 1597, 43-55 (2017).
- Mulas, C., et al. Defined conditions for propagation and manipulation of mouse embryonic stem cells. Development. 146 (6), dev173146(2019).
- Ying, Q. L., et al. The ground state of embryonic stem cell self-renewal. Nature. 453 (7194), 519-523 (2008).
- Carpenter, A. E., et al. CellProfiler: image analysis software for identifying and quantifying cell phenotypes. Genome Biol. 7 (10), R100(2006).
- Stirling, D. R., et al. CellProfiler 4: improvements in speed, utility and usability. BMC Bioinformatics. 22 (1), 433(2021).
- Ishihara, K., et al. Topological morphogenesis of neuroepithelial organoids. Nat Phys. 19, 177-183 (2023).
- Nagy, A., Rossant, J., Nagy, R., Abramow-Newerly, W., Roder, J. C. Derivation of completely cell culture-derived mice from early-passage embryonic stem cells. Proc Natl Acad Sci U S A. 90 (18), 8424-8428 (1993).
- Ying, Q. L., Smith, A. G. Defined conditions for neural commitment and differentiation. Methods Enzymol. 365, 327-341 (2003).
- Ying, Q. L., Stavridis, M., Griffiths, D., Li, M., Smith, A. Conversion of embryonic stem cells into neuroectodermal precursors in adherent monoculture. Nat Biotechnol. 21 (2), 183-186 (2003).
- Robanus-Maandag, E., et al. p107 is a suppressor of retinoblastoma development in pRb-deficient mice. Genes Dev. 12 (11), 1599-1609 (1998).
- Smith, A. G., Hooper, M. L. Buffalo rat liver cells produce a diffusible activity which inhibits the differentiation of murine embryonal carcinoma and embryonic stem cells. Dev Biol. 121 (1), 1-9 (1987).
- Kuehn, M. R., Bradley, A., Robertson, E. J., Evans, M. J. A potential animal model for Lesch-Nyhan syndrome through introduction of HPRT mutations into mice. Nature. 326 (6110), 295-298 (1987).
- Doetschman, T., et al. Targeted correction of a mutant HPRT gene in mouse embryonic stem cells. Nature. 330 (6148), 576-578 (1987).
- Hooper, M., Hardy, K., Handyside, A., Hunter, S., Monk, M. HPRT-deficient (Lesch-Nyhan) mouse embryos derived from germline colonization by cultured cells. Nature. 326 (6110), 292-295 (1987).
- Ranga, A., et al. Neural tube morphogenesis in synthetic 3D microenvironments. Proc Natl Acad Sci U S A. 113 (44), (2016).
访问受限。请登录或开始试用以查看此内容。