本文报道的 TCID50 检测利用无标记实时阻抗测量技术及系统的病毒学模块,以客观、实时地监测病毒诱导的细胞病变效应(CPE)。该简化检测方法显著减少了人工操作时间,同时支持高通量、定量的动力学 CPE 测量,并实现 TCID50 的自动化实时计算。
本文内容
摘要
摘要
测量病毒滴度(即样品中病毒的浓度)是病毒学研究中的一项基本实验操作。尽管传统方法(如噬斑实验和半数组织培养感染剂量法,TCID50)至关重要,但这些方法往往耗时较长,需要使用染色或标记试剂,且在细胞病变效应(CPE)较轻微或难以通过成像进行量化时,常依赖主观判断。例如,TCID50实验可能使用MTT或MTS等细胞活力染料,而噬斑实验则依赖成像和染色来观察病毒噬斑,这些步骤均可能引入实验变异性。此外,这些传统方法仅能提供病毒感染性的静态快照,难以捕捉病毒与易感细胞之间动态的相互作用过程。为克服现有病毒滴度检测方法的局限性,本研究开发了一种基于阻抗技术的简化TCID50实验方法,可客观、无创且实时地检测CPE,无需使用任何标记物。在本研究中,采用两种病毒易感细胞模型验证了基于阻抗的TCID50检测方法:即在HEK293A细胞中检测表达绿色荧光蛋白的腺病毒(Adv-GFP),以及在MDCK细胞中检测甲型流感病毒(IAV)。该方法操作流程简便,包括细胞接种、病毒感染、实时监测以及软件自动分析TCID50值。在感染过程中,系统软件在所有记录时间点均自动采用Reed-Muench公式计算IAV的TCID50值 通过 阻抗读数与传统的基于结晶紫染色的TCID50实验所得结果相当。这些结果表明,结合系统软件中的病毒学模块,通过阻抗测量可精确且高效地实现病毒定量。该新方法简化了传统技术,同时更深入地揭示了病毒动态,从而支持更深入的病毒学研究,并拓展了潜在的临床应用前景。
引言
随着病毒学研究的迅速发展,准确量化病毒的感染性对于理解病毒机制、开发抗病毒疗法以及评估疫苗效力仍然至关重要。其中一项最重要的实验步骤是测定病毒滴度,即样品中病毒颗粒的浓度。TCID50 法通过量化在50%接种细胞中引起细胞病变效应(CPE)所需的感染性病毒颗粒数量,是测定功能性病毒滴度最常用的方法之一。这种广泛应用的终点测定法特别适用于不能形成蚀斑的病毒,可作为蚀斑法的替代方法1。
通常,TCID50 检测需要 2 至 14 天,具体时间取决于病毒种类和允许性细胞。细胞病变效应(CPE)包括细胞增殖、形态和存活率的变化,可通过以下方法评估:(1)加入试剂(如 MTT(3-(4,5-二甲基噻唑-2-基)-2,5-二苯基四氮唑溴盐)或 MTS(3-(4,5-二甲基噻唑-2-基)-5-(3-羧甲氧基苯基)-2-(4-磺苯基)-2H-四氮唑))后使用酶标仪进行比色测定2;或(2)利用光学成像平台对形态学或培养相关变化进行肉眼观察——例如,通过测量细胞融合度百分比来评估 CPE3;或(3)在使用甲醛或多聚甲醛(PFA)固定病毒感染孔后,通过结晶紫染色肉眼观察 CPE。根据各病毒稀释度下出现 CPE 的重复孔数量所计算出的病毒感染阳性率,是 TCID50 计算的基础。通过已建立的公式(如 Reed-Muench 法、Spearman-Karber 法或改进的 Karber 法)4,可统计计算出 50% 培养物出现 CPE 的稀释度,结果以每毫升半数组织培养感染剂量(TCID50/mL)表示。
传统的TCID50和蚀斑实验被广泛认为是功能性病毒定量的金标准,可提供极为宝贵的见解。然而,这些实验通常繁琐耗时,且需要人工染色以观察细胞病变效应(CPE),导致通量低、人为误差风险增加以及结果具有主观性。对于高传染性或致死性病毒而言,尽量减少接触病毒的时间,并减少染色等额外步骤所产生的含病毒废物,是提升生物安全性的关键考虑因素。除基于无标记成像的TCID50实验外,大多数TCID50和蚀斑实验均为终点实验,可能导致滴度测定时机不够理想,并限制对病毒与宿主细胞之间动态相互作用的观察。为克服这些局限性,已开发并建立了一种流程简化、无需标记且可实时检测的TCID50实验方法。该方法在概念上与传统的TCID50实验相似,但利用细胞阻抗读数,通过RTCA MP系统进行捕获和分析,从而对感染过程进行客观、连续的实时监测。
已有研究证明并验证了基于阻抗的生物传感技术能够以无标记、非侵入的方式,对细胞数量、形态以及细胞与基质间黏附强度提供定性和定量的综合检测结果5,6。先前的研究表明,病毒诱导的细胞病变效应(CPE)可通过实时细胞分析(RTCA)阻抗测量技术实现准确的实时定量7,8,9。该系统并不报告原始阻抗值,而是采用一个无量纲参数——细胞指数(Cell Index, CI)——来反映细胞事件引起的阻抗变化。例如,当细胞贴附、铺展并在孔底生长时,CI值上升;相反,当细胞死亡、收缩或脱落(如在病毒感染过程中)时,CI值下降。
鉴于已有研究报道利用阻抗测量细胞病变效应(CPE)具有良好的应用前景,本研究旨在证明基于阻抗的TCID50检测法是一种可靠且准确的常规病毒定量替代方法。该系统软件中的病毒学模块可在整个实时CPE测量过程中自动计算TCID50,从而简化并缩短检测流程,同时为病毒复制动力学及其与易感细胞相互作用提供有价值的见解。
方案
所用试剂和设备列于材料表中。
1. 基于阻抗的 TCID50 检测
注意:如图1所示,基于阻抗的TCID50实验包含四个步骤,包括在生物传感器板上接种易感细胞、病毒稀释液的制备与接种、在系统上检测细胞病变效应(CPE)、以及最终利用系统软件中的病毒学模块进行数据分析和TCID50计算。
- 检测准备:复苏并传代易感细胞
注意:此步骤需在检测前一周完成。为尽量减少实验间的差异,强烈建议使用相同传代次数的易感细胞建立细胞库用于检测。自细胞供应商处购买后,不得使用传代次数超过15代的细胞。- 解冻冻存的易感细胞
- 将细胞培养基置于37 °C水浴中预热至少30分钟。例如,HEK293A细胞培养使用含10%胎牛血清(FBS)和1%青霉素/链霉素的杜尔贝科改良伊格尔培养基(DMEM)。
- 从用于TCID50检测的细胞库中取出一管冻存细胞,置于37 °C水浴中轻轻摇动1–2分钟,直至仅剩少量冰晶;切勿将瓶盖浸入水中。用70%乙醇擦拭细胞管表面,随后放入超净工作台中。
- 轻轻将细胞转移至一个新的50 mL锥形管中,并向细胞中加入9 mL预热的培养基。
- 将细胞悬液在300 x g 室温下孵育4分钟。
- 弃去上清液,将细胞重悬于15 mL预热的培养基中,转移至新的T75培养瓶。
- 在37 °C、5% CO₂的培养箱中将细胞培养至80%–90%汇合度2.
- 允许性细胞的传代培养
- 观察细胞,直至其融合度达到80%–90%。
- 从培养瓶中移除含血清的培养基,用不含镁和钙的杜氏磷酸盐缓冲液(DPBS)轻轻冲洗细胞单层一次。
- 用移液管将0.05%胰蛋白酶/EDTA溶液2 mL均匀加入T75培养瓶中,置于37 °C培养箱内消化1–3分钟。
注意:切勿过度消化细胞,因为这可能对细胞造成损伤。 - 通过加入8 mL含血清培养基,将原始胰蛋白酶体积至少稀释五倍以终止消化。取2.5 mL细胞悬液转移至新的T75培养瓶,再加入8 mL培养基。
注意:进行 TCID50 测定实验时,应避免使用刚解冻的易感细胞,而应使用培养至 80%–90% 汇合度的细胞。为减少实验间变异,复苏后的细胞在解冻后最多维持培养两周。为确保细胞在两周培养期间具有较高的活力和增殖能力:(1)更换生长培养基 每周至少两次;(2)细胞融合度达到80%–90%时进行传代。若需维持培养超过两周,须进行验证。
- 解冻冻存的易感细胞
- 病毒滴度
注意:此步骤需在第1天完成。- 生物传感器板背景值的测定
- 使用多通道移液器,采用反向移液技术,将50 µL预热的培养基小心转移至每个孔中,以最大限度减少气泡产生并确保加样体积一致。
- 将培养板放入板架中;打开系统软件并选择 病毒学 实验开始前请先记录模块信息,并在相应位置填写所有相关备注。 实验注意事项 标签页,并输入细胞信息,包括细胞名称和数量 细胞 子标签页的 布局 选择相应孔后按 Tab 键。或者,也可在接种细胞后输入细胞信息。
注意:必须在将细胞加入到培养板孔中之前完成板背景测量。所有孔的背景读数应在 -0.063 至 0.063 之间。 - 在 安排 标签,点击 添加一个步骤 添加按钮 步骤1,用于测定平板背景值。然后,点击 开始 按钮。
- 将培养板从仪器上取下,放回生物安全柜中进行细胞接种。
- 允许细胞接种至96孔生物传感器板
- 用胰蛋白酶消化T75培养瓶中的许可细胞。
- 计数细胞并将细胞悬液调整至所需浓度。本研究中,HEK293A 细胞浓度为 60,000 个细胞/mL。
- 向每孔中加入100 µL细胞悬液。
注意:合适的细胞密度至关重要。接种密度过高或过低均可能导致实验假象。因此,在进行TCID50实验前,需优化细胞接种密度。 - 加入细胞后,将培养板置于生物安全柜中室温静置30分钟,使细胞均匀分布在孔底。
注意:若未执行此步骤,可能导致孔间出现较大差异。 - 将培养板放入37 °C、含5% CO₂的培养箱内的板位中2.
- 导航至 安排 软件的标签页并添加 步骤 2 使用默认记录设置:100次扫描,间隔15分钟。这将每15分钟启动一次阻抗/细胞指数监测,可在病毒接种前实时评估细胞贴壁和增殖情况,作为细胞质量控制(QC)步骤。
注意:第2天——为了最大限度地提高实验间的可重复性和一致性,在进行下一步操作前,必须评估细胞在系统中的表现。由于阻抗指数(CI)反映细胞的贴壁和生长状态,接种后20–28小时内的CI值可作为关键的质量控制参数。CI的数值和动力学特征具有细胞类型特异性。本研究中,以每孔6,000个细胞接种并培养20–28小时的HEK293A细胞,其CI值应超过2。若接种后20–28小时内CI未达到2,则判定HEK293A细胞培养未通过质量控制(QC),后续的TCID50实验将不予进行。该标准可确保实验结果具有高度可重复性。
- 病毒系列稀释液的制备
- 计算制备稀释液所需的培养基(DMEM + 2% FBS + 1% 青霉素/链霉素)总体积,并在37 °C水浴中预热30分钟。该培养基将用于后续实验。
- 将分装的病毒储备液置于37 °C水浴中快速解冻1-2分钟,直至所有冰晶完全融化。
- 将20 µL病毒原液转移至含有180 µL预热培养基的1.5 mL微量离心管中,依次进行10倍系列稀释。反复吹打混匀,确保培养基与病毒充分混合。
注意:吸取病毒溶液时,移液器吸头不可插入过深,以免在吸头外壁携带过多病毒颗粒残留物,导致稀释不准确。 - 为防止因加入冷病毒样本导致阻抗读数波动,将病毒稀释液置于37 °C、5% CO₂的培养箱中孵育,使其温度平衡。2 接种前孵育20分钟。
- 输入病毒处理信息 布局 标签
- 在培养皿上 布局 软件的标签页;选择用于病毒滴度处理的孔;点击子标签页 治疗,输入初始 稀释,例如,0.001(10-3)在本实验中;输入 10 作为 "稀释倍数";选择 方向 稀释倍数,本例中从左到右。根据输入的板布局,病毒稀释倍数将自动计算,并显示在相应的孔中。
- 接下来,加入病毒 接种体积 并点击 应用 单击按钮以保存所有处理信息。此步骤对于数据分析期间准确计算 TCID50/mL 至关重要。
- 将不进行病毒处理的孔指定为阴性对照,选择相应的孔后勾选 阴性对照 在……下方 孔类型 在 治疗 表。
注意:必须指定阴性对照孔并将其添加到布局页面,否则将无法计算TCID50。
- 病毒接种
- 准备就绪后,按下 暂停 单击软件中的按钮以停止数据采集。将培养板从工作站中取出,放入超净台中。
- 使用多通道移液器小心地从培养板的孔中移除培养基。
- 使用多通道移液器,轻轻将 50 µL 病毒稀释液加入细胞单层顶部,避免破坏细胞培养层。
- 将培养皿放回仪器工作站并添加 步骤 3 使用默认记录设置(100次扫描,15分钟间隔)在 时间安排 继续每15分钟记录一次阻抗,持续2小时,以允许病毒与细胞结合。
- 病毒接种2小时后,暂停记录并将培养板从仪器转移至超净台。
- 使用多通道移液器将150 µL预热的培养基缓慢加入各孔中,避免破坏细胞单层;随后将培养板放回工作站。
- 简历 步骤 3 通过点击 开始 在 时间安排 阻抗信号在接种期间每15分钟持续测量一次。
- TCID50检测过程中或完成后TCID50的计算
- 在 数据分析 点击标签,选择并添加实验中使用的所有孔至图表。图表的 y 轴由从选项中选定的内容决定。 Y轴 下拉菜单
- 导航至 参数 部分。选择 TCID50 从“参数”下拉列表中选择以启动TCID50计算。
- 选择 条形图 用于特定时间点的 TCID50 计算或选择 时间依赖性 TCID50 以在接种期间生成所需时间段内的TCID50时间进程曲线。点击执行按钮后,将计算并显示TCID50/mL值。
- 生物传感器板背景值的测定
2. 结晶紫-TCID50 检测
- 在96孔微孔板中以阻抗法TCID50测定中所述的最佳接种密度接种易感细胞(步骤1-2)。
- 按照基于阻抗的TCID50测定法中的要求进行病毒系列稀释制备和接种。
- 固定与染色
- 实验结束后,轻柔地弃去每孔中的上清液,加入 100 µL 4% 甲醛以固定细胞。
- 4 °C 下孵育 1 小时,然后去除固定剂。
- 用 PBS 配制的 0.5% 结晶紫染色固定细胞,在室温下孵育 30 分钟。
- 用自来水冲洗平板,直至背景清晰。在计数前让平板完全自然晾干。
注意:结晶紫废液根据《资源保护与回收法》(RCRA)和《加州法规》(CCR 66261.24)均被视为危险废物。所有使用过的结晶紫溶液、被污染的材料(如纸巾、手套)以及冲洗废液应收集至指定的危险废物容器中,并通过所在机构的环境健康与安全部门进行处置。 & 安全(EH&S)或持有资质的危险废物处理承包商。
- 评分与TCID50计算
- 肉眼观察每个孔的细胞病变效应(CPE)。阳性孔显示部分或完全的单层细胞破坏,染色较浅;阴性孔则保持完整的单层细胞,呈深紫色染色。
- 统计每个稀释度的阳性孔和阴性孔数量。
- 使用Reed-Muench法手动计算TCID50/mL,接种体积为150 µL。
结果
利用阻抗技术对病毒介导的细胞病变效应进行无标记、实时、动态监测
为验证病毒诱导的细胞病变效应(CPE)可通过阻抗技术可靠且定量地检测,我们首先使用RTCA eSight系统记录了Adv-GFP感染后HEK293A细胞的细胞变化。该系统可同时对同一细胞群体进行阻抗测量和活细胞成像,从而提供有关细胞行为的深入信息。将HEK293A细胞以每孔6,000个细胞的密度接种于96孔生物传感器板中,培养24小时后,用104 IFU/mL的Adv-GFP进行感染。接种后连续250小时内记录阻抗值和活细胞图像(图2A)。为减少因细胞接种差异带来的变异性,并更清晰地反映处理后的相对变化,采用归一化细胞指数(NCI)来表示细胞生长、贴附和存活能力随时间发生的整体变化。NCI通过将某一时间点的细胞指数(CI)除以归一化时间点(即接种前时间点)的CI计算得到。未感染对照组的NCI动力学曲线(图2A,黑色曲线)显示,在前48小时内逐渐上升,表明细胞持续增殖;随后进入平台期,表明细胞已达到汇合状态,并完全覆盖金制生物传感器的整个表面区域。相比之下,病毒感染孔的NCI动力学曲线在接种后50小时即低于对照组,并持续下降,至100小时时降至零。
通过对同一细胞群体进行活细胞成像,直观证实了阻抗信号能够可靠地反映易感细胞在完整细胞病变效应(CPE)过程中的实际状态。如图2A所示,在易感细胞完全裂解前的前100小时,NCI与感染的HEK293A细胞中病毒GFP表达之间存在负相关关系。此外,在指定时间点记录的活细胞图像(图2B)进一步展示了病毒感染过程中易感细胞的状态。感染后前48小时内,细胞持续生长,而细胞内病毒颗粒水平仍保持较低。然而,随着病毒复制和感染的进展,细胞开始死亡,表现为细胞汇合度降低以及宿主细胞中GFP信号增强。接种约100小时后,由于具有活性的易感细胞大量减少,病毒GFP表达开始下降。该整合方法进一步验证了利用阻抗检测病毒诱导CPE的可靠性,为基于阻抗的TCID50检测建立了坚实的基础。
基于阻抗读数自动计算 TCID50
准确识别出现细胞病变效应(CPE)的阳性孔对于可靠计算 TCID50 至关重要。为了评估基于阻抗的 TCID50 检测方法是否能够在系统软件病毒学模块的支持下,精确且客观地区分阳性和阴性 CPE,实验中将 HEK293A 细胞以每孔 6,000 个细胞的密度接种,培养 24 小时后接种一系列十倍梯度稀释的 Adv-GFP 病毒,每个稀释度设置八个重复孔。Adv 诱导的 CPE 在 RTCA 系统上进行实时记录。在 图 3A 中,以正常化细胞指数(NCI)形式呈现的阻抗动力学曲线在整个实验过程中被记录并自动绘制。接种后 NCI 的下降显示出明显的剂量依赖性 CPE,表现为加入病毒量与阻抗信号下降速率之间的强相关性。在病毒稀释度为 10-3 至 10-7 的高载量组中,NCI 出现急剧且一致的下降,反映出各重复孔之间强烈且均一的 CPE。相比之下,在 10-8 病毒稀释度下,动力学曲线从实验初期即表现出较大变异性,导致 NCI 的标准差显著增大,尤其是在接种后 100 小时以上更为明显。当病毒载量进一步降低至无法引起感染的阈值以下(本实验中为 10-10 稀释度)时,NCI 变化与阴性对照组无法区分。这些数据表明,在 10-8 稀释度下:1)病毒无法在所有重复孔中以相似的动力学诱导 CPE;2)该稀释度可能代表了能够在所有重复孔中引发 CPE 与仅在部分或无重复孔中诱导 CPE 的浓度之间的分界点。这种二元结果——感染(表现为 CPE 引起的阻抗指数 CI 变化)或未感染(无 CI 变化)——构成了系统软件中利用统计方法计算 TCID50 的基础。因此,在特定病毒浓度下观察到的 NCI 显著变异是部分感染发生的關鍵指标,对于推算 TCID50 所需的外推分析可能具有重要意义。
与经典的TCID50实验类似,在内置软件能够自动识别出现细胞病变效应(CPE)的孔之前,必须预先定义CPE阳性的判定阈值。由于不同病毒和允许性细胞模型可能需要不同的阈值,该软件允许用户在病毒学模块中配置并优化这些标准。根据经验数据,软件默认的CPE阳性阈值设定为:接种病毒孔的NCI值低于阴性对照组(未接种病毒)平均NCI值三个标准差以上,即 NCI病毒处理组 < (NCI - 3 × SD)阴性对照。随后,各孔被判定为阳性(+)或阴性(-)(图3B)。在此案例中,Adv-GFP的TCID50/mL值随后通过Reed-Muench公式计算得出,该公式为软件内置的计算方法之一。除选择或定义CPE阳性判据外,TCID50的计算过程无需任何人工操作,整个流程由软件全自动完成。
病毒感染过程中 TCID50 的动态追踪
为确定 TCID50 检测的合适持续时间,在感染后 30 小时开始,每隔 30 小时提取一次 Adv-GFP 的 TCID50 值,直至 240 小时。选择 30 小时的时间间隔是因为腺病毒的复制周期约为 30 小时10。将 Adv-GFP 的 TCID50 值随时间变化进行绘图(图 4)。一个显著的观察结果是 TCID50 值逐渐增加,此趋势持续至接种后约 150 小时。此后出现平台期,表明细胞病变效应可能已达到饱和状态。随时间上升继而趋于稳定的趋势呈现出典型的病毒复制曲线。初始阶段表现为病毒活跃增殖,最终达到峰值,反映出在给定实验条件下最大的细胞病变效应。TCID50 的平台期可能代表了一种生物学上限,即病毒感染已波及大多数易感细胞,导致大量细胞死亡,从而阻止了病毒的进一步复制。TCID50 的动力学曲线表明,在腺病毒-HEK293A 模型中,接种后六至七天即可终止检测,因为早在 150 小时时已观察到稳定的 TCID50 值,为 8.9 × 10⁹ TCID50/mL。
基于阻抗法的TCID50检测定量甲型流感病毒滴度
为了验证基于阻抗法的TCID50检测是否可拓展至其他病毒-宿主模型,本研究在感染甲型流感病毒(IAV)的MDCK细胞中进行了TCID50检测。尽管感染培养基根据IAV的特性进行了微调,但核心检测流程仍与腺病毒检测所建立的方法保持一致。图5A展示了接种不同稀释度IAV(从1 × 10⁻²到5 × 10⁻⁹)后,MDCK细胞的NCI随时间的变化。与感染腺病毒的HEK293A细胞中观察到的结果类似,未感染/阴性对照孔在重复实验中表现出稳定且一致的NCI值。然而,病毒感染孔则显示出剂量依赖性的NCI变化。在较低剂量(6.4 和 1.3 × 10⁻⁷稀释度)下,标准差较大,表明在这些稀释度下,病毒浓度已接近TCID50水平。
使用与Adv-HEK293A模型中相同的标准和阈值来鉴定CPE阳性孔,具体而言,即阴性对照孔均值以下三倍标准差的阈值。基于阻抗的IAV TCID50值也在接种后的不同时间点进行测定。图5B展示了两次独立实验的平均TCID50值。除60小时的早期时间点外,感染后90至150小时的TCID50值表现出良好的稳定性和一致性,表明基于阻抗的IAV TCID50检测可在四天内完成,而无需五天。这种一致性进一步验证了基于阻抗方法的稳健性,证实了其在不同病毒病原体中的适用性和可靠性。
基于阻抗法的TCID50检测与传统TCID50方法的验证
为验证利用阻抗法测定甲型流感病毒(IAV)浓度所得的TCID50值,本研究平行采用了两种替代方法进行TCID50检测:无标记成像法和结晶紫染色法。简言之,将MDCK细胞制备后接种于96孔微孔板中。次日,用一系列稀释度的IAV接种细胞,持续培养5天。在基于成像的TCID50检测中,每4小时采集一次活细胞成像数据。验证研究共评估了十个IAV样本的浓度。通过系统配套软件,将病毒感染孔的细胞汇合度与阴性对照(未感染)孔进行比较。然而,如图6A所示,MDCK细胞的成像分析尤为困难。由于MDCK细胞形态扁平、边界不清,难以准确区分细胞区域与空白区域,导致基于成像分析可靠识别出现细胞病变效应(CPE)的孔位存在挑战。在此类情况下,采用更先进复杂的成像分析软件可能提高TCID50计算的准确性11。本实验中,当前系统软件无法成功实现无标记成像法对TCID50的有效评估。对于结晶紫染色法TCID50检测,则按照方案部分所述,在接种后第5天对细胞进行固定和染色。图6B显示,基于阻抗法与基于结晶紫染色法测得的TCID50值之间具有高度线性相关性,回归方程为 y = 0.9582x,R² = 0.9979。该对比分析凸显了阻抗法在病毒滴度测定中的可靠性,及其适用于TCID50检测的可行性。
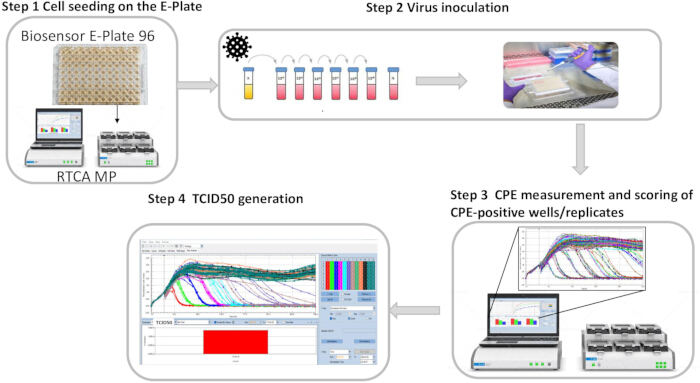
图1:基于阻抗的TCID50检测工作流程。步骤1:在生物传感器板上接种易感细胞。以最佳接种密度将易感细胞接种至板上。随后在系统中监测细胞生长情况,作为细胞质量控制(QC)程序的一部分。步骤2:病毒制备与接种。使用用户自定义的稀释倍数对病毒储备液进行系列稀释。将板从系统中取出,在超净台内将病毒加入板的各孔中。步骤3:利用病毒学模块软件测量细胞病变效应(CPE)并判定CPE阳性孔。将板放回系统,继续实时记录病毒诱导的CPE。软件根据用户设定的CPE检测阈值自动识别CPE阳性孔。步骤4:TCID50计算。结合随病毒感染时间进程对CPE阳性孔的实时判定,病毒学模块软件可在检测过程中的任意时间点计算TCID50值。请点击此处查看该图的放大版本。

图 2:采用基于阻抗和基于成像的方法评估腺病毒感染引起的细胞病变效应(CPE)(A)感染Adv-GFP后,HEK293A细胞随时间变化的阻抗(左侧y轴)和绿色荧光(右侧y轴)动态分析。归一化细胞指数(NCI)在腺病毒接种细胞(NCI Adv-infected,红线)、阴性对照细胞(NCI NC,黑线)以及总整合绿色荧光强度(GFP Adv-infected,绿线)中的变化以时间函数形式展示。总整合GFP荧光强度反映易感细胞中GFP的表达水平,可作为病毒感染的指标。归一化细胞指数上的数字(1–6)对应感染过程中的特定时间点。数据以均值±标准差表示(N = 8)。(B)HEK293A细胞在感染腺病毒-GFP前后的连续图像。(1)基础状态图像(0 h),随后为感染后48 h(2)、72 h(3)、96 h(4)、120 h(5)和200 h(6)的快照,展示了细胞生长、存活率及腺病毒-GFP荧光随时间的变化情况。比例尺 = 160 µm。 请点击此处查看该图的放大版本。
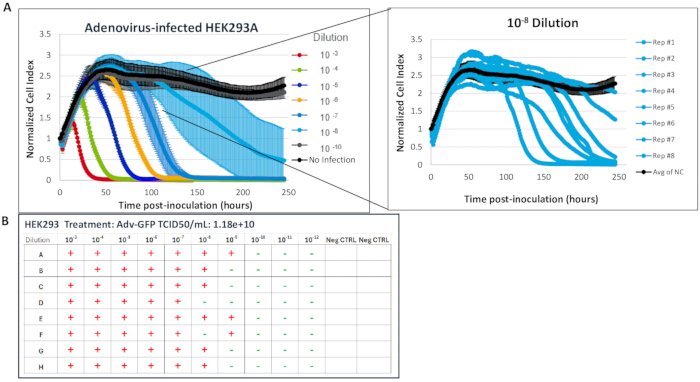
图3:通过阻抗法测定腺病毒-GFP在HEK293A细胞中的剂量依赖性细胞病变效应(CPE)。 (A)将HEK293A细胞以每孔6,000个细胞的密度接种于生物传感器板中,24小时后用一系列10倍梯度稀释的腺病毒-GFP进行感染。数据以均值±标准差表示(N = 8)。插图:以10-8稀释度感染腺病毒-GFP的孔的标准化细胞指数。为清晰起见,省略了10-9、10-11和10-12稀释度的数据。(B)每个病毒稀释度下的各个孔/重复孔被评分记录为CPE阳性(+)或CPE阴性(-)。板中每列接受不同稀释度的病毒处理,稀释梯度从第1列最低至第10列最高。第11列和第12列为阴性对照孔,未进行病毒处理。请点击此处查看该图的放大版本。

图4:感染腺病毒-GFP后,通过HEK293细胞中细胞病变效应(CPE)的阻抗测量所得TCID50值的时间进程。 腺病毒-GFP的TCID50/mL值是利用病毒学模块,基于五次实验在特定时间点计算得出。尽管病毒学模块提供三种TCID50计算公式,但本研究选用Reed-Muench公式进行TCID50计算。数据以均值±标准差表示(N = 5)。请点击此处查看该图的放大版本。
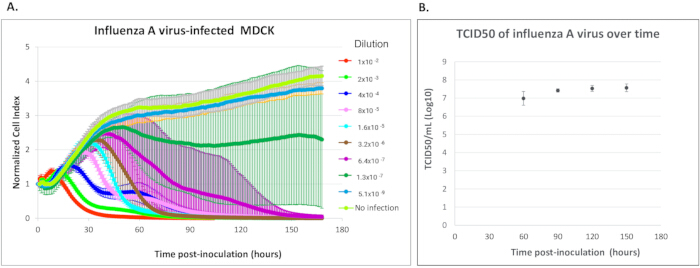
图5基于阻抗的TCID50法测定甲型流感病毒滴度 (A) 流感病毒在MDCK细胞中剂量依赖性细胞病变效应的测定 通过 阻抗。将 MDCK 细胞以每孔 8,000 个细胞接种至生物传感器板,24 小时后用五倍系列稀释的流感病毒进行感染。数据表示为均值 ± 标准差(N = 8)。为清晰起见,省略了 2.6 × 10⁻⁸ 稀释度的数据。B流感病毒感染的MDCK细胞中基于阻抗测量得到的TCID50值的时间进程。TCID50的计算采用Reed-Muench法。数据以均值±标准差表示(N = 2)。 请点击此处以查看此图的放大版本。

图6:基于阻抗法与结晶紫染色法的TCID50检测结果之间的相关性。(A)接种流感A病毒(IAV)的MDCK细胞图像。比例尺 = 160 µm。(B)使用10个IAV样本,对基于阻抗法和基于结晶紫染色法获得的TCID50/mL值进行比较。请点击此处查看该图的放大版本。

图7:系统病毒学模块软件的代表性界面。该软件简化了基于阻抗的TCID50检测流程。(1)用于记录实验设计的孔板布局;(2)在病毒感染过程中,软件自动绘制并显示细胞指数或归一化细胞指数;(3)软件在确定阳性细胞病变效应(CPE)标准及TCID50计算公式选择方面具有灵活性;(4)可在检测过程中的任意时间点确定TCID50/mL值。请点击此处查看该图的放大版本。
讨论
本研究利用腺病毒-HEK293A和甲型流感病毒-MDCK模型,证明了阻抗法在病毒滴度测定中的适用性。其他研究者也已验证了RTCA系统在多种病毒引起的细胞病变效应(CPE)检测中的稳健性和可靠性,涉及的病毒包括正痘病毒12、西尼罗病毒(WNV)和圣路易斯脑炎病毒(SLEV)13、基孔肯雅病毒14、传染性法氏囊病毒8、嵌合型黄热病-登革热病毒15、甲型肝炎病毒16、SARS-CoV-217以及登革病毒9。
通过阻抗进行实时细胞病变效应(CPE)记录,能够在某些允许病毒感染的细胞模型中发现病毒特异性的、随时间变化的细胞指数(CI)值下降现象。Fang 等人首次证明,表征黄病毒诱导CPE的动力学参数CIT50——定义为细胞阻抗下降50%所需的时间——在特定范围内与病毒感染剂量呈反比关系。他们还表明,CIT50 与中和抗体滴度的倒数成正比13。此后,赛诺菲巴斯德公司的 Charretier 等人将基于阻抗的实时细胞分析(RTCA)方法应用于嵌合型黄热病-登革热(CYD)疫苗产品及工艺开发过程中病毒感染滴度的测定15。Charretier 等人15进一步通过基于免疫染色的CCID50检测方法对基于阻抗的细胞培养感染剂量50%(CCID50)进行了验证。他们证明,在工业环境下,基于阻抗的RTCA方法比标准CCID50检测的劳动强度低约5倍,成本效益高3.5倍。在我们的研究中,针对甲型流感病毒(IAV)诱导的CPE,验证了基于阻抗的TCID50与传统的结晶紫染色TCID50检测方法的一致性。此外,研究中使用了RTCA软件中的病毒学软件模块。软件根据用户设定的CPE阳性孔判定标准自动识别阳性孔;在本研究中,该标准为与阴性对照相比CI值下降的程度。随后软件据此自动计算TCID50,从而实现准确的滴度测定,无需依赖CIT50 ,也避免了测试样本超出最佳范围的风险。设定适当的CPE阳性孔阈值至关重要,因为它直接影响检测的灵敏度和特异性。建议用户通过将细胞指数变化与已验证的传统方法结果进行比较,确定针对特定病毒的判定标准。这些基于实验经验得出的阈值可在软件的病毒学模块中进行配置和优化。
与其他基于细胞的检测方法类似,基于阻抗的TCID50检测中所使用的易感细胞状态对于检测的成功及结果质量至关重要。为确保细胞具有较高的增殖能力和存活率,建议使用新鲜且低代次的细胞。此外,将相同代次的易感细胞建立细胞库,可提高不同实验之间的可重复性。如图3A所示,当易感细胞处于最佳状态时,在整个检测过程中,未感染对照组可产生稳定且一致的阻抗信号。这为确定细胞病变效应(CPE)阳性孔的阈值提供了可靠的基线参考,从而实现精确的病毒滴度测定。此外,基于阻抗的TCID50检测还具备在病毒滴度评估前对易感细胞进行质量控制的独特能力。健康易感细胞特有的动力学细胞指数(CI)曲线可作为可靠的质量控制指标,确保仅使用存活率高且性能稳定的细胞群体进行病毒定量,从而提高检测的可重复性和准确性。
对于每一种新病毒,在实施前都应进行阻抗-TCID50检测的优化和验证。细胞培养条件等关键因素,包括基础培养基和胎牛血清(FBS)浓度,对于获得可重复的细胞阻抗数据并提高细胞病变效应(CPE)检测的灵敏度至关重要,这一点已被先前的研究强调6,16。在这方面,无标记、基于实时阻抗的技术已被证明是在检测方法开发过程中优化细胞培养条件的一种简单、高效且有价值的工具16。
阻抗-TCID50检测方法的一个局限性在于,对于不引起细胞病变效应(CPE)的病毒,该检测无法有效应用,因为该方法依赖病毒引起的CPE来产生阻抗读数的变化,而这种变化是TCID50计算的基础。在此类情况下,可能需要寻找一种可替代的容许性细胞模型,该模型能够表现出病毒诱导的CPE,或采用免疫染色方法,前提是存在针对该病毒特异性抗原的合适抗体。尽管如此,本研究证实了RTCA MP系统能够捕捉剂量依赖性的CPE,并有效区分感染与未感染的细胞群体 通过 一种客观且灵敏的阻抗读数。
引入基于时间依赖性的 TCID50 分析方法,相较于传统的终点测量法是一项重大进步。该方法简化了 TCID50 检测的优化流程,因为计算和报告病毒滴度的最佳时间点可直接从单次实时检测中轻松获得。尽管基于成像的无标记 TCID50 检测也可提供时间分辨的 TCID50 值,但其应用范围仅限于成像软件算法可识别细胞病变效应(CPE)的病毒-细胞模型,如 IAV-MDCK 模型所示(图6A)。此外,采用无标记阻抗法检测 CPE 可避免使用多种试剂以及多步骤操作流程,从而降低由人为操作失误带来的潜在风险。除了简化实验流程外,该系统软件中的病毒学模块还能进一步优化检测流程:首先通过简便的实验排程设置实现系统自动记录;随后在每次测量后实时自动判定 CPE 阳性结果;最终自动完成 TCID50 计算,从而对感染性病毒颗粒进行直接定量(图7)。这种自动化显著减少了人工操作时间,对于处理高致病性病毒尤为重要。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.05% 胰蛋白酶 0.53 mM EDTA (1x ) | Corning | 25-052-CI | |
| 12通道试剂储液槽 | VistaLab Technologies | 3054-1011 | |
| 腺病毒-GFP | Vector Biolabs | 1060 | |
| DMEM培养基 | ATCC | 30-2002 | |
| E-Plate VIEW 96 | Agilent | 300601020 | |
| 胎牛血清 | Avantor | 97068-085 | |
| Hek293A细胞 | Thermo Fisher Scientific | R70507 | |
| 青霉素-链霉素溶液 | HyClone | SV30010 | |
| 磷酸盐缓冲液 (1x) | HyClone | SH30256.01 | |
| Seaplaque琼脂糖 | Lonza | 50101 | |
| xCELLigence RTCA eSight系统 | Agilent | S2833AA | |
| xCELLigence RTCA MP系统 | Agilent | 380601040 |
参考文献
- Smither, S. J., et al. Comparison of the plaque assay and 50% tissue culture infectious dose assay as methods for measuring filovirus infectivity. J Virol Methods. 193 (2), 565-571 (2013).
- Pourianfar, H. R., Javadi, A., Grollo, L. A colorimetric-based accurate method for the determination of enterovirus 71 titer. Indian J Virol. 23 (3), 303-310 (2012).
- Hochdorfer, D., Businger, R., Hotter, D., Seifried, C., Solzin, J. Automated, label-free TCID50 assay to determine the infectious titer of virus-based therapeutics. J Virol Methods. 299, 114318(2022).
- Lei, C., Yang, J., Hu, J., Sun, X. On the Calculation of TCID50 for quantitation of virus infectivity. Virol Sin. 36 (1), 141-144 (2021).
- Giaever, I., Keese, C. R. Micromotion of mammalian cells measured electrically. Proc Natl Acad Sci U S A. 88 (17), 7896-7900 (1991).
- Atienza, J. M., et al. Dynamic and label-free cell-based assays using the real-time cell electronic sensing system. Assay Drug Dev Technol. 4 (5), 597-607 (2006).
- Cheung, C. Y., Leung, C. K., Peiris, J. S. Potential of the real-time and label-free cell sensor impedance technology to transform cell-based infectivity assays for influenza viruses. Influenza Other Respir Viruses. 5 (Suppl 1), 151-154 (2011).
- Ebersohn, K., Coetzee, P., Venter, E. H. An improved method for determining virucidal efficacy of a chemical disinfectant using an electrical impedance assay. J Virol Methods. 199, 25-28 (2014).
- Goh, V. S. L., et al. Evaluation of three alternative methods to the plaque reduction neutralizing assay for measuring neutralizing antibodies to dengue virus serotype 2. Virology J. 21 (1), (2024).
- Crisostomo, L., Soriano, A. M., Mendez, M., Graves, D., Pelka, P. Temporal dynamics of adenovirus 5 gene expression in normal human cells. PLOS One. 14 (1), e0211192(2019).
- Wang, T. E., et al. Differentiation of cytopathic effects (CPE) induced by influenza virus infection using deep convolutional neural networks (CNN). PLoS Comput Biol. 16 (5), e1007883(2020).
- Witkowski, P. T., et al. Cellular impedance measurement as a new tool for poxvirus titration, antibody neutralization testing and evaluation of antiviral substances. Biochem Biophys Res Commun. 401 (1), 37-41 (2010).
- Fang, Y., Ye, P., Wang, X., Xu, X., Reisen, W. Real-time monitoring of flavivirus induced cytopathogenesis using cell electric impedance technology. J Virol Methods. 173 (2), 251-258 (2011).
- Marlina, S., Shu, M. -H., Abubakar, S., Zandi, K. Development of a real-time cell analysing (RTCA) method as a fast and accurate screen for the selection of chikungunya virus replication inhibitors. Parasites & Vectors. 8 (1), (2015).
- Charretier, C., et al. Robust real-time cell analysis method for determining viral infectious titers during development of a viral vaccine production process. J Virol Methods. 252, 57-64 (2018).
- Lebourgeois, S., et al. Development of a real-time cell analysis (RTCA) method as a fast and accurate method for detecting infectious particles of the adapted strain of Hepatitis A virus. Front Cell Infect Microbiol. 8, (2018).
- Suryadevara, N., et al. Real-time cell analysis: A high-throughput approach for testing SARS-CoV-2 antibody neutralization and escape. STAR Protoc. 3 (2), 101387(2022).
重印与许可
