本文报道了一种通过过继转移SKG小鼠的CD4+ T细胞建立类风湿关节炎(RA)小鼠模型的实验方案,为研究RA的免疫学机制、病理进展以及新疗法的开发提供了一种快速且可靠的实验工具。
本文内容
摘要
摘要
类风湿关节炎(RA)是一种慢性、全身性的自身免疫性炎症性疾病,可能导致关节损伤、畸形、功能障碍甚至死亡。由于其病因复杂且临床表现具有异质性,目前的治疗策略在有效控制疾病进展方面仍显不足,尤其是在实现早期诊断和提供个体化治疗方面。因此,开发新的治疗方法至关重要。为实现这一目标,可靠的动物模型对于研究RA的发病机制必不可少。目前已有多种RA动物模型被使用,包括胶原诱导性关节炎模型(CIA)、K/BxN模型和SKG小鼠模型。尽管这些模型能够成功模拟RA的免疫机制和临床表现,但各自仍存在明显局限性。
在本实验方案中,我们描述了通过过继转移SKG小鼠的CD4+ T细胞建立类风湿关节炎(RA)小鼠模型的方法。与传统模型相比,该模型在C57BL/6小鼠中建模时间更短、发病率更高(达100%),具有相对较低的成本、操作简便,并能可靠地模拟T细胞介导的免疫反应,确保更优的实验可控性和可重复性。我们对该模型进行了全面评估,包括对关节症状等临床表型的观察。通过临床表型评估,我们观察到显著的关节肿胀和炎症反应。此外,利用PCR技术检测关键转录因子的表达水平,发现该模型能够有效模拟RA中T细胞介导的免疫反应及其关键病理特征。该模型可帮助研究人员更好地模拟RA的T细胞介导免疫反应和核心病理特征,为研究RA的免疫机制、病理进展以及开发新型治疗策略提供可靠且高效的实验工具。
引言
类风湿关节炎(RA)是一种慢性、全身性的自身免疫性炎症性疾病,影响全球约1%的人口,导致高发病率以及沉重的社会经济负担1,2。该疾病以持续性滑膜炎、软骨破坏和骨侵蚀为特征,最终导致关节畸形、功能障碍,严重时甚至导致早亡3,4,5。RA的发病机制涉及遗传、环境和免疫因素的相互作用,主要特征包括细胞免疫的异常活化、促炎细胞因子的过度释放以及免疫耐受的破坏6,7。在此过程中,自身反应性T细胞,尤其是CD4+ T细胞,作为免疫调节的关键驱动因素,通过多种机制直接促进RA的病理进展。
辅助性 T 细胞(Th)1 细胞产生干扰素-γ(IFN-γ),可激活巨噬细胞和滑膜成纤维细胞,导致肿瘤坏死因子(TNF)-α 和白细胞介素(IL)-6 的释放,从而引发滑膜炎。Th17 细胞分泌 IL-17,促进滑膜细胞和破骨细胞的活化,加剧软骨破坏和骨侵蚀8,12。此外,CD4+ T 细胞通过共刺激信号激活 B 细胞,放大炎症反应,诱导抗瓜氨酸化蛋白抗体(ACPA)和类风湿因子(RF)的产生10。与此同时,调节性 T 细胞(Treg)功能缺陷及其数量减少是类风湿关节炎(RA)中免疫失衡的关键原因,导致炎症失控11,12。由于病因复杂且临床表现具有异质性,RA 的早期诊断困难,目前的治疗效果仍不理想。因此,开发新型治疗策略至关重要。可靠的动物模型对于研究 RA 的发病机制、深入理解其潜在病理机制以及探索新的治疗方法具有重要意义。
传统的类风湿关节炎(RA)模型,如CIA和K/BxN小鼠模型13,14,15,有助于增进我们对RA的理解。然而,这些模型存在显著局限性。例如,C57BL/6小鼠的CIA模型成功率较低且诱导周期较长,这限制了其在某些实验条件下的应用价值。同样,尽管K/BxN模型具有研究价值,但其建系成本较高,并且在模拟人类RA复杂病理过程方面存在不足,特别是难以再现免疫细胞与细胞因子之间的相互作用。
为克服这些局限性,我们建立了一种新型的类风湿关节炎(RA)小鼠模型,通过将具有C57BL/6背景的SKG小鼠来源的CD4+ T细胞转移至免疫功能健全的C57BL/6小鼠体内,并结合甘露聚糖诱导的免疫激活。该模型能够有效模拟RA的关键特征,包括T细胞介导的免疫反应以及滑膜炎症和关节侵蚀等核心病理特征,同时在可重复性、操作简便性和成本效益方面具有优势。我们详细阐述了建立该模型的方法学,包括在C57BL/6背景下培育SKG小鼠、从SKG小鼠中分离CD4+ T细胞、进行过继性转移以及后续通过甘露聚糖诱导疾病。此外,我们还描述了用于评估关节炎严重程度的临床与组织学评价标准,以确保模型的可靠性与可重复性。该模型通过稳定地模拟T细胞介导的免疫反应及RA的基本病理特征,为研究RA的免疫机制、疾病进展以及新疗法的开发提供了一个可靠且高效的实验工具。
方案
本研究中的所有实验操作均严格遵循以下规定 "美国国立卫生研究院实验动物护理与使用指南," 包括动物饲养、实验操作和安乐死,均已获得华中科技大学同济医学院动物伦理委员会的批准。
1. 动物
- SKG 小鼠(C57BL/6 背景)的制备
- 基因编辑策略
- 设计一种特异性靶向 ZAP70 基因的引导 RNA(gRNA)(gRNA 序列:5'-CAGCCCACGAGCGAATGCCCTGG-3'),并利用 CRISPR/Cas9 系统进行基因编辑。设计含有 ZAP70(W163C) 突变的供体 DNA,以确保突变的精确插入(此处序列为:CAGGCCCCACAGGTGGAGAAGCTCATTG
CTACCACAGCCCACGAGCGAATGCCCTG
CTATCACAGCAGCCTGACTCGTGAGGAG
GCCGAGCGCAAACTCTATTCCGGCCA)。
注:gRNA 可引导 Cas9 蛋白在 ZAP70 基因的特定位点进行精确切割。供体 DNA 序列中下划线标出的碱基 表示突变碱基。该突变对应于 ZAP70 蛋白中的 W163C 突变(TGG→TGC),位于一个关键的功能结构域内。
- 设计一种特异性靶向 ZAP70 基因的引导 RNA(gRNA)(gRNA 序列:5'-CAGCCCACGAGCGAATGCCCTGG-3'),并利用 CRISPR/Cas9 系统进行基因编辑。设计含有 ZAP70(W163C) 突变的供体 DNA,以确保突变的精确插入(此处序列为:CAGGCCCCACAGGTGGAGAAGCTCATTG
- 显微注射
- 通过显微注射将 Cas9 mRNA、gRNA 和供体 DNA 导入受精的 C57BL/6 小鼠卵母细胞中。共注射 Cas9 蛋白与 gRNA,使其在 ZAP70 基因特定位点进行切割,并通过同源重组插入 ZAP70(W163C) 突变。将注射后的受精卵移植至假孕雌鼠体内,约 20 天后出生的小鼠记为 F0 代。通过 PCR 扩增与测序鉴定其基因型(见步骤 1.1.5.3)。
- F0 代小鼠的基因型鉴定
- 对 F0 代小鼠进行 PCR 与测序,确认是否获得 ZAP70(W163C) 突变(见步骤 1.1.5.3)。
注:由于胚胎早期快速分裂,F0 代小鼠为嵌合体,可能不具备稳定的遗传传递能力。需通过连续繁育建立稳定品系。
- 对 F0 代小鼠进行 PCR 与测序,确认是否获得 ZAP70(W163C) 突变(见步骤 1.1.5.3)。
- F1 代小鼠的获取与基因型鉴定
- 将 F0 代阳性小鼠与野生型 C57BL/6J 小鼠交配,获得 F1 代小鼠,并通过 PCR 与测序进行基因型鉴定,从而获得 SKG 小鼠(C57BL/6 背景;见步骤 1.1.5.4)。
- 基于 PCR 的 F0 与 F1 代基因型鉴定方法
- 使用无菌剪刀从小鼠尾部剪取约 0.5 cm 的组织片段。
- 使用动物基因组 DNA 提取试剂盒提取小鼠基因组 DNA。
- 对于 F0 代,配制如下 PCR 反应体系:ddH2O 13.2 µL、PCR 缓冲液 2 µL、2.5 mM dNTP 2 µL、上游引物(5'-GATGCCTAGGTGGGTGGGGTTCC-3')和下游引物(5'-ACTTGCCTACGCTACTGCTCTACA-3')各 0.5 µL(10 pmol/µL)、DNA 聚合酶 0.8 µL、从小鼠尾部提取的基因组 DNA(50–100 ng/µL)1 µL,总体积为 20 µL。PCR 扩增程序如下:94 °C 预变性 3 min;98 °C 变性 15 s,58 °C 退火 15 s,68 °C 延伸 1 min,共 35 个循环;68 °C 终末延伸 5 min;12 °C 保存。
- 对于 F1 代,配制如下 PCR 反应体系:ddH2O 14.9 µL、10x Taq PCR 缓冲液 2 µL、2.5 mM dNTP 1 µL、上游引物(5'-GATGCCTAGGTGGGTGGGGTTCC-3')和下游引物(5'-ACTTGCCTACGCTACTGCTCTACA-3')各 0.5 µL(10 pmol/µL)、Taq DNA 聚合酶 0.1 µL、基因组 DNA(50–100 ng/µL)1 µL,总体积为 20 µL。PCR 扩增程序如下:94 °C 预变性 5 min;94 °C 变性 30 s,58 °C 退火 30 s,72 °C 延伸 1 min,共 35 个循环;72 °C 终末延伸 5 min;12 °C 保存。
- 进行电泳分析,确认扩增产物是否为预期大小。
- 对 PCR 产物进行测序,以验证基因型及特定突变的存在。
- 基因编辑策略
- 供体与受体小鼠的选择
- 选择 6–8 周龄的 SKG 小鼠(雄性或雌性)作为供体小鼠。
- 选择 6–8 周龄的 C57BL/6 小鼠(为获得更一致的实验结果,建议选用雌性)作为受体小鼠。
- 将 6–8 周龄的 C57BL/6 和 SKG 小鼠饲养于独立通风笼具(IVC)中的 SPF 环境下,自由摄取 SPF 级饲料与无菌水,维持 12 小时光照/12 小时黑暗的光照周期。实验开始前对小鼠进行 1 周的适应性饲养。
2. 从 SKG 小鼠中分离与纯化 CD4+ T 细胞
- 在超净工作台中使用 CO2 窒息法处死 SKG 小鼠。将小鼠浸入 75% 酒精中消毒 5 分钟。在腹腔内定位脾脏,并在腹股沟区和腘窝区找到淋巴结(腹股沟和腘窝淋巴结)。使用无菌镊子和剪刀小心解剖脾脏和淋巴结,并立即转移至预冷的 PBS 中。
- 将脾脏和淋巴结分别放入不同的培养皿中。用无菌注射器的推杆将组织通过 70 µm 细胞筛滤器压碎,同时逐渐加入 10–12 mL 预冷的 PBS,形成均匀的细胞悬液。将细胞悬液通过同一 70 µm 细胞筛滤器收集至 15 mL 离心管中,在 4 °C 下以 300 × g 离心 7 分钟。弃去上清液,保留细胞沉淀。
- 进行台盼蓝染色以评估细胞活力。计数细胞,并确认细胞活力 ≥90%。
- 使用 CD4+ T 细胞分离试剂盒中提供的缓冲液,将细胞浓度调整为 1 × 10⁸ 个细胞/mL。
- 取 100 µL 细胞悬液(含 107 个细胞)转移至新离心管中。加入 10 µL 生物素标记抗体混合物,充分混匀后冰上孵育 15 分钟。
- 通过涡旋振荡器以最大速度重悬磁珠。加入 10 µL 链霉亲和素磁珠悬液,充分混匀后冰上孵育 15 分钟。
- 加入 2.5 mL CD4+ T 细胞分离试剂盒提供的缓冲液,将离心管置于磁力架中静置 5 分钟。
- 小心将液体(目标细胞)从离心管中倒入新的无菌离心管中,随后在 4 °C 下以 300 × g 离心 5 分钟。弃去上清液,保留细胞沉淀。
- 加入足量无菌 PBS 溶液,将细胞浓度调整为 2 × 10⁶ 个细胞/mL,并将细胞悬液置于冰上保存以备后续使用。
- 使用流式细胞术评估分选后细胞的纯度(补充图 S1)。细胞纯度计算公式为:(CD4+ T 细胞数量 / 总细胞数)× 100%。确认细胞纯度 ≥90%16。
3. CD4+ T 细胞的过继性转移
- 使用2%-3%异氟烷麻醉C57BL/6小鼠,达到麻醉深度以使小鼠完全失去活动能力,但仍保持正常的自主呼吸。
- 用无菌棉签轻轻清洁小鼠内眼角(眼内眦),去除分泌物和毛发,暴露静脉。
- 用手固定小鼠。用1 mL注射器吸取200 µL CD4+ T细胞悬液(每只小鼠2 × 10⁵-5 × 10⁵个细胞)。将针头以10-15°角插入眶后窦(已证实与尾静脉注射相比,该方法效率相当,且更均匀、应激更小),确保准确到位。在10-15秒内缓慢、均匀地注入细胞悬液。
- 拔出针头后,用无菌棉签轻轻按压眶后窦区域3-5秒,以防止出血。
- 将小鼠置于安静、干燥、清洁的笼子中进行监测,直至其完全恢复意识,呼吸稳定,且无异常行为(如抽搐或猝死)。确认术后状态稳定后,将小鼠转移至标准饲养笼中。
注意:由于眶后静脉窦较小,操作时需轻柔处理并控制输注速度,以避免因速度过快导致静脉破裂或细胞堵塞。 - 记录输注详细信息,并对模型组和对照组小鼠(每组四只)进行标记,以防后续实验混淆。向模型组小鼠给予CD4+ T细胞,对照组小鼠不作处理。确保所有小鼠均为受体小鼠。
4. 甘露聚糖的刺激与诱导
- 在第4天(CD4+ T细胞输注后72小时)进行甘露聚糖诱导。对所有实验组和对照组小鼠采用相同的诱导条件。
- 称取甘露聚糖粉末,溶于无菌PBS中,配制成100 mg/mL的溶液。使用0.22 µm无菌针头滤器过滤溶液以完成灭菌。
- 正确固定小鼠,暴露其腹部。用碘伏消毒皮肤 ,并确定注射部位(距腹中线约1 cm处)。
- 充分混匀甘露聚糖溶液,用1 mL注射器吸取适当体积(每只小鼠20–30 mg)。将针头以45°角插入腹腔,缓慢注入溶液以确保均匀分布。缓慢拔出针头,并用无菌棉签轻轻按压注射部位数秒钟,以防渗漏或感染。
- 将注射后的小鼠置于安静、清洁的笼具中,密切观察5–10分钟,确保注射部位无渗漏、腹部无膨胀、呼吸无异常。
- 详细记录每只小鼠的注射信息。
5. 测量
- 临床表型观察
- 关节炎症状评分
- 在甘露聚糖诱导后每3天进行一次关节评估。检查前肢和后肢的所有关节,特别注意膝关节、踝关节、腕关节以及指/趾关节。使用标准标准(表1)17对关节炎严重程度进行评分。记录每个时间点的总分并进行比较,以评估关节炎的进展。
- 关节炎症状评分
- 组织病理特征记录
- 甘露聚糖诱导一个月后,按照伦理委员会指南,在无菌超净台中使用CO2窒息法处死小鼠,将小鼠固定在泡沫板上,暴露后肢。从踝关节处开始切开皮肤并向上剥离,暴露肌肉和关节。识别踝关节(胫骨/腓骨与距骨之间)和跖趾关节(跖骨与近端趾骨之间),并分离这些关节用于组织学分析,制备石蜡切片。
- 将切除的组织在4%甲醛中固定72小时,然后转移至10%乙二胺四乙酸(EDTA,pH 7.4)中脱钙4周,以确保完全脱钙。
- 脱钙后,用PBS洗涤组织以去除残留固定剂,然后通过梯度乙醇系列(75%、80%、95%、100%)进行脱水。
注意:甲醛可刺激眼睛、皮肤和呼吸道,应在通风橱中操作。 - 使用石蜡包埋机将组织包埋于石蜡中。用切片机将包埋组织切成4 µm厚的切片,并将切片漂浮于40 °C的蒸馏水中水浴。
- 转移并干燥切片。将切片置于载玻片上,在室温(RT)下过夜干燥。将载玻片在室温下保存以备染色。
- 苏木精-伊红(H&E)染色
- 将载玻片置于60 °C烘箱中2小时以去除石蜡。
- 在室温下,按以下顺序依次浸入各试剂中,每步5分钟:二甲苯 → 二甲苯 → 100%乙醇 → 100%乙醇 → 95%乙醇 → 80%乙醇 → 75%乙醇。用蒸馏水冲洗2分钟。
- 依次在苏木精溶液中染色5分钟,去离子水中冲洗2分钟,0.1%氨水处理1分钟,去离子水中冲洗3次,每次2分钟,伊红染色1分钟,最后在去离子水中冲洗2分钟。
- 将载玻片依次浸入80%乙醇 → 95%乙醇 → 100%乙醇 → 二甲苯 → 二甲苯中,每步5分钟。
- 自然风干载玻片,并用中性树胶封片。
- 番红O-固绿染色
- 将石蜡切片脱蜡至水,使用Van Gieson染色试剂盒进行染色。染色后用中性树胶封片,并在显微镜下拍照(按步骤5.2.5制备)。
- T细胞与细胞因子的变化
- 使用无菌外科器械从小鼠体内取出脾脏。
- 根据试剂盒说明书,使用RNA提取试剂盒从小鼠脾组织中提取总RNA。使用分光光度计测定RNA浓度和纯度,并确保A260/A280比值在1.8至2.0之间。
- 使用逆转录试剂盒将提取的RNA合成cDNA。按照试剂盒说明书设置反应体系和循环条件。将cDNA在-20 °C保存,用于后续qPCR分析。
- 进行qPCR:使用基于SYBR Green的qPCR方法,在10 µL反应体系中测定脾组织中Tbx21、Gata3、Il-17和Foxp3的相对mRNA表达水平,反应体系包含:5 µL 2× SYBR Green预混液,上下游引物各0.2 µL(10 µM;引物序列见表2),0.5–1 µL cDNA(50–100 ng/µL),并用无核酸酶水补足体积。采用以下热循环条件:95 °C预变性30秒,随后进行40个循环(95 °C变性10秒,60 °C退火延伸30秒),并进行熔解曲线分析(65–95 °C)。采用2(-ΔΔCt)法将表达水平归一化至Gapdh。
- 血清分离与流式微球阵列(CBA)分析
- 采用眼球后取血法从小鼠采集血液,将血液转移至抗凝涂层收集管中,在室温下静置30分钟。将凝固的血液在4 °C、1,000 × g条件下离心15分钟,小心收集上清液(血清),并储存在-80 °C直至分析。
- 根据试剂盒说明书,使用CBA试剂盒测定血清中IL-6、IL-10、IL-17、TNF-α和IFN-γ的表达水平。
- 使用无菌外科器械从小鼠体内取出脾脏。
结果
小鼠关节肿胀的临床评分及发病率
图1 显示了模型小鼠关节肿胀的临床评分和发病率。结果表明,模型组所有小鼠均发病(n = 4),发病率为100%。模型组评分显著升高,在第二周出现短暂缓解,随后在6周内持续上升。
小鼠关节肿胀表现
模型组小鼠的关节出现明显增厚和肿胀,前肢和后肢也可见明显的肿胀和增厚现象(图2)。
小鼠踝关节的病理学结果
病理学结果显示,与对照组相比,模型组小鼠踝关节滑膜明显增厚,骨组织连续性中断,并可见大量炎性细胞聚集(图3、图4 和 图5)。
血清T细胞相关炎症因子
与对照组相比,模型组小鼠血清中IL-10(7.51 vs 2.15 pg/mL)、TNF(78.83 vs 13.11 pg/mL)、IL-17(101.6 vs 12.64 pg/mL)和IFN-γ(5.15 vs 1.90 pg/mL)水平均显著升高(p < 0.05)。IL-6水平也较对照组显著升高(15.59 vs 6.27 pg/mL)(p = 0.05,图6)。
脾脏中 Th1/2/17 和 Treg T 细胞亚群的变化
通过检测Tbx21(Th1)、Gata3(Th2)、Il-17(Th17)和Foxp3(Treg)的 mRNA 表达水平,评估脾脏中 T 细胞亚群的变化。这些基因编码各自 T 细胞亚群分化与功能的关键转录因子和细胞因子。与对照组相比,模型组小鼠脾脏中Tbx21(1.68 vs 0.61)和Il-17(26.30 vs 0.75)的 mRNA 表达显著升高(相对于参考基因Gapdh,p < 0.05)。
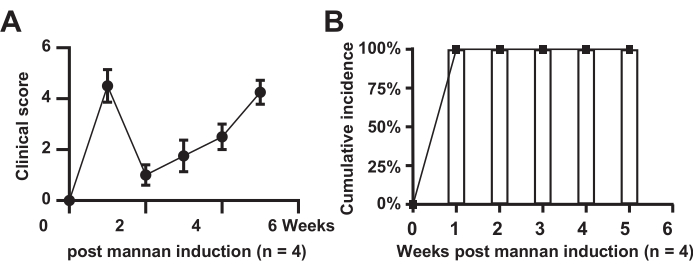
图1:关节肿胀的临床评分。(A)模型组小鼠;(B)模型组小鼠的累积发病率。请点击此处查看该图的放大版本。
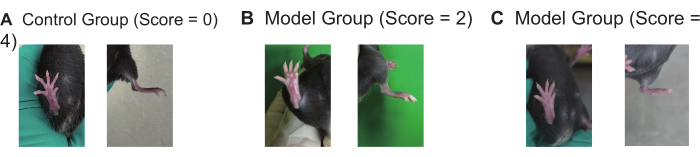
图 2:对照组与模型组小鼠关节肿胀表现(n = 4)。 (A-C)对照组和模型组小鼠足垫及关节肿胀评分(0、2、4)的代表性图像。 请点击此处查看该图的放大版本。
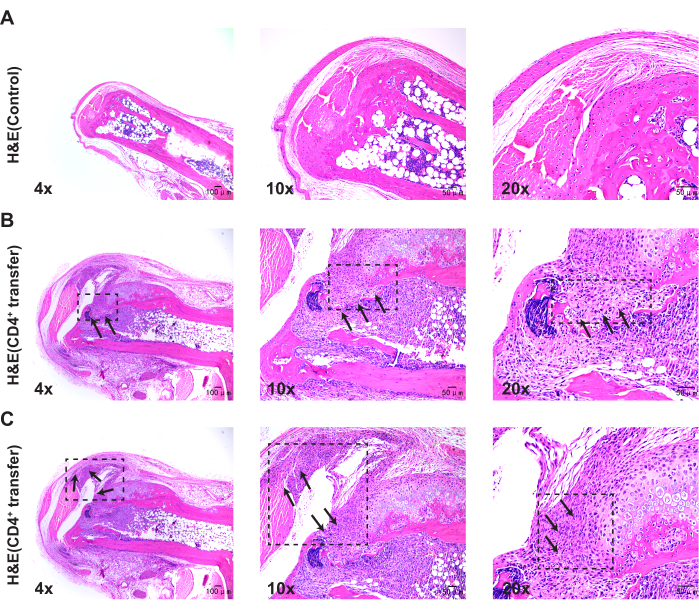
图3:通过苏木精-伊红染色观察对照组与模型组小鼠踝关节的组织学变化。(A)对照组小鼠踝关节;(B)模型组小鼠踝关节骨组织连续性中断;(C)模型组小鼠踝关节滑膜增生。比例尺 = 50 µm(第一列),100 µm(第二和第三列)。图3B和3C的图像来自同一只小鼠,展示了不同的病理表型。请点击此处查看该图的放大版本。
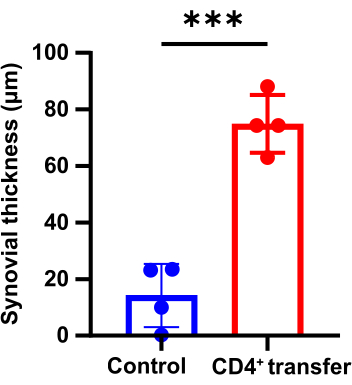
图4:对照组小鼠与模型组小鼠踝关节滑膜厚度的差异(p < 0.05)。请点击此处查看该图的放大版本。
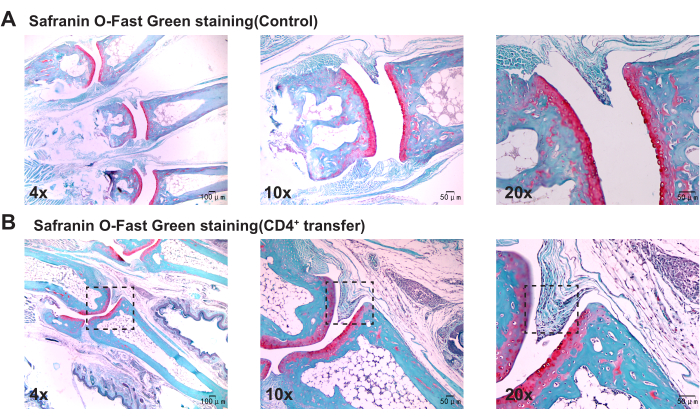
图5:通过苏木精-伊红染色观察对照组与模型组小鼠踝关节的组织学变化。 (A)对照组小鼠的踝关节;(B)模型组小鼠踝关节中的滑膜增生。比例尺 = 50 µm(第一列),100 µm(第二列和第三列)。 请点击此处查看该图的放大版本。
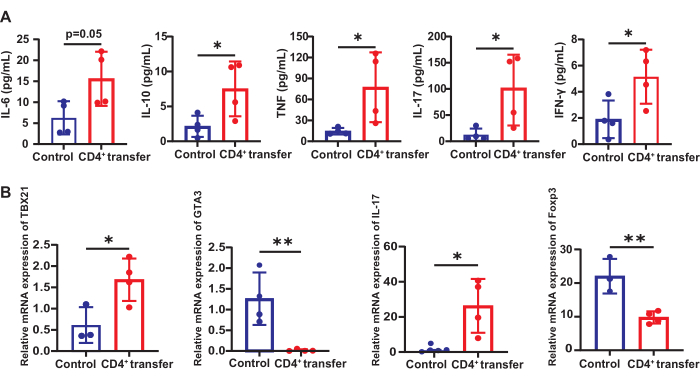
图6:对照组与模型组小鼠T细胞相关炎症因子及亚群的变化。(A)对照组与模型组小鼠血清中T细胞相关炎症因子的表达水平;(B)脾脏中T细胞亚群Th1/2/17及Tregs的变化。*p < 0.05,**p < 0.01。请点击此处查看该图的放大版本。
| 评分 | 肿胀(范围 0-4) | 红斑(范围 0-2) |
| 0 | 无 | 无 |
| 1 | 任一足趾 | 轻微 |
| 2 | 足掌 | 显著 |
| 3 | 腕关节/踝关节 | |
| 4 | 整个肢体 |
表1:关节炎评分标准。 评估关节炎时,每只肢体根据肿胀和红斑程度进行评分,每只肢体评分为0-6分。将四只肢体的得分相加,得到每只小鼠的关节炎总分。
| 引物序列 | |
| 寡核苷酸名称 | 序列 5' 至 3' |
| Tbx21-Forward | AGCAAGGAGCGAATGTT |
| Tbx21-Reverse | GGGTGGACATATAAGCGGTTC |
| Gata3-Forward | CTCGGCCATTCGTACATGGAA |
| Gata3-Reverse | GGATACCTCTGCACCGTAGC |
| Il-17a-Forward | TTTAACTCCCTTGGCGCAAAA |
| Il-17a-Reverse | CTTTCCCTCCGCATTGACAC |
| Foxp3-Forward | CCCTTGACCTCAAAACCAAG |
| Foxp3-Reverse | GTGTGACTGCATGACTAACTTTGA |
| Gapdh-Forward | GGTTGTCTCCTGCGACTTCA |
| Gapdh-Reverse | TGGTCCAGGGTTTCTTACTCC |
表2:引物序列列表。
补充图 S1:通过流式细胞术分选 CD4+ T 细胞的设门策略。 请点击此处下载该文件。
讨论
类风湿关节炎(RA)的发生与滑膜组织中异常的免疫细胞浸润密切相关,这些免疫细胞的失调性活化会释放多种促炎性细胞因子,进一步导致滑膜及关节结构的损伤18,19。目前已广泛评估了多种RA动物模型,包括CIA模型、K/BxN模型和SKG小鼠13,20,21。尽管这些模型能够成功模拟RA的免疫机制和临床表现,但均存在显著局限性。例如,C57BL/6小鼠中的CIA模型成功率较低、发病周期较长,且受环境和实验条件影响较大,因而在某些实验条件下实用性较差。SKG小鼠是一种基于ZAP-70基因突变的RA小鼠模型,该突变可引起T细胞受体(TCR)信号传导的突然异常,从而诱导自身免疫性关节炎22。然而,该模型成本较高,且实验结果的可重复性易受诱导条件影响。K/BxN是一种由T细胞和B细胞协同作用引发的遗传性关节炎模型,表现出显著的免疫反应23。但构建该模型费用昂贵,且其特异性受限,导致免疫反应范围有限,无法完全再现人类RA复杂的病理过程。因此,建立一种能够复制RA关键病理特征、满足多样化实验需求并具有高可重复性的动物模型具有重要意义。
本研究介绍了一种通过过继性转移SKG小鼠的适应性CD4+ T细胞来建立类风湿关节炎(RA)模型的方法。该模型的构建依赖于选择具有C57/BL6背景的SKG小鼠来源的CD4+ T细胞,并通过甘露聚糖诱导,这一过程可确保模型的成功建立。众所周知,BALB/c背景的SKG小鼠携带一种自发的ZAP70基因突变(W163C),该突变导致TCR信号选择异常,从而产生高度自身反应性的T细胞24。这会引起T细胞过度活化,并导致滑膜炎和关节破坏,进而模拟类风湿关节炎的关键病理过程,如滑膜修复和免疫细胞活化25,26。SKG小鼠的临床特征与人类RA患者高度相似。
为了将该突变引入C57BL/6遗传背景,我们采用CRISPR/Cas9技术成功构建了携带ZAP70 (W163C)突变的C57BL/6背景SKG小鼠模型。CRISPR/Cas9具有高精度和高效率,可在维持较低脱靶插入率和避免传统随机诱导方法所伴随的非预期遗传修饰的同时,实现目标突变的靶向引入,从而确保模型的稳定性和独特性27,28。更重要的是,该技术还显著缩短了模型构建所需的时间,提高了模型开发的可控性和效率。利用该模型,我们能够在C57BL/6背景下精确模拟T细胞介导的类风湿关节炎(RA)滑膜炎及关节破坏。与传统SKG小鼠所用的BALB/C背景相比,C57BL/6背景的模型小鼠在免疫学研究中具有更广泛的适用性,并可更方便地与其他转基因模型(如Rag1-/-或IL17-/-)进行组合。这使其适用于研究ZAP70突变在类风湿关节炎及其他自身免疫性疾病(如系统性红斑狼疮或多发性硬化)中的作用。
鉴于CD4+ T细胞在类风湿关节炎(RA)发病过程中发挥的关键作用29,30,我们选择其作为核心介导细胞。T细胞是RA中免疫反应的主要驱动者,可通过激活Th1/Th17效应亚群直接诱导滑膜损伤31,该过程依赖于IL-6、IL-17和TNF-α等炎症因子32,33。作为免疫调节的关键介质,CD4+ T细胞可分泌促炎性细胞因子,触发并维持炎症级联反应,导致滑膜增生和关节损伤,从而直接促进RA的病理进展。它们在辅助B细胞产生特异性抗体(如ACPA)方面也起着重要作用34。同时,RA滑膜典型的组织病理学特征即为CD4+ T细胞的聚集。某些II类主要组织相容性复合体(MHC)基因,尤其是与人类白细胞抗原-DR亚型(HLA-DR)相关的“"共享表位"”,被认为与RA的发病机制密切相关35。此外,使用细胞毒性T淋巴细胞相关抗原4(CTLA4)-Ig阻断T细胞共刺激的策略在RA治疗中已显示出显著的临床疗效36。另外,甘露聚糖诱导是该模型的有效激活手段,可促进树突状细胞和巨噬细胞等固有免疫组分的活化37。此步骤进一步促进CD4+ T细胞的活化及免疫应答,显著增强免疫系统对自身组织的攻击,从而模拟RA中免疫失调和滑膜损伤的病理特征。
完成模型诱导后,我们通过多个参数对模型组进行了系统性验证,包括关节肿胀的临床评分、病理学验证(观察滑膜组织病理学特征及关节破坏情况)以及免疫学验证(检测血清和脾脏中Th1/2/17和Treg细胞的表达水平)。结果显示,我们的模型成功复制了类风湿关节炎(RA)中T细胞介导的滑膜炎及关节破坏过程,诱导出与RA主要病理生理机制一致的特征性免疫活化和滑膜病理改变,模型成模率达100%。值得注意的是,在本模型中,小鼠的临床关节肿胀评分在诱导后第1周达到高峰,第2周明显下降,随后在后期阶段又逐渐回升,这一病程变化并不完全符合传统关节炎动物模型中典型的疾病发展过程38。这可能是因为在诱导后第1周,模型小鼠的免疫系统因甘露聚糖注射而处于强烈激活的初始阶段,导致关节炎症达到峰值;在第2周,免疫调节与自我修复机制发挥作用,使临床症状暂时缓解;随着疾病进展,免疫耐受逐渐减弱,免疫反应再次增强,表现为后期病情逐步加重。
尽管该模型与其他模型相比相对简单,但在建模过程中仍需注意若干关键点。首先,SKG小鼠来源的CD4+ T细胞的活性和纯度是模型成功的基础,细胞纯度应超过90%,以确保实验结果的一致性和可靠性。其次,向内眦静脉注射时的速度需严格控制,过快可能导致静脉破裂,过慢则可能引起细胞泄漏。此外,细胞接种剂量的选择至关重要:剂量过低可能导致建模失败,而剂量过高则可能诱发非特异性炎症反应。因此,在建模过程中应密切监测小鼠的整体状况,及时记录任何异常症状,以确保实验顺利进行以及数据的科学有效性。
与传统模型相比,该模型建模周期更短,在C57BL/6小鼠中具有更高的发病率,且相对成本较低、操作简便。通过转移自身反应性CD4+ T细胞,可准确再现T细胞介导的免疫反应,并捕捉类风湿关节炎(RA)的关键病理特征,如关节肿胀和损伤。此外,其临床表现与人类RA高度相似,能够更真实地反映RA的临床及病理过程。同时,结合内眦静脉注射与甘露聚糖诱导的方法,进一步提高了模型的可控性和实验稳定性,使其具有良好的可重复性及优异的实验控制性。当然,该模型仍存在局限性:主要聚焦于T细胞驱动的免疫反应,对B细胞介导的抗体反应及其他免疫细胞(如自然杀伤(NK)细胞和Treg细胞)协同作用的模拟尚不充分,难以全面体现RA的多细胞参与的病理机制。尽管如此,该RA小鼠模型仍是一种稳定可靠的动物模型,为研究人员提供了模拟T细胞介导免疫反应及RA主要病理特征的良好平台。该模型有助于深入探究RA的免疫机制与病理进展过程,为新型治疗策略的开发提供重要的实验依据和工具,尤其在理解T细胞驱动的免疫失调及治疗靶点的识别方面具有重要意义。
披露
作者声明无利益冲突。
致谢
本工作获得国家自然科学基金(82270903、82401588 和 81974254)及中国博士后科学基金(2024M751019)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂糖 | Yeasen | 10208ES60 | 用于制备DNA电泳实验中的琼脂糖凝胶 |
| 无水乙醇 | 上海沪试实验室仪器有限公司 | 100009218 | 脱水剂和固定剂 |
| ZAP 70 引物 | Tsingke | 用于检测ZAP70基因表达,常用于小鼠基因分型的PCR实验 | |
| 0.5 M EDTA溶液(pH = 7.4) | Biosharp | R00521 | 用于脱钙,确保含钙组织的切片质量和染色效果,同时维持组织结构完整性 |
| 1.5 mL无酶离心管 | LABSELECT | MCT-001-150-S | 用于样品储存、离心分离等多种实验 |
| 2x Q3 SYBR qPCR通用预混液 | ToloBio | 22204 | 用于进行高特异性和高灵敏度的qPCR反应 |
| 2x Magic Green Taq SuperMix | TOLOBIO | 21502-04 | 电泳前的缓冲溶液 |
| 4%甲醛(多聚甲醛)溶液 | Biosharp | BL539A | 作为固定剂,用于保存组织结构和细胞形态,为后续染色步骤提供稳定且保存良好的样本 |
| 动物组织/细胞总RNA提取试剂盒 | Servicebio | MPC2409122 | 从动物组织/细胞中提取总RNA |
| BD流式微球阵列(CBA)小鼠Th1/Th2/Th17细胞因子检测试剂盒 | BD Biosciences | 560485 | 检测小鼠血清中Th1/Th2/Th17细胞因子的表达水平 |
| 细胞培养皿 | LABSELECT | 12211 | 用于盛放来自脾脏和淋巴结的细胞悬液 |
| 二甲苯 | 国药集团化学试剂有限公司 | 10023418 | 用作脱蜡和透明剂 |
| Easyfive六孔细胞计数板 | CytoEasy | N3EF110 | 用于细胞计数 |
| 软骨增强型番红O-快绿染色液 | Solarbio | G1371 | 对软骨和骨组织进行染色,以观察关节区域的病理变化 |
| 载玻片 | CITOTEST | 188105 | 组织切片的基本支撑材料 |
| 苏木精染色液 | Servicebio | G1005-1 | 染色 |
| 苏木精染色液 | Servicebio | G1001 | 染色 |
| 低速冷冻离心机 | Cence | F14300021010004 | 用于离心和沉淀 |
| 甘露聚糖 | Sigma | m7504 | 模型激活剂。用无菌PBS溶解至2 mg/mL,充分混匀,并通过0.22 μm滤膜过滤,以去除任何颗粒或可能的污染源。 |
| MojoSort磁力架 | Biolengend | 480019 | 用于从小鼠脾脏和淋巴结中分离和纯化CD4+ T细胞 |
| MojoSort小鼠CD4+ T细胞分离试剂盒 | Biolengend | 480033 | 用于从小鼠脾脏和淋巴结中分离和纯化CD4+ T细胞。采用阴性筛选方法,不直接结合CD4分子,从而在分离CD4+ T细胞的同时保持表面抗原的完整性,不影响CD4分子的功能,适用于CD4+ T细胞输注实验 |
| Nano-300 | ALLSHENG | AS-11020-00 | 用于核酸、蛋白质和细胞溶液的精确定量检测 |
| 中性树胶封片剂 | Biosharp | BL704A | 固定并保存染色后的组织切片 |
| 石蜡切片机 | KEDEE | KD-3389 | 用于制备石蜡切片 |
| 磷酸盐缓冲液(PBS) | Pricella | WHB824P281 | 用作缓冲溶剂或清洗剂 |
| 无菌细胞滤器(70 µm) | Biosharp | BS-70-CS | 去除细胞悬液中的大颗粒杂质或聚集的细胞团块,确保样品纯度和细胞均一性 |
| 无菌注射器(1 mL) | 灵阳医疗器械 | 20241020 | 用于内眦静脉注射 |
| 台式高速微量冷冻离心机 | SCILOGEX | S1010E | 用于离心和沉淀 |
| TEA缓冲液(50x) | Yeasen | 60116ES76 | 稳定pH值,有助于保护和保存DNA、RNA等分子,用于电泳实验 |
| ToloScript一体化qPCR反转录预混液 | ToloBio | 22107 | 用于将RNA模板反转录为cDNA,便于后续基因表达分析、qPCR及其他分子生物学实验 |
| 移液吸头 | BIOFIL | 240515-133-A | 用于溶液转移 |
| 台盼蓝染色液 | Biosharp | 7009529 | 常用于细胞活力检测,有助于区分活细胞与死细胞 |
参考文献
- Global, regional, and national burden of rheumatoid arthritis, 1990-2020, and projections to 2050: A systematic analysis of the global burden of disease study. Lancet Rheumatol. 5 (10), e594-e610 (2021).
- Radu, A. F., Bungau, S. G. Management of rheumatoid arthritis: An overview. Cells. 10 (11), 2857(2021).
- Di Matteo, A., Bathon, J. M., Emery, P. Rheumatoid arthritis. Lancet. 402 (10416), 2019-2033 (2023).
- Bernard, L., et al. Management of patients with rheumatoid arthritis by telemedicine: Connected monitoring. A randomized controlled trial. Joint Bone Spine. 89 (5), 105368(2022).
- Jang, S., Kwon, E. J., Lee, J. J. Rheumatoid arthritis: Pathogenic roles of diverse immune cells. Int J Mol Sci. 23 (2), 905(2022).
- Daikh, D. I. Rheumatoid arthritis: Evolving recognition of a common disease. Best Pract Res Clin Rheumatol. 36 (1), 101740(2022).
- Bhamidipati, K., Wei, K. Precision medicine in rheumatoid arthritis. Best Pract Res Clin Rheumatol. 36 (1), 101742(2022).
- Meyer, A., Parmar, P. J., Shahrara, S. Significance of IL-7 and IL-7R in RA and autoimmunity. Autoimmun Rev. 21 (7), 103120(2022).
- Yu, X., et al. Synergistic induction of CCL5, CXCL9 and CXCL10 by IFN-γ and NLRS ligands on human fibroblast-like synoviocytes-a potential immunopathological mechanism for joint inflammation in rheumatoid arthritis. Int Immunopharmacol. 82, 106356(2020).
- Wu, X., et al. Single-cell sequencing of immune cells from anticitrullinated peptide antibody positive and negative rheumatoid arthritis. Nat Commun. 12 (1), 4977(2021).
- Wei, X., Niu, X. T follicular helper cells in autoimmune diseases. J Autoimmun. 134, 102976(2023).
- Mcelwee, M. K., Dileepan, T., Mahmud, S. A., Jenkins, M. K. The CD4+ T cell repertoire specific for citrullinated peptides shows evidence of immune tolerance. J Exp Med. 220 (12), e20230209(2023).
- Ahmed, S., et al. Dual inhibition of glycolysis and glutaminolysis for synergistic therapy of rheumatoid arthritis. Arthritis Res Ther. 25 (1), 176(2023).
- Wu, J., et al. Tnf antagonist sensitizes synovial fibroblasts to ferroptotic cell death in collagen-induced arthritis mouse models. Nat Commun. 13 (1), 676(2022).
- Huo, F., Hou, J., Zhu, Y., Feng, Z. ferroptosis inducer ike ameliorate pulmonary fibrosis in collagen-induced arthritis (CIA) mice via decreasing the expression of IL-6, CCL5 and CXCL9. Xi Bao Yu Fen Zi Mian Yi Xue Za Zhi. 40 (2), 114-120 (2024).
- Sun, H., et al. ID2 exacerbates the development of rheumatoid arthritis by increasing IFN-γ production in CD4+ T cells. Clin Transl Med. 15 (3), e70242(2025).
- Murayama, M. A., et al. CTRP6 is an endogenous complement regulator that can effectively treat induced arthritis. Nat Commun. 6, 8483(2015).
- Kadura, S., Raghu, G. Rheumatoid arthritis-interstitial lung disease: Manifestations and current concepts in pathogenesis and management. Eur Respir Rev. 30 (160), 210011(2021).
- Mueller, A. L., et al. Recent advances in understanding the pathogenesis of rheumatoid arthritis: New treatment strategies. Cells. 10 (11), 3017(2021).
- Sun, H., et al. Gut commensal parabacteroides distasonis alleviates inflammatory arthritis. Gut. 72 (9), 1664-1677 (2023).
- Li, Z. Y., Zhou, J. J., Luo, C. L., Zhang, L. M. Activation of tgr5 alleviates inflammation in rheumatoid arthritis peripheral blood mononuclear cells and in mice with collagen II-induced arthritis. Mol Med Rep. 20 (5), 4540-4550 (2019).
- Mccarthy, E. E., et al. Endogenous antigens shape the transcriptome and TCR repertoire in an autoimmune arthritis model. J Clin Invest. 135 (2), e174647(2024).
- Chen, J., et al. Annexin A1 attenuates cardiac diastolic dysfunction in mice with inflammatory arthritis. Proc Natl Acad Sci U S A. 118 (38), e2020385118(2021).
- Owada, T., et al. LAT1-specific inhibitor ameliorates severe autoimmune arthritis in skg mouse. Int Immunopharmacol. 109, 108817(2022).
- Zhang, A., et al. Nrf2 activation improves experimental rheumatoid arthritis. Free Radic Biol Med. 207, 279-295 (2023).
- Sakaguchi, N., et al. Altered thymic T-cell selection due to a mutation of the ZAP-70 gene causes autoimmune arthritis in mice. Nature. 426 (6965), 454-460 (2003).
- Van Hees, M., et al. New approaches to moderate CRISPR-Cas9 activity: Addressing issues of cellular uptake and endosomal escape. Mol Ther. 30 (1), 32-46 (2022).
- Tyumentseva, M., Tyumentsev, A., Akimkin, V. CRISPR/Cas9 landscape: Current state and future perspectives. Int J Mol Sci. 24 (22), 16077(2023).
- Wu, F., et al. B cells in rheumatoid arthritis: pathogenic mechanisms and treatment prospects. Front Immunol. 12, 750753(2021).
- Dunlap, G., et al. Clonal associations between lymphocyte subsets and functional states in rheumatoid arthritis synovium. Nat Commun. 15 (1), 4991(2024).
- Okamoto, K., Takayanagi, H. Effect of T cells on. Bone. 168, 116675(2023).
- Wang, X. Q., et al. Dopamine D2 receptor on CD4+ T cells is protective against inflammatory responses and signs in a mouse model of rheumatoid arthritis. Arthritis Res Ther. 25 (1), 87(2023).
- Wang, X. Q., Liu, Y., Cai, H. H., Peng, Y. P., Qiu, Y. H. Expression of tyrosine hydroxylase inCD4+ T cells contributes to alleviation of Th17/Treg imbalance in collagen-induced arthritis. Exp Biol Med (Maywood). 241 (18), 2094-2103 (2016).
- Anaparti, V., et al. Increased frequency of TIGIT+ CD4 T cell subset in autoantibody-positive first-degree relatives of patients with rheumatoid arthritis. Front Immunol. 13, 932627(2022).
- Lei, Y., et al. Synovial microenvironment-influenced mast cells promote the progression of rheumatoid arthritis. Nat Commun. 15 (1), 113(2024).
- Jinno, S., et al. Comparison of retention of biologics in Japanese patients with elderly-onset rheumatoid arthritis-the answer cohort study. Rheumatology (Oxford). 64 (2), 509-516 (2025).
- Hagert, C., et al. Rapid spread of mannan to the immune system, skin and joints within 6 hours after local exposure. Clin Exp Immunol. 196 (3), 383-391 (2019).
- Cheng, W. J., et al. Deer velvet antler extracts exert anti-inflammatory and anti-arthritic effects on human rheumatoid arthritis fibroblast-like synoviocytes and distinct mouse arthritis. Am J Chin Med. 50 (6), 1617-1643 (2022).
重印与许可
