本文介绍了一种利用酵母表面展示底物进行酶促修饰检测的实验方案。该平台以酪氨酸磷酸酶SHP-2对其某一底物去磷酸化活性的分析为例,展示了典型的酶促修饰检测方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
酵母表面展示是一种基因型-表型关联策略,可实现对蛋白质功能的高通量筛选。传统上,酵母表面展示被用于进化新型结合蛋白,通过流式细胞术评估并根据结合强度水平进行分选。近年来,人们日益关注将酵母表面展示应用于筛选酶对底物变体的修饰作用,其中加成性修饰(如磷酸化)或消除性修饰(如蛋白水解)可产生可通过流式细胞术读取的表型信号。这类修饰通常依赖于细胞内共定位实现,而若能实现展示底物的胞外酶促修饰,则有望将更多反应纳入研究范围。本文介绍了针对酵母表面展示的候选底物进行胞外酶促修饰筛选实验的设计与应用技术,并结合流式细胞术分析进行后续评估。我们以磷酸酶去磷酸化展示在酵母表面、含有磷酸化酪氨酸残基的底物为例,阐述相关实验方案,并讨论该框架如何适应于其他酶-底物组合筛选实验的开发。
引言
由于酶与其靶标之间的相互作用对于阐明调控细胞稳态及疾病发生通路的生物学特性至关重要,该领域的研究正变得日益重要1,2。酶负责催化维持生命活动的众多反应,调控细胞代谢3,4、信号转导5,甚至基因组修复6,7等基本生物学过程。由于其在这些过程中的关键作用,酶的相互作用也参与多种疾病的形成,酶活性的异常可导致细胞活动严重失调,引发细胞凋亡或有害癌细胞的增殖2。对酶活性的研究在新疗法的开发中具有重要应用价值8,9,这需要针对特定酶-底物相互作用定制的检测方法10。目前已有多种酶学检测方法被确立为评估和表征这些相互作用的标准实验流程。用于分析酶促相互作用的检测方法可分为两类:一类是监测结合以评估激活或抑制的检测方法11,另一类是监测酶对底物修饰的检测方法12。
酶的一个主要功能是调控细胞行为。信号转导是指细胞对胞外刺激产生的胞内响应13,它决定了细胞的存活与功能。细胞增殖、分化以及许多其他功能过程均涉及由酶促相互作用所调控的信号通路14,15。酶可催化翻译后修饰,这类修饰通常调节着负责正确传递胞外信号的复杂信号网络16。蛋白质磷酸化是最常见的翻译后修饰,在细胞信号传导及其他多种细胞通路中广泛存在。因此,由于蛋白激酶在调控中的关键作用,它们已成为潜在治疗靶点的重要组成部分17。磷酸酶则是基于磷酸化信号复合物的天然调节分子18,19,能够从其靶蛋白上去除磷酸基团20。在过去十年中,由于磷酸酶参与调控多种细胞类型的下游信号通路,它们已成为癌症治疗21和炎症性疾病22的重要治疗靶点。蛋白激酶与磷酸酶共同构成了广泛的相互作用网络,这些相互作用可通过开发特异性的酶学检测方案进行研究。
酵母表面展示已被用作表征和评估酶活性的工具23,24。当与内质网滞留策略相结合时,它为翻译后修饰过程的筛选提供了一个高通量平台25,26。该方法可通过与KDEL受体结合,使激酶-底物对在内质网中共定位并滞留27,由于激酶与其靶标之间的空间 proximity,底物的磷酸化速率得以提高。KDEL受体的结合由C末端的FEHDEL内质网滞留序列介导,该序列已被证明比其他HDEL序列具有更强的滞留能力25,28。随后,磷酸化的底物被锚定在酵母表面,以便通过流式细胞术进行后续评估29。目前尚无通用的实验方案用于对展示在酵母表面的底物进行酶促修饰。我们通过利用在细胞外表达的磷酸化底物变体,并使用已知的磷酸酶对其进行去磷酸化修饰,从而拓展了酵母表面展示的应用能力。随后通过流式细胞术分析,以已知磷酸酶孵育后磷酸化中位数的变化为指标,对上述底物进行表型评估。该方法不仅为表面展示蛋白的翻译后修饰提供了可调节的技术路径,同时也为在使用酵母表面展示平台时分析酶促修饰相关的相互作用提供了有效手段。
本文介绍了一种酶学修饰检测方法的建立与应用技术,该方法将激酶-底物相互作用引入酵母表面展示平台,通过共孵育表达的磷酸化底物与重组磷酸酶,随后利用流式细胞术分析去磷酸化活性。本研究中,通过在酵母内质网中共同定位CD28的胞内区与淋巴细胞激酶(LCK),实现CD28在酵母表面的磷酸化展示,随后由Src同源区2结构域含有的磷酸酶-2(SHP-2)催化其去磷酸化。采用广谱抗磷酸化酪氨酸抗体(本研究中为4G10),该抗体可识别多种肽序列中的磷酸化酪氨酸残基,用于定量检测经磷酸酶处理后磷酸化水平的变化。该详细流程提供了一种可推广的方法,用于研究酶-底物相互作用,为以纯化形式研究酶与底物提供了一种前瞻性途径。
访问受限。请登录或开始试用以查看此内容。
方案
1. 含质粒酵母的细胞生长及蛋白表达诱导
- 按照所述配方进行 表1,准备用于不含质粒酵母生长的培养基(YPD)、含质粒酵母细胞生长的培养基(SD-CAA)、蛋白表达诱导培养基(SRG-CAA),以及SD-CAA平板。
- 通过锂离子介导法将含有激酶-底物配对的酵母展示质粒DNA转化至EBY-100酵母细胞中30,31常用于多家制造商的酵母转化试剂盒中。
注意:电穿孔32 或可根据所转化的质粒构建体,采用其他偏好的酵母质粒转化技术。 - 准备一支14 mL培养管,加入10 mL YPD培养基。接种EBY-100细胞,并在摇床培养箱中培养 30 °C,300 转/分钟,直至培养物达到光密度(OD600 nm0.8–1.0(8 × 10)6- 1 × 10⁷ cells/mL
注意:OD600 nm 通过制备含有酵母培养物与其相应培养基1:10稀释液的3 mL样品比色皿,以及含有用于样品稀释的培养基的3 mL空白比色皿,测定OD600 nm 分光光度计上的程序首先用于测量空白比色皿,然后通过设置各样品对应的稀释倍数依次测量各样品比色皿。1 OD600 nm 对应于 1 × 10⁷ 酵母/mL - 通过在 1,000 × g 离心培养物收集细胞 x g 3 分钟,然后用 1 洗涤st 酵母转化试剂盒中提供的洗涤液,或TE缓冲液(10 mM Tris-HCl和1.0 mM EDTA)31.
- 再次于1,000 × g离心收集细胞 x g 3 分钟,然后重悬于 1 mL 酵母转化试剂盒中提供的转化缓冲液或无菌水中。细胞应分装至 50 µL 分装后可于-80 °C 长达6个月。
- 对于质粒转化,每种质粒准备一份等分试样,置于冰上融化,然后取0.5-1.5 µg 将含有酵母展示构建体的质粒DNA直接加入细胞中。加入0.5 mL酵母转化试剂盒提供的转化溶液,或加入0.5 mL无菌的50%聚乙二醇与0.1 M LiOAc溶液。31用移液器将细胞、质粒DNA和转化溶液的混合物充分混匀。
- 将转化混合物在30–60分钟内静置孵育于 30 °C,每15分钟涡旋混合一次。以1,000 ×g离心收集细胞 × g 3 分钟。
- 准备一支14 mL培养管,加入4.5 mL SD-CAA培养基。将含有目的质粒的细胞重悬于 500 µL SD-CAA 的 4.5 mL 并接种。
- 小心操作,避免刺穿琼脂,均匀分布 50 µL 将5 mL接种培养物涂布于SD-CAA平板上,静置培养于 30 °C 孵育48小时以测定转化效率。
- 将5 mL SD-CAA细胞培养物置于摇床培养箱中孵育 30 °C,300 rpm 振荡至少 18 小时。监测光密度(OD600 nm) 培养16小时和20小时后。当样品生长至光密度达到足够值但不超过6时,以2,500 × g离心3分钟 × g弃去上清液,注意不要扰动酵母沉淀。
- 将酵母沉淀重悬于SRG-CAA中,调整至最终OD600 nm 小于 1<1 × 10⁷ 酵母/mL
- 在摇床培养箱中孵育酵母培养物 30 °C,300 rpm,孵育至少8小时,但不超过24小时。
注意:酵母细胞中蛋白表达的诱导可在20-37 °C. 30 °C 适用于激酶/底物配对的合成29,33 但可根据所研究的特定蛋白质的需要进行调整。 - 测量 OD600 nm 以确定细胞密度。
注意:此时可通过将酵母培养物保存于 4 °C.
2. 4G10 抗磷酸酪氨酸抗体的生物素标记
- 通过加入 680 µL 无菌 PBS,将一支 2 mg 的 PEG4-NHS-Biotin 冻干粉重悬至终浓度为 5 mM。
注意:PEG4-NHS-Biotin 的重悬应在进行生物素标记反应前立即新鲜配制。NHS 在水溶液中会发生水解。为确保试剂长期保存以及用于基于细胞的检测时不受污染物影响,使用无菌 PBS 和无菌离心管至关重要。 - 根据 4G10 抗体的浓度,将 100 µg 抗体加入一支无菌的 1.7 mL 离心管中。
- 取步骤 2.1 中配制的 5 mM PEG4-NHS-Biotin 溶液 1 µL,加入含有 100 µg 4G10 抗体的离心管中,使生物素与抗体的摩尔比达到 7.5:1。用移液器轻轻吹打混合,使反应体系均匀。
- 将反应体系在室温下孵育,并持续旋转至少 2 小时。
- 按照生产商提供的说明书,使用 0.5 mL 离心脱盐柱,将生物素化 4G10 抗体(B-4G10)的缓冲液置换为 PBS。
注意:通常使用截留分子量(MWCO)为 7 kDa 的脱盐柱进行抗体生物素化处理,以去除未反应的生物素及其他小分子,同时保留较大的抗体分子。 - 用 PBSA(含 1 g/L 牛血清白蛋白的 PBS)将 B-4G10 抗体稀释至终浓度为 1 µM。将 B-4G10 抗体分装成小份,以避免反复冻融。
注意:生物素化抗体可在 4 °C 下保存,用于日常实验,最长可达 3 个月,且不会显著降低活性。未使用的分装样品应储存在 -20 °C,最长可保存 2 年。
3. 酵母细胞表面表达底物的去磷酸化
- 按照文献中先前描述的方法制备2倍工作缓冲液34。
注意:推荐使用2倍浓度,以便于称量所需组分。 - 在1.7 mL离心管中,将步骤3.1制备的2倍缓冲液用去离子水按1:2比例稀释,制备样品用工作缓冲液。
注意:每个样品的总反应体积为20 µL,每个样品需要10 µL至18 µL的工作缓冲液。请为所有样品或对照组准备足量的工作缓冲液。 - 根据表2中推荐的样品制备方法,用相应的对照或样品名称标记1.7 mL离心管。
- 根据步骤1.9中测得的OD600nm 值,计算从各酵母培养物中回收两百万(2 × 10⁶)个酵母细胞所需的培养物体积。
- 将上一步计算出的酵母培养物体积加入各对应的1.7 mL离心管中。
- 将离心管在4,500 × g条件下离心1分钟。使用移液器小心吸除上清液,并作为生物危害废物丢弃。
- 用1 mL PBSA重悬沉淀细胞,并重复步骤3.6。
注意:应尽可能彻底去除上清液,同时避免扰动沉淀的细胞。 - 根据其储存浓度,计算在20 µL总反应体系中达到1,000 nM终浓度所需的重组人SHP-2蛋白体积。
注意:重组SHP-2应分装成小份,确保每次实验所用蛋白经历的冻融次数不超过两次。每次实验所有样品制备完成后,剩余的SHP-2分装液应丢弃。
重组酶的储存浓度可能因批次不同而有所变化。重组SHP-2通常配制浓度为0.2–0.4 mg/mL。对于浓度为0.324 mg/mL的SHP-2,其摩尔浓度为4.696 µM(SHP-2的分子量为69 kDa)。在20 µL反应体系中加入4.26 µL该SHP-2原液,可使终浓度达到1,000 nM。 - 将7.7 mg DTT加入已准备好的15 mL锥形管中的10 mL去离子水中,配制成5 mM DTT溶液。若因设备限制 难以准确称量毫克级质量,可将0.77 g DTT加入10 mL去离子水中,随后进行100倍稀释,以获得实验所用的5 mM DTT溶液。
注意:若无法使用现有设备准确称量毫克级物质,可先配制更高浓度的DTT储备液,再稀释至5 mM。由于DTT在水中稀释后易发生水解,长期放置不稳定,因此必须在细胞重悬于工作缓冲液前新鲜配制。 - 用步骤3.2制备的工作缓冲液重悬沉淀细胞,使每个样品或对照组的终反应体积为20 µL。
注意:加入的工作缓冲液体积应根据各样品中将加入的DTT(2 µL)和SHP-2(步骤3.8中计算所得)体积进行计算。 - 向每个样品或对照组中加入2 µL步骤3.9配制的5 mM DTT溶液,使DTT终反应浓度为0.5 mM。
- 向每个样品中加入步骤3.8计算出的SHP-2体积,使总体积达到20 µL,并使用移液器轻轻混匀。
- 用Parafilm封膜包裹样品管盖,防止泄漏或交叉污染。
- 将样品置于37 °C恒速旋转仪上孵育2小时。
- 从旋转仪上取出样品,通过向每个样品中加入1 mL PBSA终止反应。
- 重复步骤3.6。
4. 去磷酸化底物的细胞标记与流式细胞术分析
- 按照 表2 中所述,将第 3.16 步的样品重悬于 20 µL 对应的一抗试剂混合液中。室温孵育 20 分钟。
注意:所用所有试剂浓度均已计算为相对于酵母细胞表面表达的蛋白数量处于过量状态。该计算假设每个样品中 2 × 10⁶ 个酵母细胞均表达 10,000 个蛋白/细胞35,而通常仅有约 50% 的细胞实际表达。表3 显示了 表2 中各试剂的过量标记试剂比例,计算方法如下:
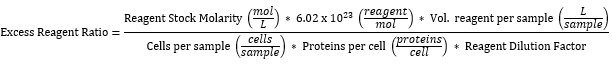
- 以 4,500 × g 离心 1 分钟,弃去上清液作为生物危害性废弃物。
- 用 1 mL PBSA 重悬细胞进行一次洗涤。重复步骤 4.2。
- 按照 表2 中所述,将样品重悬于 20 µL 对应的二抗试剂混合液中。避光孵育 15 分钟。
- 重复步骤 4.2。
- 重复步骤 4.3。
- 将洗涤后的样品重悬于 300–500 µL PBSA 中,并转移至 5 mL 聚苯乙烯管中,立即使用合适的流式细胞仪进行分析。
注意:若需运输样品,请置于湿冰上保存。虽然不推荐,但样品可作为湿沉淀物在 4 °C 下最多保存 2 小时。 - 完成细胞仪新实验所需的启动和准备工作后,点击 文件 菜单中的 新建实验 按钮,命名实验并点击 保存,以确保采集的数据保存至目标文件路径。
- 在上方工具栏中选择点图图标,为每个待测样品创建两个或更多点图。对于其中一个点图,设置 X 轴显示 FSC-A 通道,Y 轴显示 SSC-A 通道。该图显示侧向散射-面积(SSC-A)与前向散射-面积(FSC-A)的关系,用于圈选酵母细胞以进行后续分析。
- 在另一个点图中,设置 X 轴显示针对一抗表位标签抗体的二抗试剂所对应的荧光通道,Y 轴显示链霉亲和素二抗试剂所对应的荧光通道。该图仅显示从侧向散射与前向散射图中圈选的酵母细胞事件,用于在 Y 轴显示酪氨酸磷酸化水平,在 X 轴显示底物表面表达水平。
注意:本示例中,针对一抗表位标签抗体的二抗试剂在 FITC(AF-488)通道发光,链霉亲和素二抗试剂在 AF-647 通道发光。实际使用的通道可能因标记过程中使用的一抗和二抗试剂不同而有所变化。 - 将每个样品管放入细胞仪的试管架中,并点击“运行”,使细胞仪开始加载样品并采集数据。根据需要调整显示事件数、记录事件数、记录时间及样品流速。
- 在步骤 4.9 创建的 SSC-A 与 FSC-A 点图中,定义一个圈选健康酵母细胞的门控区域。图1 展示了应采用的门控策略的示意图。
注意:在 SSC-A 与 FSC-A 点图中,建议显示 100,000 个事件,记录 50,000 个事件(位于定义的酵母细胞门控区域内),以便可视化和收集足够数据用于后续分析。可根据前向散射-高度(FSC-H)与前向散射-面积(FSC-A)图,采用更严格的门控策略以筛选单细胞酵母,如近期文献报道36。图 1 所示门控策略较为宽松,通过散射特性包含单细胞及部分双细胞酵母。 - 使用流式细胞分析仪记录所有对照样品的荧光信号。通常优先采集对照样品,以帮助定义门控策略,如下文步骤 4.14 所述。
- 在分析处理样品之前,为步骤 4.10 创建的点图定义门控策略。图1 展示了应采用的门控策略的示意图。
- 使用流式细胞仪及步骤 4.12 和 4.14 定义的门控策略,记录去磷酸化样品的荧光信号。
- 使用流式细胞分析软件分析所获得的流式细胞数据。
- 通过测量并比较各组样品与对照中表面表达蛋白的细胞 Y 轴中位值与非表达细胞提供的基础磷酸化水平,评估去磷酸化程度。按下式计算中位磷酸化水平的百分比差异:
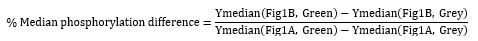
访问受限。请登录或开始试用以查看此内容。
结果
在我们的模型系统中,单次重复实验经2小时孵育后,未添加(图1A)和添加(图1B)1,000 nM SHP-2 的流式细胞术分析结果显示,中位磷酸化水平差异为63.6%。该差异定义为处理样本与未处理对照样本中,所有表面展示事件的Y轴中位值(磷酸化水平)减去非展示事件Y轴中位值所代表的基础磷酸化信号,具体计算方法见实验方案第4.12步所述公式。在进行中位值分析前,根据细胞的大小(前向散射)和复杂性(侧向散射)对样本进行设门,以选取健康的细胞群体。在设定的实验条件下,样本的去磷酸化效应应能通过肉眼明显分辨(图1C)。
该检测方法由四个主要步骤组成的简单流程定义(图2A)。我们所使用并已先前发表的酵母表面展示系统基于一种含有双向启动子的质粒,该启动子可同时诱导表达一对激酶-底物,即CD28的胞质尾部和酪氨酸激酶LCK(
访问受限。请登录或开始试用以查看此内容。
讨论
本方案通过酵母表面展示蛋白质,实现了对酶相互作用的分析。将内质网滞留机制整合到所使用的表面展示质粒中,可利用细胞内设计发生的相互作用,实现对酶与翻译后修饰底物之间特异性相互作用的胞外分析27,29。此前建立的基于酵母表面展示的酶相互作用检测方法,依赖于目标蛋白在细胞内的表达,而表面展示仅作为检测目标蛋白在细胞内相互作用的工具23,25,29。
本方案在该平台的基础上,将靶向的酶促相互作用转移至胞外环境,从而在可研究的酶种类以及监测酶活性的环境方面均提供了更大的灵活性。酶促反应在胞外发生使研究者有机会优化孵育环境,以更有利于酶活性的发挥,从而拓展了可研究的酶的范围,特别是那些在酵母内质网(一种高度氧化的环境)中活性受到抑制的酶37。此外...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明本研究不存在任何利益冲突。
致谢
本工作获得了美国国家科学基金会职业奖(NSF CAREER award)对 L.A.S. 的资助(CBET - 2339172)以及南佛罗里达大学启动资金的支持。
在图2A中,由Servier提供的微管-开口-透明图标 https://smart.servier.com/ 依据CC-BY 3.0 Unported许可证授权使用,https://creativecommons.org/licenses/by/3.0/。修改内容包括添加缓冲液和酵母细胞(左侧),以及添加抗体(中右部)。
图2A中的试管、培养箱和流式细胞仪由 www.bioicons.com在开放获取条件下提供。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 L 培养基瓶 | Corning | 06-414-1D | |
| 1.7/2.0 mL 微量离心管 | Axygen | MCT-175-C | |
| 10 µL SureOne 移液器吸头 | Fisher Scientific | 02-707-438 | |
| 1000 µL SureOne 移液器吸头 | Fisher Scientific | 02-707-408 | |
| 12 mL 聚苯乙烯圆底管 | Greiner | 07-000-212 | |
| 3 mL 塑料比色皿 | BRAND | 759076D | |
| 300 µL SureOne 移液器吸头 | Fisher Scientific | 02-707-411 | |
| 5 mL 血清移液管 | Fisher Scientific | 13-678-11D | |
| 酸水解酪蛋白(酪蛋白氨基酸) | Fisher Scientific | BP-1424-500 | |
| 分析天平 | Mettler Toledo | 30243397 | |
| 细菌培养用培养皿 | Corning | Falcon 351008 | |
| 生物安全柜 | Labconco | Logic Class II, Type A2 302310102 | |
| 生物分光光度计 | Eppendorf | Kinetic 6136000010 | |
| 牛血清白蛋白 | Fisher bioreagents | BP1600-100 | |
| 柠檬酸 | Fisher Scientific | A940-500 | |
| CytoFLEX 流式细胞仪 | Beckam Coulter | Cytoflex C09745 | CytExpert 软件 |
| 葡萄糖 | Fisher Scientific | D16-1 | |
| 二硫苏糖醇 | Fisher bioreagents | BP172-5 | |
| 驴抗山羊 FITC 抗体 | Invitrogen | A16000 | |
| EDTA | Alfa Aesar | H56165.30 | |
| Ez-Link PEG4-NHS-生物素 | Thermo Scientific | A39259 | |
| Frozen-EZ 酵母转化 II 试剂盒 | Zymo Research | T2001 | |
| 半乳糖 | Fisher Scientific | BP656-500 | |
| 通用冰箱 | Marvel Scientific | MS24RAS4RW | |
| 山羊抗 myc 标签抗体 | Bethyl | A190-104A | |
| 微量离心管离心机 | Eppendorf | 5425 R 5406000313 | |
| 小型低温冷藏培养箱 | Fisher Scientific | 15-015-2632 | |
| 小鼠抗磷酸化酪氨酸抗体 4G10 | BioXcell | BE0194 | |
| Parafilm M 封口膜 | Bemis | M PM999 | |
| 磷酸盐缓冲液 | Fisher bioreagents | BP399-500 | |
| 移液器控制器 | Eppendorf | easypet 3 4430000018 | |
| 棉子糖 | Thermo Scientific | J21060-36 | |
| 重组人活性 SHP-2 蛋白 | R&D Systems | 1894-SH | |
| 冷冻离心机 | Eppendorf | 5910 R | |
| Saccharomyces cerevisiae 酵母表面展示菌株 EBY 100 | ATCC | MYA-4941 | |
| 摇床培养箱 | Eppendorf | M1335-0002 New Brunswick Innova 42 | |
| 单通道移液器套装 | Eppendorf | 05-403-151 | |
| 氯化钠 | Fisher Scientific | S671-500 | |
| 二水合柠檬酸钠 | Fisher Scientific | S279-500 | |
| 七水合磷酸氢二钠 | Fisher Scientific | S373-500 | |
| 一水合磷酸二氢钠 | Fisher Scientific | S468-500 | |
| 链霉亲和素 Alexa Fluor 647 | Invitrogen | S32357 | |
| 上皿天平 | Mettler Toledo | ||
| Tris 盐酸盐 | EMD Millipore | 648317-100GM | |
| 管式旋转混匀仪 | Fisher Scientific | 11-676-341 | |
| 称量纸 | Fisher Scientific | 09-898-12B | |
| 酵母氮源基础培养基 | BD Difco | 291940 | |
| Zeba 脱盐离心柱 | Thermo Scientific | 89883 |
参考文献
- Lea, M. A., Weber, G. Role of enzymes in homeostasis: VIII. Inhibition of the activity of glycolytic enzymes by free fatty acids. J Biol Chem. 243 (6), 1096-1102 (1968).
- Mahé, M., Rios-Fuller, T. J., Karolin, A., Schneider, R. J. Genetics of enzymatic dysfunctions in metabolic disorders and cancer. Front Oncol. 13, 1230934(2023).
- Fernandez-de-Cossio-Diaz, J., Vazquez, A. A physical model of cell metabolism. Sci Rep. 8 (1), 8349(2018).
- Metallo, C. M., Vander Heiden, M. G. Understanding metabolic regulation and its influence on cell physiology. Mol Cell. 49 (3), 388-398 (2013).
- Mildvan, A. S. Mechanisms of signaling and related enzymes. Proteins. 29 (4), 401-416 (1997).
- Frosina, G. Overexpression of enzymes that repair endogenous damage to DNA. Eur J Biochem. 267 (8), 2135-2149 (2000).
- Schärer, O. D. Chemistry and biology of DNA repair. Angew Chem Int Ed. 42 (26), 2946-2974 (2003).
- de la Fuente, M., et al. Enzyme therapy: Current challenges and future perspectives. Int J Mol Sci. 22 (17), 9181(2021).
- Robertson, J. G. Enzymes as a special class of therapeutic target: clinical drugs and modes of action. Curr Opin Struct Biol. 17 (6), 674-679 (2007).
- Goddard, J. -P., Reymond, J. -L. Enzyme assays for high-throughput screening. Curr Opin Biotechnol. 15 (4), 314-322 (2004).
- Helm, J. S., Hu, Y., Chen, L., Gross, B., Walker, S. Identification of active-site inhibitors of MurG using a generalizable, high-throughput glycosyltransferase screen. J Am Chem Soc. 125 (37), 11168-11169 (2003).
- Veldhuyzen, W. F., Nguyen, Q., McMaster, G., Lawrence, D. S. A light-activated probe of intracellular protein kinase activity. J Am Chem Soc. 125 (44), 13358-13359 (2003).
- Torres, M., Forman, H. J. Encyclopedia of Respiratory. Laurent, G. J., Shapiro, S. D. , Academic Press. 10-18 (2006).
- Blume-Jensen, P., Hunter, T. Oncogenic kinase signalling. Nature. 411 (6835), 355-365 (2001).
- Martin, G. S. Cell signaling and cancer. Cancer Cell. 4 (3), 167-174 (2003).
- Lothrop, A. P., Torres, M. P., Fuchs, S. M. Deciphering post-translational modification codes. FEBS Lett. 587 (8), 1247-1257 (2013).
- Graves, J. D., Krebs, E. G. Protein phosphorylation and signal transduction. Pharmacol Ther. 82 (2), 111-121 (1999).
- Hafen, E. Kinases and phosphatases--A marriage is consummated. Science. 280 (5367), 1212-1213 (1998).
- Westphal, R. S., Anderson, K. A., Means, A. R., Wadzinski, B. E. A signaling complex of Ca2+-calmodulin-dependent protein kinase IV and protein phosphatase 2A. Science. 280 (5367), 1258-1261 (1998).
- Barford, D., Das, A. K., Egloff, M. -P. The structure and mechanism of protein phosphatases: Insights into catalysis and regulation. Annu Rev Biophys Biomol Struct. 27, 133-164 (1998).
- Liu, Q., Qu, J., Zhao, M., Xu, Q., Sun, Y. Targeting SHP2 as a promising strategy for cancer immunotherapy. Pharmacol Res. 152, 104595(2020).
- Pan, J., Zhou, L., Zhang, C., Xu, Q., Sun, Y. Targeting protein phosphatases for the treatment of inflammation-related diseases: From signaling to therapy. Signal Transduct Targeted Ther. 7 (1), 177(2022).
- Denard, C. A., et al. YESS 2.0, a tunable platform for enzyme evolution, yields highly active TEV protease variants. ACS Synth Biol. 10 (1), 63-71 (2021).
- Lim, S., Glasgow, J. E., Filsinger Interrante, M., Storm, E. M., Cochran, J. R. Dual display of proteins on the yeast cell surface simplifies quantification of binding interactions and enzymatic bioconjugation reactions. Biotechnol J. 12 (5), (2017).
- Yi, L., et al. Engineering of TEV protease variants by yeast ER sequestration screening (YESS) of combinatorial libraries. Proc Natl Acad Sci USA. 110 (18), 7229-7234 (2013).
- Yi, L., et al. Yeast endoplasmic reticulum sequestration screening for the engineering of proteases from libraries expressed in yeast. Methods Mol Biol. 1319, 81-93 (2015).
- Semenza, J. C., Hardwick, K. G., Dean, N., Pelham, H. R. ERD2, a yeast gene required for the receptor-mediated retrieval of luminal ER proteins from the secretory pathway. Cell. 61 (7), 1349-1357 (1990).
- Mei, M., et al. Characterization of aromatic residue-controlled protein retention in the endoplasmic reticulum of Saccharomyces cerevisiae. J Biol Chem. 292 (50), 20707-20719 (2017).
- Ezagui, J., Russell, B., Mairena, Y., Stern, L. A. Endoplasmic reticulum sequestration empowers phosphorylation profiling on the yeast surface. AIChE J. 68 (12), e17931(2022).
- Kawai, S., Murata, K. Genetic Transformation Systems in Fungi. van den Berg, M. A., Maruthachalam, K. 1, Springer International Publishing. 187-192 (2015).
- Kawai, S., Hashimoto, W., Murata, K. Transformation of Saccharomyces cerevisiae and other fungi: methods and possible underlying mechanism. Bioeng Bugs. 1 (6), 395-403 (2010).
- Loock, M., et al. High-efficiency transformation and expression of genomic libraries in yeast. Methods Protoc. 6 (5), 89(2023).
- Huang, D., Gore, P. R., Shusta, E. V. Increasing yeast secretion of heterologous proteins by regulating expression rates and post-secretory loss. Biotechnol Bioeng. 101 (6), 1264-1275 (2008).
- Yu, B., et al. Targeting protein tyrosine phosphatase SHP2 for the treatment of PTPN11-associated malignancies. Mol Cancer Ther. 12 (9), 1738-1748 (2013).
- Stern, L. A., et al. Geometry and expression enhance enrichment of functional yeast-displayed ligands via cell panning. Biotechnol Bioeng. 113 (11), 2328-2341 (2016).
- Pan, X., et al. Optimized single-cell gates for yeast display screening. Protein Eng Design Sel. 38, gzae018(2025).
- Margittai, É, et al. Production of H2O2 in the endoplasmic reticulum promotes in vivo disulfide bond formation. Antioxid Redox Signal. 16 (10), 1088-1099 (2012).
- Werner-Washburne, M., Braun, E., Johnston, G. C., Singer, R. A. Stationary phase in the yeast Saccharomyces cerevisiae. Microbiol Rev. 57 (2), 383-401 (1993).
- Ezagui, J., Stern, L. A. Tyrosine phosphorylation screening on the yeast surface by magnetic bead selection and FACS. Methods Mol Biol. 2681, 275-290 (2023).
- Yarnall, M. T. N., Kim, S. H., Korntner, S., Bishop, A. C. Destabilization of the SHP2 and SHP1 protein tyrosine phosphatase domains by a non-conserved “backdoor” cysteine. Biochem Biophys Rep. 32, 101370(2022).
- Dustin, C. M., Heppner, D. E., Lin, M. J., van der Vliet, A. Redox regulation of tyrosine kinase signalling: more than meets the eye. J Biochem. 167 (2), 151-163 (2020).
- Stern, L. A., Csizmar, C. M., Woldring, D. R., Wagner, C. R., Hackel, B. J. Titratable avidity reduction enhances affinity discrimination in mammalian cellular selections of yeast-displayed ligands. ACS Comb Sci. 19 (5), 315-323 (2017).
- Waldman, A. C., Rao, B. M., Keung, A. J. Mapping the residue specificities of epigenome enzymes by yeast surface display. Cell Chem Biol. 28 (12), 1772-1779.e4 (2021).
访问受限。请登录或开始试用以查看此内容。
重印与许可
