该工作流程利用低温三重共定位成像平台,能够针对尺寸微小(轴向尺寸<1 μm)且数量稀少(每细胞仅1个拷贝)的荧光标记生物结构进行薄片制备。该平台将荧光显微镜、聚焦离子束刻蚀和扫描电子显微镜集成于同一焦平面,可在刻蚀过程中同步进行荧光成像。
本文内容
摘要
摘要
冷冻聚焦离子束切割结合扫描电子显微镜(CryoFIB-SEM)已成为 用于冷冻电子断层扫描(CryoET)的细胞样品制备中,制备厚度小于200 nm的薄片目前主要采用CryoFIB-SEM技术。近年来,荧光显微镜已被整合至CryoFIB-SEM系统中,以引导薄片制备过程定位荧光标记的目标结构。然而,在大多数现有系统中,光学成像系统与离子束成像系统在真空腔内不同区域具有各自独立的焦平面,实质上相当于两台独立的显微镜。该构型需要在不同成像模式之间进行图像配准,而这种配准通常难以达到可靠定位小尺寸、稀有结构所需的精度 原位我们提出了一种基于定制的三重共定位成像平台的工作流程,可实现荧光成像与聚焦离子束刻蚀的同步进行。该方法能够提供实时荧光反馈,用于判断何时终止刻蚀,从而在最终的薄片样品中保留目标荧光标记结构。利用该方法,我们针对玻璃化处理的巨噬细胞中的微管组织中心(MTOC)进行了靶向制样,并成功实现了 >60% 的成功率,后续通过冷冻电子断层扫描和相关联的光学与电子显微镜技术确认。
引言
冷冻电子断层扫描技术(CryoET)能够在接近天然的状态下以大分子分辨率可视化生物样本1,2,3,4,5,6,7,8,9,10,11。然而,真核细胞的厚度通常达数微米,超过了300 kV电子的平均自由程(约300 nm),从而限制了未散射电子的穿透深度,进而制约了可使用的样本厚度。为解决这一问题,可采用聚焦离子束(FIB)对低温保存的细胞进行消融 ,该过程称为CryoFIB切片,可制备出足够薄的片层以用于CryoET成像12,13,14,15,16。
在先前报道的工作流程中,样品首先通过浸入式冷冻技术在玻璃态冰中固定17,18,19,然后装载到配备有冷冻聚焦离子束(CryoFIB)和扫描电子显微镜(SEM)的双束仪器中。可利用SEM成像识别感兴趣的亚细胞结构,例如细胞器,甚至某些蛋白质结构20,21。这些信息可用于指导CryoFIB切削过程,通过逐步刻蚀样品,最终制备出厚度小于200 nm、适用于冷冻电子断层扫描(CryoET)的薄片13,14,22。然而,该方法存在两个关键挑战,本实验方案旨在解决这些问题。首先,常常需要对特定的蛋白质结构进行CryoET分析,但SEM成像可能造成损伤,且大多数蛋白质结构在对未染色生物样品进行SEM成像时难以分辨。如何在不造成损伤的前提下,精确引导切削至特定的亚细胞区域或含有特定生物分子的区域?其次,即使在成功制备出薄片并完成后续的CryoET成像后,由于分辨率不足、信噪比低和/或对比度不够,仍难以在最终的三维重构图像中明确识别特定的生物分子。如何确定这些生物分子在CryoET三维重构图像中的空间位置?
为了应对上述两项挑战,研究领域 increasingly 转向荧光显微镜技术。通常使用基因编码的荧光蛋白或可结合靶蛋白的外源性染料,对特定目标生物分子进行标记5,23,24。在样品切削后,对玻璃态冷冻细胞进行低温荧光显微成像,可将其结果与相应的断层扫描图像进行关联。该方法被称为低温关联光镜与电镜(cryogenic correlative light and electron microscopy, CryoCLEM),已发展成熟,并被广泛用于在低温电子断层重建(CryoET reconstructions)中定位特定蛋白质5,12,23,24。近年来的技术进展包括采用荧光生物传感器和超分辨率成像方法,以提升所获取信息的互补性与空间精度25,26,27,28,29。
冷冻关联显微技术(CryoCLEM)是克服上述第二个挑战的一种方法,可确定特定蛋白质在薄片中的位置。然而,如果最终的薄片不包含目标蛋白质,则CryoCLEM对用户毫无帮助。幸运的是,荧光显微镜也可用于引导聚焦离子束(FIB)对标记的兴趣区域进行切削。尽管荧光引导的FIB切削技术相较于CryoCLEM属于较新的发展,其初步工作流程大约在十年前出现12,但该技术已迅速获得广泛应用。早期的实验方案依赖外部光学显微镜获取二维或三维荧光数据集,随后在将样品转移至冷冻聚焦离子束-扫描电镜(CryoFIB-SEM)后,将这些数据与SEM和离子束图像进行配准。最近,荧光显微镜已被直接集成到CryoFIB-SEM的真空腔室中。这种集成减少了样品转移过程中的冰污染,并更便于对最终薄片进行成像。目前已有多个平台被开发出来,将荧光显微镜与CryoFIB-SEM结合,用于实现荧光引导的切削。这些方法已成功靶向细胞器和大型蛋白质复合物5,23,24。然而,除少数例外情况30,光学路径在真空腔室内不同的物理区域产生独立的焦平面,与FIB-SEM的位置不一致。因此,仍需精确地将荧光图像与离子束图像进行配准,以指导切削过程,这与使用独立光学显微镜时的要求相同。
由于三个关键因素,该配准过程容易产生误差:折射率不匹配(导致明显的焦平面偏移)31,32、铣削过程中样品的移动,以及定位误差。此外,配准通常依赖微米级的荧光标记物,这些标记物在离子束和光学成像模式下均可见,并被用作对齐点对,以计算离子图像与光学图像之间的变换关系。然而,这些微珠可能遮挡或干扰样品自身的荧光信号,且其在光学图像与离子图像之间的定位和对齐过程缓慢且高度依赖人工操作。这些限制因素共同导致难以常规性地定位小型且稀有的结构。尽管目前难以明确定义可在薄片层中成功保留的结构尺寸下限,但基于配准的方法通常被认为在捕获轴向尺寸小于一微米的目标时效果不佳33。
本文报道了一种三重共焦成像系统,该系统在同一焦平面上整合了聚焦离子束(FIB)、扫描电子显微镜(SEM)和荧光显微镜34,35。该配置通过消除光学图像与离子图像之间的配准需求,使得相较于非共焦整合系统,荧光引导的切削过程更简便且更精确。在背景信号低而目标信号高的理想条件下,引导精度可达约10 nm36。此外,该系统还能够在整个切削过程中获取多色低温荧光显微图像,包括最终的超薄薄片样品,从而实现对衍射极限以下目标结构的关联分析与精确定位35。为实现这一目标,我们采用了一套定制的图像转换工具包,将这些荧光图像与低倍透射电子显微镜图像进行精确对齐,以确定进行冷冻电子断层扫描(CryoET)的采样区域,从而简化数据采集流程,并确保目标结构在最终的断层重建中被成功捕获。
为了引导切削过程,我们利用该系统实时监测荧光强度变化的能力。用户无需尝试对齐光学图像与离子图像来定位目标,而只需观察样品发出的荧光信号。随着切削的进行,荧光表现出非常典型的变化规律:首先,当位于显微镜物镜与荧光标记样品之间的碳支持膜被去除时,荧光信号会增强;随后,随着离焦的自发荧光物质被逐渐切削掉,荧光信号缓慢减弱;最后,当被标记的结构本身部分被移除时,荧光信号急剧下降。这种实时信号可精确判断切削进程中的当前位置以及何时停止切削,从而确保目标结构保留在最终的薄片中37。在详细方案中,我们还将讨论一种更先进的方法,该方法利用由于干涉效应引起的荧光亮度振荡,来引导对轴向尺寸小于<300 nm 的目标结构进行切削。
我们通过靶向微管组织中心(MTOC)38来展示该平台的实用性。MTOC 是参与细胞分裂和分化的关键细胞器。在哺乳动物细胞中,标记微管蛋白的荧光显微镜观察显示,活细胞中的 MTOC 为一个直径约 1 µm 的单一荧光点状结构。该方法已成功用于高保真地定位玻璃化细胞薄片中的 MTOC。后续的断层重建揭示了 MTOC 处微管的精细结构及其与其他细胞器的相互作用。该工作流程实现了高精度的关联荧光显微镜与 CryoFIB-SEM 技术,无需图像配准,减少了人为干预,同时拓展了对以往因尺寸过小而难以通过非共定位方法稳定捕获的细胞结构的研究途径。
定义与仪器描述
集成光学显微镜的详细说明见 Boltje 等人35,关于该集成显微镜使用的更多细节可参见近期发表的一份实验方案34。物镜从下方集成,并具备 x、y 和 z 方向的定位能力,以实现与聚焦离子束-扫描电子显微镜(FIB-SEM)共焦点的对准。 目前使用的是 100 倍、数值孔径(NA)为 0.85 的物镜,并配有盖玻片校正环。光学成像通过盖玻片进行,该盖玻片可保护物镜免受聚焦离子束(FIB)和扫描电子显微镜(SEM)产生的溅射材料及辐射的影响。宽场照明由一组覆盖多个可见光波长的发光二极管(LED)提供。荧光信号检测采用科学级互补金属氧化物半导体(sCMOS)探测器。系统设有三个确定的载物台位置:装载位——用于装载样品的载物台位置;镀膜位——通过气体注入系统进行镀膜的载物台位置;三束位——在此位置可实现聚焦离子束(FIB)、扫描电子显微镜(SEM)和光学显微镜三种成像系统的共同对准。
方案
注意:此处使用的三重共定位系统是一种定制的低温荧光成像组件,集成于市售的双束聚焦离子束-扫描电子显微镜(FIB-SEM)系统中。该系统的原理和操作顺序可为未来三重共定位系统的实现提供通用参考。
1. 设置
- 将系统冷却至低温。使用两个传感器监测温度:一个位于样品台,另一个位于腔室内。保持样品台温度比腔室温度约高 20 °C(例如,样品台约 -170 °C,腔室约 -190 °C),以尽量减少样品上结冰。冷却过程通常需要约 1.5 小时。
2. 样品上样
- 当系统温度接近低温(约 -167.5 °C)时,使用液氮手动冷却转移站。系统温度显示在光学显微镜软件的左上角。
- 将一个已剪切的 Autogrid 装入专为低温光学显微镜系统设计的样品盒中。该样品盒由粘附的盖玻片和间隔垫组成,Autogrid 置于二者之间。通过拧紧环形螺钉封闭样品盒,然后将其插入转移站的插槽中34。
- 将转移站连接至系统,并使用腔内摄像头引导样品盒进入样品台。
3. 用于样品镀膜的气体注入系统(GIS)
- 打开光学显微镜控制软件,将样品台从装载位置移至镀膜位置。
- 使用FIB-SEM控制软件,点击雪花图标插入GIS针。在GIS控制界面下,选择插入GIS针选项。
- 开启气体流量,进行30秒的GIS沉积。
注意:根据样品类型不同,时间可在20秒至1分钟之间调整。此步骤的目的是在后续FIB切割过程中充分保护样品。 - 缩回GIS针,将样品台移回预设的装载位置。
4. 三光束系统准直
注意:本节改编自 Wang39。
- 在光学显微镜软件中,将样品台从装载位置移至预设的三束位置。
- 在FIB-SEM软件中,单击左上角窗口,并将SEM设置为100倍的放大倍数。
- 在光学显微镜软件的“对齐”选项卡中,单击“查看”功能以获取载网的SEM图谱。该图谱图像使用先前设定的参数。
- 识别一个碳膜破裂的方形区域,并在其上双击,将样品台移至该位置。
- 返回FIB-SEM控制软件,将SEM调整至更高放大倍数,以聚焦于视野中心选定的方形区域。
- 根据需要重复步骤4.4和4.5,直至SEM聚焦于可辨识的图案,例如破裂碳膜的锐利边缘。
- 打开荧光显微镜,并调节x、y、z坐标,使其与SEM视图一致。
- 使用FIB铣削出一个小图案,例如一个小矩形或圆形。
- 确认该图案在FIB和荧光显微镜视图中均可见。如有必要,按照步骤4.3–4.7调整对齐。
注意:光学显微镜与离子显微镜的对齐和配准已完成。
5. 目标定位与切削
注意:本节改编自 Wang39。
- 进入光学显微镜软件中的定位 选项卡,通过启用适当的激发和滤光条件来设置荧光通道。将每种荧光染料指定为独立的通道,并添加一个用于透射光(或明场)的额外通道。
- 通过调节每个荧光通道的LED功率和曝光时间,识别目标结构。作为参考,在对SiR-微管蛋白成像时,使用1.2秒的曝光时间和30 mW的恒定LED功率。
注意:不同荧光染料的参数可能有所不同。样品处的光强应保持在约25–50 W/cm2以下。超过此强度可能导致样品显著加热和玻璃态转变37,40。 - 确认参数满意后,沿轴向采集预切片前的荧光z-stack图像,然后将目标标记为感兴趣区域(ROI)。
- 切换至FIB-SEM软件,在ROI位置绘制薄片(lamella)。
- 进行粗切,去除ROI上下约3 µm范围内的大部分材料。同时,在切削过程中保持荧光显微镜开启,以监测荧光信号是否减弱。
- 使用清洁截面模式将ROI减薄至约2 µm。
- 从终端打开基于Python的干涉测量工具包,以便在减薄薄片过程中监测荧光信号(https://github.com/pdahlb/trico_softwaresuite)36。
- 对于后续的切削和抛光步骤,请根据所选目标的尺寸,采用以下步骤5.9或5.10中描述的两种方法之一来引导切削。
- 目标的轴向尺寸 > 300 nm
注意:此处将采用半破坏性方法来引导切削。- 在Python-GUI中,于荧光显微图像上选择感兴趣的目标。软件将自动开始绘制每一新帧的亮度随时间变化曲线。
- 通过Python工具包监测荧光强度。若适用,使用清洁截面模式从下方切削,以去除残留的支撑膜材料。
注意:当支撑膜被去除后,应观察到荧光信号增强。 - 以荧光强度的快速下降——表明荧光物质丢失——作为切换切削方向的提示。例如,若从底部向上切削时观察到荧光急剧下降,则停止切削并切换为从顶部向下切削。
注意:若结构被过快移除,请在FIB-SEM软件中降低切削电流,以减缓目标的去除速度。
- 目标的轴向尺寸 ≤ 300 nm
注意:此处将利用干涉效应来引导切削36。- 在Python-GUI中,于荧光显微图像上选择感兴趣的目标。软件将自动开始绘制每一新帧的亮度随时间变化曲线。
- 首先从顶部向下对一个测试目标进行切削。在即将切穿目标前,通过荧光强度监测条纹对比度。荧光目标会持续拟合为二维高斯函数,利用该拟合获得积分强度并进行绘图。
- 当目标被完全切穿后,使用Python-GUI将强度轨迹中的振荡拟合到以下模型函数:
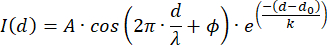
其中A为振荡的振幅,λ为激发光波长,k为表示光源相干长度的衰减项,Φ为相位因子,d为成像物体的距离。通过测试目标,所有参数均可在合理范围内预测,因此距离d是唯一用于告知用户荧光物体相对于切削位置的自由变量。详见Sica等人的研究36。
注意:对于后续目标,该工具包将实时使用相同模型函数拟合强度轨迹,并估计从顶部向下切削的停止位置。所有拟合均与切削过程同步进行。目标是在目标位于顶面下方等于所需薄片厚度一半的深度时停止切削。 - 完成从顶部向下的切削后,切换为从底部向上以清洁截面模式进行切削,直至达到所需厚度,完成薄片制备。
- 目标的轴向尺寸 > 300 nm
- 采集切削完成后的荧光图像。
6. 相关光镜与倾斜系列图像采集
- 将样品转移至冷冻透射电镜后,在182倍放大倍数下采集载网的全景图谱,以充分覆盖整个载网区域。
- 在6,500倍至11,000倍之间的适当中等放大倍数下,采集最终薄片在0°倾转角下的系列拼接图像。
- 将步骤6.2中获得的铣削后多通道荧光图像和投影图像导入自定义的投影变换软件,用于感兴趣区域(ROI)配准(https://github.com/pdahlb/CLEM_software_suite.git)。
- 选取总共8–10对参考点,以精确计算投影图像的变换关系。
注意:这些参考点可以是明场光学显微镜和电子显微镜图像中均可见的明显特征(例如薄片区边缘、可见的冰污染或开放的载网孔洞)。
7. 高倍率倾斜系列图像采集
- 使用此叠加的荧光与透射电子显微镜图像作为参考,供用户在相机帧尺寸限制范围内选择成像区域,以进行高倍倾斜系列数据采集。
- 根据生物学问题选择倾斜系列的放大倍数和参数。
注意:在本演示中,我们以3.5 Å的像素尺寸,从54°开始以2°为增量进行数据采集41,42,43。
结果
我们在冷冻前使用微管标记物SiR-tubulin对已分化的巨噬细胞进行标记。根据实验方案,我们在荧光显微镜下将微管组织中心(MTOC)识别为一个直径约1 µm的单一荧光点状结构(图1A)。此外,我们观察到从MTOC向细胞周边辐射的纤维样荧光结构,这与微管网络的特征一致(图1A)。不同样品厚度下的逐步切削成像截图如图1B所示。值得注意的是,当切片厚度达到约800 nm时,原本单一的MTOC荧光点状结构分解为两个相邻的斑点,每个斑点直径约为700 nm。后续分析证实,每个斑点对应一个独立的中心粒。
同步成像与切削使我们能够实时监测荧光强度的变化。值得注意的是,在去除大量非荧光材料及吸收性支撑膜后,荧光信号有所增强(图1B-D)。当薄片从2 µm减薄至800 nm时,荧光强度急剧下降,反映出标记结构被逐步去除。随着薄片进一步减薄至200 nm以下,荧光强度的下降趋势持续存在(图1B-D)。关联的荧光图像与电子显微镜图谱表明,我们的工作流程可实现对切削位置的精确定位(图2A)。重建的断层图像及分割模型显示,中心粒由微管三联体构成,与以往报道一致42,43,44,45(图2A,B)。在最终薄片中仅保留一个荧光斑点的情况下,相应断层图像中可观察到单个中心粒(图2B)。
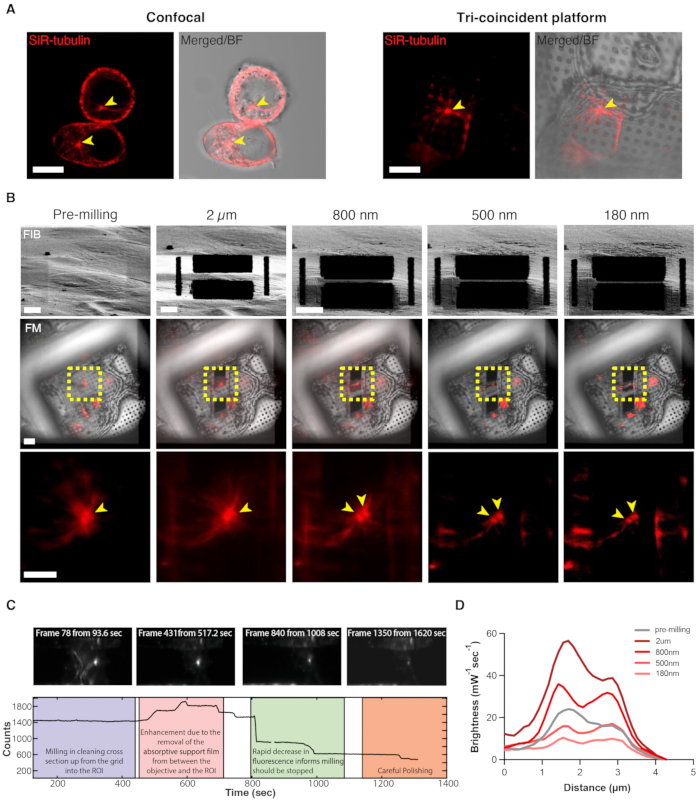
图1:三重共定位CryoFM-FIB-SEM用于精确识别微管组织中心的工作流程。(A)(左)活细胞显微成像与(右)MTOC的低温荧光显微成像。比例尺 = 10 µm。(B)低温荧光显微成像与低温聚焦离子束切削过程中的逐步图像。放大后的荧光显微视图以黄色虚线框标示。中心粒以黄色箭头标记。比例尺 = 5 µm。(C)低温聚焦离子束切削过程中MTOC的荧光强度变化。(D)在低温聚焦离子束切削不同阶段穿过MTOC的荧光线强度分布图。缩写:CryoFM-FIB-SEM = 低温荧光显微成像结合聚焦离子束切削与扫描电子显微成像;MTOC = 微管组织中心;ROI = 感兴趣区域。本图改编自Wang39。请点击此处查看该图的放大版本。
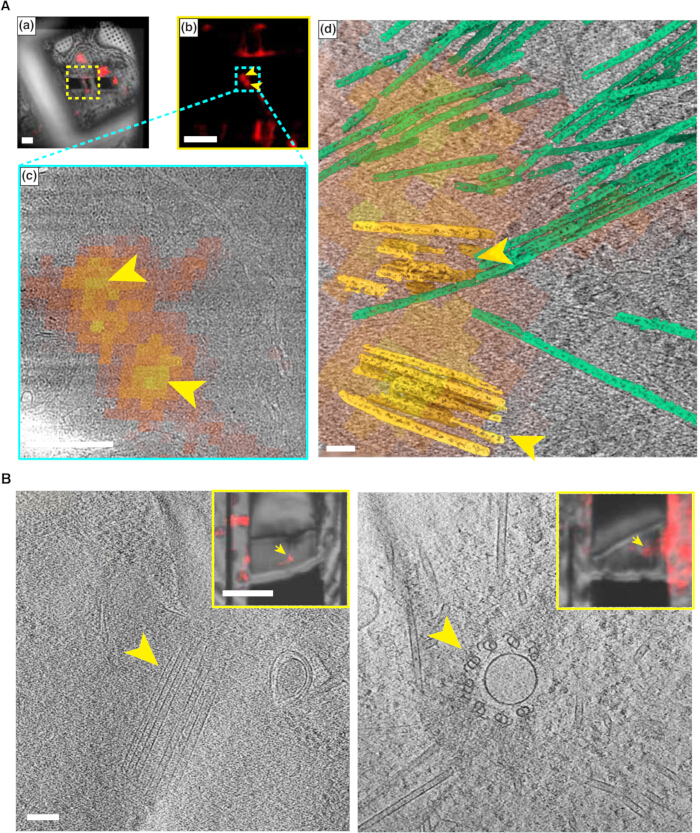
图 2:通过三重共定位CryoFM-FIB-SEM工作流程揭示的MTOC分子细节。(A)MTOC的关联荧光显微镜(FM)、电子显微镜(EM)图像及分割模型。(a)切片后的FM图像。此图像与图1B最后一个面板中标记为180 nm的图像相同,但已旋转以匹配冷冻电子断层扫描(CryoET)重建和分割结果。比例尺 = 5 µm;(b)(a)中黄色虚线区域的放大视图;(c)(2)中青色虚线区域对应的FM与透射电子显微镜(TEM)投影图像。比例尺 = 1 µm;(d)感兴趣区域的断层重建分割模型(黄色:中心粒;绿色:微管)。比例尺 = 100 nm。(B)两个不同切片中呈现不同中心粒取向的代表性FM图像及断层切片。FM:比例尺 = 5 µm;断层切片:比例尺 = 200 nm。缩写:CryoFM-FIB-SEM = 冷冻聚焦离子束切削结合扫描电子显微镜;MTOC = 微管组织中心;FM = 荧光显微镜;ET = 电子透射;TEM = 透射电子显微镜。本图改编自Wang39。请点击此处查看此图的放大版本。
讨论
我们的结果突显了三重共定位成像平台的实用性,该平台能够实现荧光成像与铣削的同步进行。利用这一反馈机制,我们展示了两种荧光引导铣削策略——半破坏性和干涉测量法——这些方法避免了繁琐的、基于配准的方法,而后者因折射率不匹配以及铣削过程中的运动问题而面临根本性的精度限制12,33,46。此外,由于精确引导依赖于荧光显微镜而非扫描电镜(SEM),只要光强保持在引发失透现象的阈值以下,光学辐射就不会造成可检测的损伤37,47。本文所展示的能力拓展了可研究生物样本的范围,使其涵盖稀有且微小(轴向尺寸<300 nm)的目标区域,同时简化了操作流程。
本方案的关键步骤是根据目标区域荧光亮度的变化来确定何时停止研磨。目前,该过程需要快速进行人工干预,以在理想时间点停止研磨。该方法对于目前已探索的目标已证明足够有效,但未来可进一步将Python工具包整合到FIB系统中,以实现研磨的自动终止。如果需要更快的研磨速率,则可能必须进行此项改进,因为更快的速率会缩短人工干预的时间窗口。或者,如果可以接受较慢的研磨速率,则在需要时可为人工干预提供更充足的时间。
在生成含有目标生物结构的 lamella 后,我们定制的图像转换软件能够利用 lamella 的图谱概览,在 CryoTEM 水平上实现关联成像,从而指导 CryoET 数据的采集。 总体而言,本文所述的方案对于在较厚的真核细胞样品中通过低温电子断层扫描技术对荧光标记的小型且稀有的生物靶标进行成像至关重要。与现有的非共定位 Cryo-FIB 系统(如配备 iFLM 的 Aquilos 2)相比,我们的工作流程在靶向这些结构方面具有更高的成功率。
这种高靶向精度确实会以效率为代价。由于切片过程是手动而非自动化的,因此片层制备的通量受到限制。在一个8小时的切削过程中,我们通常可制备6至8个片层,其中约有五个包含目标结构。然而,我们认为该工作流程未来有望实现自动化,以提高通量。实现自动化需要开发定制脚本,用于持续监测聚焦离子束(FIB)图像中的活跃切削区域,并实时追踪荧光强度,以确保目标结构得以保留。目前仍存在一些关键挑战,包括如何在所有定制脚本与冷冻聚焦离子束-扫描电镜(CryoFIB-SEM)及荧光显微镜的控制软件之间建立有效的通信机制。
展望未来,仍需开展大量工作,以整合前文讨论的其他先进荧光显微技术,包括荧光生物传感器、超分辨率成像和共聚焦显微镜。尽管如此,我们预计三重共线几何结构将成为未来仪器的标准配置,且在切片过程中同步进行荧光成像也将成为常规操作。若如此,本方案可为研究人员提供有价值的指导,帮助他们捕捉那些尽管体积微小且数量稀少,却在细胞生物学中处于核心地位的生物结构的分子尺度细节。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Delmic团队成员在成像工作流程开发方面提供的帮助。P.D.D. 部分受美国能源部实验室主导研究与开发项目(合同号DE-AC02-76SF00515)下SLAC国家加速器实验室Panofsky奖学金的支持,并受美国能源部科学办公室生物与环境研究办公室(合同号DE-AC02-76SF00515 FWP 100883)资助。本工作部分由美国国立卫生研究院资助项目AI127401(资助G.J.J.)支持。J.W. 受陈-扎克伯格倡议DAF(硅谷社区基金会下属建议基金)资助项目2021-234593的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Aquilos 2 Cryo-FIB | ThermoFisher Scientific | https://www.thermofisher.com/us/en/home/electron-microscopy/products/dualbeam-fib-sem-microscopes/aquilos-cryo-fib.html?cid=msd_ls_xseg_xmkt_sdb-aquilos_285811_na_pso_gaw_pei90m &gad_source=1&gad_campaignid=12 764255901&gbraid=0AAAAADxi_GS s7OvZmg4cgCUm0PjSiq9X9&gclid= Cj0KCQjwh5vFBhCyARIsAHBx2w xlIfYHMvqY3sSWu6oEAdUynCSf9 KRg9Jhjp7l0Dot9qTl6GyQaEo8aAiy 2EALw_wcB | |
| Autogrid 兼容冷冻载网盒 | Electron Microscopy Sciences | https://www.emsdiasum.com/autogrid -compatible-cryo-grid-box?srsltid= AfmBOorQAd3esD8fLmnDDO2TvrNk cj4UINXFnPSMgrpEmkWd0H7ImUq7 | |
| Autogrid 环与 C 型夹 | Nanosoft | https://www.nanosoftmaterials.com/product-page/100-pack-autogrid-rings-c-clips | |
| CLEM 软件套件 | 斯坦福大学/SLAC 达尔伯格研究组 | https://github.com/pdahlb/CLEM_software_suite.git | |
| Dragonfly 2022.1 | Object Research Systems | https://dragonfly.comet.tech/ | |
| ENZEL | Delmic B. V. | ENZEL 系统为定制化仪器,目前尚未商业化 | |
| IMOD 4.12 | 科罗拉多大学 | https://bio3d.colorado.edu/imod/ | |
| LD4 液氮杜瓦瓶 | Nanosoft | https://www.nanosoftmaterials.com/product-page/ld4-liquid-dewar-4-liters | |
| MATLAB 2023 | MathWorks | https://www.mathworks.com/products/matlab.html | |
| 针盖操作工具 | Nanosoft | https://www.nanosoftmaterials.com/product-page/pin-lid-manipulator-tool | |
| Python 工具包 | 斯坦福大学/SLAC 达尔伯格研究组 | https://github.com/pdahlb/trico_softwaresuite | |
| Quantifoil R2/2,疏水型,200 目,金质透射电镜载网 | Electron Microscopy Sciences | https://www.emsdiasum.com/quantifoil-r-22-lf-200-mesh-gold | |
| Serial EM | 科罗拉多大学博尔德分校 | https://bio3d.colorado.edu/SerialEM/ | |
| Spearlab 标准样品转移杜瓦瓶 | Nanosoft | https://www.nanosoftmaterials.com/product-page/spearlab-standard-vessel | |
| 镊子 | Electron Microscopy Sciences | https://www.emsdiasum.com/style-3sa |
参考文献
- Komeili, A., Li, Z., Newman, D. K., Jensen, G. J. Magnetosomes are cell membrane invaginations organized by the actin-like protein MamK. Science. 311 (5758), 242-245 (2006).
- Bykov, Y. S., et al. The structure of the COPI coat determined within the cell. eLife. 6, e32493(2017).
- Mahamid, J., et al. Visualizing the molecular sociology at the HeLa cell nuclear periphery. Science. 351 (6276), 969-972 (2016).
- Xue, L., et al. Visualizing translation dynamics at atomic detail inside a bacterial cell. Nature. 610 (7930), 205-211 (2022).
- Hampton, C. M., et al. Correlated fluorescence microscopy and cryo-electron tomography of virus-infected or transfected mammalian cells. Nat Protoc. 12 (1), 150-167 (2017).
- Oikonomou, C. M., Jensen, G. J. Cellular electron cryotomography: Toward structural biology in situ. Annu Rev Biochem. 86 (1), 873-896 (2017).
- Grimm, R., et al. Electron tomography of ice-embedded prokaryotic cells. Biophys J. 74 (2), 1031-1042 (1998).
- Medalia, O., et al. Macromolecular architecture in eukaryotic cells visualized by cryoelectron tomography. Science. 298 (5596), 1209-1213 (2002).
- Tamborrini, D., et al. Structure of the native myosin filament in the relaxed cardiac sarcomere. Nature. 623 (7988), 863-871 (2023).
- Kaplan, M., et al. Bdellovibrio predation cycle characterized at nanometre-scale resolution with cryo-electron tomography. Nat Microbiol. 8 (7), 1267-1279 (2023).
- Schur, F. K. M., et al. An atomic model of HIV-1 capsid-SP1 reveals structures regulating assembly and maturation. Science. 353 (6298), 506-508 (2016).
- Arnold, J., et al. Site-specific cryo-focused ion beam sample preparation guided by 3D correlative microscopy. Biophys J. 110 (4), 860-869 (2016).
- Lam, V., Villa, E. Practical approaches for cryo-FIB milling and applications for cellular cryo-electron tomography. cryoEM: Methods and Protocols. , Springer. 49-82 (2020).
- Rigort, A., Plitzko, J. M. Cryo-focused-ion-beam applications in structural biology. Arch Biochem Biophys. 581, 122-130 (2015).
- Noble, A. J., de Marco, A. Cryo-focused ion beam for in situ structural biology: State of the art, challenges, and perspectives. Curr Opin Struct Biol. 87, 102864(2024).
- Rigort, A., et al. Focused ion beam micromachining of eukaryotic cells for cryoelectron tomography. Proc Natl Acad Sci U S A. 109 (12), 4449-4454 (2012).
- Iancu, C. V., et al. Electron cryotomography sample preparation using the Vitrobot. Nat Protoc. 1 (6), 2813-2819 (2006).
- Dobro, M. J., Melanson, L. A., Jensen, G. J., McDowall, A. W. Plunge freezing for electron cryomicroscopy. Methods Enzymol. 481, 63-82 (2010).
- Chang, Y. -W., et al. Correlated cryogenic photoactivated localization microscopy and cryo-electron tomography. Nat Methods. 11 (7), 737-739 (2014).
- Wu, G. -H., et al. Multi-scale 3D cryo-correlative microscopy for vitrified cells. Structure. 28 (11), 1231-1237.e3 (2020).
- Lin, C., Zhang, L., Zhang, Z., Jiang, Y., Li, X. Locating cellular contents during cryo-FIB milling using cellular secondary-electron imaging. J Struct Biol. 215 (3), 108005(2023).
- Wagner, F. R., et al. Preparing samples from whole cells using focused-ion-beam milling for cryo-electron tomography. Nat Protoc. 15 (6), 2041-2070 (2020).
- Carter, S. D., Mamede, J. I., Hope, T. J., Jensen, G. J. Correlated cryogenic fluorescence microscopy and electron cryo-tomography shows that exogenous TRIM5α can form hexagonal lattices or autophagy aggregates in vivo. Proc Natl Acad Sci U S A. 117 (47), 29702-29711 (2020).
- Guo, Q., et al. In situ structure of neuronal C9orf72 poly-GA aggregates reveals proteasome recruitment. Cell. 172 (4), 696-705.e12 (2018).
- Perez, D., et al. Identification and demonstration of roGFP2 as an environmental sensor for cryogenic correlative light and electron microscopy. J Struct Biol. 214 (3), 107881(2022).
- Sartor, A. M., Dahlberg, P. D., Perez, D., Moerner, W. E. Characterization of mApple as a red fluorescent protein for cryogenic single-molecule imaging with turn-off and turn-on active control mechanisms. J Phys Chem B. 127 (12), 2690-2700 (2023).
- Sexton, D. L., Burgold, S., Schertel, A., Tocheva, E. I. Super-resolution confocal cryo-CLEM with cryo-FIB milling for in situ imaging of Deinococcus radiodurans. Curr Res Struct Biol. 4, 1-9 (2022).
- Dahlberg, P. D., Moerner, W. E. Cryogenic super-resolution fluorescence and electron microscopy correlated at the nanoscale. Annu Rev Phys Chem. 72 (1), 253-278 (2021).
- Perez, D., et al. Exploring transient states of PAmKate to enable improved cryogenic single-molecule imaging. J Am Chem Soc. 146 (42), 28707-28716 (2024).
- Li, S., et al. ELI trifocal microscope: A precise system to prepare target cryo-lamellae for in situ cryo-ET study. Nat Methods. 20 (2), 276-283 (2023).
- Loginov, S. V., Boltje, D. B., Hensgens, M. N. F., Hoogenboom, J. P., vander Wee, E. B. Depth-dependent scaling of axial distances in light microscopy. Optica. 11 (4), 553-568 (2024).
- Petrov, P. N., Moerner, W. E. Addressing systematic errors in axial distance measurements in single-emitter localization microscopy. Opt Express. 28 (13), 18616-18632 (2020).
- Yang, J., et al. Precise 3D localization by integrated fluorescence microscopy (iFLM) for cryo-FIB-milling and in situ cryo-ET. Microsc Microanal. 29 (Suppl. 1), 1055-1057 (2023).
- Perton, E., Boltje, D., Jakobi, A., Hoogenboom, J. Workflow for fluorescence-targeted lamella milling from vitrified cells with a coincident fluorescence, electron, and ion beam microscope. Bio Protoc. 15 (14), e5390(2025).
- Boltje, D. B., et al. A cryogenic, coincident fluorescence, electron, and ion beam microscope. eLife. 11, e82891(2022).
- Sica, A. V., et al. Optical interference for the guidance of cryogenic focused ion beam milling beyond the axial diffraction limit. bioRxiv. , (2024).
- Dahlberg, P. D., Perez, D., Hecksel, C. W., Chiu, W., Moerner, W. E. Metallic support films reduce optical heating in cryogenic correlative light and electron tomography. J Struct Biol. 214 (4), 107901(2022).
- Lukinavicius, G., et al. Fluorogenic probes for live-cell imaging of the cytoskeleton. Nat Methods. 11 (7), 731-733 (2014).
- Wang, J. Direct visualization of cellular protein complexes in situ by fluorescence-guided cryo-FIB-SEM and cryo-ET. , California Institute of Technology. (2025).
- Last, M. G., Tuijtel, M. W., Voortman, L. M., Sharp, T. H. Selecting optimal support grids for super-resolution cryogenic correlated light and electron microscopy. Sci Rep. 13 (1), 8270(2023).
- Mastronarde, D. N. Automated electron microscope tomography using robust prediction of specimen movements. J Struct Biol. 152 (1), 36-51 (2005).
- Mastronarde, D. N., Held, S. R. Automated tilt series alignment and tomographic reconstruction in IMOD. J Struct Biol. 197 (2), 102-113 (2017).
- Kremer, J. R., Mastronarde, D. N., McIntosh, J. R. Computer visualization of three-dimensional image data using IMOD. J Struct Biol. 116 (1), 71-76 (1996).
- Meng, E. C., et al. UCSF ChimeraX: Tools for structure building and analysis. Protein Sci. 32 (11), e4792(2023).
- Heebner, J. E., et al. Deep learning-based segmentation of cryo-electron tomograms. J Vis Exp. (189), e64435(2022).
- Klumpe, S., et al. A modular platform for automated cryo-FIB workflows. eLife. 10, e70506(2021).
- Li, Y., Kang, D. -D., Dai, J. -Y., Wang, L. -W. The cage effect of electron beam irradiation damage in cryo-electron microscopy. npj Comput Mater. 10 (1), 115(2024).
重印与许可
