便秘是帕金森病(PD)常见的前驱症状,通常在确诊前几年就已出现。本研究验证了一种用于测量黑腹果蝇(Drosophila melanogaster)便秘的 proposed 方法,并证实了单基因PD果蝇模型中存在便秘缺陷。
本文内容
摘要
摘要
帕金森病(PD)是一种常见的神经退行性运动障碍,常伴随多种非运动症状。在这些非运动症状中,胃肠道问题(包括便秘)往往在运动障碍出现之前数年、甚至在确诊帕金森病之前就已显现。最近一项研究提出了一种在表达野生型人源α-突触核蛋白的帕金森病果蝇模型中测量便秘的方法。本研究中,我们检验了该方法的可行性,并测试了其他遗传性果蝇帕金森病模型是否同样导致便秘。我们利用现有的果蝇品系,检测了常染色体显性和隐性遗传帕金森病模型中的便秘程度,包括三种表达不同突变型人源α-突触核蛋白的黑腹果蝇(Drosophila)品系以及Pink1和Parkin基因缺陷的果蝇。这些果蝇及其相应的对照组在实验前一天被放置于蓝色食物上,以产生蓝色粪斑。实验当天,将果蝇转移至标准玉米粉培养基。每90分钟记录并计算一次蓝色粪斑占总粪斑的百分比。结果显示,不同果蝇帕金森病模型排出蓝色食物的速度较慢或排泄不完全,与各自的对照果蝇相比存在明显差异。因此,先前提出的便秘检测方法得到了验证,并成功应用于多种不同遗传形式的果蝇帕金森病模型。
引言
帕金森病(PD)是一种神经退行性疾病,主要表现为运动功能障碍,其核心诊断体征包括运动迟缓、肌强直和震颤。尽管帕金森病最广为人知的是其运动症状,但非运动症状也十分常见,包括抑郁、疼痛、睡眠障碍和便秘1,2。这些非运动症状常在疾病早期出现,甚至可能比运动症状早数年发生3。在疾病初期识别这些非运动特征,对于帕金森病的早期诊断可能具有关键意义,有助于实现更及时的干预和疾病管理。
便秘及肠道蠕动改变是帕金森病(PD)中常见的非运动症状,通常在运动症状出现之前很久就已存在3,5。此外,随着PD病情进展,这些症状的严重程度和发生频率会进一步增加5。然而,目前对PD相关便秘的模式和机制仍了解有限。因此,早期识别与PD相关的便秘可能有助于在疾病早期阶段进行诊断,此时治疗干预可能更有效地延缓疾病进展。尽管这一问题具有重要意义,但对PD中便秘潜在机制的理解仍然不足,部分原因在于缺乏合适的实验模型和研究设计。近年来,通过在黑腹果蝇(Drosophila melanogaster)中过表达人源野生型α-突触核蛋白来研究便秘的研究取得了新进展,为探讨这一早期非运动症状的潜在机制提供了有价值的工具6。
SNCA,编码α-突触核蛋白,是首个被确认的帕金森病致病原因7基因重复(重复和三重复制)和点突变 SNCA 导致帕金森病的常染色体显性遗传8值得注意的是,便秘影响高达90%的患者 SNCA 突变5此外,已发现其他多个基因在发生突变时可导致帕金森病(PD),包括 VPS35,这也导致帕金森病的常染色体显性遗传形式8其他基因,例如 PINK1 和 Parkin,当发生突变时会导致常染色体隐性遗传性帕金森病9非运动症状也出现在这些其他遗传形式的帕金森病中;然而,已有报道的数据较为有限,因此难以得出结论或深入探究其潜在机制10,11.
已为帕金森病(PD)创建了多种动物模型,包括在 黑腹果蝇12。尽管 果蝇 不包含 SNCA 基因,野生型及突变型基因的过表达可诱导帕金森病表型,包括运动症状13此外,与帕金森病相关的突变 vps35, pink1,以及 parkin 果蝇是研究相关突变基因对帕金森病(PD)影响的成熟模型12此外,能够在不同情况下测量便秘的能力 黑腹果蝇 帕金森病(PD)的模型,包括显性和隐性形式,有助于更深入地分析胃肠道功能障碍,从而更好地理解与帕金森病相关便秘的参与通路。
本文评估并验证了近期提出的一种测量便秘的方法在不同遗传性帕金森病(PD)模型中的可行性6。通过将该方法扩展应用于其他遗传性PD模型并进行相应调整,我们证实了该方法作为检测便秘或肠道运动功能改变的通用实验手段的可行性,并支持利用该方法开展修饰基因筛选,以深入揭示PD相关便秘的分子机制。
方案
本实验采用10日龄的雄性果蝇。为了过表达SNCA,使用了泛表达驱动子DaughterlessGal4。
本实验所用果蝇:
w1118;;SNCA p.A53T/DaGal4 及其对照 w1118;;SNCA p.A53T
w1118;;SNCA p.A30P/DaGal4 及其对照 w1118;;SNCA p.A30P
w1118;;SNCA p.V15A/DaGal4 及其对照 w1118;;SNCA p.V15A
w1118;;Vps35D650N/DaGal4 及其对照 w1118;;vps35D650N
w pink1B9;; 及其对照 w pink1RV;;
w1118;;parkD1/D21 及其对照 w1118;;parkRV
SNCA p.A53T、SNCA p.A30P、w*;;P(EP)park1、w*;;parkΔ21、Vps35D650N 和 DaGal4 均为商业获取(见材料表)。w pink1B9 空白突变体及其对照(w pink1RV)由韩国科学技术院的 Jeehye Park 和 Jongkyeong Chung 惠赠14。SNCA p.V15A 果蝇系此前已构建完成15。本研究所用试剂与设备详见材料表。
1. 蓝色食物的制备
- 制备新鲜的标准玉米粉果蝇培养基,并保持其温热且呈液态。
注意:可使用预先配制的果蝇培养基,但需加热使其融化成液态。标准玉米粉培养基的配方为每1 L含有50 g玉米粉、7 g酵母、7 g琼脂、13.5 g葡萄糖、10 mL乙醇(100%)、1.1 g对羟基苯甲酸甲酯、55 g糖蜜和4.8 mL丙酸。 - 将蓝色食用染料与蒸馏水按1:1的体积比混合。
- 将蓝色食用染料混合液加入标准玉米粉培养基中,使培养基充分染色,获得均匀的蓝色。
注意:本研究中采用的染料与培养基比例为1:100。 - 使用巴斯德移液管将蓝色培养基分装至大培养管中,覆盖管底即可,然后静置晾干使其凝固。
- 同时制备相同数量的不含染料的标准玉米粉培养基培养管。
- 在干燥过程中用一层薄纸巾覆盖培养管,以防止水分积聚和污染。
2. 检测的准备
- 在空的食物小瓶中放入一张湿润的沃特曼滤纸。
注意:确保将沃特曼滤纸浸湿,以便在将果蝇转移至含有蓝色培养基的小瓶时,滤纸能紧贴瓶底。 - 每只小瓶中加入15–20只果蝇,静置1小时。
注意:麻醉果蝇有助于筛选出具有正确基因型的个体。随后,使用毛刷将果蝇转移至另一小瓶中,并在25 °C条件下培养10天。转移果蝇时,需小心地将果蝇从一个瓶子翻入另一个瓶子,并使用瓶塞防止果蝇逃逸。 - 将果蝇转移至含有蓝色培养基的小瓶中,在25 °C培养箱中静置过夜。
3. 便秘实验的执行
- 次日早晨,将果蝇转移至装有标准玉米粉培养基的试剂瓶中,并放回培养箱内孵育 90 分钟。
注意:可通过将试剂瓶置于显微镜下观察,检查瓶内所有果蝇的腹部是否呈蓝色。 - 90 分钟后,计数蓝色及无色不透明斑点的数量,用彩色标记笔进行标记,记录数据,并将果蝇重新放回培养箱(图 1)。
注意:标记已计数的斑点可避免重复计数。此外,位于培养基或试剂瓶塞上的斑点应忽略不计。 - 对同一批果蝇重复步骤 4.2 共四次,以获得粪斑的时间进程数据。每次使用不同颜色的标记笔,以避免与前几轮的计数混淆。
4. 分析
- 计算每个时间点蓝色点占总点数(蓝色点和不透明点)的百分比。
- 使用不同时间点的蓝色点百分比绘制图表,并通过 GraphPad 中的“曲线下面积”分析计算并绘制曲线下面积。
- 在 GraphPad Prism 中分析数据,进行带有 Welch 校正的非配对 t 检验16。
注意:由于无法在所有群体中检验标准差是否相等,因此采用了 Welch 校正。
结果
对先前提出的果蝇便秘测量方法进行了微小调整7 并测试不同遗传性帕金森病相关果蝇模型的肠道功能。将果蝇在蓝色培养基上孵育过夜后,果蝇腹部呈现蓝色(图2)以及在果蝇食物小瓶上留下蓝色斑点的粪便图2)。随着时间的推移,蓝色腹部重新恢复为正常的黄白色腹部(图2)。此外,蓝色粪便斑点减少,观察到越来越多的黄色不透明斑点(图2)。这种从蓝色斑点到黄色斑点的转变反映了肠道蠕动或便秘的程度。在对照组果蝇中,该转变在7小时30分钟后完成,而在帕金森病相关果蝇中,蓝色培养基的清除过程则较慢(图2).
既往研究报道,在表达野生型α-突触核蛋白的10日龄果蝇中,蓝色培养基的清除延迟7,提示与对照果蝇相比,这些果蝇存在一定程度的便秘或因肠道蠕动功能改变导致的排空延迟。除了SNCA基因的重复或三倍重复外,已发现多个与帕金森病(PD)相关的SNCA致病性错义变异,我们检测了其中三种常见的SNCA致病性错义变异。表达突变型α-突触核蛋白(p.A30P、p.A53T和p.V15A)的果蝇在7小时30分钟内未能完全清除蓝色培养基,提示与对照果蝇相比,这些果蝇存在便秘现象(图3)。
α-突触核蛋白与帕金森病(PD)的常染色体显性遗传形式相关。有趣的是,α-突触核蛋白的表达会降低VPS35蛋白水平17。VPS35是逆向转运体(retromer)的一个亚基,其突变可导致帕金森病9,18,19。与对照果蝇相比,表达突变型vps35的果蝇表现出更严重的便秘症状(图4)。
Pink1 和 Parkin 缺陷的果蝇表现出蓝色培养基清除延迟;然而,在 7 小时 30 分钟后,这些突变果蝇中不再检测到蓝色粪便斑点(图 5)。
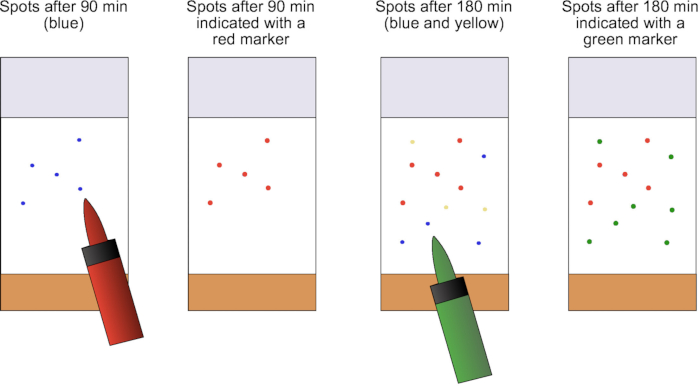
图1:使用彩色标记计数过程的示意图。90分钟后,对粪便斑点进行计数,并用一种颜色的标记标出,以防止在下一轮计数中被重复计数。在下一轮计数时,使用另一种颜色标记新增的粪便斑点。请点击此处查看该图的放大版本。
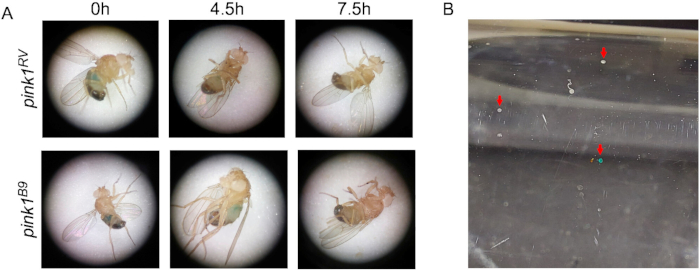
图 2:蓝色培养基导致果蝇腹部和粪斑呈蓝色。(A)对照组果蝇(pink1RV)和 pink1 突变型果蝇在 0 h、4 h 30 min 和 7 h 30 min 时间点的腹部图像显示蓝色逐渐褪去。(B)果蝇培养管中蓝色和黄色不透明粪斑用红色箭头标出。请点击此处查看该图的放大版本。
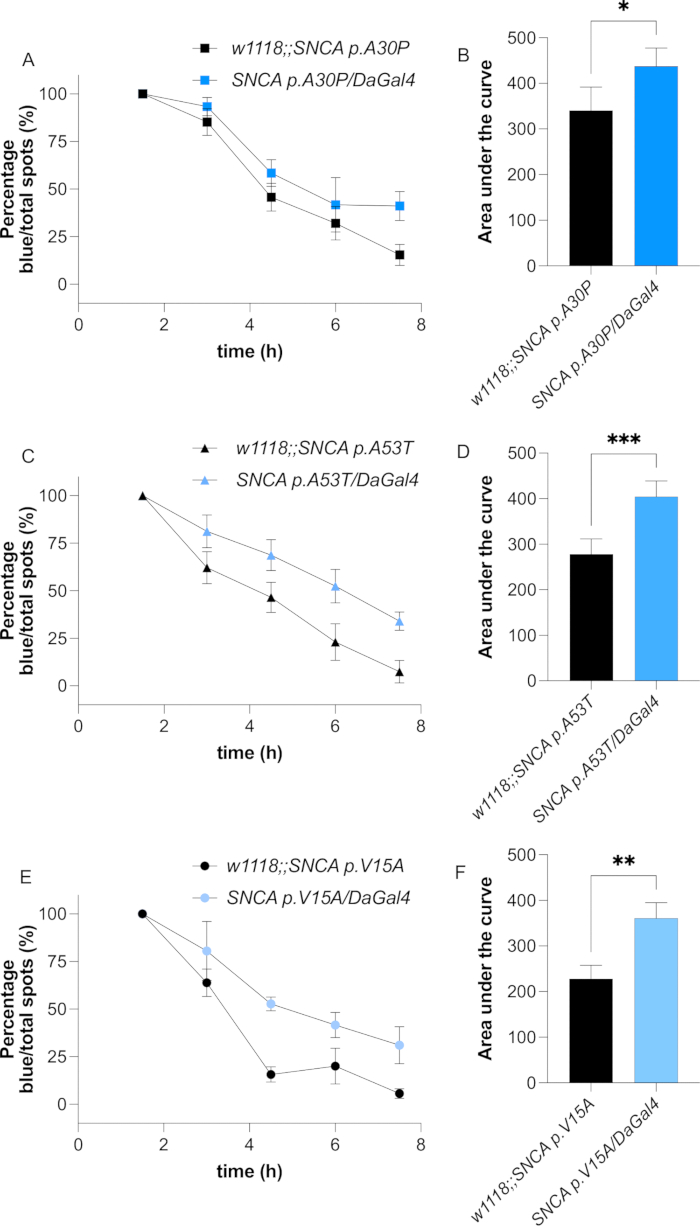
图 3:突变型 α-突触核蛋白的表达导致便秘。 在过表达 SNCA p.A30P(A)、SNCA p.A53T(C)和 SNCA p.V15A(E)的果蝇及其各自对照组中,随时间推移蓝色粪便斑点所占百分比。相应的曲线下面积(B、D、F)已展示。数据以均值和标准差表示。每组 ≥ 3 个样品瓶,每瓶含 15–20 只果蝇。采用 Welch's T-test 进行统计分析;*:p < 0.05;**:p < 0.01;***:p < 0.001。 请点击此处查看该图的放大版本。
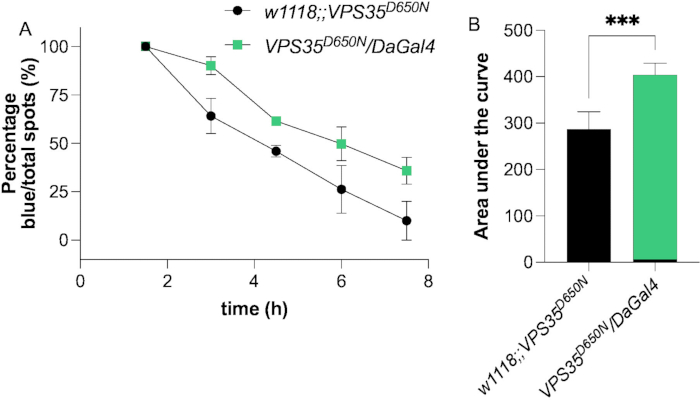
图4:表达突变型vps35导致便秘。(A)在过表达与帕金森病相关的突变型vps35D650N及其对照的果蝇中,随时间推移蓝色粪便斑点的百分比。(B)显示曲线下面积(AUC)。数据以均值±标准差表示。n = 3个样品瓶,每瓶含15–20只果蝇。进行Welch's T-test分析;***:p < 0.001。请点击此处查看该图的放大版本。
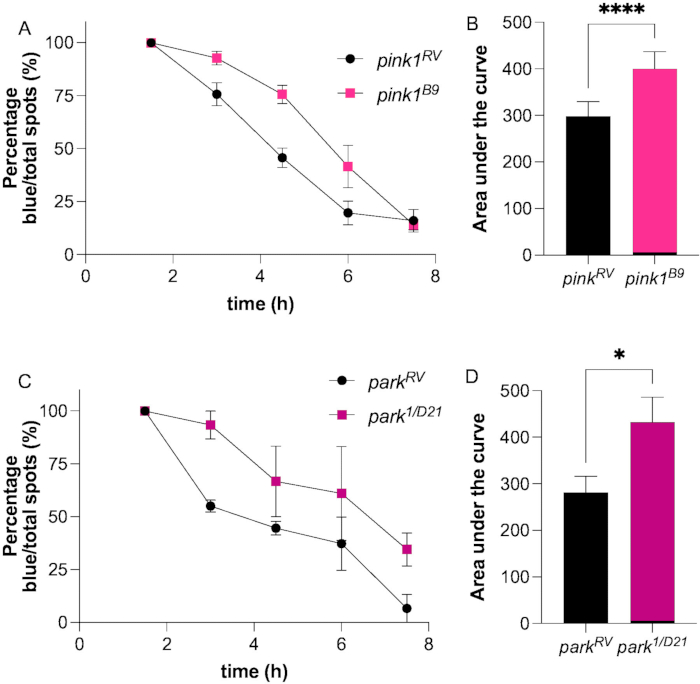
图 5:Pink1 和 Parkin 缺陷导致粪便清除延迟。 Pink1 缺陷(A)和 Parkin 缺陷(C)果蝇及其相应对照果蝇随时间变化的蓝色粪便斑点百分比。相应的曲线下面积(B、D)已展示。数据以均值 ± 标准差表示。每组 ≥ 3 个培养瓶,每瓶含 15–20 只果蝇。采用 Welch's T-test 进行统计分析;*:p < 0.05;****:p < 0.0001。 请点击此处查看该图的高清版本。
讨论
最近提出了一种测量黑腹果蝇(Drosophila melanogaster)便秘的方法。应用该方法后,发现表达野生型α-突触核蛋白的果蝇出现便秘或肠道运动异常7。该方法经过多种验证,确认了在所有经测试的遗传性帕金森病模型果蝇中均存在便秘现象。
与该方法的原始描述相比,进行了若干修改以提高其可行性和稳健性。为了避免蓝色培养基饱和度的变化,预先配制一批蓝色培养基,并将其分装至所需数量的食物小瓶中。此外,在将果蝇加入蓝色培养基之前,先对其进行短暂的饥饿处理,仅提供水分。此步骤旨在促进果蝇对蓝色培养基的摄取。若缺少该步骤,并非所有果蝇都会表现出明显的蓝色腹部,而这是获得代表性结果的关键起始条件。最后,多种帕金森病(PD)果蝇模型均表现出一定程度的震击敏感性13,14,20。因此,在每次计数过程中不转移果蝇,以避免这种敏感性对排泄物输出造成影响。然而,使用不同颜色的标记来标示排泄斑点,以防止重复计数。
与最初的描述类似,也观察到果蝇在下午排便频率较低。然而,由于对照组和突变体果蝇均存在这一现象,因此并未导致斑点记录出现异常。此外,每个时间点均需有足够的粪便斑点可供计数,这是获得可靠结果的关键。因此,建议每瓶至少使用十五只果蝇7。
在原始论文中,观察到10日龄果蝇出现便秘现象,而1日龄果蝇则未出现。因此,在本实验中,便秘检测是在10日龄果蝇中进行的,结果在所有测试的帕金森病(PD)果蝇模型中均观察到了便秘或肠道运动功能改变。早期的运动行为研究表明,在表达α-突触核蛋白的果蝇中,便秘的发生早于运动功能障碍,飞行能力的损伤直到三周龄时才变得明显16。这种症状出现的时间顺序与帕金森病患者中的疾病进展相似,即胃肠道问题常在运动障碍之前出现。相比之下,pink1 或 parkin 基因突变的果蝇在羽化后第一天即表现出功能损伤21。因此,探究这些遗传模型是否在这一早期时间点就已出现肠道转运缺陷,将有助于深入理解其非运动症状的发展过程。因此,有必要开展更深入的实验以进一步阐明其潜在的生物学机制。
本文所述的检测方法可用于定量评估胃肠道蠕动功能及便秘表型,但无法评价粪便的一致性、内容物、颜色或形态等参数。此前已有研究通过测量排粪量来评估粪便的颜色和形态,其采用的方法在Drosophila模型中已有 established 方法学基础22,23,24。然而,该检测方法需要专用设备(例如透射扫描仪)和专用分析软件,相较于本文所述方案,在技术和资源方面提出了不同的要求。尽管如此,该检测方法已证实Pink1缺陷果蝇存在胃肠道功能障碍22,23。
胃肠道功能障碍被公认为多种神经系统及神经退行性疾病中共存的临床表现,包括自闭症谱系障碍、阿尔茨海默病和多发性硬化症25,26,27,28,对于其 黑腹果蝇 可作为研究其机制基础的易操作模式生物。本研究所建立的方法学框架适用于肠道蠕动及便秘研究 果蝇 可以推断适用于这些疾病。
综上所述,本研究证实了先前提出的一种用于检测果蝇便秘的可行且稳健的方法。该检测方法表明,多种遗传背景下均存在便秘现象 果蝇 特别适合用于研究便秘的帕金森病模型,因为这些模型能够在运动症状出现之前,对基因定义的易感果蝇进行研究。此外,其他疾病模型也可用于 果蝇 可利用该方法评估表现出肠道运动异常的情况,以及进行药物筛选。
披露
C. K 曾担任 Centogene、Takeda、Biogen 和 Lundbeck 基金会的顾问,从 Bial 获得演讲酬金,并获得德国研究基金会(DFG)、迈克尔·J·福克斯基金会(MJFF)以及 ASAP 的研究资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Bacto 琼脂 | Becton, Dickinson and Company | 214010 | |
| Ceapran 栓剂 | Greiner Bio-One | 330070 | |
| 玉米粉 | Dr. Oetker GmbH | ||
| 葡萄糖 | Sigma-Aldrich | D9434-1KG | |
| 果蝇培养容器 | Greiner Bio-One | 217101 | |
| 乙醇(100%) | J.T. Baker | BAK8025 2500 | |
| 滤纸 纤维素,Whatman(3号) | Sigma-Aldrich | WHA1003185 | |
| GraphPad Prism | GraphPad | ||
| 对羟基苯甲酸甲酯 | Sigma-Aldrich | H5501-100G | |
| 糖蜜 | Rapunzel Naturkost GmbH | ||
| 永久性彩色记号笔 | Stadtler | 11-348 | |
| 丙酸 | 赛默飞世尔科技公司 | 149300010 | |
| 皇家蓝 实际冰霜色 | Wilton 食用色素 | ||
| 体视显微镜 | 尼康 | ||
| 酵母 | Algist Bruggeman | 1278 | |
| <强>果蝇品系 | |||
| DaGal4 | 布卢明顿果蝇资源中心 | 95282 | |
| 公园D1/D21 | Jeehye Park 和 Jongkyeong Chung | ||
| 公园RV | Jeehye Park 和 Jongkyeong Chung | ||
| SNCA p.A53T | 布卢明顿果蝇资源中心 | 8148 | |
| SNCA p.A30P | 布卢明顿果蝇资源中心 | 8147 | |
| SNCA p.V15A | 先前在实验室中创建 | ||
| Vps35D650N | 布卢明顿果蝇资源中心 | 91646 | |
| w pink1B9 | Jeehye Park 和 Jongkyeong Chung | ||
| w pink1RV | Jeehye Park 和 Jongkyeong Chung | ||
| w1118 | 布卢明顿果蝇资源中心 | 3605 |
参考文献
- Fanciulli, A., et al. Diagnosis and treatment of autonomic failure, pain and sleep disturbances in Parkinson's disease: Guideline "Parkinson's disease" of the German Society of Neurology. J Neurol. 272 (1), 1-32 (2025).
- Kasten, M., Marras, C., Klein, C. Nonmotor signs in genetic forms of Parkinson's disease. Int Rev Neurobiol. 133, 129-178 (2017).
- Bloem, B. R., Okun, M. S., Klein, C. Parkinson's disease. Lancet. 397 (10291), 2284-2303 (2021).
- Higinbotham, A. S., Kilbane, C. W. The gastrointestinal tract and Parkinson's disease. Front Cell Infect Microbiol. 13, 1158986(2023).
- Yuan, X. Y., Chen, Y. S., Liu, Z. Relationship among Parkinson's disease, constipation, microbes, and microbiological therapy. World J Gastroenterol. 30 (3), 225-237 (2024).
- Sodders, M. J., Shen, M., Olsen, A. L. Measuring constipation in a Drosophila model of Parkinson's disease. J Vis Exp. (199), e65966(2023).
- Spillantini, M. G., et al. Alpha-synuclein in Lewy bodies. Nature. 388 (6645), 839-840 (1997).
- Trinh, J., et al. Genotype-phenotype relations for the Parkinson's disease genes SNCA, LRRK2, VPS35: MDSGene systematic review. Mov Disord. 33 (12), 1857-1870 (2018).
- Kasten, M., et al. Genotype-phenotype relations for the Parkinson's disease genes Parkin, PINK1, DJ1: MDSGene systematic review. Mov Disord. 33 (5), 733-741 (2018).
- Deutschländer, A., Ross, O. A., Wszolek, Z. K. VPS35-related Parkinson disease. GeneReviews. , https://www.ncbi.nlm.nih.gov/books/NBK447258/ (2023).
- Wasner, K., Grünewald, A., Klein, C. Parkin-linked Parkinson's disease: From clinical insights to pathogenic mechanisms and novel therapeutic approaches. Neurosci Res. 159, 34-39 (2020).
- Vos, M., Klein, C. The importance of Drosophila melanogaster research to uncover cellular pathways underlying Parkinson's disease. Cells. 10 (3), 579(2021).
- Feany, M. B., Bender, W. W. A Drosophila model of Parkinson's disease. Nature. 404 (6776), 394-398 (2000).
- Park, J., et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 441 (7097), 1157-1161 (2006).
- Diaw, S. H., et al. Characterization of the pathogenic α-synuclein variant V15A in Parkinson's disease. NPJ Parkinsons Dis. 9 (1), 148(2023).
- Ruxton, G. D. The unequal variance t-test is an underused alternative to Student's t-test and the Mann-Whitney U test. Behav Ecol. 17 (4), 688-690 (2006).
- Lin, G., et al. Phospholipase PLA2G6, a Parkinsonism-associated gene, affects Vps26 and Vps35, retromer function, and ceramide levels, similar to α-synuclein gain. Cell Metab. 28 (4), 605-618.e6 (2018).
- Mandik, F., Vos, M. Neurodegenerative disorders: Spotlight on sphingolipids. Int J Mol Sci. 5 (21), ijms222111998(2021).
- Vos, M., Klein, C., Hicks, A. A. Role of ceramides and sphingolipids in Parkinson's disease. J Mol Biol. 435 (12), 168000(2023).
- Clark, I. E., et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 441 (7097), 1162-1166 (2006).
- Vos, M., et al. Vitamin K2 is a mitochondrial electron carrier that rescues pink1 deficiency. Science. 336, 1306-1310 (2012).
- Fedele, G., et al. Suppression of intestinal dysfunction in a Drosophila model of Parkinson's disease is neuroprotective. Nat Aging. 2 (4), 317-331 (2022).
- Popovic, R., et al. Blocking dPerk in the intestine suppresses neurodegeneration in a Drosophila model of Parkinson's disease. Cell Death Dis. 14 (3), 1-9 (2023).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Heston, M. B., et al. Gut inflammation associated with age and Alzheimer's disease pathology: A human cohort study. Sci Rep. 13 (1), 1-12 (2023).
- Levinthal, D. J., et al. Adding to the burden: Gastrointestinal symptoms and syndromes in multiple sclerosis. Mult Scler Int. 2013, 319201(2013).
- Sorboni, S. G., et al. A comprehensive review on the role of the gut microbiome in human neurological disorders. Clin Microbiol Rev. 35 (1), e0033820(2022).
- Salim, S., et al. The gut-microbiota-brain axis in autism: What Drosophila models can offer. J Neurodev Disord. 13 (1), 37(2021).
重印与许可
本文已发表
视频即将推出