该方案结合光学透明化与免疫标记技术,实现对整体视网膜类器官的全体积共聚焦成像。该方法可保持三维结构,从而实现对关键神经元通路的精细可视化,有助于深入研究视网膜成熟过程、空间组织特征,及其在疾病建模和个体化医学中的潜在应用。
本文内容
摘要
摘要
由人诱导性多能干细胞衍生的视网膜类器官是复杂的三维结构,能够模拟人类视网膜,为研究视网膜发育、疾病机制及潜在治疗策略提供了强有力的平台。此外,由于这些类器官来源于患者,其在个性化医疗中展现出巨大潜力,因而正变得日益流行。与传统的二维细胞培养相比,视网膜类器官保留了视网膜固有的三维结构,从而实现了更真实的组织表征,并支持更具生理相关性的研究。然而,其结构的复杂性、高细胞密度以及多样的组成成分给表征工作带来了显著挑战。
为了应对这些挑战,并在保留三维结构的前提下增进对视网膜类器官成熟过程的理解,我们结合光学透明化方法与免疫标记技术,利用共聚焦显微镜对整体安装的类器官进行全结构可视化。为此,我们采用了一种适用于低数值孔径和高数值孔径物镜的透明化方法,从而实现全体积成像,并以细胞分辨率捕获特定感兴趣区域。通过该方法,我们鉴定了负责视觉信息传递的三条主要神经元通路在三维空间中的形态与分布:视锥和视杆光感受器、双极细胞以及节细胞。我们的研究结果进一步阐明了可视化技术在解析类器官内视网膜细胞空间组织方面的应用价值。
引言
视网膜类器官
视网膜类器官是模拟人类视网膜的复杂三维结构,为研究视网膜发育、疾病机制及潜在治疗策略提供了重要的研究平台1它们保持了视网膜天然的三维结构,表现出转录组保真性和功能完整性,能够重现光转导和突触连接2此外,它们能够高度模拟 体内 发育3,4,相较于平面细胞培养,能够更真实地模拟生理环境。在先前的研究中,Isla-Magrané 等人建立了一种两步法方案,利用人诱导性多能干细胞(hiPSC)获得多眼样类器官,以模拟人类眼睛发育过程中的细胞特征5,6由于胎儿组织稀缺,人类眼睛发育的研究一直局限于解剖学研究。
采用本方案获得的视网膜类器官表现出正确的分层结构,包含所有主要的视网膜细胞亚型,如光感受器细胞、双极细胞、神经节细胞、无长突细胞和水平细胞以及巨胶质细胞,同时具备关键的形态学特征、正确的空间组织结构和细胞连接。尽管类器官模型具有潜在应用价值,但其存在显著的变异性,导致难以获得一致的结果。因此,迫切需要在更可靠的人源模型中应用多种先进技术。迄今为止,这些类器官仅通过组织学切片进行研究,因其复杂的细胞组成、高细胞密度和较大尺寸阻碍了光线穿透,导致深层区域的光学成像效果较差,从而限制了对其进行全面分析。
整体成像
传统的组织学技术涉及对固定组织进行切片和染色,能够提供特定区域的详细信息,但无法捕捉整个类器官的整体结构及其内部的空间关系。为克服这一局限,全组织成像成为研究视网膜类器官的一种重要工具。全组织成像可在保持类器官完整三维结构的前提下,实现对其整体的可视化,从而保留细胞类型和细胞外基质成分的空间分布。该方法特别适用于研究类器官内部及类器官之间的细胞组成,有助于更全面地理解其发育过程和功能组织结构。然而,由于视网膜类器官细胞密度高且结构紧密,因而具有不透明性(图1,未透明化)。样品固有的不透明性会导致光散射,从而阻碍显微镜对内部结构的精细观察。在此背景下,光学透明技术应运而生,成为一种强有力的解决方案。
光学透明技术
光学透明是指通过物理化学处理,使厚的生物样本变得透明,其原理是均质化组织的折射率(RI)梯度,使其与透明剂的折射率相匹配,并去除吸光物质7。这些方法可显著减少光散射,提高透明度。这种转变使我们能够穿透整个视网膜类器官进行观察,从而通过整体封片成像技术对其复杂的细胞结构和形态进行全方位分析。在实际操作中,这一过程通过将样本浸入高折射率物质中,并去除脂质和色素来实现。
现有的透明化方法在多个方面存在差异(例如透明程度、与显微技术的兼容性、适用的样本类型和荧光分子、可行性及所需时间),但尚无一种方法可被视为最佳的通用方案8。这些方法可归纳为四大类:(1)简单浸入法,(2)基于有机溶剂的疏水法,(3)基于过度水合的方法,以及(4)基于组织转化或水凝胶包埋的方法,Avilov 等人对此进行了很好的总结7。所有方法均包含折射率匹配步骤,通常是将样本浸入与组织平均折射率相匹配的溶液中。在疏水法中,通过将样本依次浸入浓度递增的有机溶剂(如甲醇或丙醇)中,以去除脂质和水分。
本方案是一种优化的方法,结合了光学透明化与免疫标记技术,可实现视网膜类器官的完整封片三维可视化,利用共聚焦显微镜进行全体积成像,同时保持其结构完整性。该方法能够识别类器官内的关键视网膜细胞类型,为研究人员提供了一种强有力的工具,可在生理相关背景下研究视网膜类器官的成熟过程及空间组织结构。
方案
1. 自制荧光标记二抗的制备
注意:本方法可作为使用商用荧光抗体的替代方案(有关制备荧光二抗的优势,请参见讨论部分)。此外,若需进行直接免疫荧光检测,但目标荧光一抗无法从商业途径获得时,本方案也可用于将荧光染料与一抗进行偶联。通过调整标记反应中荧光染料的用量,控制染料与抗体的比例,可获得荧光信号更强的偶联抗体。然而,自行制备的二抗稳定性较差,且最终偶联产物的浓度比商用荧光抗体低10倍。本方案改编自 Bálint 等人9所描述的研究工作。
- 将1 mg荧光染料溶解于无水DMSO中,并分装至离心管中,每管含荧光染料终质量为0.02 mg。使用真空离心浓缩仪去除全部DMSO,运行时间为1小时30分钟。将分装样品于-20 ºC避光保存。对于Alexa Fluor 405,应使用超纯H2O作为分装溶剂。
- 进行标记反应时,将一份荧光染料分装物溶解于1–10 µL DMSO中(Alexa Fluor 405使用超纯H2O)。
注意:DMSO的确切用量需通过前期对照偶联实验确定。当使用新批次的荧光染料(或前一批次耗尽时),或首次使用新的荧光染料进行偶联反应时,均需进行此类对照实验。对照偶联实验通过使用不同量的荧光染料进行标记反应,以确定偶联物中荧光染料与抗体的最佳比例。在本实验中,最佳比例通常介于3 µL至5 µL之间。 - 在避光条件下,于室温(RT)在摇床上将50 µL二抗IgG(或一抗)、6 µL 1 M NaHCO3以及1–5 µL荧光染料孵育40分钟。
- 在反应进行的同时,打开纯化凝胶过滤柱的盖子,使缓冲液自然流过,完成柱子的预处理。每根柱子(每个标记反应使用一根)用3次2–3 mL PBS冲洗进行平衡。若最后一次平衡步骤在孵育结束前完成,请重新盖上盖子以防止柱子干燥,并等待标记反应完成。
注意:纯化凝胶过滤柱依靠重力运行。务必确保柱子在任何时候均不干燥,否则纯化效果将受到影响。 - 当反应完成(步骤1.3)后,向标记反应体系中加入140 µL PBS,使总体积约为200 µL,并涡旋混匀。将此溶液加至柱子中央,待样品完全进入柱体后,加入550 µL PBS推动样品。当液体停止下滴后,再加入300 µL PBS进行洗脱,并收集至1.5 mL微量离心管中。
- 通过测定样品在280 nm处的吸光度以及所用荧光染料的吸光度,计算抗体浓度和标记比率。应用比尔-朗伯定律计算摩尔浓度,公式如下:

其中A代表吸光度,ε代表摩尔消光系数,CF280为特定荧光染料在280 nm处的吸光度值,作为校正因子。随后,抗体浓度计算如下:

标记比率为:

- 将标记后的抗体于4 ºC避光保存,可稳定保存长达6个月。
2. 免疫荧光标记
- 在室温下用 4% 多聚甲醛(PFA)固定类器官 45 分钟。
注意:可选步骤:将类器官与抗原修复液孵育(步骤 2.2 和 2.3),以增强抗原的免疫反应性。 - 将 0.117 mg 柠檬酸三钠二水合物溶于超纯 H2O 中,定容至 40 mL,并调节 pH 至 9,配制抗原修复液。
- 在 60 °C 条件下,以轻微振荡(30 rpm)将类器官与抗原修复液孵育 1 小时。
- 在室温下,用 PBST(含 1% Triton X-100 的 PBS)对类器官进行通透处理,轻微振荡孵育 4 小时。
- 在室温下,用封闭液(含 2% 牛血清白蛋白(BSA)和 0.1% Triton X-100)封闭类器官,孵育过夜(或超过 1 天)。
注意:一抗和二抗的浓度取决于具体抗体。对于整体样本的免疫荧光染色,我们使用的抗体浓度高于切片样本。一抗通常使用 10 µg/mL 的浓度,在大多数情况下相当于原液稀释 1:100(表 1)。我们自制的二抗使用浓度为 20–50 µg/mL。 - 将类器官与用洗涤液(含 0.1% BSA 和 0.1% Triton X-100)稀释的一抗在 4 °C 条件下孵育 2 天,并保持轻微振荡。
- 在室温下,用洗涤液轻微振荡洗涤类器官,每次 15 分钟,共洗涤 3 次。
- 将类器官与用洗涤液稀释的二抗在 4 °C 条件下孵育 2 天,并保持轻微振荡。
- 在室温下,用洗涤液轻微振荡洗涤类器官,每次 15 分钟,共洗涤 3 次。
注意:免疫标记完成后,可孵育所选的荧光染料。我们通常使用荧光核染料,如 DAPI(1:1,000)和 DRAQ5(1:500),或鬼笔环肽(phalloidin,1:100)来显示肌动蛋白丝网络。 - 将类器官与用洗涤液稀释的荧光染料在室温下孵育 1 小时,并保持轻微振荡。
- 在室温下,用洗涤液轻微振荡洗涤类器官,每次 15 分钟,共洗涤 3 次。
3. 使用 FluoClear BABB 进行光学透明化
注意:1-丙醇可能会损坏塑料容器,尤其是长期接触的情况下。为安全起见,请使用玻璃容器。
- 脱水步骤
- 配制超纯水中的1-丙醇溶液2O 按指定百分比(15%、30%、45%、60%、75%、90%)加入,然后用三甲胺调节 pH 至 9.5。
警告:三乙胺吸入有毒。应在通风橱中操作。溶液若储存得当(密封良好的容器),可重复使用。使用前需调节pH值。 - 将样品分别在浓度递增的1-丙醇溶液(15%、30%、45%、60%、75%、90%)中孵育,每种浓度孵育2小时,孵育温度为 30 °C 轻柔振荡。
- 在100% 1-丙醇中孵育样品,过夜,置于 30 °C 轻柔振荡。
- 配制超纯水中的1-丙醇溶液2O 按指定百分比(15%、30%、45%、60%、75%、90%)加入,然后用三甲胺调节 pH 至 9.5。
- 清除步骤
警告:BABB 是一种强效溶剂混合物,可溶解或严重损坏多种塑料。为确保安全,请使用带有兼容盖子的玻璃容器,并在通风橱内操作。- 按1:2的比例混合苯甲醇(BA)与苯甲酸苄酯(BB)以配制BABB。
- 将样本在室温下浸入BABB中过夜。
- 成像前更换BABB溶液。
注意:对于直径约1 mm的类器官,BABB可在数十分钟内产生明显的透明化效果。根据样本的大小和性质,透明化程度可能有所不同,和/或需要更长的透明化溶液处理时间。我们建议在BABB浸泡前后分别采集图像,以优化透明化方案。 - 将BABB透明化样品长期保存于BABB溶液中 4 °C避光以保护荧光。
4. 整体样本成像采集
- 使用玻璃移液器将类器官置于含有一滴BABB的玻璃底培养皿中。确保样本与盖玻片表面接触。
注意:请小心操作,避免含有样本的BABB液滴接触培养皿的塑料边缘,否则会溶解塑料,从而损害样本并影响成像质量。 - 使用配备低倍和高倍物镜的倒置共聚焦激光扫描显微镜,采集Z轴层扫图像,以获得具有细胞分辨率的样本完整三维结构信息。
注:本研究中使用了10倍数值孔径(NA)0.4的空气物镜和63倍NA 1.4的油镜,Z轴步长分别为3.5 µm和1 µm。
5. 图像处理
- 根据透明化溶液与浸没介质之间折射率(RI)的不匹配,重新校准Z轴堆栈采集的步长。
- 按以下方式计算重新校准后的步长:
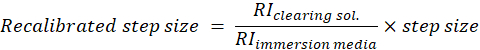
对于嵌入BABB中的样品,使用空气物镜且步长为3.5 µm的情况,计算如下:
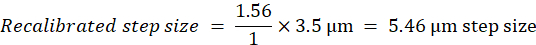
- 在ImageJ中,更改体素深度(点击图像 | 属性...),设置为重新计算的步长。
- 按以下方式计算重新校准后的步长:
- 生成Z轴堆栈的图像投影。
- 使用ImageJ,沿深度方向检查Z轴堆栈(点击图像 | 堆栈 | 正交视图)。将显示视网膜类器官的XY、XZ和YZ视图。
- 保存感兴趣的区域(点击文件 | 另存为...)。
- 使用处理软件(参见材料表)创建Z轴堆栈三维渲染的动画。
- 通过勾选复选框,选择要可视化的通道。
- 调整Z平面以观察样品内部(在复选框中启用裁剪功能)。
- 使用视频编辑器录制动画(在复选框中启用视频编辑器)。直接使用鼠标拖放并进行缩放操作。点击添加以将不同片段加入动画。若需调整Z平面,请启用裁剪平面选项(点击设置... | 勾选裁剪平面框)。
结果

图1:三种透明化方法的比较。左: 明场图像的(A)未清除和(B-D) 透明化样品。 右侧:使用配备10倍空气物镜(折射率 = 1.00)的共聚焦激光扫描显微镜获取的90天体外培养视网膜类器官的Z轴层扫图像,经细胞核标记物DRAQ5(黄色)染色,并显示xz和yz正交切面视图。A未透明化视网膜类器官(N = 3)。经PFA固定的视网膜类器官透明度不足,无法进行三维可视化。B果糖/甘油透明化类器官(N = 3)。C) 经ECi清除的类器官(N = 3)。(DFluoClear BABB 透明化类器官(N = 3)。比例尺 = 100 µm缩写:BF = 明场;CLSM = 共聚焦激光扫描显微镜;RI = 折射率;PFA = 多聚甲醛;ECi = 肉桂酸乙酯;BABB = 苯甲醇/苯甲酸苄酯;DIV = 体外培养天数 体外. 请点击此处以查看此图的放大版本。
神经视网膜类器官免疫荧光研究中光学透明化方法的比较
本文展示了三种透明化方法的结果,以证明FluoClear BABB在使视网膜类器官透明化方面的有效性。在图1中,我们观察了使用果糖/甘油(图1B)、ECi(图1C)和FluoClear BABB(图1D)透明化的视网膜类器官。所测试的透明化方法均被选中,是因为它们已被证实10,11可与免疫荧光染色兼容,并能保留内源性蛋白(例如GCaMPs中表达的GFP)的荧光信号。
果糖/甘油12 是一种无毒、简单的浸渍透明化方案,无需脱水步骤,与其它方法相比显著缩短了处理时间。据报道,该方法在透明化来自多种组织的类器官(如气道、肾脏、肝脏和人乳腺癌类器官)方面具有高效性12。
肉桂酸乙酯(Ethyl Cinnamate,ECi)11 是一种经美国食品药品监督管理局(FDA)批准的食品香料和化妆品添加剂13,14,被认为无害,并已被证实是一种优异的哺乳动物组织透明化试剂。该方法以快速透明化能力和对组织形变影响极小而著称。ECi属于疏水性透明化方法,但与基于BABB的溶剂相比,其无毒且能更长时间地保留荧光蛋白的荧光信号(最长可达14天)。与其他大多数透明化方案类似,ECi使用前需进行脱水处理。为获得最佳效果,该步骤需将样品浸入酒精浓度逐步递增的溶液中完成。由于ECi本身无害,样品透明化后可安全操作,并可储存于塑料容器中。然而,脱水步骤所使用的1-丙醇是一种有机溶剂,必须在通风橱中操作,并储存于玻璃容器中。
FluoClear BABB10 是一种基于苯甲醇/苯甲酸苄酯(BABB)作为折射率匹配溶液的疏水性透明化方案的改良形式。该试剂具有高毒性和腐蚀性,需谨慎操作。FluoClear BABB 被描述为一种优化版本,相较于早期方法能更好地保存绿色荧光蛋白(GFP)和红色荧光蛋白(RFP),并可使用1-丙醇或叔丁醇作为脱水剂。
为评估三种透明化方法的性能,我们使用配备10倍数值孔径0.4空气物镜的共聚焦显微镜对Z平面进行成像,获得2.5 × 2.5 × 2.56 mm的大视野(FoV),以完整捕获视网膜类器官的整个体积。实验采用处于中期成熟阶段(90天)的视网膜类器官 体外 (体外培养天数)包含所有视网膜神经元(包括神经节细胞、双极细胞和光感受器细胞),达到较高的细胞密度并紧密排列,因而呈现不透明状态。如引言所述,当被成像物体整体的折射率(RI)达到匹配时,即可实现光学透明。因此,用于成像的浸没介质将显著影响所获得的组织透明度。 表 2 详细说明了测试所用浸没介质和透明化溶液的折射率(RI)。
| 溶液 | 折射率 | |
| 浸镜介质 | Air | 1 |
| Water | 1.33 | |
| Glycerol | 1.45 | |
| Oil | 1.51 | |
| 透明化溶液 | Fructose/Glycerol | 1.468 |
| Eci | 1.558 | |
| FluoClear BABB | 1.56 |
表2:光学显微镜最常用的浸没介质以及用于视网膜类器官透明化的光学透明方法的折射率(RI)。 缩写:RI = 折射率。
比较所得的共聚焦图像(图1,右侧面板),果糖/甘油处理对透明度的改善最弱,限制了视网膜各层的观察,并无法观察到类器官核心区域。ECi 处理获得了更好的透明度,能够观察到视网膜各层,但由于光散射影响了样品内部荧光信号的检测,对视网膜类器官核心区域的观察仍然受限。FluoClear BABB 显著提高了透明度,可在更高分辨率下清晰观察视网膜类器官的核心与皮质区域,且荧光强度保持良好。
值得指出的是,ECi 和 FluoClear BABB 两种透明化方案均导致了明显的样本收缩,这一点可通过各透明化后视网膜类器官相应的明场图像清晰看出(图1,左侧面板)。样本收缩主要源于前期脱水步骤中水分的去除,而这也正是果糖/甘油(Fructose/Glycerol)方案不会引起样本收缩的原因。然而,这种收缩现象反而为更深层的成像探索提供了独特机遇。尽管收缩会压缩类器官的整体尺寸,并可能低估其内部结构间的实际距离,但同时也提高了样本的致密性。这种各向同性的致密化在各个方向上相对均匀,使我们能够利用具有更高数值孔径(NA)和更优分辨能力的高倍物镜进行成像,否则由于这些物镜的工作距离(WD)较短,通常只能观察到类器官最外层的细胞。例如,10倍、NA 0.4 的干式物镜工作距离为 2.53 mm,而分辨能力显著更优的 63倍、NA 1.4 油镜工作距离仅为 0.14 mm。通过使用经 BABB 透明化处理后更为致密的类器官,我们能够有效克服这一限制,实现对类器官内部深层结构(如位于内部的神经节细胞层)的高分辨率成像(图2)。

图2:使用FluoClear BABB透明化处理的视网膜类器官(200天体外培养)经激光扫描共聚焦显微镜成像后的3D重建。 显微镜配备了(A) 10x NA 0.4 空气物镜和 (B63倍数值孔径1.5油镜。透明化处理与成像可实现类器官整体的可视化,同时对某些感兴趣区域进行精细结构成像。DRAQ5(细胞核)、opsin B+GR(视锥细胞)和TUJ1(神经元)。缩写:DIV = 培养天数 体外;BABB = 苯甲醇/苯甲酸苄酯;NA = 数值孔径。 请点击此处以查看此图的放大版本。
综上所述,我们选择的透明化方法是FluoClear BABB,因为它能够以高分辨率和高信噪比清晰显示整个视网膜类器官。重要的是,BABB会引起类器官各向同性的收缩,使其结构更加致密。这种致密性使我们能够利用高倍物镜对深层结构进行细致观察。最后,BABB与油浸物镜的兼容性确保了在不同放大倍数下均能实现最小的光散射和高质量成像。
类器官成熟过程中视网膜细胞的鉴定及其时空分布
根据此处详述的方法,并结合对类器官进行全 mount 免疫荧光染色(所用特异性抗体见表1)后的成像分析,我们研究了神经视网膜在不同成熟阶段(从早期发育阶段(40 DIV)到更成熟的阶段(长达250 DIV))中如何从类器官逐步形成,并呈现出明确的三维结构。该方法使我们能够观察并分析本节所述的各种视网膜组分的形成过程及其空间组织方式。
| 抗体 | 特异性 | 靶标 | 视网膜中的定位 | [ ]终浓度(稀释比) | 宿主 | #RRDI |
| Anti-GFP | GFP | GFP | GCaMP6s阳性细胞 | 10 µg/mL (1:1,000) | Ch | AB_300798 |
| Chx10 | 腹侧中脑同源盒2(Vsx2) | 转录因子 | 神经母细胞和双极细胞 | 10 µg/mL (1:2) | Ms | AB_10842442 |
| Opsin B | 视蛋白蓝 | 蓝视锥细胞外节段 | 蓝视锥细胞 | 10 µg/mL (1:100) | Rb | AB_177457 |
| Opsin RG | 视蛋白绿和红 | 绿视锥和红视锥细胞外节段 | 绿视锥和红视锥细胞 | 10 µg/mL (1:100) | Ch | AB_11213279 |
| RECOV | Recoverin | 钙结合蛋白 | 光感受器细胞 | 10 µg/mL (1:100) | Rb | AB_2253622 |
| RHO (RET-P1) | 视紫红质 | 视杆细胞外节段 | 视杆细胞 | 63 µg/mL (1:100) | Ms | AB_260838 |
| TUJ1 | 神经元特异性III类β-微管蛋白 | β-III微管蛋白亚型 | 神经元 | 50 µg/mL (1:200) | Ms | AB_2315514 |
表1:在不同成熟阶段的视网膜类器官中检测的一抗。缩写:Chicken = Ch;Mouse = Ms;Rabbit = Rb。
使用不同标记物进行免疫标记,可鉴定构成该分层结构的细胞。TUJ1 是一种神经元特异性的 III 类 β-微管蛋白(表 1),由于其表达丰度高,通常用于切片样本中标记视网膜神经节细胞(RGCs)15。TUJ1 存在于所有视网膜神经元中16,并在神经分化的早期阶段即开始表达17。在类器官皮层的所有成熟阶段均检测到 TUJ1 的表达,从而可追踪视网膜细胞分层的组织结构。在 图 3 中可见,在发育早期(40 DIV),TUJ1 均匀分布于单一、薄而均一的层中。自 90 DIV 起,类器官的顶端区域变得更为致密和紧凑,因大量细胞在顶端区域聚集增殖。至 170 DIV 时,视网膜类器官已形成具有明确顶端层的三维分层视网膜结构。在 200 DIV 时,可见其他细胞体延伸出较长的突起,数量较少,位于类器官内部更深层。最终,在 250 DIV 时,三层核层结构清晰可见,分别对应于:(1)由成熟光感受器细胞构成的外核层(ONL);(2)主要由双极细胞构成的内核层(INL);以及(3)由 RGCs 构成的神经节细胞层(GCL),如 图 3(右下)所示。

图3视网膜类器官成熟过程中神经元在层状结构中的有序排列。 FluoClear BABB 透明化处理并经 TUJ1 染色的视网膜类器官共聚焦图像的 Z 轴投影。在培养第 40 天(40 DIV)时,未形成层状结构;自第 170 天(170 DIV)起,神经视网膜开始分层。图中显示视网膜核层:外核层(ONL)、内核层(INL)和节细胞层(GCL)(黄色箭头)。比例尺 = 25 µm (左)和 10 µm (右)。缩写:BABB = 苯甲醇/苯甲酸苄酯;DIV = 培养天数 体外;外核层(ONL),内核层(INL);神经节细胞层(GCL). 请点击此处以查看此图的放大版本。
通过该方法,我们还可报告轴突束的组装情况。如放大区域所示(图4),我们观察到纤维束从类器官的内核延伸至外周,并投射到相距较远的区域(最远达1 mm)。有趣的是,这些纤维的形成贯穿于不同的成熟阶段。随着类器官的生长,纤维逐渐增粗,结构更加复杂,并聚集更多的细胞突起(图4 [250 DIV] 和 补充视频 S1)。视网膜神经节细胞(RGCs)是视网膜发育过程中最早分化的细胞,因此它们能够在发育的早期阶段即开始排列其突起。RGCs甚至可能在尚未确定其在类器官内的最终位置之前,就已启动神经突的延伸。我们的研究结果与先前的报道18一致,后者证明了在视网膜类器官与脑类器官共培养体系中可形成类似视神经的结构。

图4:神经元突起在不同成熟阶段的组装情况。 纤维从视网膜类器官的内层平面延伸至外周。这些纤维的形成贯穿了从40 DIV到所研究最晚成熟阶段(250 DIV)的不同发育时期。比例尺 = 25 µm(上排)和100 µm(下排)。缩写:DIV = 体外培养天数(days in vitro)。请点击此处查看该图的高清版本。
在视网膜类器官的顶端区域,部分感光细胞成熟为视杆细胞,其外节含有视紫红质,可在弱光条件下感知单色视觉;而另一些细胞则成熟为视锥细胞,表达蓝色、绿色和红色视蛋白,负责在明亮光线下实现彩色视觉和高敏锐度视觉。图5(上图)展示了视网膜类器官中表达蓝色和/或绿色/红色视蛋白(OPSIN B 和 GR,表1)的视锥细胞群体。这些细胞呈现细长形态,不同视蛋白分布于胞体中,但细胞核区域除外。值得注意的是,这些细胞的外端较亮,可能类似于含有膜盘结构的感光细胞外节。为了利用单一荧光检测通道同时可视化蓝色和绿色/红色视锥细胞,针对蓝色视蛋白(OPSIN B,兔源)和绿色/红色视蛋白(OPSIN GR,鸡源)的二抗均标记了相同的荧光染料,从而优化通道使用、简化成像流程,并避免光谱重叠。图5(下图)中的一部分感光细胞表达视紫红质(RHO,表1 和 补充视频 S2),明确表明其为视杆细胞。这些视杆细胞具有前述的细长形态,细胞核位于中央,富含视蛋白的胞体朝向类器官的外周区域。

图5发育后期的视网膜类器官 上:成熟的视锥细胞,下:视杆细胞。FluoClear BABB透明化处理的视网膜类器官共聚焦图像的Z轴投影,经TUJ1(神经元)、DRAQ5(细胞核)、opsin-B+GR(视锥细胞)和RHO(视杆细胞)染色。附示意图作为参考。比例尺 = 100 µm (左)和 10 µm (右)。缩写:DIV = 天 体外;BABB = 苯甲醇/苯甲酸苄酯。 请点击此处以查看此图的放大版本。
通过追踪Chx10(也称为Vsx2)在250天体外成熟过程中的表达,可识别双极细胞及其时空分布(图6)。Chx10(表1)是一种转录因子,在视网膜发育过程中对前体细胞的增殖和双极细胞的分化至关重要19,20。作为一种同源框基因,它在神经母细胞发育早期即开始表达;而在成熟视网膜中,其表达仅限于双极细胞。图6展示了Chx10阳性细胞在发育中类器官内的分布情况。最初,大量Chx10阳性细胞从神经视网膜周边向中心区域延伸。随着类器官的成熟,这些细胞数量减少,并迁移至内核层(INL),即双极细胞的定位区域。

图 6:在 250 天体外培养(DIV)过程中 Chx10 的表达变化。 经 FluoClear BABB 透明化处理的小鼠视网膜类器官的 Z 轴投影共聚焦图像,使用 DRAQ5(细胞核)和 Chx10(神经母细胞及成熟双极细胞)进行染色。比例尺 = 100 µm。缩写:DIV = 体外培养天数(days in vitro);BABB = 苯甲醇/苯甲酸苄酯。 请点击此处查看该图的高清版本。
最后,我们证明了使用该方法透明化后,GCaMP钙离子标记物中的内源性GFP仍得以保留。在图7中,可以观察到感染了Ad5-CMV-GCaMP6s并用抗GFP抗体(表1)进行免疫标记的70天体外培养视网膜类器官的神经视网膜,该免疫标记用于增强长期固定后的荧光信号。

图7FluoClear BABB 透明化方法中内源性 GCaMP 的保留。 70 天体外培养的视网膜类器官,经 Ad5-CMV-GCaMP6s 感染后,使用抗 GFP 抗体(标记表达 GCaMP 的细胞)、Chx10 抗体(标记神经母细胞和早期双极细胞)以及 DRAQ5(标记细胞核)进行免疫荧光染色。比例尺 = 100 µm (左)和 25 µm (右)。缩写:BABB = 苯甲醇/苯甲酸苄酯;DIV = 培养天数 体外. 请点击此处以查看此图的放大版本。
补充视频 S1:呈现神经元突起集合的视网膜类器官的三维重建。 250 DIV 时经 FluoClear BABB 透明化处理的小鼠视网膜类器官共聚焦图像的 Z 投影,使用 TUJ1(神经元,紫色)和 DRAQ5(细胞核,黄色)染色。缩写:BABB = 苯甲醇/苯甲酸苄酯;DIV = 培养天数 体外. 请点击此处下载该视频。
补充视频 S2: 发育晚期(200 DIV)视网膜类器官表面排列的视杆细胞的三维重建 200天体外培养(DIV)的FluoClear BABB透明化视网膜类器官共聚焦图像的Z轴投影,经RECOV(光感受器,绿色)和RHO(视杆细胞,紫色)染色。缩写:DIV = 天 体外;BABB = 苯甲醇/苯甲酸苄酯。 请点击此处下载该视频。
讨论
本文所述方案有助于研究视网膜类器官在不同成熟阶段形成细胞的空间和时间分布,同时保持其天然的三维结构,这对于在个性化医疗未来背景下理解这些模型至关重要。该方法能够清晰展示视网膜在不同层次及特定细胞类型水平上的精细结构,可在维持整体三维环境的前提下,实现对亚细胞结构的可视化观察。
全组织成像的替代方法是对样本进行后续处理,以便在常规切片(石蜡包埋或冷冻保存)上进行成像。尽管切片能够提供有关蛋白质和结构定位的有价值信息,但这些数据仅限于单一平面,限制了对细胞空间连接关系的理解。因此,诸如视锥细胞与视杆细胞的比例,或特定区域轴突束的形成等特征可能无法被准确呈现,从而增加了三维结构解释的复杂性。视网膜类器官具有高度异质性,不同区域可能含有不同类型的细胞,和/或表现出不同程度的复杂性与分化状态。全组织成像可解决这一问题,因为它能够在整体上分析异质性梯度,而无需依赖于可能无法代表样本全貌的少数切片的选择。
光片荧光显微镜(LSFM)21,22,23 可作为激光扫描共聚焦显微镜的替代方法。在光片荧光显微镜中,样品通过一束薄薄的光平面进行照明 片 厚度仅为几微米的光层对样品进行照明,并使用相机检测来自该照明光学切片的所有荧光信号。光片荧光显微镜(LSFM)是一种基于宽场检测的技术,能够以极高的效率实现大体积样本(最大可达厘米级)的快速成像,同时显著减少光漂白和光毒性效应。然而,类器官可能表现出明显的球面像差,因为光线穿过曲面时,其折射程度会因入射角不同而有所差异。在本实验中,这种畸变导致了焦点丢失,使图像模糊,从而降低了深层结构的分辨率。对于直径约1毫米的视网膜类器官成像,激光扫描共聚焦显微镜被证明是最有效的成像方法。
本方案根据我们的实验需求定制,可作为研究人员开展光学透明化视网膜类器官整体成像的起始指南,若实验条件不同,则应进行相应调整。本节将详细描述该方法的关键步骤、改进措施及局限性。
一个关键步骤是选择透明化方案。需要考虑多个标准。首先,应考虑样本的类型。骨组织的透明化与脑组织的透明化不同,视网膜类器官的透明化也不同于胃类器官的透明化,因为每种样本都需要采用不同的方法。为了观察不同类型类器官的透明化效果,必须查阅文献,以确定已针对特定样本优化过的透明化方案。果糖/甘油是一种快速且无毒的透明化方法,已被证明适用于多种组织来源的类器官(如人呼吸道、结肠、肾脏、肝脏和乳腺肿瘤类器官,以及小鼠乳腺类器官)12,但该方法不适用于使人视网膜类器官透明化。据我们所知,目前尚无研究报道果糖/甘油法在神经组织或类器官中的应用。因此,我们认为该透明化方法不适用于神经组织的透明化处理。有必要进一步研究以阐明这种不兼容性的根本原因。
另一个需要考虑的关键因素是所需的视场(FoV),因为它直接影响成像策略和光学元件的选择。大视场通常使用低倍物镜实现,这些物镜通常设计为无需浸没介质(例如空气,折射率 RI = 1.00)下使用。当对经BABB透明化处理的样品(折射率 RI = 1.56)进行成像时,这些物镜会遇到更大的折射率失配,导致成像深度聚焦偏移,必须在后期处理中予以校正。相比之下,油浸物镜(折射率 RI = 1.51)与BABB等透明化溶液(折射率 RI = 1.56)之间的折射率失配较小,因此无需重新校准。
简单的浸渍法通常无法实现高透明度,因此不适用于获取整体样本的高质量图像。组织透明化方案会因样本的膨胀或收缩而影响有效分辨率。根据实验目的的不同,膨胀或收缩可能各有优势。能够扩增样本的方案可以提升相同光学系统下细微结构的分辨率,使得原本无法清晰显示的细节变得可见。当需要观察过大的样本(否则无法放入样品室)或需要适应物镜工作距离时,收缩则可能是有利的。然而,由于收缩会压缩样本并可能导致内部距离发生形变,因此该技术不适用于尺寸评估或细胞间距离的精确测量。
另一个需要考虑的重要因素是与荧光蛋白的兼容性。大多数基于有机溶剂的方案在使用折射率匹配溶液包埋时,由于需要高温或会降解荧光蛋白,从而导致荧光蛋白淬灭。幸运的是,大多数方法与免疫标记技术兼容。然而,每个抗原表位的兼容性均需通过实验加以验证。
此外,大分子IgG穿过组织时可能受阻,从而降低染色效率,并将靶向结构的可视化局限于样本表面。对整体样本进行抗体染色可能需要数天甚至数周时间,具体取决于样本的大小和性质,这显著延长了实验方案的持续时间。
最后,必须考虑与光学仪器的兼容性。大多数基于有机溶剂的方法(ECi 除外)具有很强的腐蚀性,无法与商用样品腔室和浸没式物镜在化学上兼容。此外,一些透明化溶液的折射率与现有物镜(通常为水镜)所需范围不匹配。
该方案中有若干步骤需要特别注意。FluoClear BABB 作为一种疏水性透明方法,需要预先进行脱水处理。pH 值在维持内源性蛋白(如 GFP)荧光特性方面起着重要作用,因此必须确保酒精溶液的 pH 值已正确调节。脱水是实现完全透明的关键步骤。通过将样品依次浸入浓度递增的酒精溶液中孵育,可获得最佳效果。
样本的大小在抗体能否到达其特异性靶标方面起着重要作用。抗体可能无法均匀渗透,而滞留在样本外部。若出现这种情况,可考虑更换其他类型的去污剂(如 Tween-20 或皂苷),或提高去污剂及抗体的浓度和孵育时间。如果这些调整仍不足够,还可采用其他策略来改善抗体的通透性。对于较大样本(厘米级)的整体免疫标记,研究人员发现十二烷基硫酸钠(SDS)可促进抗体更深入地渗透24。SDS 会导致抗体三级结构的部分丧失,从而有效地使蛋白线性化,使其更易深入组织内部。随后通过洗去 SDS,可恢复抗体的抗原结合能力,从而实现对较厚组织更均匀的染色,并减少样本表面标记较强而内部较弱的常见梯度现象。
自行制备荧光标记的二抗具有多项优势,可为免疫标记实验设计提供更高的灵活性,允许自主选择特定的荧光染料与二抗组合,从而增加同一样本中可同时使用的荧光颜色数量。此外,还可优化荧光染料与抗体的标记比例,因此通常具有更强的荧光亮度。然而,也需考虑一些因素。自制二抗通常比商业化产品稳定性较差,应尽量使用新鲜制备的抗体。大多数自制二抗在4 °C条件下可保持与抗原的结合能力3至6个月,但其稳定性需通过实验具体确定,因为某些组合可能降解更快。此外,某些抗体-荧光染料的组合可能改变抗体对其表位的亲和力,导致出现部分或完全的非特异性标记。为确保实验结果的可靠性,建议在将自制二抗用于正式实验样本前,先使用对照样本(如培养细胞)进行验证测试。
该优化方案结合光学透明化与免疫标记技术,便于对整体视网膜类器官进行共聚焦成像。该方法可保持类器官的结构完整性,并实现对其内部关键视网膜细胞类型的鉴定。因此,本方案为研究人员提供了一种强大的工具,用于研究视网膜类器官的成熟过程及空间组织结构。
披露
作者声明无利益冲突。
致谢
我们感谢Angel Sandoval、Eric Calatayud、Gustavo Castro-Olvera、Marta Martin和Alina Hirschmann(ICFO-光子科学研究所)提供的技术支持。本研究得到以下资助机构的支持:CELLEX基金会;Mir-Puig基金会;西班牙经济与竞争力部——卓越研究中心Severo Ochoa项目&D(CEX2019-000910-S,[MCIN/AEI/10.13039/5001100011033]);西班牙科学、创新与大学部—国家研究局(PID2021-122807OB-C31 和 PID21-122807OB-C32);卡洛斯三世健康研究所(PI22/01747);La ONCE 基金会;加泰罗尼亚自治区政府 CERCA 计划;Laserlab-Europe(欧盟 H2020 协议编号 871124);欧洲社会基金(PRE2020-095721,M.C.)
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10倍 NA0.40 干式物镜 | Leica | HC PL APO CS2 | - |
| 63倍 NA1.40 油浸物镜 | Leica | HC PL APO CS2 | - |
| 抗GFP抗体 | Abcam | ab13970 | - |
| 苯甲醇(BA) | Sigma Aldrich | 13162 | - |
| 苯甲酸苄酯(BB) | Sigma Aldrich | W213802 | - |
| 底部玻璃培养皿 | MatTek | P35G-1.5-14-C | - |
| 牛血清白蛋白(BSA) | Sigma Aldrich | A7030 | - |
| Chx10抗体 | Sta Cruz Biotech | sc-365519 | - |
| Cytiva Illustra Nap-5凝胶过滤柱,Sephadex G-25 | Sigma Aldrich | 17-0853-02 | - |
| DAPI | Sigma Aldrich | D9542 | - |
| DMSO | Sigma Aldrich | D8418 | - |
| DRAQ5 | Thermofisher | 62251 | - |
| 染料(羧酸,琥珀酰亚胺酯) | Invitrogen或Abberior | - | - |
| ImageJ/Fiji | NIH | v1.50i | - |
| 倒置共聚焦激光扫描显微镜 | Leica microsystems | TCS SP8 STED 3X-FALCON | - |
| LAS X 3D图像处理软件 | Leica microsystems | - | - |
| mQ H2O | - | - | Synergy纯水净化系统提供的超纯水 |
| NaHCO3 | Acros Organics | 424270010 | - |
| 未标记的二抗IgG | Jackson Immunoresearch | - | - |
| 视蛋白蓝色抗体 | Millipore | AB5407 | - |
| 视蛋白RG抗体 | Millipore | AB5745 | - |
| 4%多聚甲醛(PFA) | Thermo scientific | J199943-K2 | - |
| PBS溶液 | Gibco | 18912-014 | - |
| 鬼笔环肽标记探针 | Thermofisher | - | - |
| 磷酸盐缓冲液(PBS) | Gibco | 10010023 | - |
| RECOV抗体 | Millipore | AB5585-I | - |
| RHO(RET-P1)抗体 | Sigma Aldrich | O4886 | - |
| 柠檬酸三钠二水合物 | Sigma Aldrich | C8532 | - |
| 吐温X-100 | Sigma Aldrich | T8787 | - |
| TUJ1抗体 | Covance | MMS-435P | - |
参考文献
- Lee, Y. J., Jo, D. H. Retinal organoids from induced pluripotent stem cells of patients with inherited retinal diseases: A systematic review. Stem Cell Rev Rep. 21 (1), 167-197 (2025).
- Onyak, J. R., Vergara, M. N., Renna, J. M. Retinal organoid light responsivity: Current status and future opportunities. Trans Res. 250, 98-111 (2022).
- O’Hara-Wright, M., Gonzalez-Cordero, A. Retinal organoids: A window into human retinal development. Development. 147 (24), dev189746(2020).
- Wahle, P., et al. Multimodal spatiotemporal phenotyping of human retinal organoid development. Nat Biotechnol. 41 (12), 1765-1775 (2023).
- Isla-Magrané, H., Veiga, A., García-Arumí, J., Duarri, A. Multiocular organoids from human induced pluripotent stem cells displayed retinal, corneal, and retinal pigment epithelium lineages. Stem Cell Res Ther. 12 (1), 581(2021).
- Isla-Magrané, H., Zufiaurre-Seijo, M., García-Arumí, J., Duarri, A. All-trans retinoic acid modulates pigmentation, neuroretinal maturation, and corneal transparency in human multiocular organoids. Stem Cell Res Ther. 13 (1), 376(2022).
- Avilov, S. V. Navigating across multi-dimensional space of tissue clearing parameters. Methods Appl Fluoresc. 9 (2), 022001(2021).
- Brenna, C., et al. Optical tissue clearing associated with 3D imaging: application in preclinical and clinical studies. Histochem Cell Biol. 157 (5), 497(2022).
- Bálint, Š, Verdeny Vilanova, I., Sandoval Álvarez, Á, Lakadamyali, M. Correlative live-cell and superresolution microscopy reveals cargo transport dynamics at microtubule intersections. Proc Nat Acad Sci USA. 110 (9), 3375-3380 (2013).
- Schwarz, M. K., et al. Fluorescent-protein stabilization and high-resolution imaging of cleared, intact mouse brains. PLoS One. 10 (5), e0124650(2015).
- Klingberg, A., et al. Fully automated evaluation of total glomerular number and capillary tuft size in nephritic kidneys using lightsheet microscopy. J Am Soc Nephrol. 28 (2), 452-459 (2017).
- Dekkers, J. F., et al. High-resolution 3D imaging of fixed and cleared organoids. Nat Protoc. 14 (6), 1756-1771 (2019).
- Wang, Y., Zhang, D. -H., Zhang, J. -Y., Chen, N., Zhi, G. -Y. High-yield synthesis of bioactive ethyl cinnamate by enzymatic esterification of cinnamic acid. Food Chem. 190, 629-633 (2016).
- Schellinger, A. P., Carr, P. W. Solubility of buffers in aqueous-organic eluents for reversed-phase liquid chromatography. LCGC North America. 22 (6), 544(2004).
- Jiang, S. -M., et al. β-III-Tubulin: A reliable marker for retinal ganglion cell labeling in experimental models of glaucoma. Int J Ophthalmol. 8 (4), 643-652 (2015).
- Guo, J., Walss‐Bass, C., Ludueña, R. F. The β isotypes of tubulin in neuronal differentiation. Cytoskeleton. 67 (7), 431-441 (2010).
- Lee, S., et al. TuJ1 (class III β-tubulin) expression suggests dynamic redistribution of follicular dendritic cells in lymphoid tissue. Eur J Cell Biol. 84 (2-3), 453-459 (2005).
- Fernando, M., et al. Differentiation of brain and retinal organoids from confluent cultures of pluripotent stem cells connected by nerve-like axonal projections of optic origin. Stem Cell Rep. 17 (6), 1476-1492 (2022).
- Belecky-Adams, T., et al. Pax-6, Prox 1, and Chx10 homeobox gene expression correlates with phenotypic fate of retinal precursor cells. Invest Ophthalmol Vis Sci. 38 (7), 1293-1303 (1997).
- Rowan, S., Cepko, C. L. Genetic analysis of the homeodomain transcription factor Chx10 in the retina using a novel multifunctional BAC transgenic mouse reporter. Dev Biol. 271 (2), 388-402 (2004).
- Andilla, J., et al. Imaging tissue-mimic with light sheet microscopy: A comparative guideline. Sci Rep. 7, 44939(2017).
- Olarte, O. E., Andilla, J., Gualda, E. J., Loza-Alvarez, P. Light-sheet microscopy: A tutorial. Adv Opt Photonics. 10, 111(2018).
- Power, R. M., Huisken, J. A guide to light-sheet fluorescence microscopy for multiscale imaging. Nat Methods. 14 (4), 360-373 (2017).
- Darche, M., et al. Light sheet fluorescence microscopy of cleared human eyes. Commun Biol. 6 (1), 1025(2023).
重印与许可
