我们介绍一种简单且高度可重复的方法,用于从拟南芥植物的叶面和质外体中分离细胞外RNA。
本文内容
摘要
摘要
植物叶片表面及叶片内的细胞间隙(即质外体)是植物与其互作微生物之间进行分子交换的关键界面。在前期研究中,我们已证实拟南芥莲座叶的质外体中存在多种多样的RNA分子。最近,我们的研究进一步发现,拟南芥植物还会主动将RNA分泌至其叶片表面。为研究这一现象,我们建立了一种高度可重复的方法,可从同一组拟南芥植株中同时收集叶片表面冲洗液(LSW)和质外体冲洗液(AWF)。此外,我们还探索了一种非侵入性技术——叶片表面拭子法(LSS),该方法通过无菌棉签轻轻擦拭叶片表面来收集RNA。为最大限度降低微生物污染风险,我们在分离胞外RNA(exRNA)前对LSW、AWF和LSS组分进行了过滤处理。通过变性RNA凝胶电泳分析纯化的exRNA,我们在LSW、LSS和AWF的RNA样品中均观察到丰富多样的长链RNA和小RNA分子。进一步使用免费开放软件ImageJ对exRNA样品及不同实验条件之间进行了定量与比较分析。本实验方案提供了一种高效且经济的方法,用于从植物叶片中分离和分析微量胞外RNA。这些RNA样品可进一步通过测序及其他分子分析手段进行表征,从而揭示exRNA在植物-微生物互作中的动态功能。
引言
叶片被多种微生物定殖,包括细菌、真菌、卵菌和原生生物,这些微生物可帮助植物抵御生物和非生物胁迫,最终促进植物的生长与发育1,2,3,4。植物叶片有两个主要的区室用于容纳与其互作的微生物:表生(叶表面)和内生(质外体)2。叶表面由一层疏水性的角质层保护,该层可防止水分流失,并含有蜡质和角质等成分。叶片的上表面(近轴面)通常具有特化的毛状表皮细胞,称为毛状体,其可抵御紫外线、调节温度,并对植食性动物起到防御作用。相比之下,质外体有利于气体和水分交换以进行光合作用,并提供一个湿润的环境,有利于微生物的定殖5。尽管存在这些差异,两个叶片区室均有利于特定微生物的生存,其中表生微生物网络在多样性方面比内生微生物网络更为复杂5。目前对这些微生物群落在各个胞外区室中如何被调控仍知之甚少。我们推测,宿主植物分泌的胞外RNA(exRNA)可能在一定程度上决定了微生物群落的结构。
在我们最近的研究中,我们报道了植物叶面存在多种不同于质外体或细胞裂解物中RNA的RNA种类6。尽管目前植物外泌RNA(exRNA)的研究主要集中于小分子非编码RNA,如微小RNA(miRNA)和小干扰RNA(siRNA),但其他类型的RNA种类(如核糖体RNA和转运RNA来源的片段)受到的关注较少;这些RNA片段可能不依赖序列互补性来调控细胞过程,尤其在缺乏RNA干扰机制的物种中具有潜在作用7,8,9。
本文所述方法能够利用同一组拟南芥植株,依次分离叶片表面冲洗液(LSW)和质外体冲洗液(AWF)中的RNA。此外,我们还介绍了一种非侵入性的正交技术——叶片表面拭子法(LSS),该方法通过使用无菌棉签轻轻擦拭喷雾后的叶片表面来收集RNA6。为最大限度降低微生物污染风险,我们在分离胞外RNA之前对LSW和AWF组分均进行过滤处理。为评估exRNA样品的数量及片段大小分布,我们描述了一种结合变性聚丙烯酰胺凝胶电泳与图像分析的方案,其中图像分析使用免费开放软件ImageJ完成。该方案为exRNA的分离与分析提供了一种高效且经济的方法。这些RNA样品可进一步用于测序和分子分析,有助于揭示胞外RNA在植物-微生物互作中的动态功能。
下述方案与我们先前描述的从植物胞外囊泡中分离RNA的方案有所不同10。本方案无需任何超速离心步骤,能够从完整的胞外洗脱液中分离RNA,而不仅限于胞外囊泡中的RNA。最重要的是,本方案提供了两种正交的方法用于从叶片表面分离RNA。据我们所知,在我们近期发表的研究之前,尚未有从叶片表面分离RNA的报道6。
方案
1. 缓冲液的配制与灭菌
- 配制囊泡分离缓冲液(VIB),其中包含 20 mM 2-(N-吗啉代)乙磺酸(MES),pH 6.0,2 mM CaCl2,以及 1 L 蒸馏水中含 0.01 M NaCl。
注意:为模拟叶片质外体的离子浓度,VIB 中 NaCl 的浓度已从 0.1 M 调整为 0.01 M。 - 将 VIB 在 121 °C 下高压灭菌 20 分钟(液体循环)。或者,使用 0.45 µm 真空滤器对 VIB 进行过滤除菌。
注意:此步骤旨在确保缓冲液无菌,因为任何微生物污染都可能诱发植物反应,进而导致实验结果出现变异性。该缓冲液可在室温下短期保存(灭菌后不打开瓶盖),或在 4 °C 下长期保存。
2. 植物材料与生长条件
- 将拟南芥(Arabidopsis thaliana)Col-0 野生型(WT)种子播种于装有标准育苗基质的4英寸圆形塑料盆中。播种后,用生物杀菌剂(600 mg/L)浸泡种子,盖上透明塑料罩,在4 °C黑暗条件下放置3天,以诱导同步萌发。
- 将播种后的花盆转移至温度控制的短日照培养室,设置温度为24 °C,光照周期为9小时光照/15小时黑暗,植物水平的光合光子通量密度为150 µmol·m−2·s−1(采用3,500 K和5,000 K光谱的32瓦荧光灯按50:50比例混合)。
- 约10天后,将单株幼苗移栽至含有育苗基质的36孔育苗盘插件中,并覆盖透明塑料罩,持续1-2周。
注:典型实验中,每种基因型/处理需要约12-24株健康植株。研究表明,6-7周龄的植株可获得最佳量的LSW和AWF RNA,且细胞污染风险最小。 - 根据所用育苗基质的情况,每10-15天浇水一次,以避免干旱或淹水胁迫。
3. 叶片表面RNA的收集
- 基于离心的方法(叶片表面冲洗法;LSW)
- 每个重复使用6至7周龄的拟南芥植株。
- 在开始LSW分离前,将Silwet-L77(下文简称润湿剂)加入无菌VIB培养基中,终浓度为0.001%(100 mL VIB中加入1 µL)。
注:Silwet-L77是一种润湿剂,可降低表面张力,使缓冲液能够覆盖叶片表面。 - 将100 mL VIB转移至500 mL喷雾瓶中。
- 使用精细剪刀小心地将拟南芥莲座叶从根部剪下。
- 用软毛刷清除叶柄上的多余土壤。
- 将莲座叶平放在托盘上,背面朝上。
- 用喷雾瓶向背面喷洒VIB加润湿剂,共喷五次。
- 小心翻转莲座叶,再向正面喷洒VIB加润湿剂五次。
- 为回收LSW,将喷洒后的莲座叶小心放入底部带孔的无针头60 mL注射器中(每个注射器最多可放入两株6周龄的莲座叶),并将注射器置于250 mL离心管内。用封口膜在注射器颈部缠绕固定,使注射器尖端悬空于离心管底部之上(参见图1)。
注:有关带孔60 mL注射器的制备细节,请参考先前发表的实验方案11。 - 将装有样品的离心管在4 °C条件下以100 g离心10分钟(使用JA-14转子)。
- 将LSW通过0.22 µm注射式滤器过滤,并收集滤液至置于冰上的50 mL离心管中。
注:通常情况下,采用本方案处理12株植物最终可获得约30 mL LSW。但此数值仅为基于每步喷洒次数的估算值。实际收集体积通常小于喷洒体积,因为在操作过程中部分缓冲液会损失。
- 叶片表面拭子法(LSS)
- 将已剪下的莲座叶按照前述部分(步骤3.1.1–3.1.7)所述方法喷洒VIB加润湿剂。
- 为回收LSS,使用无菌棉签擦拭叶片的正面和背面,并将吸有液体的棉签头紧压在15 mL离心管内壁上,挤出液体。
注:根据实验设计和预期结果,正面和背面的LSS样品可分别收集于不同的离心管中。 - 将LSS样品通过0.22 µm注射式滤器过滤至置于冰上的15 mL离心管中。
注:根据拭子取样的植株数量不同,每次实验收集到的LSS体积可能有所差异。
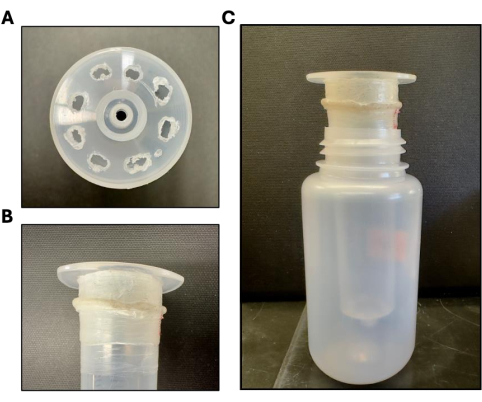
图 1:用于叶片表面清洗及质外体洗出液分离的工具。(A)为收集叶片表面洗出液(LSW)和质外体洗出液(AWF),将两株完整的Arabidopsis thaliana莲座叶置于一支60 mL注射器中,注射器末端经加热镊子熔化形成八个额外小孔,以形成清洗液流通的通道。(B)随后如图所示,用封口膜包裹无针头注射器的颈部区域。(C)此步骤可使注射器放入250 mL离心管中时,不接触管底。请点击此处查看该图的放大版本。
4. 收集质外体洗出液(AWF)
- 将用于LSW或LSS分离的同一组植物放入烧杯中,用蒸馏水轻轻冲洗两次。
- 用VIB对莲座叶进行20秒的真空渗透,步骤如下:
注意:尽管真空渗透过程在先前发表的方案中已有详细描述11,但此处再次列出以确保本方案的清晰性。- 将莲座叶小心放入法式压滤壶中,加入300–500 mL VIB。盖上壶盖,缓慢下压活塞,直至植物完全浸没。
- 将装有植物和缓冲液的法式压滤壶放入真空室中,使用真空泵抽真空20秒,缓冲液应刚开始出现沸腾现象。
- 释放真空,从真空室中取出法式压滤壶,打开壶盖,将VIB倒入另一个500 mL塑料烧杯中,并从压滤壶中取出莲座叶。
注意:同一天内,VIB可在同一基因型材料上重复使用多次,但一旦用于真空渗透后,不应保存至次日再用。 - 通过轻轻摇晃,并在纸巾上轻刷叶片,去除植物表面多余的VIB。
- 用吸水纸轻轻按压叶片表面,去除多余的缓冲液。
- 为收集质外体洗脱液(AWF),将莲座叶置于60 mL无针注射器内,再将注射器放入250 mL离心瓶中(方法同LSW收集),于4 °C、600 × g 条件下以慢速加速离心30分钟。
- 将合并的AWF通过0.22 µm注射器滤器过滤,并将滤液收集至置于冰上的15 mL离心管中。
注意:通常情况下,12株植物按此方案最终可获得约6 mL AWF。过滤后的LSW、AWF和LSS可立即使用,或储存于-80 °C备用。 - 在AWF分离完成后,记录每次重复所用植物的鲜重(FW),并以此数值对各样本中的RNA含量进行归一化处理(图2)。
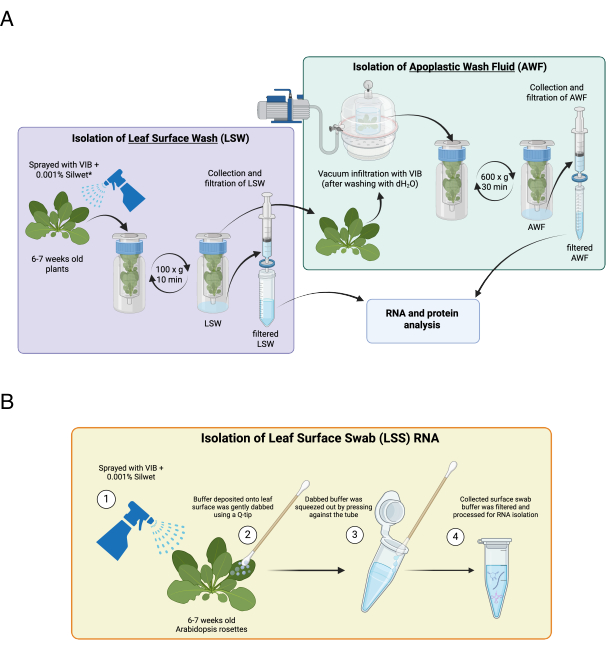
图 2:实验方案及叶片表面拭子法的示意图。(A)使用拟南芥莲座叶分离叶片表面洗液和质外体洗液的分步实验流程示意图。(B)用于分离叶片表面RNA的叶片表面拭子法(LSS)示意图。图示改编自Borniego等,20256的图S1和图S4。请点击此处查看此图的放大版本。
5. RNA 沉淀
- 在15 mL离心管中,将所需体积的AWF、LSW或LSS与0.1倍体积的3 M醋酸钠(pH 5.2)和1.0倍体积的冷异丙醇混合,使RNA沉淀。
- 加入糖原(20 mg/mL储存液),使其终浓度为20 µg/mL。
注意:确保用于RNA沉淀的离心管能够承受13,000 × g 的高速离心。此步骤中离心管破裂可能导致RNA样品丢失。 - 在-20 °C下孵育混合物至少1小时或过夜。
- 在4 °C下以13,000 × g 离心30分钟(使用JA-25.50转子)。
- 用预冷的70%乙醇洗涤沉淀物两次,然后在空气中干燥不超过10分钟。
- 将沉淀物重悬于100 µL超纯无DNase/RNase水中或VIB中,并将RNA转移至1.5 mL离心管中。
注意:此步骤之后,沉淀的RNA可在-80 °C下保存长达2周。
6. 基于TRIzol的RNA提取
- 向每支试管中加入1 mL TRIzol试剂,并在旋转摇床上振荡混匀。
注意:操作TRIzol时,须在通风橱中进行,并佩戴手套和眼部防护装备。 - 将试管置于室温(RT)下的台式旋转仪上旋转10分钟。
- 向每支试管中加入 200 µL 氯仿,然后短暂但剧烈地涡旋振荡。
警告:处理氯仿时,须在通风橱中操作,佩戴手套及护目装备。 - 将离心管在室温下静置约 3 分钟,然后在 13,000 × g 4 °C下离心15分钟。
- 将水相转移至已标记的1.5 mL离心管中,加入10 µg无RNase的糖原和等体积的冷异丙醇。
警告:对于产生的生物危害性废弃物(如苯酚废液),应根据机构规定将有机溶剂收集至指定的废液容器中。 - 将试管在 -20 °C 下孵育,时间不超过 1 小时。
注意:此步骤中RNA沉淀时间超过1小时会降低RNA提取效率,并导致RNA浓度极低。 - 为沉淀 RNA,将离心管在 13,000 × g 4 °C下孵育20分钟。
- 用预冷的70%乙醇洗涤RNA沉淀两次,晾干后溶于10–20 µL超纯无DNase/RNase水中。
- 将重悬的RNA分别于-20 °C或-80 °C保存,用于短期或长期储存。
7. 去除苯酚或胍污染
- 为去除RNA样品中的酚或胍污染,使用96%乙醇和乙酸铵进行一次或两次连续沉淀。
- 在10 µL RNA样品中加入1 µg糖原,加入2.5体积的96–100%乙醇前,先与0.5体积的7.5 M乙酸铵混合。
注意:此步骤中,乙醇的终浓度在整个体积中应为70–75%。 - 将混合物在-80 °C孵育30分钟,然后在4 °C下以13,000 × g离心20分钟。
- 用70%乙醇洗涤RNA沉淀两次,并将其重悬于10 µL超纯无DNase/RNase水中。
8. 用于定量与比较的RNA凝胶电泳
- 制备小型凝胶(7.2 cm × 8.6 cm × 0.75 mm),其中含有10%或15%聚丙烯酰胺、7 M 尿素和1× Tris-硼酸EDTA(TBE,pH 8.4),使用40%丙烯酰胺/Bis溶液(37.5:1)。或者,可使用商用变性小型凝胶(15% TBE-尿素凝胶)来电泳RNA样品。
- 将RNA样品与2×变性上样缓冲液(95%甲酰胺、10 mM EDTA、0.02% SDS、0.02%溴酚蓝和0.01%二甲苯青)按1:1混合,在65 °C变性5分钟,然后立即置于冰上。
- 在室温下,以0.5× TBE电泳缓冲液、220 V电泳约1小时15分钟,分离RNA样品。
- 作为大小标准,使用低分子量单链RNA标记物与14–30 nt单链RNA阶梯标记物的1:1混合液。
- 用含1× SYBR Gold核酸染料的0.5× TBE溶液染色凝胶10分钟,用蒸馏水洗涤两次,并使用成像系统成像(图3)。
- 为定量每泳道中分离的RNA,采用ImageJ文档中“凝胶分析”子标题下所述的凝胶分析方法:https://imagej.net/ij/docs/menus/analyze.html
- 由于每次比较CL RNA与exRNA样品的条带模式时均上样100 ng/µL的CL RNA,因此可相对于CL RNA估算exRNA样品的浓度(图4)。
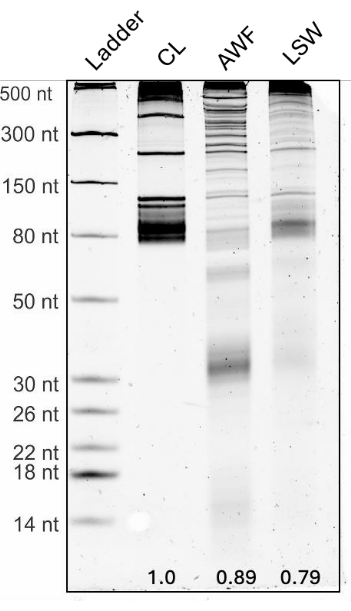
图3:植物叶片表面覆盖多种RNA。 分别取叶细胞裂解液(CL)中的100 ng RNA,以及从AWF和LSW中分离的2 µL RNA,在15%变性聚丙烯酰胺凝胶上进行电泳分离,并用SYBR Gold核酸染料染色,以观察和比较RNA条带模式。最左侧泳道显示RNA大小标准。使用ImageJ软件进行凝胶分析得到的密度测定结果标注在各泳道下方,表示相对于总叶细胞裂解液泳道中RNA量的RNA相对含量。请点击此处查看该图的放大版本。
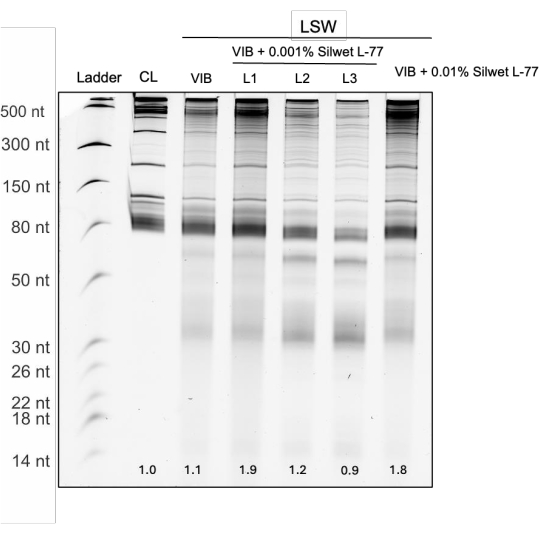
图4:LSW RNA的重复提取。首先使用VIB方法从LSW中分离RNA,未添加Silwet L-77或添加不同浓度的Silwet L-77(0.001% 或 0.01%)。可对同一组拟南芥植株重复进行LSW提取,以利用VIB + Silwet L-77(0.001%)富集LSW RNA。L1、L2和L3表示通过在同一组植株喷洒后连续三次离心收集LSW,并从中分离得到的RNA样品。将润湿剂浓度从0.001%提高至0.01%并未增强LSW RNA的提取效果。各泳道底部标注了使用ImageJ凝胶分析获得的密度测定结果。请点击此处查看该图的放大版本。
9. 使用基于微孔板的方法定量RNA的替代方案
- 使用CL RNA在超纯无RNase/DNase的水中配制标准RNA溶液。根据样品预期浓度确定标准品的合适浓度范围。使用以下RNA浓度:0、6.75、12.5、25、50、100、200 ng/µL,并为每个标准品配制足够体积,以进行两次技术重复。
- 用500 mM Tris HCl(pH = 8)配制1.5倍浓度的SYBR Gold核酸凝胶染料。
注意:SYBR Gold的染色效果依赖于pH值,在pH = 7.0至8.0之间具有最佳染色灵敏度。 - 微孔板设置:
- 向每个孔中加入99 µL dH2O。
- 向每个孔中加入1 µL RNA。RNA样品和RNA标准品均使用1 µL。
- 向每个孔中加入50 µL 1.5倍浓度的SYBR Gold。
- 将微孔板读数仪的参数设置如下:
振荡——线性或轨道振荡:0:03(分:秒)
读数——荧光终点检测,激发波长设为496 nm,发射波长设为540 nm。 - 利用标准品的测定值绘制标准曲线。根据标准曲线方程计算样品中的RNA浓度。
注意:可使用其他染料对TRIzol提取的样品进行RNA定量。使用Ribo488 RNA定量试剂可获得类似结果。该试剂公司提供了详细的操作手册。简要步骤如下:使用200 mM Tris(pH = 8)将染料稀释1000倍(1:1000)。进行测定时,向每孔加入99 µL高压灭菌的dH2O + 1 µL RNA(样品或标准品)+ 100 µL Ribo488稀释液,孵育5分钟,然后使用微孔板读数仪在480 nm激发波长和520 nm发射波长下检测荧光强度。两种RNA染料所得标准曲线见图5。
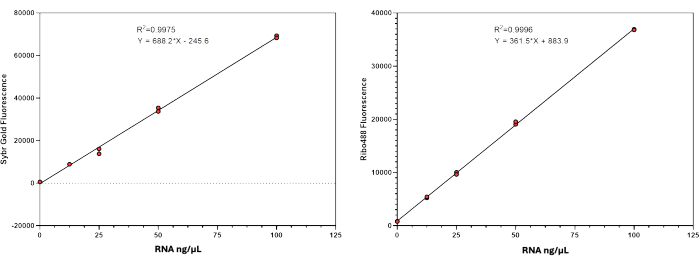
图 5:采用基于微孔板的 RNA 定量方法获得的标准曲线。两种不同的 RNA 染料 SYBR Gold(左)和 Ribo488(右)在每个样本进行两次技术重复的情况下均得到一致的结果。两种方法均可用于 RNA 定量。然而,每次需要定量 RNA 时,都应重新绘制标准曲线。请点击此处查看该图的放大版本。
结果
图 2A 展示了上述从拟南芥植株中分离叶表面洗脱液(LSW)和质外体洗脱液(AWF)的分步实验流程示意图。该方法仅需每组三至六株植物即可提取出 LSW 和 AWF,并能稳定地从两种组分中获得等量的 RNA。我们采用 NanoDrop 分光光度法测定细胞裂解物中的 RNA 浓度;然而,对于来自 LSW、LSS 和 AWF 的 RNA 样品,则依赖于对 SYBR Gold 染色的聚丙烯酰胺凝胶进行密度测定法进行定量。此定量步骤是必要的,因为胞外组分中含有未知污染物(可能是多糖),这些物质有时会共纯化并干扰基于吸光度的 RNA 定量方法,导致 RNA 浓度被高估。为克服这一局限性,我们计划在后续研究中采用非苯酚类的 RNA 纯化方法。
变性RNA凝胶分析显示,LSW和AWF中存在多种RNA种类,包括长链RNA和小RNA(图3)。值得注意的是,从叶片表面和质外体组分中均成功分离出等量的RNA,且RNA量已按植株鲜重(FW)进行标准化。令人意外的是,LSW和AWF组分的RNA片段大小分布彼此之间以及与总细胞裂解物(CL)RNA的分布均存在显著差异。这些差异表明,胞外RNA组分未被细胞内RNA污染。在三个组分中,质外体RNA(AWF)的片段大小分布最为多样,提示质外体RNA比叶片表面RNA降解更严重。
为了进一步检测拟南芥叶片表面是否存在RNA,我们采用了棉签法。该方法使我们能够分别且依次从叶片近轴面(上表面)和远轴面(下表面)收集RNA6。这些分析结果显示,两个叶面所含的RNA量相似。此外,仅通过吸收叶片表面的缓冲液即可收集到RNA,而无需离心步骤,这一能力进一步支持了RNA确实位于叶片表面,而非在离心过程中通过气孔被提取出来的结论。
使我们能够提取大量叶面RNA的一个主要改进是添加了润湿剂。在VIB中加入极低浓度(0.001%)的润湿剂后,我们回收的RNA量几乎增加了近两倍。使用Silwet L-77前后所获得RNA浓度的差异表明,润湿剂有助于提高RNA在叶面的溶解效率。然而,将润湿剂浓度从0.001%提高到0.01%并未进一步提升LSW RNA的提取效果(图4)。值得注意的是,对同一批叶片重复进行LSW RNA提取可再次获得额外的RNA(约为首次洗涤所得RNA量的63%),这表明叶片会持续向表面分泌RNA,且在处理叶片所需的约30分钟内,其表面RNA几乎有三分之二被更新。因此,当植物材料有限时,可通过连续多次洗涤同一叶片以提高总LSW RNA产量。不过,我们不建议洗涤超过三次,因为操作过程中可能导致叶片损伤累积,这一点可通过洗涤液出现绿色来判断。在这些实验中,RNA浓度是通过基于RNA凝胶的密度测定法进行估算的。然而,当需要同时评估多个样本时,可采用上述基于微量滴定板的RNA定量方法,以实现对RNA的精确定量(图5)。
讨论
本实验方案详细介绍了如何从健康的拟南芥莲座叶中分离叶面冲洗液(LSW)、叶面拭子样本(LSS)以及质外体冲洗液(AWF),并进行RNA提取。关键步骤包括实验前对VIB溶液的配制与灭菌、在受控条件下培养植株,以及使用Silwet-L77确保VIB溶液在叶面充分覆盖。这些操作可使LSW和AWF在按叶片鲜重归一化后获得等量的RNA。从这些细胞外组分中回收RNA需要谨慎操作,尤其是在沉淀步骤后对RNA沉淀物的处理。
尽管上述方案已针对拟南芥叶片进行了优化,但我们在其他植物物种上也成功应用了该方法,仅需进行少量修改。通过以下两个主要调整,可优化叶片表面的RNA提取:首先,进行多轮LSW分离;其次,提高润湿剂的浓度 。对于叶片表面高度疏水的植物物种(如水稻12,13),可能需要更高浓度的润湿剂。
此外,我们描述了一种使用棉签非侵入性采集叶片表面RNA的方法。采用这种叶片表面RNA提取方法时,我们确保将收集管置于冰桶中。考虑到叶片表面的RNA在室温下会分泌并积累,我们推测其在采集过程中仍能保持稳定。我们还比较了LSW和LSS RNA的电泳条带模式,二者在降解程度上未显示出明显差异。
上述方案使用TRIzol试剂从LSW、LSS或AWF中纯化RNA。该试剂利用苯酚去除蛋白质。然而,我们发现基于TRIzol的纯化方法无法去除果胶等多糖类物质,而这类物质在LSW和AWF中含量丰富6。这些共纯化的分子可能会影响通过分光光度法或荧光法进行的RNA定量结果。因此,我们依赖基于RNA凝胶的密度分析来评估exRNA浓度。目前我们正在研究基于层析柱的纯化方法,该方法应能更有效地将RNA与多糖分离。然而,这些方法通常会限制小RNA的回收,因为硅胶膜经过优化主要结合长度大于约200个核苷酸的RNA分子。小RNA可能在结合过程中穿过膜,或在洗涤步骤中丢失。因此,迄今为止,我们仍仅采用基于TRIzol的方法,以实现对包括小RNA在内的各种大小RNA的更全面回收,尽管该方法需要谨慎操作和精确的相分离。
此外,在进行RNA凝胶分析时,与AWF和LSW RNA相比,总细胞RNA样品中未观察到小于80 nt的片段,这主要是由于相对于大量存在的rRNA和tRNA,小片段RNA的丰度较低。AWF和LSW中出现较小条带的原因是丰度较高的rRNA和tRNA发生了降解,这种降解是在植物RNA分泌到胞外区室后自然发生的,并非在植物样品的采集和处理过程中引入的人工假象,该结论已通过测序和Northern印迹分析证实6。
我们的叶片表面冲洗分离方法是一种用途广泛的工具,具有广泛研究应用的重要潜力。该方法可用于分离叶片表面的生物分子,例如RNA、蛋白质及其他代谢物,这些分子可能对理解植物与微生物之间的相互作用至关重要。如果需要鉴定存在于AWF和LSW中的微生物,则可通过省略0.22 µm滤膜的过滤步骤来实现。
植物与多种微生物相互作用,包括细菌、真菌和病毒,这些微生物在其表面形成复杂的群落1。这些微生物群落可对植物的生长、抗病性及养分吸收产生深远影响2,3,4。通过使用本方法分离和分析叶片表面冲洗液,研究人员可提取胞外RNA(exRNA)和微生物代谢物,鉴定叶片表面存在的微生物群落,并探究这些群落在分子水平上的调控机制。
披露
作者无任何利益冲突需要披露。
致谢
本研究工作获得了美国国家科学基金会的两项资助,
项目编号分别为 IOS-2243531 和 IOS-2141969,授予 R.W.I.。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 14-30 nt 单链RNA梯度标记物 | Takara | 3416 | |
| 1.5 mL 微量离心管 | VWR | 20170-038 | |
| 10 mL 无针注射器 | BD | 303347 | |
| 15 mL 离心管 | VWR | 89039-668 | |
| 15% Mini-PROTEAN TBE-尿素凝胶,10孔/12孔,30 µL/20 µL | Bio-Rad | 4566053 / 4566055 | |
| 36孔育苗盘插件 | True Leaf Market | ||
| 40% 丙烯酰胺和双丙烯酰胺溶液,37.5:1 | Bio-Rad | 1610148 | |
| 4英寸圆形花盆 | True Leaf Market | ||
| 50 mL 离心管 | VWR | 89039-656 | |
| 50 mL 无针注射器 | BD | 309653 | |
| 96孔黑底培养板 | Grenier | 655090 | |
| Acrodisc 0.22 μm 注射器滤器 | Pall | 4192 | |
| Acrodisc 0.45 μm 注射器滤器 | Pall | 4454 | |
| 过硫酸铵(APS) | Sigma-Aldrich | A3678 | |
| 氯化钙 | Sigma-Aldrich | C1016 | |
| 氯仿(无RNase) | Macron Fine Chemicals | MK444110 | |
| 透明塑料罩 | Hummert International | 11 3348 | 任何塑料罩均可用于覆盖植物并保持湿度 |
| 医用级棉签 | Uline | S-21102 | |
| 乙醇(无RNase) | Decon Laboratories, Inc. | 2716GEA | |
| 法式压滤壶,24 fl oz | Snow Peak | CS-111 | |
| 无孔育苗托盘,10 x 20 | True Leaf Market | ||
| 冰桶 | Schuett-Biotech, Spongex | 3-680 052 | |
| 异丙醇 | Thermo Scientific | 149320050 | |
| JA-14 固定角转子 | Beckman Coulter;型号:JA-14 | 339247 | |
| Kimwipes 纸巾 | KCWW, Kimberly-Clark | 34120 | |
| 低分子量单链RNA标记物 | NEB | N0364S | |
| MES 水合物 | Sigma-Aldrich | M8250 | |
| 酶标仪 | BioTek | Synergy H1 | |
| Miracle-Gro | Miracle-Gro | 24-8-16 | 这是一种通用型植物营养剂。根据种植植物所用土壤来源的不同,可调整施用量。 |
| Nalgene 离心瓶 250 mL(无盖) | Nalgene | 3120 | |
| 纸巾 | |||
| Parafilm M 实验室封口膜 | Parafilm | S-25929 | |
| 塑料烧杯(500 mL) | Uline | S-21658 | |
| 无RNase糖原(20 mg/mL) | Thermo Scientific | R0561 | |
| RootShield Plus WP 生物杀菌剂 | BioWorks | 68539-9 | |
| 剪刀 | |||
| Silwet L-77 | Phytotech labs | S7777 | 可使用任意品牌的Silwet L-77。但Silwet会随时间推移而降低效果,建议每年更换一次。 |
| 氯化钠 | Sigma-Aldrich | S7653 | |
| 软尼龙毛画笔 | US. Art Supply | 6号 | |
| 喷雾瓶 | Uline | S-7272 | 可使用任意喷雾瓶,但喷雾模式应设置为喷淋状。 |
| Sungro 专业种植基质 | Sungro | ||
| Sungro 扦插基质 | Sungro | ||
| SYBR Gold 核酸凝胶染料(DMSO中10,000倍浓缩液) | Thermo Scientific | S11494 | |
| TEMED | Thermo Scientific | 17919 | |
| TRIzol 试剂 | Invitrogen | 15596026 | |
| 超纯无DNase/RNase水 | Invitrogen | 10977015 | |
| 尿素 | Sigma-Aldrich | U5378 | |
| 真空室,0.20 立方英尺 | SP Scienceware - Bel-Art Products - H-B Instrument | F42031-0000 | |
| 真空泵,3.5 CFM | Ideal Vacuum Products | P101532 | |
| 电子天平 | Escali | WBB480535 | 仅为示例,可使用任意电子天平。 |
参考文献
- Vorholt, J. A. Microbial life in the phyllosphere. Nat Rev Microbiol. 10 (12), 828-840 (2012).
- Ritpitakphong, U., Falquet, L., Vimoltust, A., Berger, A., M'etraux, J., L'Haridon, F. The microbiome of the leaf surface of Arabidopsis protects against a fungal pathogen. New Phytol. 210 (3), 1033-1043 (2016).
- Chaudhry, V., Runge, P., Sengupta, P., Doehlemann, G., Parker, J. E., Kemen, E. Shaping the leaf microbiota: plant-microbe-microbe interactions. J Exp Bot. 72 (1), 36-56 (2021).
- Vacher, C., Hampe, A., Port'e, A. J., Sauer, U., Compant, S., Morris, C. E. The phyllosphere: microbial jungle at the plant-climate interface. Ann Rev Ecol Evol Syst. 47, 1-24 (2016).
- Mahmoudi, M., Almario, J., Lutap, K., Nieselt, K., Kemen, E. Microbial communities living inside plant leaves or on the leaf surface are differently shaped by environmental cues. ISME Commun. 4 (1), ycae103(2024).
- Borniego, M. L., et al. Diverse plant RNAs coat Arabidopsis leaves and are distinct from apoplastic RNAs. Proc Natl Acad Sci U S A. 122 (1), e2409090121(2025).
- Ren, B., Wang, X., Duan, J., Ma, J. Rhizobial tRNA-derived small RNAs are signal molecules regulating plant nodulation. Science. 365 (6456), 919-922 (2019).
- Chery, M., Drouard, L. Plant tRNA functions beyond their major role in translation. J Exp Bot. 74 (7), 2352-2363 (2022).
- Panstruga, R., Spanu, P. Transfer RNA and ribosomal RNA fragments-Emerging players in plant-microbe interactions. New Phytol. 241 (2), 567-577 (2024).
- Baldrich, P., Rutter, B. D., Karimi, H. Z., Podicheti, R., Meyers, B. C., Innes, R. W. Plant extracellular vesicles contain diverse small RNA species and are enriched in 10- to 17-nucleotide "Tiny" RNAs. Plant Cell. 31 (2), 315-324 (2019).
- Rutter, B. D., Rutter, K. L., Innes, R. W. Isolation and quantification of plant extracellular vesicles. Bio Protoc. 7 (17), e2533(2017).
- Zhang, Z., et al. OsHSD1, a hydroxysteroid dehydrogenase, is involved in cuticle formation and lipid homeostasis in rice. Plant Sci. 249, 35-45 (2016).
- Zhou, L., Ni, E., Yang, J., Zhou, H., Liang, H., Li, J., Jiang, D., Wang, Z., Liu, Z., Zhuang, C. Rice OsGL1-6 is involved in leaf cuticular wax accumulation and drought resistance. PLoS One. 8 (5), e65139(2013).
重印与许可
