本方案结合流式细胞术和单细胞RNA测序技术,用于分离和表征出生后早期小鼠脑小脑中的小胶质细胞状态。该方法通过酶解消化、Percoll离心及免疫染色,揭示小胶质细胞的异质性,从而加深对其在小脑发育与疾病中作用的理解。
本文内容
摘要
摘要
小胶质细胞是大脑的常驻免疫细胞,在发育和疾病过程中表现出区域和环境特异性的转录谱。本方案介绍了两种互补的方法,用于研究小鼠小脑组织中的小胶质细胞群体:流式细胞术和单细胞RNA测序。
作为首先使用的方法,基于流式细胞术的实验方案针对出生后早期脑组织进行了优化,确保细胞分离的高效性以及不同实验条件间结果的一致性。该方法首先通过酶消化法进行组织解离,随后利用Percoll密度梯度离心去除髓鞘,从而获得高质量的神经细胞悬液,并基于CD45和CD11b的表达设计门控策略。通过活/死细胞染色评估细胞活力,使用荧光标记抗体对小胶质细胞表面特定标志物的表达进行分析。采用包被荧光素的乳胶微球进行补偿对照,并结合荧光减一(FMO)对照验证门控策略的准确性。
第二种方法采用10X Genomics的单细胞RNA测序技术,其上游分离步骤与前述方法相同,可实现不同条件下小胶质细胞的转录组学分析。通过基因表达分析鉴定小胶质细胞簇,并在实验组之间进行差异表达分析。当样本为多重混合时,仅使用随机森林分类器来区分雄性和雌性样本。
这些可重复且可调整的实验方案共同为研究小脑在早期脑发育过程中小胶质细胞的多样性及其在实验性干扰后的潜在改变提供了坚实的框架。
引言
出生后的早期是大脑发育的关键阶段,其特征是复杂的细胞和分子过程,为认知、情感和行为功能奠定基础1。然而,这一时期也具有脆弱性,因为外界干扰可能改变神经发育轨迹,导致长期的神经或精神疾病。小胶质细胞作为大脑的常驻免疫细胞,通过突触修剪、吞噬作用、免疫监视以及对环境损伤的响应,在塑造发育中的大脑方面发挥核心作用2,3。这些细胞表现出显著的可塑性,其转录谱会因脑区、发育阶段和病理环境的不同而发生变化4,5。
在发育中的大脑中,对小胶质细胞活化的准确分析需要具备强大且可重复的方法,以在未成熟脑组织背景下分析其动态表型。流式细胞术提供了一种可靠的解决方案,能够高通量地表征细胞群体及标志物表达6。然而,由于组织较为脆弱,且需要高效的细胞分离与富集方案,将该技术应用于出生后早期大脑的小胶质细胞研究在技术上具有挑战性7,8。
本文所述方案结合流式细胞术和单细胞RNA测序(scRNA-seq),用于分离和表征出生后早期小鼠脑中的小胶质细胞,特别关注从出生后第3天(P3)到出生后第30天(P30)的小脑区域,该脑区及发育阶段目前仍缺乏详细的实验方法参考文献9。
该实验流程包括酶解离、密度梯度离心以去除碎片并富集细胞,以及使用一组细胞外和细胞内标志物进行免疫染色。为表征小胶质细胞的异质性,本方案采用多种表面及细胞内标志物10,11。该方案不采用固定的分类标签(如促炎性或修复性),而是根据特定标志物的表达谱来定义亚群。例如,表达 CD80、CD86 和 iNOS,或 CD206 和 Arg1,或 CD86 和 CD64,或 CD163 和 CD206 的小胶质细胞被识别并分析为分子特征不同的亚群。这些标志物反映了小胶质细胞的不同活化状态10,11,并以表达谱的形式呈现。
这种多参数门控策略能够基于表面标志物的表达精确识别小胶质细胞亚群,为分析出生后大脑发育过程中免疫异质性提供了一个简化的分析框架。为了扩展表型分析并揭示转录多样性,在细胞分离后进行单细胞RNA测序。本研究建立了一种一致且可扩展的工作流程,以增进对神经发育过程及小胶质细胞活化长期影响的理解。通过在具有发育阶段和区域特异性信息的框架内整合优化的流式细胞术与单细胞RNA测序技术,该方案为研究生命早期小胶质细胞生物学及其与神经发育结局的相关性提供了强有力的工具。
方案
所有动物实验程序均经圣心医院研究中心伦理委员会审查和批准,并符合圣心研究中心和蒙特利尔大学(加拿大魁北克省蒙特利尔)的指南与政策。
1. 从脑组织中分离细胞
- 麻醉/安乐死后,迅速将整个脑组织从颅腔中取出,并置于含有小胶质细胞培养基的15 mL离心管中(参见 材料表)。将离心管置于冰上。如有需要,对其他小鼠重复相同操作步骤。
本研究中使用的所有小鼠均来自特鲁布莱博士实验室内部繁育的种群。实验小鼠通过杂交 B6.129- 获得。Cx3Cr1CreERT2-EYFP/WT B6-Rosa26小鼠iDTR/WT 小鼠均最初购自杰克逊实验室。该繁殖策略产生了对目标基因杂合的后代 IDTR 等位基因,实现条件性耗竭 Cx3Cr1表达细胞(主要是小胶质细胞)通过他莫昔芬诱导型 Cre-loxP 系统。组织采集前,小鼠通过腹腔注射氯胺酮(150 µg/g)和赛拉嗪(10 µg/g)进行麻醉。根据机构动物护理与使用指南,小鼠在深度麻醉状态下通过断头法实施安乐死。 - 可选择保存整个大脑,或根据需要对特定脑区进行解剖。解剖操作应在含有小胶质细胞培养基的小型培养皿中进行(参见 材料表置于冰上以维持细胞活性。
注意:本方案已验证适用于P1至P30小鼠的全脑和小脑组织。 - 移除小胶质细胞培养基,然后在培养皿中使用解剖刀将脑组织精细切割。
- 对于酶消化,将匀浆后的组织转移至5 mL离心管中。加入2 mL HBSS(1x),并添加2 mg/mL胶原酶D和14 µg/mL DNase I(参见 表1用封口膜密封管盖。将试管置于37 °C水浴中孵育15分钟,每5分钟摇动一次。为终止消化反应,将试管置于冰上。
- 将匀浆液通过140 µm的金属网筛过滤(参见 材料表)以去除大块碎片。使用玻璃匀浆器解离细胞。
- 用小胶质细胞培养基多次洗涤滤膜(每次3 mL)。
- 使用10 mL移液管收集滤液,并转移至15 mL离心管中。将溶液在500 ×g离心 g 4 °C下离心7分钟。
- 弃去上清液,将离心管小心倒置。在摇床上轻轻刮擦沉淀物以重悬。
- 加入10 mL 37%的基于二氧化硅的胶体培养基溶液(参见 表1) 去除髓鞘和碎片。将溶液在500 × g下离心 g 4 °C下,以最小刹车力离心10分钟。
- 用10 mL移液管吸除溶液顶部的髓鞘层。
注意:持续抽吸可防止髓鞘重新混入溶液中。 - 加入 10 mL HBSS (1x) 洗涤细胞,于 500 × g 离心 g 4 °C下离心7分钟。
- 弃去上清液。用移液架轻轻刮取沉淀物以重悬,然后加入 10 mL 荧光激活细胞分选(FACS)缓冲液(参见 表1)。将溶液在500 × g离心 g 4 °C 下离心 10 分钟。
- 弃去上清液,重悬最终的细胞沉淀,并保留细胞。分离得到的细胞 now ready for 流式细胞术染色或单细胞 RNA 测序。
- 用于单细胞RNA测序的细胞分离,在显微镜下使用台式稳定的荧光试剂对细胞进行计数(参见 材料表)以区分活细胞与死细胞核细胞,同时使用台盼蓝(见 材料表)。确保细胞处于良好状态,存活率可达90%,浓度达到1000个细胞/µL。后续步骤详见第9.1节。
注意:整个实验过程中,离心管需始终保持在冰上。除Percoll步骤明确要求使用最小刹车外,所有离心步骤均须在4 °C下进行,并使用最大刹车。为获得最佳结果,建议在同一天内完成全部实验流程。进行单细胞RNA测序实验时,步骤1.11中用于分离的所有溶液均需过滤,第二次洗涤使用HBSS (1x),步骤1.12中保留70–100 µL细胞悬液。
2. 流式细胞术细胞外染色实验方案
- 将所有细胞转移至带有锥底的96孔板中(参见材料表)。在4 °C条件下,以500 g离心5分钟。
- 迅速将板倒置,一次性移除上清液。
- 用25 µL封闭液重悬细胞沉淀(参见表1),室温(RT)孵育15分钟。
- 为配制细胞外抗体染色混合液(参见表2),先将抗体原液在10,000 × g离心,以去除可能存在的聚集体。吸取上清液中所需体积(勿扰动沉淀),用FACS缓冲液调整总体积至25 µL,配制成染色混合液。
- 向每孔加入25 µL细胞外抗体混合液,室温孵育20分钟。
注意:所有抗体在用于实验前,均已在小脑(或脑组织)单细胞悬液上进行滴定,以确定最佳工作浓度。滴定通过系列稀释生成饱和曲线,并选择信号达到平台期且背景信号最低的稀释比例用于信号分型。 - 不进行混匀,向各孔加入150 µL FACS缓冲液。在4 °C条件下,以500 × g离心5分钟。将板倒置,一次性移除上清液。
- 用200 µL FACS缓冲液重悬细胞沉淀,在4 °C条件下,以500 × g离心5分钟。将板倒置,一次性移除上清液。在相同条件下,使用200 µL FACS缓冲液重复洗涤一次。
3. 胞内染色
- 将细胞重悬于 100 µL 皂苷-多聚甲醛(PFA)缓冲液中(参见 表1)以固定并透化细胞。室温避光孵育10分钟。
- 不混匀,直接加入100 µL皂苷缓冲液(参见 表1). 将培养板在 500 × g 4 °C 下离心 6 分钟。将培养板倒置,一次性移除上清液。
- 将细胞沉淀重悬于 200 µL 皂苷缓冲液中。通过加入 20 µL 微珠制备补偿对照(参见 材料表) 加入11个空孔中。将该板在500 × g 4 °C下离心6分钟。将培养板倒置,一次性移除上清液。
- 用于制备细胞内抗体染色混合液(参见 表3),将抗体储备液在10,000 × g 去除潜在的聚集体。勿扰动沉淀,小心吸取上清液中所需体积用于配制染色混合液,并用皂苷缓冲液调整体积至 50 µL。
- 将沉淀重悬于50 µL细胞内抗体混合液中(参见下文 表3加入每种抗体各1 µL至磁珠孔中,室温孵育30分钟。
- 不进行混匀,向每个细胞样品孔中加入 150 µL 皂苷缓冲液,并向每孔补偿对照孔中加入 100 µL FACS 缓冲液以洗涤微珠。将板在 500 × g 4 °C下离心6分钟。将板倒置,一次性移除上清液。
- 将细胞沉淀重悬于 200 µL 皂苷缓冲液中,将补偿对照重悬于 200 µL FACS 缓冲液中。以 500 × g 4 °C下离心6分钟。将板倒置,一次性移除上清液。在相同条件下,用200 µL皂素缓冲液重复洗涤一次。
- 将细胞及补偿对照重悬于200 µL FACS缓冲液中。将悬液转移至FACS管中,4 °C避光保存,直至进行流式细胞术检测。
注意:所有涉及光敏试剂的操作步骤均需在避光条件下进行。一个珠子孔不含抗体,对应未染色珠子管。
4. 流式细胞术数据采集
- 打开流式细胞仪,然后开启计算机。
- 启动流式细胞仪软件,在细胞仪选项卡下选择运行以启动流体系统。
- 单击新建文件夹并命名,创建一个新的实验文件夹。然后单击新建实验为实验命名,并单击新建试管以添加样本和试管。
5. 设置补偿对照
- 为面板中使用的每种荧光染料准备单染补偿微珠,并设置未染色对照。
- 将补偿管上机至流式细胞仪。将前向散射光(FSC)和侧向散射光(SSC)电压设置为约250。
- 调整每个荧光通道的电压,使阴性细胞群位于坐标轴的第一对数区间内。
- 每管至少采集5,000个事件。
- 使用补偿矩阵校正光谱重叠,直至所有阳性峰均与阴性群体明显分离,并在相应坐标轴上居中于104 以上。
注意:每次实验均必须进行补偿对照,因为流式细胞仪设置或荧光染料性能可能显著影响光谱重叠。尽管在某些脑组织应用中推荐使用基于细胞的补偿对照,但本方案采用抗体捕获微珠,原因是从小鼠P3小脑中可获得的小胶质细胞数量较少,限制了基于细胞的补偿的可行性。抗体荧光信号最初在脑源性细胞上进行了验证,发现其信号强度与微珠系统相当。在初始面板优化过程中,应包含未染色的脑源性细胞悬液,以评估组织自发荧光并建立基线信号水平。该对照对于在每个荧光通道中正确设定阴性群体至关重要。
6. 准备并获取FMO对照
- 针对每个关键标记物,制备荧光减一(FMO)对照,该对照包含除待检测抗体外的所有抗体。
- 使用与完全染色样本相同的采集参数运行FMO对照。
- 利用FMO图定义低表达或重叠群体的设门阈值,并区分真实阳性信号与背景噪声。
注意:应在初始抗体组合优化阶段进行FMO对照,以确定准确且可靠的设门边界,尤其是在脑等自发荧光较高的组织中。如果染色组合、仪器设置或实验条件发生改变,则必须重新进行FMO对照。在后续使用相同已验证抗体组合和流式细胞仪设置的实验中,可重复使用先前确定的设门阈值,以确保生物学重复样本间的一致性。
7. 准备并获取同型对照
- 使用与检测抗体在荧光染料种类和浓度上相匹配的同型对照抗体对对照样品进行染色。
- 采用相同的流式细胞仪设置获取数据。
- 仅将同型对照用于评估潜在的非特异性结合,特别是在检测细胞内标志物或特性不明确的抗体时。切勿将同型对照用于设门,因为其结合动力学与特异性抗体不同。
注意:同型对照不适合用于设门,也不应用于定义细胞群体。其使用为可选,仅应在特定情况下用于验证抗体的特异性。
8. 流式细胞术设门策略
- 创建以下用于连续设门的点图:
FSC-A 与 SSC-A 对比以排除碎片
FSC-A 与 FSC-H 对比以筛选单细胞。
FSC-A 对比 Amcyan(活性染料)以圈选活细胞。 - 将小胶质细胞鉴定为 CD11b+CD45+ 使用 CD11b (FITC) 与 CD45 (AF700)。
注意:由于发育阶段(P3-P15)、炎症环境以及酶消化的影响,TMEM119 和 P2RY12 无法在流式细胞术中可靠地区分小胶质细胞与其他髓系细胞群体。CD11b+CD45+ 采用此前在出生后脑组织中已验证的设门策略,以鉴定小胶质细胞群体并最大限度减少污染。在对照条件下,从P3至P15小鼠全脑中分离的小胶质细胞典型产量为每脑30,000至200,000个细胞。针对专门聚焦小脑的实验,每脑平均可获得约5,000个小胶质细胞。 - 使用FMO对照定义激活标志物的设门阈值。
- 根据免疫相关标志物的表达鉴定小胶质细胞亚群:
CD80+ (超亮 436)
CD86+ (PE)
iNOS+ (PE-eFluor 610) - 通过标志物表达组合进一步表征小胶质细胞亚群:
CD206+ (APC)然后是Arg1+ (PE-Cy7)
CD86+ (PE)然后 CD64+ (PerCP-eFluor 710)
CD163+ (超亮600)然后 CD206+ (APC)
注意:使用标记物组合来描述小胶质细胞群体内的分子异质性。这些亚群仅基于标记物表达情况进行报道,并未赋予特定的功能角色,这符合当前认可小胶质细胞可塑性及依赖于环境背景的表型的标准。 - 加载实验样品。将FSC设为300,SSC设为200。使用低流速并记录所需数量的事件。
- 采集完成后,清洗流式细胞仪,并将数据导出为.FSC文件以供分析。
- 使用流式细胞仪软件分析数据。
9. 单细胞RNA测序样品
- 采用与流式细胞术所述相同的细胞分离方案(参见步骤 1.14),将解离后的细胞重悬于 FACS 缓冲液中。在收集管及所有后续操作步骤中均使用 FACS 缓冲液,以维持细胞稳定性。
- 如果目标是从脑区捕获所有细胞类型,则不应进行荧光激活细胞分选(FACS)。然而,若实验需要富集小胶质细胞,则应在测序前加入 FACS 分选步骤。
- 立即使用台式稳定的荧光活率染料和台盼蓝(参见材料表)评估细胞活力,并用血细胞计数板在显微镜下计数细胞(参见材料表)。
- 确认细胞悬液的活力至少达到 90%,并在进行单细胞 RNA 测序前将其调整至约 1,000 个细胞/µL 的最终浓度。
- 将所有样品置于冰上,并在组织解离后立即处理,以尽量减少细胞应激和转录变化。
- 按照制造商说明书将样品成对进行多重化。
注意:将同一实验组的一只雄性与一只雌性样本混合,以降低实验成本。 - 制备单细胞 RNA 测序文库(参见材料表),并遵循推荐的制造商操作指南。
注意:文库制备由蒙特利尔大学免疫与癌症研究所(IRIC)基因组学平台完成。 - 使用测序系统对单细胞 RNA 测序文库进行测序,每通道平均测序深度为 3200M reads。
注意:测序工作在蒙特利尔的魁北克基因组中心完成。
10. 单细胞RNA测序分析
- 使用 10X Genomics 的 Cell Ranger 软件(v8.0.0)和小鼠 GRCm39 2024-A 参考基因组进行唯一分子标识符(UMI)计数分析。使用 Seurat R 软件包(v5.1)进行下游分析。
- 通过排除线粒体 RNA 超过总 RNA 30% 的细胞(例如,图 1A),或选择更严格的阈值以去除可能存在应激的细胞,进行质量控制。过滤掉 log10GenesPerUMI 大于 0.75 的低质量细胞(图 1B),独特特征计数("nUMI")低于 500,以及每个细胞检测到的基因数("nGene")大于 300 的细胞(图 1C)。接下来,使用 R 中的 "scDblFinder" 软件包去除双细胞滴。通过 nUMI 与 nGene 的相关性图展示阈值,此时过滤效果应已可见(图 1D)。
- 通过使用 Seurat 的 SelectIntegrationFeatures 函数在每个样本中识别 2,000 个高变基因,以减轻批次效应。
- 使用典型相关分析(CCA)整合数据集,并执行主成分分析(PCA)以降低维度。使用 RunPCA 函数,设置 50 个主成分(PCs),对数据进行缩放,并消除不需要的变异来源(例如线粒体含量)。根据肘部图和 JackStraw 分析评估保留的主成分数量。
- 通过 Seurat 的 RunUMAP 函数使用均匀流形近似与投影(UMAP)算法可视化聚类。使用 FindAllMarkers 函数识别聚类特异性基因表达谱。通过将鉴定出的标志基因与 curated 单细胞资源(如 PanglaoDB 和 CellMarker)进行交叉比对,基于转录特征注释聚类(图 2)。细胞类型(包括小胶质细胞)由这些转录组谱推断得出,而非基于预定义的表面标志物。
11. 基于性别的细胞分离
- 根据性别特异性基因的表达情况鉴定雄性和雌性细胞:雌性特异性基因包括四个(Xist, Tsix, Usp9x, Eif2s3x),雄性特异性基因包括三个(Eif2s3y, Uty, Ddx3y)。
- 利用 Seurat 的 Subset 函数,筛选出在上述任一基因中标准化 UMI 计数 > 1 的细胞,从而对雄性和雌性细胞群进行分类。
- 分别对雄性和雌性细胞进行子集划分,生成独立的 Seurat 对象,并将这些对象分别存储和分析,用于后续比较。
- 使用 FeaturePlot 和 VlnPlot 函数可视化性别特异性基因的表达,验证分类结果,确保雄性和雌性细胞群之间具有清晰的分离。
注意:仅当样本通过混合一个雄性和一个雌性进行多重测序时,才应执行步骤 12.1 和 12.2。
12. 基于统计模型的小胶质细胞分类
- 使用约 1,000 个已知分组标签的细胞训练集,在 R 中构建五个统计模型(随机森林、逻辑回归、朴素贝叶斯、支持向量机、决策树)。
- 采用 10 折交叉验证和受试者工作特征(ROC)曲线评估模型性能(图 3)。利用 Seurat 中的 FindAllMarkers 函数识别对分类有重要贡献的关键基因。
- 选择 ROC 曲线下面积(AUC)最高的模型。基于其更优的 AUC 分数,最终选定随机森林模型。
- 使用 RandomForest R 软件包中的 predict 函数,将所选模型应用于未分类细胞。通过 merge 函数将预测的分类结果与 Seurat 中先前注释的数据集进行合并。
- 通过 FeaturePlot 和 VlnPlot 可视化标记基因的表达情况,以验证分类结果。为确保预测细胞身份的一致性,采用适当的统计检验方法(例如 Fisher 精确检验),评估在加入已分类细胞前后,标记基因集重叠部分的富集情况。
13. 小胶质细胞差异基因表达分析
- 使用 Seurat 函数"FindMarkers"对两个特定关注组别进行差异基因表达(DEG)分析,其中ident.1 代表目标组,ident.2代表参考组。
注意:输出结果列出的是在ident.1中相对于ident.2差异表达的基因。在此背景下,上调基因指在ident.1中表达水平高于ident.2的基因,而下调基因则在ident.1中表达较低。这些比较用于生成火山图并解释特定条件下的转录变化。 - 筛选调整后P值≤ 0.05的差异表达基因(DEGs)。对于两个特定组间的比较,使用FindAllMarkers 函数,并设定以下参数:基因在至少10%的细胞中表达(min.pct = 0.1),且log2倍数变化阈值为0.25(logfc.threshold=0.25)。对于所有小胶质细胞的多组间比较,使用相同参数的FindAllMarkers 函数。调整后P值≤ 0.05的基因被视为显著差异表达。为可视化差异表达基因的表达模式,使用EnhancedVolcano 包中的内置函数生成火山图(图4)。
- 通过首先检查用于识别小胶质细胞的流式细胞术标志物(特别是CD45+和CD11b+)来比较流式细胞术结果,这两个标志物分别对应基因Ptprc和Itgam。使用 Seurat 中的FeaturePlot 函数验证基因表达。
- 评估通常与不同小胶质细胞状态相关的标志物,包括CD80和NOS2,以及Mrc1、Arg1、Fcgr1和CD163。使用 Seurat 函数FeaturePlot和DotPlot 可视化这些基因在细胞簇中的表达情况。
- 使用 Seurat 中的DotPlot 函数生成点图,以汇总标志物表达情况并验证细胞群体分类。
结果
本方案通过流式细胞术有效分析小鼠脑组织样本中基于特定表面标志物和细胞内标志物表达特征的小胶质细胞群体。以下部分详细描述了实验流程关键步骤所获得的结果,重点展示在不同实验条件下小胶质细胞亚群的分布及其异质性。
补偿与设门策略验证
使用补偿微珠校准荧光信号,并校正不同荧光染料之间的光谱重叠。每种荧光染料的阳性和阴性群体均清晰分离,从而能够准确生成补偿矩阵。在抗体组合优化过程中,首先通过荧光减一对照(FMO)验证设门阈值,以区分真实信号与背景信号,尤其适用于表达较弱或存在重叠的标志物。在后续使用相同染色组合和流式细胞仪设置的实验中,重复使用这些阈值,以确保结果的一致性。同时设置同型对照,用于监测潜在的非特异性结合,特别是针对细胞内标志物,但同型对照不用于设门判断。
小胶质细胞鉴定
活/死细胞(Amcyan)设门策略成功排除了死细胞。该设门策略根据CD45(AF700)和CD11b(FITC)的表达情况,有效分离出小胶质细胞群体。前向散射(FSC)和侧向散射(SSC)参数经过优化(FSC = 300,SSC = 200),使小胶质细胞群落在散点图中居中(图5)。
小胶质细胞表型分析
通过点图分析,可根据表面标志物和细胞内标志物的差异表达来鉴定小胶质细胞亚群。在FlowJo软件中采用特定的设门策略,鉴定出表达CD80(Super Bright 436)、CD86(PE)和iNOS(PE-eFluor 610)的一群小胶质细胞亚群(图6A)。同时采用双重设门方法,定义表达CD206(APC)和Arg1(PE-Cy7)的细胞亚群(见图6B)。其他细胞群体则通过共表达CD86(PE)和CD64(PerCP-eFluor 710),以及CD163(Super Bright 600)和CD206(APC)进行表征(图6C、D)。这些表型特征反映了小胶质细胞群体中由标志物定义的异质性,并表明本方案能够在不预设固定功能状态的前提下,区分出多个在转录和免疫特征上各不相同的亚群。
小胶质细胞单细胞分析
采用均匀流形近似与投影(UMAP)方法可视化细胞异质性,并在其他脑细胞类型中识别小胶质细胞簇。每个点代表一个单细胞,聚类根据转录相似性进行颜色编码(图2)。
在小胶质细胞簇内进行差异表达分析,以鉴定在实验条件下受调控的基因。调整后P值≤ 0.05的基因被视为差异表达基因。
绘制火山图以可视化小胶质细胞中差异表达的基因,突出显示具有高倍数变化和统计学显著性的基因(图4)。
为了将这些单细胞结果与流式细胞术数据进行比较,检测了小胶质细胞标志物 CD45 和 CD11b(Ptprc 和 Itgam)的表达。UMAP 图显示了它们在不同细胞群体中的表达情况(图 7)。
最后,通过检测选定的免疫相关标志物的表达,以表征小胶质细胞间的转录异质性。小提琴图展示了单细胞水平下 CD80 和 NOS2,以及 Mrc1、Arg1、Fcgr1 和 CD163 等基因的表达情况(图8)。这些标志物的表达模式可与基于流式细胞术的分析结果进行比较,并揭示在不同实验条件下小胶质细胞亚群的分子多样性。
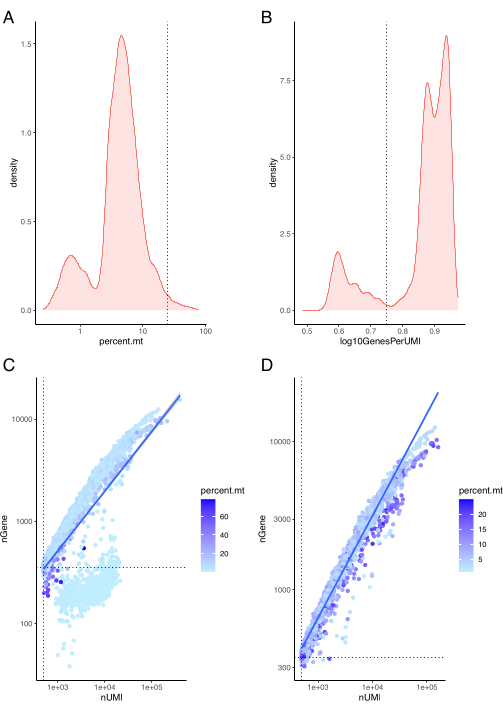
图1:单细胞转录组数据的质量控制。(A)细胞中线粒体RNA含量的分布。排除线粒体RNA含量>30%的细胞,以去除可能处于应激状态或正在死亡的细胞。(B)过滤掉log10GenesPerUMI > 0.75的细胞,以确保基因与UMI的比例一致,并减少低复杂度文库带来的噪声。(C)同时排除检测到的转录本数(nUMI)少于500或检测到的基因数(nGENE)超过300的细胞,以消除低质量细胞或多重细胞。(D)nUMI与nGene的相关性图,展示过滤阈值的影响。检测到的双细胞(doublets)已被去除。请点击此处查看该图的放大版本。

图2:单细胞转录组的UMAP可视化。 UMAP图展示了来自两个独立动物的单细胞基于转录组特征的分布情况。每个点代表一个细胞,按簇的身份进行颜色编码。小胶质细胞簇在其他细胞群体中被识别出来。 请点击此处查看该图的放大版本。
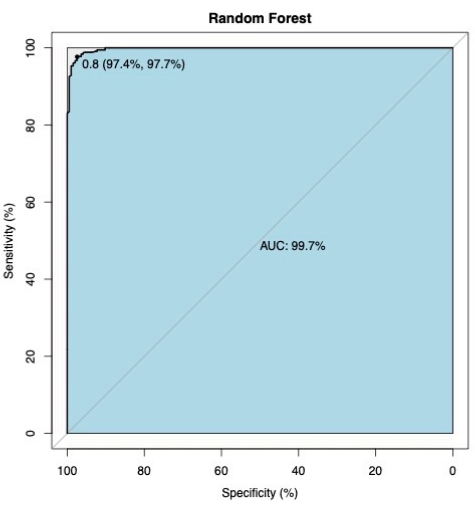
图3:通过交叉验证评估的随机森林分类器的ROC曲线。受试者工作特征(ROC)曲线展示了基于基因表达谱区分小胶质细胞与其他脑细胞类型的随机森林模型的性能。该模型在约1000个已知标签的细胞数据集上进行训练,并采用10折交叉验证进行评估。在测试的五种统计模型(随机森林、逻辑回归、朴素贝叶斯、支持向量机和决策树)中,随机森林模型取得了最高的分类性能。曲线下面积(AUC)反映了模型的准确性。请点击此处查看此图的放大版本。
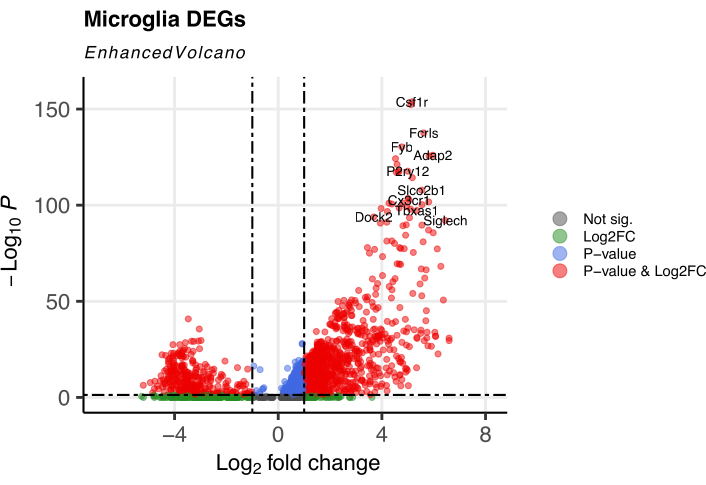
图 4:小胶质细胞中差异基因表达分析。 火山图展示了两组实验组(对照组 vs. 小脑脑损伤组)之间小胶质细胞差异表达基因的 log2 倍数变化与校正后 P 值的关系。上调基因在目标组(ident.1)中表达水平更高,而下调基因相较于对照组(ident.2)表达水平降低。图中已标注关键的显著差异表达基因。 请点击此处查看该图的放大版本。
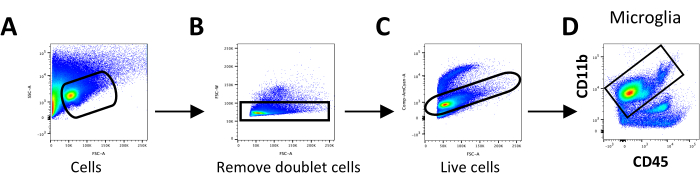
图5:通过流式细胞术鉴定小胶质细胞的设门策略。(A)应用于对照组出生后第3天(P3)小鼠小脑细胞的设门策略。(B)选择单细胞以排除双联体。(C)使用活细胞染料鉴定活细胞;排除前向散射光面积(FSC-A)较低的事件,以去除碎片并确保对完整细胞进行分析。(D)小胶质细胞被鉴定为CD45+和CD11b+,并分为两个不同群体:CD45low-CD11bint代表静息状态的小胶质细胞,CD45int-CD11bhigh代表活化状态的小胶质细胞。请点击此处查看该图的放大版本。
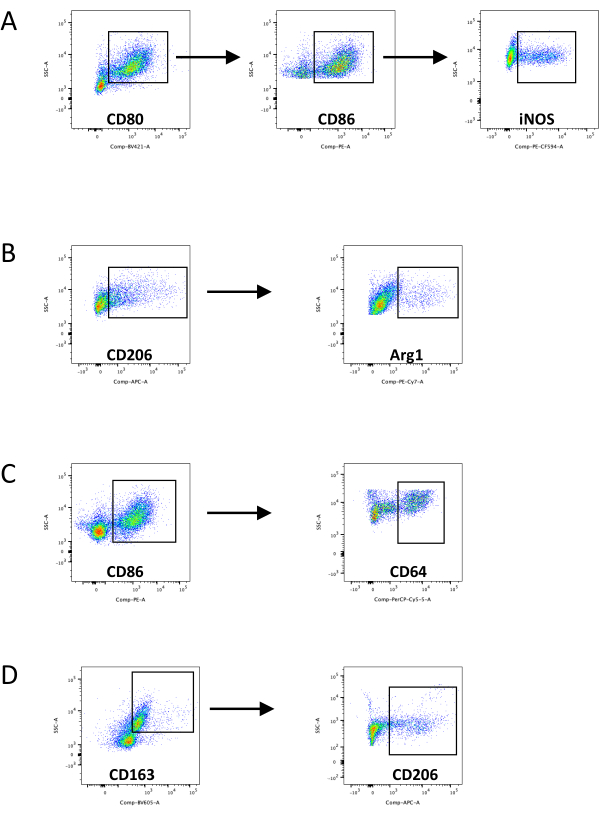
图6.通过流式细胞术分析小胶质细胞标志物表达谱。 (A)基于CD80、CD86和iNOS表达对CD45+ CD11b+细胞进行逐级设门分析。(B)鉴定表达CD206的细胞亚群,随后根据Arg1表达进行设门。(C)鉴定表达CD86的细胞亚群,随后根据CD64表达进行设门。(D)鉴定表达CD163的细胞亚群,随后根据CD206表达进行设门。这些设门策略展示了基于表面标志物和细胞内标志物表达的小胶质细胞群体的表型异质性。请点击此处查看该图的放大版本。
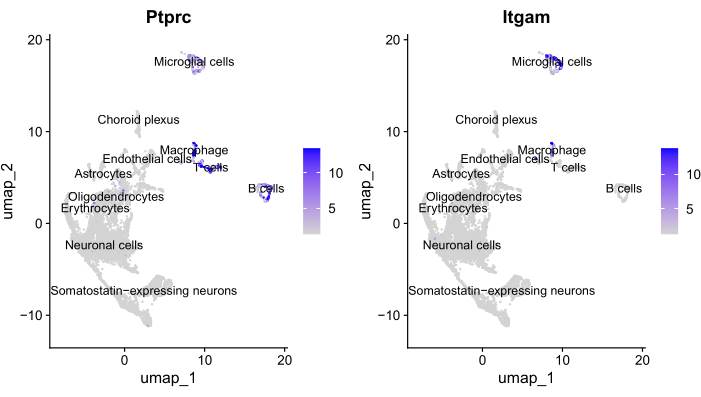
图 7:利用单细胞 RNA 测序数据中 Itgam 和 Ptprc 的表达验证小胶质细胞身份。 UMAP 图展示了 P15 小脑细胞的转录组景观,基因 Itgam 和 Ptprc 的表达情况叠加显示于各个聚类中。这两种经典髓系标志物的共表达支持小胶质细胞群体的鉴定,并与流式细胞术中使用的标志物一致,从而在转录组和蛋白水平分析之间提供了交叉验证。 请点击此处查看该图的放大版本。
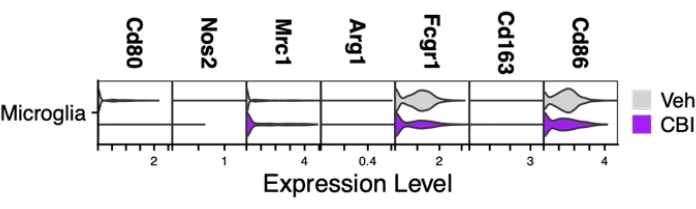
图 8:通过单细胞 RNA 测序鉴定的小胶质细胞中选定免疫相关基因的表达谱。 小提琴图展示了单个小胶质细胞中 CD80、NOS2、Mrc1、Arg1、Fcgr1 和 CD163 基因表达的分布情况。这些标志物通常与免疫相关过程相关,反映了小胶质细胞群体中存在的转录异质性。数据展示了对照组和小脑脑损伤(CBI)条件下的结果。请点击此处查看该图的放大版本。
表1:用于神经细胞分离和染色的溶液组成。 本表详细列出了细胞分离和染色所需溶液的成分及其各自浓度。 请点击此处下载该表格。
表2:细胞外染色用抗体混合物浓度。 本表详细列出了用于细胞外染色的抗体及活/死细胞染料溶液的浓度,具体说明了每种抗体在单个样本染色混合物中所需的体积和稀释比例。请点击此处下载该表格。
表3:细胞内染色用抗体混合物浓度。本表详细列出了用于细胞内染色的抗体浓度,针对一个样本的染色混合物,具体说明了每种抗体所需的体积和稀释比例。请点击此处下载该表格。
讨论
本研究提出了一种详细且经过优化的实验方案,结合流式细胞术与单细胞RNA测序(scRNA-seq),用于在出生后早期脑发育过程中分离和表征小胶质细胞。尽管流式细胞术仍是一种经济高效且易于获取的技术,但其与单细胞转录组学的结合能够通过将蛋白水平的标志物表达与基因水平的转录谱相联系,提供互补性的深入见解。该方案针对未成熟脑组织特有的技术难题进行了优化,包括高效的组织解离、碎片与髓鞘的去除,以及优化的免疫染色策略,以确保在关键发育时间点对小胶质细胞群体的分析具有可重复性和可靠性。
采用流式细胞术根据选定的表面和细胞内标志物的表达来鉴定小胶质细胞亚群。这些亚群并非通过推断功能状态来区分,而是依据其标志物表达谱进行区分,例如 CD80+/CD86+/iNOS+;CD206+/Arg1+;CD86+/CD64+ 或 CD163+/CD206+ 表型。这些由标志物定义的细胞群体反映了小胶质细胞群体内的分子异质性,并为高通量表征提供了实用的方法。尽管基于表面标志物的分类可能无法完全捕捉小胶质细胞多样性的全部复杂性,但在缺乏高维分子分析工具的情况下,此类方法仍具有重要信息价值。为体现小胶质细胞表型具有类似谱系、依赖于微环境的特性,本文有意避免使用诸如 M1/M2 这样的二元分类模式,该观点已在近期文献中有所阐述12。
这些观察结果与先前的研究一致,强调了小胶质细胞在正常大脑成熟以及对环境或病理刺激反应中的作用13,14。能够区分小胶质细胞的异质性,为小胶质细胞极化如何参与神经发育障碍提供了宝贵的见解15,16。
尽管单细胞RNA测序具有更高的分辨率,并能够鉴定出转录上不同的小胶质细胞亚群,但其成本较高且分析过程复杂,限制了该技术的普及应用。在本研究中,数据集采集于围产期损伤后的第15天,此时炎症反应的高峰期已基本消退,导致活化的小胶质细胞数量较少。因此,UMAP等降维技术未能有效分离出界限清晰的小胶质细胞亚簇,故本实验方案论文未包含基于聚类水平的转录组分析。
本方案的一项重要创新在于优化了从小脑早期出生后阶段(P3至P30)分离和表征小胶质细胞的流程。该特定脑区和年龄范围带来了独特挑战,包括细胞得率低、髓鞘含量高以及组织脆性增加。为应对这些限制,本方案整合了改良的组织解离流程、高效的碎片和髓鞘去除步骤,以及针对小体积小脑组织优化的免疫染色条件。尽管目前 increasingly 认识到小脑小胶质细胞在功能和转录水平上与其他脑区的小胶质细胞存在差异,但针对其分离与分析的详细实验方案仍十分有限。本方法提供了一种可靠且易于实施的操作流程,特别适用于小脑小胶质细胞发育过程的研究。
本文的主要目标是提供一个可重复且可灵活调整的方法学框架,而非报告特定的生物学发现。该实验流程适用于其他发育阶段或实验模型的调整,在这些情况下,转录上不同的小胶质细胞状态可能更为显著。在这些背景下,流式细胞术仍是一种有价值的工具,尤其是当其与互补性检测方法相结合时。
本方案的一个关键优势在于其适用于从出生后第3天(P3)到出生后第30天(P30)的多个发育阶段,从而能够在脑组织成熟过程中对小胶质细胞表型进行纵向分析。联合使用流式细胞术和单细胞RNA测序技术,不仅可以研究表面标志物,还能分析小胶质细胞中涉及的细胞内信号通路和转录因子。
然而,酶消化可能会影响某些表面标志物的表达,因此需要针对特定实验目标仔细优化消化条件17,18。此外,流式细胞术和单细胞测序均无法提供群体水平的数据,可能无法充分捕捉小胶质细胞在其原生环境中相互作用的空间和功能细微差异。结合单细胞空间技术有助于通过保留小胶质细胞的空间背景来弥补这一局限性。未来将本方案与免疫组织化学、活体成像、蛋白质印迹或单细胞空间转录组学等成像技术相结合的研究,可为小胶质细胞动态提供互补的见解。
该方法为研究生命早期损伤(如炎症、缺氧或环境应激因素)如何影响小胶质细胞表型并导致长期神经发育结局开辟了新的途径。通过实现对小胶质细胞活化状态的精确且可靠的表征,该方法有助于识别可用于调节生命早期小胶质细胞反应的治疗靶点,旨在预防或减轻神经发育障碍。
综上所述,本方案为研究早期脑发育过程中小胶质细胞的多样性提供了一个稳健且易于实施的框架。流式细胞术与单细胞RNA测序的结合可灵活应用于不同的发育阶段和实验模型,有助于在生理和病理条件下更深入地探索小胶质细胞的生物学特性。
披露
作者声明不存在利益冲突。
致谢
本工作由加拿大卫生研究院(487354)和魁北克研究基金会(333845)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 140 µ金属网滤器 | Sigma-Aldrich | S3895 | |
| 15 mL 离心管 | Sarstedt | 62.554.205 | |
| 5 mL 离心管 | Sarstedt | 55.526.006 | |
| 锥底96孔板 | Sarstedt | 82.1583.001 | |
| 精氨酸酶1 - Pecy7偶联物 - 克隆号:A1exF5 | 赛默飞世尔科技 | 25-3697-82 | |
| 台式稳定型荧光试剂 | Invitrogen | A49905 | |
| CD11b - FITC偶联 - 克隆:M1/70 | BD Pharmingen | 553310 | |
| CD163 - SB600偶联物 - 克隆号:TNKUPJ | 赛默飞世尔科技 | 63-1631-82 | |
| CD206-APC偶联抗体-克隆:C068C2 | BioLegend | 141708 | |
| CD45 - 偶联A700 - 克隆:30-F11 | BD Pharmingen | 560510 | |
| CD64-偶联物 PerCP-eF710 - 克隆:X54-5/7.1 | 赛默飞世尔科技 | 46-0641-82 | |
| CD80 - SB436偶联物 - 克隆号:16-10A1 | 赛默飞世尔科技 | 62-0801-82 | |
| CD86 - PE偶联抗体 - 克隆号:GL-1 | BioLegend | 105008 | |
| 胶原酶D | Sigma–Aldrich | 11088866001 | |
| DNase I | Sigma–Aldrich | 10104159001 | |
| 胎牛血清(FBS) | Sigma–Aldrich | F1051 | |
| HBSS(Hank's 平衡盐溶液)10x | Wisent Bioproducts | 311506CL | |
| 血细胞计数板 | vwr international | 82030-470 | |
| HEPES | Wisent Bioproducts | 330.050.EL | |
| iNOS - PE-eF610 偶联物 - 克隆:CXNFT | 赛默飞世尔科技 | 61-5920-82 | |
| KCl | 赛默飞世尔科技 | BP366-500 | |
| KH2PO4 | 赛默飞世尔科技 | BP362-500 | |
| 活/死 Amcyan | 赛默飞世尔科技 | L34957 | |
| 小胶质细胞培养基 | Life Technologies | A12475-01 | |
| Na2HPO4 | 赛默飞世尔科技 | BP332-500 | |
| NaCl | 赛默飞世尔科技 | BP358-212 | |
| 多聚甲醛 | Sigma–Aldrich | P6148 | |
| 大鼠抗小鼠 CD16/CD32 | BD 生物科学 | 553142 | |
| 皂苷 | Sigma–Aldrich | S7900 | |
| 单细胞RNA测序文库 | 10X Genomics | 1000121 | |
| 基于二氧化硅的胶体介质 | 赛默飞世尔科技 | 45001747 | |
| 叠氮化钠 | 赛默飞世尔科技 | BP922I-500 | |
| 台盼蓝 | Gibco | 1525006 |
参考文献
- Berardi, N., Sale, A., Maffei, L. Brain structural and functional development: Genetics and experience. Dev Med Child Neurol. 57 (Suppl 2), 4-9 (2015).
- Tremblay, M. E. Microglial functional alteration and increased diversity in the challenged brain: Insights into novel targets for intervention. Brain Behav Immun Health. 16, 100301(2021).
- Salter, M. W., Beggs, S. Sublime microglia: Expanding roles for the guardians of the CNS. Cell. 158 (1), 15-24 (2014).
- Michell-Robinson, M. A., et al. Roles of microglia in brain development, tissue maintenance and repair. Brain. 138 (Pt 5), 1138-1159 (2015).
- Nayak, D., Roth, T. L., Mcgavern, D. B. Microglia development and function. Annu Rev Immunol. 32, 367-402 (2014).
- Mehl, L. C., Manjally, A. V., Bouadi, O., Gibson, E. M., Tay, T. L. Microglia in brain development and regeneration. Development. 149 (8), dev200425(2022).
- Mastenbroek, L. J. M., Kooistra, S. M., Eggen, B. J. L., Prins, J. R. The role of microglia in early neurodevelopment and the effects of maternal immune activation. Semin Immunopathol. 46 (1-2), 1(2024).
- Menassa, D. A., Gomez-Nicola, D. Microglial dynamics during human brain development. Front Immunol. 9, 1014(2018).
- Srakocic, S., et al. Proposed practical protocol for flow cytometry analysis of microglia from the healthy adult mouse brain: Systematic review and isolation methods' evaluation. Front Cell Neurosci. 16, 1017976(2022).
- Akhmetzyanova, E. R., Rizvanov, A. A., Mukhamedshina, Y. O. Current methods for the microglia isolation: Overview and comparative analysis of approaches. Cell Tissue Res. 395 (2), 147-158 (2024).
- Walker, D. G., Lue, L. F. Immune phenotypes of microglia in human neurodegenerative disease: Challenges to detecting microglial polarization in human brains. Alzheimers Res Ther. 7 (1), 56(2015).
- Paolicelli, R. C., et al. Microglia states and nomenclature: A field at its crossroads. Neuron. 110 (21), 3458-3483 (2022).
- Hammond, T. R., et al. Single-cell RNA sequencing of microglia throughout the mouse lifespan and in the injured brain reveals complex cell-state changes. Immunity. 50 (1), 253-271.e6 (2019).
- Bernier, L. P., York, E. M., Macvicar, B. A. Immunometabolism in the brain: How metabolism shapes microglial function. Trends Neurosci. 43 (11), 854-869 (2020).
- Butovsky, O., et al. Identification of a unique TGF-β-dependent molecular and functional signature in microglia. Nat Neurosci. 17 (1), 131-143 (2014).
- Gosselin, D., et al. Environment drives selection and function of enhancers controlling tissue-specific macrophage identities. Cell. 159 (6), 1327-1340 (2014).
- Chometon, T. Q., et al. A protocol for rapid monocyte isolation and generation of singular human monocyte-derived dendritic cells. PLoS One. 15 (4), e0231132(2020).
- Skog, M., et al. The effect of enzymatic digestion on cultured epithelial autografts. Cell Transplant. 28 (5), 638-644 (2019).
重印与许可
标签
