本文介绍了一种牛膜细胞与颗粒细胞的共培养模型。该方法有望为研究卵泡内体细胞之间旁分泌通讯及底物转运的相关分析提供可靠的实验基础。
本文内容
摘要
摘要
颗粒细胞(GCs)与膜细胞(TCs)的可靠共培养体系有望促进对牛卵巢卵泡中两种细胞区室之间相互作用、信号通路及底物交换的更全面理解。利用 commercially available 细胞培养小室,建立了一种可重复的牛颗粒细胞与膜细胞共培养模型。观察发现,原代膜细胞和颗粒细胞在培养小室膜上的贴壁所需时间明显长于细胞系。实验初期,将 TCs 接种于倒置的培养小室膜上,并使用截短的试管作为接种容器,以防止培养基泄漏。经过 72 小时的培养后,将培养小室翻转,使 GCs 可在膜的另一侧进行培养。该共培养体系随后在 37 °C 和 5% CO2 条件下继续培养 6 天,每隔一天更换一次培养基。标志基因的表达呈现细胞类型特异性模式,其中 CYP17A1 在 TCs 中高度表达,而在 GCs 中不表达;相反,CYP19A1 在 GCs 中表达水平较高,而在 TCs 中仅低水平表达。激素分析结果支持该共培养系统具有生理相关性,表现为雌二醇的合成。这一改进的共培养模型可支持对卵泡体细胞间旁分泌信号传导及底物转运的可重复性研究。
引言
在卵泡发生过程中,黄体生成素(LH)的激增会触发卵巢内一系列生理变化,最终导致排卵期间成熟卵母细胞的释放1,2。该过程受到卵泡体细胞的严密调控,这些细胞为卵母细胞的成熟提供必要的支持,并确保正常的排卵功能3。卵泡由两种类固醇生成性体细胞组成:内层的颗粒细胞(GCs)和外层的膜细胞(TCs)。其中,颗粒细胞在LH激增后发生最显著的形态和功能变化,凸显其在协调卵泡发育最后阶段中的关键作用4。因此,颗粒细胞在分析可能影响卵泡发生、排卵及黄体化因素的研究中具有重要意义。
先前已建立一种模拟雌二醇活性状态的牛颗粒细胞(GCs)体外培养模型5,6,7,8,9,10,11。该无血清培养模型可对颗粒细胞的生理特性以及信号通路、基因调控和激素合成中的潜在效应分子进行可靠分析12,13,14。然而,卵泡结构更为复杂,正如“双细胞-双促性腺激素”假说所强调的那样15。这凸显了在类固醇合成过程中,不同细胞类型之间存在的依赖性和相互关联性,且该过程在两层细胞之间具有区室化特征。
已有许多研究描述了与先前建立的颗粒细胞单层培养体系相似的睾丸支持细胞培养模型16,17,18然而,已有报道建立了一种猪卵泡膜细胞与颗粒细胞的共培养体系,其中两种细胞以颗粒细胞与卵泡膜细胞4:1的比例共同培养于同一培养皿中。19,20,21在此模型中,可以观察到颗粒细胞与膜细胞之间存在功能系统及相互作用,共培养体系中的雌二醇含量高于单层培养体系。然而需要注意的是,该模型无法充分分析颗粒细胞与膜细胞之间的相互作用及底物交换,因为这两种细胞类型可能受到不同程度的影响。因此,在不进行复杂分选程序的情况下,几乎无法独立地对颗粒细胞(GCs)和膜细胞(TCs)在分子水平上分别进行分析,而分选过程本身可能会影响细胞的生理状态。此外,需要认识到该模型可能无法准确模拟黄体生成素(LH)峰发生前的情况,即颗粒细胞与膜细胞仍被基底膜分隔的状态。3在牛体内,提出了一种基于膜的细胞培养系统,其中两种细胞类型分别培养于胶原膜的两侧,从而模拟了 体内 更精确地描述情况22,23,24,25,26.
在基于膜系统的初始概念基础上,本方法旨在利用细胞培养小室建立牛颗粒细胞(GCs)与膜细胞(TCs)的共培养模型,以促进未来对这两类细胞区室间旁分泌信号传导的研究。该方法采用 commercially available 悬挂式细胞培养小室,取代定制的膜系统,具有更高的可重复性、标准化的质量以及更好的产品稳定性等优势。此策略确保了实验间的一致性,为研究卵泡细胞相互作用的科研人员提供了有价值的工具。培养过程包括:首先在小室底部接种 1.7–1.8 × 10⁵ 个膜细胞,翻转后在其上表面接种约 1.0 × 10⁵ 个颗粒细胞,并进行 72 小时的预培养。培养物在标准条件(37 °C,5% CO2)下维持于特定培养基中,每隔一天更换一次培养基。为实现不同区室间的旁分泌交换,使用孔径为 0.4 µm、由聚酯材料(如聚对苯二甲酸乙二醇酯,PET)制成的细胞培养小室(commercially available)。此类孔径的膜允许激素、生长因子和蛋白质等可溶性大分子自由扩散,同时阻止细胞迁移27,28。
通过实现空间分离的同时维持旁分泌通信,该共培养系统为研究颗粒细胞-膜细胞相互作用、信号通路及底物交换提供了生理相关性较高的环境。该模型特别适用于需要可控条件的研究,如激素调控、基因表达分析或药物测试。对卵泡动态、生殖生理学或卵巢疾病感兴趣的研究人员可将此方法应用于其研究中。此外,使用标准化的插入式培养小室可轻松适应不同的实验需求,包括培养时间、细胞类型或处理条件的调整。
方案
牛卵巢取自当地一家商业屠宰场。在此实验设置中,卵巢的制备需在收到后2小时内完成。根据德国法律,屠宰场副产品的收集无需伦理审批。
注意:牛颗粒细胞的分离与冷冻保存已在先前的方法报告中描述并展示6,可参照进行。
1. 卵巢卵泡分离所需试剂的准备及实验设置
- 准备用于卵巢运输的1×PBS(pH 7.4),其中添加100 IU青霉素、0.1 mg/mL链霉素和0.5 µg/mL两性霉素。该溶液可在4 °C保存最多4周。
- 准备消化液,其中含10×Hanks盐溶液,并添加25 mM HEPES、100 IU青霉素、0.1 mg/mL链霉素和0.5 µg/mL两性霉素。消化液可在4 °C保存2-3周。
- 为每个计划分离的卵泡,在1.5 mL离心管中加入1 mL消化液,并将溶液预热至37 °C。
- 在开始操作前立即加入10 µL Collagenase NB8,使消化液中酶的终浓度达到0.1%。
- 准备以下器皿用于操作、分离和洗涤步骤。
- 直径不小于3 cm的玻璃皿,用于放置卵巢进行解剖。
- 6孔板,每孔加入1 mL含抗生素的1×PBS用于洗涤。
- 12孔板,每孔加入约10 µL消化液。
- 为进行冷冻保存,准备由80%胎牛血清(FCS)和20% DMSO组成的冷冻溶液。
注意:冷冻保存时DMSO的终浓度为10%。
2. 牛卵泡膜细胞的卵泡解剖及后续消化
- 在超净工作台内进行细胞消化操作及细胞培养工作。
- 用含抗生素的1×PBS(见步骤1.1)清洗卵巢2–3次,以去除表面的血液及其他残留物。将卵巢放入烧杯中,加入1×PBS至完全浸没卵巢,随后弃去溶液。重复此步骤3–4次,直至卵巢洁净。
- 将一个卵巢置于玻璃培养皿中,使用直尺测量并选取直径为5–11 mm的卵泡用于解剖。
- 使用3 mL注射器和18 G针头穿刺选定的卵泡,抽吸卵泡液,并弃去卵泡液。
- 从抽吸时针头穿刺的位置开始,用剪刀将卵泡剪开。使用双目解剖镜以实现精确切割。
- 用镊子夹住卵泡切口边缘,抓住最内层即内膜层(theca interna)。
- 尝试从打开的卵泡壁内侧剥离内膜层。
注:根据卵泡的年龄或发育阶段不同,膜细胞层可能更容易剥离,从而获得完整的膜层。
- 将获得的膜细胞层放入盛有含抗生素1×PBS(见步骤1.1)的培养皿中,以去除残留的颗粒细胞。
- 用手术刀轻轻刮除膜内侧的颗粒细胞,细胞应以较大团块形式容易脱落。
- 将膜细胞层转移至另一盛有1×PBS的新培养皿中进行洗涤。
- 在新鲜1×PBS中轻轻晃动以冲洗膜,去除松散附着的细胞。
注:从下一步开始,所有操作均需在超净工作台内进行。
- 将内膜层转移至预先准备好的12孔板中的消化液中(见步骤1.2和1.3.3),并用手术刀将其切成约1–3 mm的小块。
注:建议将来自不同卵泡的膜细胞分别进行消化,以避免不同来源的组织相互堵塞。 - 将切碎的膜组织转移至已准备好的1.5 mL离心管中(见步骤1.2.1和1.2.2)。在37 °C、800 rpm条件下,于恒温振荡培养箱中孵育45–50分钟。
- 振荡30分钟后,将离心管取出,涡旋震荡3–5秒后重新放回振荡培养箱。
- 在剩余孵育时间内重复此操作3–4次。
- 孵育结束后,用移液器重悬已消化的细胞。
- 使用置于50 mL离心管上的100 µm细胞滤网过滤,去除未消化的组织,随后立即进行细胞计数及冷冻保存,以清除消化液。
3. TCs 的计数与冷冻保存
- 为了计数活细胞数量,准备一个含有 1.5 µL 0.25% 台盼蓝溶液的离心管。活细胞不会被染色,而死细胞由于细胞屏障破损,台盼蓝可进入细胞,因而呈现蓝色。
- 将 15 µL 消化后的细胞悬液加入台盼蓝溶液中,轻轻混匀。
- 取 10 µL 混合液分别加入血细胞计数板的两个计数室中。在每个计数室的一个大方格内计数活细胞(= 无色细胞)的数量。
- 根据标准操作指南,取两个计数室大方格的平均值计算活细胞数量。注意,不同卵巢之间的活细胞比例可能存在差异。
- 将未消化的膜细胞悬液部分(见步骤 2.9)冷冻保存,以便后续作为未培养对照进行比较,并用于评估是否存在颗粒细胞(GCs)的潜在交叉污染(如图 2所示)。
- 将每个解剖后残留在 100 µm 细胞筛中的内膜组织(见步骤 2.10)转移至标记好的离心管中。
- 将离心管在液氮中迅速冷冻,随后于 -80 °C 保存。
- 对分离得到的膜细胞进行冷冻保存,以便更合理地规划细胞培养实验,特别是针对所需细胞数量的安排。
- 将消化后的细胞悬液在室温(平均 20 °C)下以 500 × g 离心 5 分钟,弃去上清液。
- 用 1 mL 100% FCS 小心重悬细胞沉淀,再向细胞悬液中加入 1 mL 冷冻保存液(见步骤 1.4)。最终冷冻保存液中 DMSO 的浓度为 10%。将混合液转移至指定的 2 mL 冻存管中。
- 将冻存管放入程序降温盒中,以实现温度的可控下降。在此实验条件下,使用特定的冷冻容器,当置于 -80 °C 环境中至少 4 小时,可保证 -1 °C/min 的冷冻速率。之后,可将冻存管转移至液氮储存系统中长期保存。
4. 细胞培养工作的准备
- 用手术刀(建议预热)或合适的管子切割工具,从1.5 mL离心管上切下管盖,然后从管口处向下约1 cm处将离心管切断。随后对切割后的管体和管盖进行高压灭菌。在后续细胞培养步骤中可能需要使用这些管盖(见步骤5.5)。
注意:确保1.5 mL离心管能紧密地套在所选插入式培养小室上。 - 务必用0.02%胶原蛋白R对插入式培养小室进行包被,以促进颗粒细胞(GC)和睾丸支持细胞(TC)在培养中的贴附。
注意:包被操作应在无菌超净工作台内进行。- 使用适用于细胞培养的纯化水配制0.02%胶原蛋白R溶液。每孔细胞培养插入式小室需准备80 µL该溶液。
- 将插入式小室倒置放入24孔板的盖子中。轻柔地向插入式小室的膜表面加入40 µL胶原蛋白R溶液,确保其保持在原位。在超净工作台中干燥4–5小时。
- 将插入式小室翻转,并悬挂于24孔板的孔中,再向另一侧膜表面加入40 µL胶原蛋白R溶液进行包被。再次干燥4–5小时。
- 用紫外光照射插入式小室10–15分钟,以减少污染风险。
- 包被后的插入式小室应保存在24孔板内(最好置于无菌运输袋中),并在4 °C冰箱中储存,可在4周内使用。
- 按如下方法配制培养基8,10:
注意:培养基配制操作应在无菌超净工作台内进行。- 在α-最低必需培养基(α-MEM)中添加2 mM L-谷氨酰胺、0.084%碳酸氢钠、0.1%牛血清白蛋白(BSA)、20 mM HEPES、4 ng/mL亚硒酸钠、5 µg/mL转铁蛋白、10 ng/mL胰岛素和1 mM非必需氨基酸。
注意:为保证实验一致性,建议预先配制足量培养基供整个实验使用。配制好的培养基可在4 °C保存。对于本实验所述条件,每孔细胞培养使用750 µL培养基。 - 进一步向培养基中添加100 IU青霉素、0.1 mg/mL链霉素和0.5 µg/mL两性霉素B。
- 将培养基在37 °C水浴中预热。
注意:培养基预热后,抗生素在约48小时内保持稳定。因此,仅分装所需量的培养基进行预热。 - 此外,为建立生理性的细胞环境,还需在α-MEM中添加20 ng/mL卵泡刺激素(FSH)、50 ng/mL R3 IGF-1和2 µM雄烯二酮7,8,10,11。
注意:这些成分应在开始培养或更换培养基前短时间内添加。为防止活性降低,必须避免FSH和IGF-1储备液反复冻融。
- 在α-最低必需培养基(α-MEM)中添加2 mM L-谷氨酰胺、0.084%碳酸氢钠、0.1%牛血清白蛋白(BSA)、20 mM HEPES、4 ng/mL亚硒酸钠、5 µg/mL转铁蛋白、10 ng/mL胰岛素和1 mM非必需氨基酸。
5. TC 与 GC 的共培养
- 准备用于培养膜细胞的接种室(图1A)。
- 将包被好的插入物倒置放入较大的培养板中(例如12孔板)。
- 将已切割并经高压灭菌的管子放置在倒置的插入物上(见步骤4.1)。确保管子牢固地固定在插入物上,以防止培养基泄漏。
- 将冻存的膜细胞在37 °C水浴中快速解冻3-5分钟,解冻后立即将细胞悬液转移至预热的培养基中。
- 在室温(平均20 °C)下以500 × g离心膜细胞悬液3分钟,弃去上清液。加入添加了补充物的α-MEM,并小心重悬细胞。
- 在接种室的每个插入物中接种1.7-1.8 × 10⁵个细胞,最终培养基体积为200 µL。每种条件至少设置三个技术重复。
- 若需用盖子封闭细胞培养板,使用接种室时可能需要增加培养板与盖子之间的距离。
- 使用已切割并经高压灭菌的1.5 mL离心管盖(见步骤4.1),将其放置在细胞培养板的每个角落。这些管盖将作为支撑物,略微抬高培养板的盖子,从而为接种室提供足够的空间,同时仍能充分覆盖培养板。
- 小心盖上孔板,确保其保持稳定,不接触膜或接种室。
- 轻柔地将培养板转移至加湿的细胞培养孵育箱中。
- 将膜细胞在37 °C、5% CO2条件下孵育3天,以使细胞在膜上贴壁。
- 培养3天后翻转插入物,为颗粒细胞(GCs)接种做准备(图1B)。
- 准备一个24孔板,并在所需孔中各加入500 µL培养基。
- 用移液器移除接种室中的全部培养基。用镊子小心地将接种室从插入物上取下。
- 将带有贴壁膜细胞的插入物放入已准备好的24孔板中,确保膜细胞面朝下(详见图1B)。
- 若需从冻存状态接种颗粒细胞,请执行步骤5.2和5.3。
- 在插入物内加入最终体积为250 µL的培养基,每插入物接种约1.0 × 10⁵个细胞。
- 随后,在37 °C、5% CO2条件下继续共培养6天。
- 颗粒细胞接种后每48小时更换一次培养基,每次仅更换三分之二的培养基。此操作可降低操作带来的应激反应,并有助于细胞适应新添加的培养基。
6. 培养的膜细胞和颗粒细胞的后续分析
- 在整个细胞培养过程中,使用相差显微镜对卵泡膜细胞和颗粒细胞进行形态学评估,以监测两类细胞的贴壁和铺展情况(参见 图3).
- 对于类固醇激素分析,收集培养基并置于 -20 °C 冻存。采用适当方法分析目标类固醇激素的浓度(例如,在本实验流程中分析了雌二醇) 通过 放射免疫分析5,29).
注意:类固醇激素分析有助于评估培养物的生理状态7. - 为了分析基因表达,首先使用适当的技术(如试剂盒操作步骤)分离RNA。
注意:在分离过程中,两种细胞类型需彼此独立地进行制备。- 用适当的试剂(如胰蛋白酶或Accutase)从膜的两侧消化细胞。将消化液加入插入室(例如200 µL Accutase)和培养板孔中(例如500 µL Accutase),确保膜完全被消化液包围。
- 从插入物中收集颗粒细胞,而脱落的膜细胞可从孔板中收集。将每种细胞类型转移至1.5 mL离心管中。
- 以 500 x g 离心细胞 g 3 分钟后弃去上清液。
- 裂解细胞,进行RNA提取,随后测定RNA浓度。
注意:大多数分离步骤中,在细胞裂解后可暂停实验流程,样品可在 -20 °C 下短期保存。如需长期保存,裂解后的细胞可在 -80 °C 下储存。 - 随后,通过qPCR检测目标转录本的丰度,合成cDNA。cDNA合成反应使用100 ng RNA,并以随机六聚体和oligo-dT引物进行。qPCR采用基因特异性引物,引物序列如前所述。5,30简而言之,循环条件如下:95 °C 预变性 5 分钟,40 个循环的 95 °C 变性 20 秒、60 °C 退火 15 秒、72 °C 延伸 15 秒,以及 10 秒的单点荧光采集。采用五种不同浓度(5×10)的外部标准品-12- 5×10-16 g DNA/反应)被共扩增。为标准化转录本丰度,采用以下基因的几何平均值 RPLP0 和 TBP 已计算。
- 为消除潜在的交叉污染,通过分析细胞特异性标志物的基因表达来评估卵泡膜细胞和颗粒细胞制备物的纯度 CYP17A1 和 CYP19A1 来自TC和GC的新鲜分离细胞样本(图2).
注意:统计学评估应至少包含三种不同的细胞培养重复实验。在此实验设计中,在验证正态性和方差齐性后,采用t检验或单因素方差分析(one-way ANOVA)。
结果
尽管使用基于卵泡区室化的成熟机械分离技术分离了TC和GC,但仍检测了细胞类型特异性基因CYP17A1和CYP19A1的表达,以排除交叉污染的风险。CYP17A1仅在新分离的TC中表达,而CYP19A1主要在新分离的GC中表达(图2)。
共培养系统能够将牛的膜细胞和颗粒细胞分隔在膜插件的相对两侧,从而模拟 体内 空间排列。培养三天后,TCs 在胶原蛋白包被的插入膜表面铺展,呈现扁平且细长的形态,表明已成功贴壁(图3A)。在整个9天培养期内单独培养时,TC细胞持续增殖,并于第9天达到汇合状态(图3B相比之下,在胶原包被的插入式培养膜上单独培养6天的颗粒细胞(GCs)呈现出成纤维细胞样表型,这是GCs的典型特征。 体外 (图3C此外,如先前所述,GCs 倾向于形成细胞簇,这是这些细胞在培养中的一种典型特征。5,7,31,32在共培养系统中,与相应时间点的单层培养相比,TCs 或 GCs 均未观察到明显的形态学差异。图3D),表明基于插入物的环境能够维持细胞的正常行为。然而,由于技术限制,对共培养体系的显微观察仍然具有挑战性,尤其是在不依赖细胞特异性抗体进行免疫染色的情况下,难以独立区分和评估滋养层细胞(TC)的形态。为克服这些限制,目前正针对细胞鉴定的替代策略,优化细胞固定方案。
通过分析支持细胞和生殖细胞关键标志基因的表达及激素分泌情况,评估共培养系统的功能。33,34,证实了细胞类型特异性的类固醇生成作用。颗粒细胞单培养与共培养模型之间的比较显示,两者产生的雌二醇(E2)水平相似 体外然而,正如预期的那样,TC单层培养仅产生可忽略不量的E2,这与“两细胞两促性腺激素”假说一致图 4A)15,这表明膜细胞自身缺乏独立合成E2的能力。
为了进一步评估培养条件的生理相关性,检测了关键标志基因的表达33。根据“两细胞两促性腺激素”假说,CYP19A1 主要在颗粒细胞(GCs)中表达,而 CYP17A1 主要在膜细胞(TCs)中检测到,该表达模式在单培养和共培养条件下均被观察到(图4B、C)。值得注意的是,尽管雌二醇浓度未观察到差异,共培养体系中颗粒细胞内的 CYP19A1 转录本丰度高于颗粒细胞单培养体系。
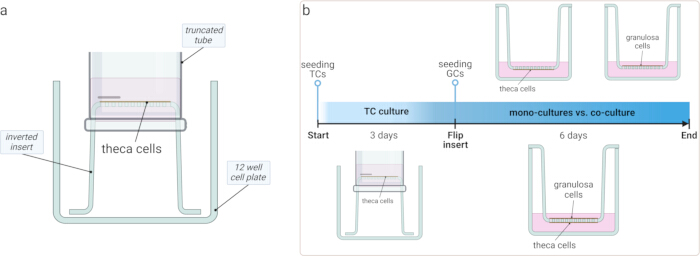
图 1:细胞培养装置的示意图。(A)定制接种室的示意图,该装置利用倒置小室上的截短管,防止在初始培养期间培养基泄漏。(B)实验流程时间线:将膜细胞(TCs)在倒置小室上培养三天,以促进贴壁;随后将小室翻转,在另一侧接种颗粒细胞(GCs),并继续培养六天。本研究比较了单独培养的膜细胞和颗粒细胞与膜细胞-颗粒细胞共培养体系。请点击此处查看此图的放大版本。
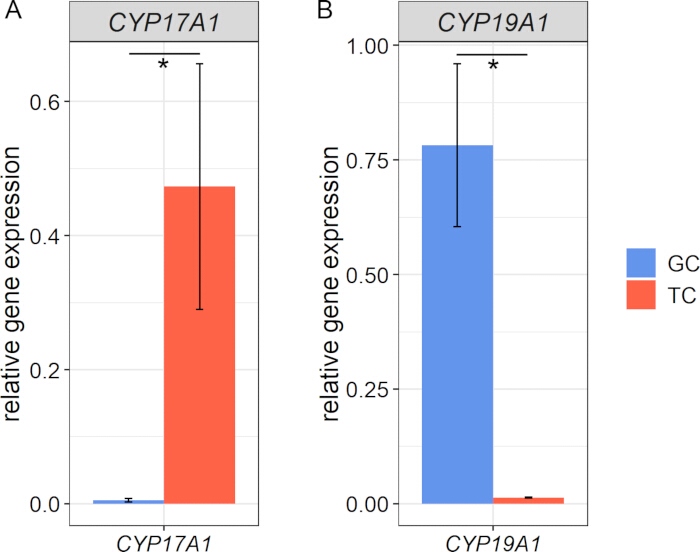
图2:新鲜分离的颗粒细胞和膜细胞中细胞类型特异性标志物的基因表达。(A)CYP17A1 仅在膜细胞(TCs)中表达,而(B)CYP19A1 主要在颗粒细胞(GCs)中检测到,证实了分离细胞群体在培养前具有特异性和初始纯度。数据以参考基因 RPLP0 和 TBP 几何平均值归一化后的相对表达量表示。显示均值及均值标准误,数据经正态性与方差检验,星号表示差异显著(n=3,t检验)。请点击此处查看该图的放大版本。
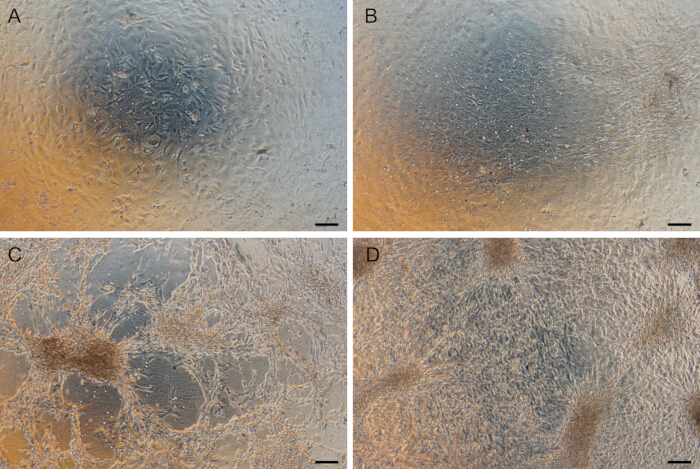
图3:培养中卵泡膜细胞和颗粒细胞的形态学特征。(A)卵泡膜细胞(TCs)在胶原蛋白包被的插入膜上培养3天后已贴壁。(B)在单层培养条件下,TCs经过9天培养后达到汇合状态。(C)颗粒细胞(GCs)在培养6天后呈现出典型的成纤维细胞样表型。(D)TCs与GCs的共培养体系中,未观察到与相应时间点的单层培养相比有明显的形态学差异。该图像采集于GC培养第6天、TC培养第9天(共培养实验的终点)。比例尺:100 µm。请点击此处查看该图的放大版本。
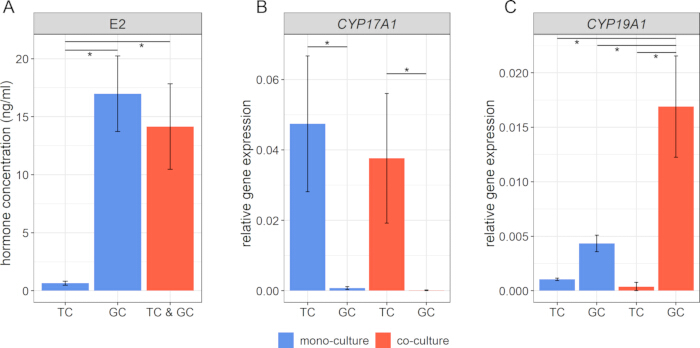
图4:共培养系统中功能标志物的分析。(A)雌二醇(E2)的激素浓度证实了细胞培养系统的生理功能。(B, C)睾丸间质细胞(TC)标志物CYP17A1和颗粒细胞(GC)标志物CYP19A1的基因表达分析,表明了两种细胞群体的身份和功能状态。采用参考基因RPLP0和TBP的几何平均值计算相对表达量。数据以均值±均值标准误表示,已检验正态性和方差齐性,星号表示差异显著(n=3,单因素方差分析)。请点击此处查看该图的放大版本。
讨论
进行该共培养模型的前提是两种细胞类型的分离操作必须完善,以防止任何交叉污染。两种细胞制备物的纯度通过睾丸间质细胞(TC)特异性标志物CYP17A1和颗粒细胞(GC)特异性标志物CYP19A1的基因表达进行评估。如先前所示,颗粒细胞与睾丸间质细胞的分离技术未显示明显的交叉污染30。
该共培养模型允许在膜的两侧同时培养膜细胞和颗粒细胞,模拟了它们在卵泡内的空间分布,并维持两种细胞群体的生理状态3。该模型的有效性进一步得到了其激素分泌谱和基因表达模式的支持,这些特征与“双细胞-双促性腺激素”假说相符15。正如预期,膜细胞单层培养中雌二醇水平较低,证实了仅膜细胞自身无法合成雌二醇,这与卵泡类固醇生成的已有认知一致35。尽管共培养的颗粒细胞中CYP19A1表达水平更高,但雌二醇浓度与颗粒细胞单层培养相比并无显著差异,提示可能存在底物可用性、反馈抑制或酶活性差异等调控机制的影响。未来研究有必要进一步探讨相关的信号通路及潜在机制。然而,建立功能性牛膜细胞与颗粒细胞共培养体系至关重要,本研究为此提供了可行方案。本研究聚焦于雌二醇的生成以及CYP17A1和CYP19A1的mRNA表达水平,作为评估共培养模型功能的关键指标。这两项指标均为颗粒细胞和膜细胞功能的敏感标志物4,8,36,且直接契合“双细胞-双促性腺激素”假说15。尽管蛋白表达分析具有重要意义,但由于缺乏可靠的抗体,无法对其进行准确检测;因此,对蛋白水平的全面分析超出了本项初步研究的范围。
总体而言,该模型是传统二维培养模型的进一步发展,部分模拟了卵巢卵泡的结构3。实验结果通过颗粒细胞和膜细胞生理学敏感标志物的表达,证实了两种细胞区室均处于生理状态。
相较于传统的二维培养模型,其优势在于能够在维持膜细胞与颗粒细胞空间分离的同时促进旁分泌相互作用,更真实地模拟体内环境 体内 卵泡结构。相比之下,培养皿中共培养系统将颗粒细胞(GCs)和卵泡膜细胞(TCs)混合于同一孔中,缺乏这种结构组织。使用此类系统的研究通常采用4:1的GC:TC比例。19,20,21,但这种方法并未反映所发现的区室化特征 体内 因此,可能不适用于分析底物交换。此外,当需要对这种GC-TC混合物进行复杂分选时,细胞水平上的变化也难以被检测到。
颗粒细胞与膜细胞的三维共培养模型仍然较为稀缺,但早期尝试已显示出有希望的结果。Kotsuji 等人22,23,24,37此前曾描述过在培养中使用胶原膜作为物理分隔层来研究颗粒细胞与膜细胞之间的相互作用。然而,该系统依赖于自行制备的胶原膜,导致可重复性和标准化面临挑战。相比之下,本文所介绍的共培养模型采用了 commercially available hanging culture inserts(悬插式培养小室),从而提高了可重复性、标准化程度和产品质量,确保了在不同实验室之间的广泛适用性。尽管本研究中所呈现的模型比以往模型产生更高的雌二醇水平,但由于细胞培养添加剂缺乏统一标准,特别是所用浓度26或是否额外添加IGF-122,23,24,37,因此这些模型之间的直接比较仍存在困难。
该操作过程中最关键的步骤之一是在接种室中培养滋养细胞(TCs)。必须确保接种室牢固地放置在倒置的插入物上,以防止培养基泄漏,否则可能影响滋养细胞的贴壁和存活。因此,建议使用镊子将接种室稳固地压在倒置的插入物上,并目视检查其放置位置是否正确。此外,在培养三天后移除接种室并翻转插入物的操作需要较高的技术精度。可能需要一定的技能训练,以确保此步骤不会干扰或损伤已贴壁的细胞。另一个重要考虑因素是颗粒细胞(GCs)的接种密度。当细胞密度过高,超过每个插入物1.0 × 10⁵细胞的最佳水平时,可能导致颗粒细胞发生分化,进而影响类固醇激素的生成能力。此外,所采用的冷冻保存方法在解冻后使两种细胞类型的存活率均达到80–90%。
尽管所述模型为研究颗粒细胞与膜细胞的相互作用提供了一个生理相关且可重复的系统,但仍需考虑一些局限性。该方法也可适用于其他物种,但物种间的差异可能需要对细胞培养参数(如细胞密度、培养时间或培养基成分)进行优化。该模型的可扩展性受限于细胞培养小室的供应情况,但对于大多数效应因子研究而言可能已足够。最后,这种共培养模型是模拟体内环境的进一步尝试 体内 卵泡的状况,但仍缺乏卵巢卵泡的完整复杂性。
总之,该模型可轻松修改以满足不同的实验需求,例如延长培养时间、调整细胞数量或比例,或引入其他因素。经过进一步优化,该系统将成为研究卵泡功能、类固醇生成以及两种细胞区室间细胞信号传导的有力工具。此外,该系统在生殖毒理学领域也具有应用潜力,可提供一个受控平台,用于评估不同化合物对卵泡细胞的影响。
披露
所有作者均声明不存在利益冲突。
致谢
我们谨向Veronica Schreiter、Maren Anders和Olivier Seidel致以诚挚的谢意,感谢他们提供的出色技术协助。此外,我们还要感谢德国的商业屠宰场"DANISH CROWN Teterower Fleisch GmbH",本研究所用的卵巢组织即来源于此。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10倍汉克斯平衡盐溶液(含Mg/Ca,酚红) | Bio&Sell | BS.L201-10 | 用超纯水溶解;将消化液(HBSS和HEPES)的pH值调节至7.4,并在使用前进行无菌过滤 |
| 18 G针头,40 mm,直径1.2 mm | Roth | 281T.1 | 一次性针头,短刃 |
| 3 ml注射器(Omnifix Luer) | Roth | LY22.1 | |
| accutase | Merck | A6964 | 公司分支:Sigma-Aldrich |
| 两性霉素B(250 µg/ml) | Bio&Sell | BS.AB17.01050 | |
| 雄烯二酮 | Merck | 46033 | 我们使用10 mM的储存液,用100%乙醇稀释;公司分支:Supelco |
| 双目显微镜 Carl Zeiss Technival2 | Carl Zeiss Jena | 不适用 | 与Schott KL 1600 LED透射光源配合使用 |
| BSA(5%) | Merck | A3311 | 公司分支:Sigma-Aldrich |
| 细胞筛(100 µm孔径) | Sarstedt | 83.3945.100 | 适配50 ml离心管 |
| 胶原酶R(0.2%) | Serva | 47254 | |
| 胶原酶NB8(10%) | Nordmark | S1745601 | |
| CoolCell LX细胞冻存盒 | Merck | CLS432002 | Corning公司产品 |
| 冻存管(2 ml) | TPP Faust | TPP89020 | |
| 培养皿,12孔,平底 | TPP Faust | TPP92112 | |
| 培养皿,24孔,平底 | TPP Faust | TPP92424 | |
| 培养皿,6孔,平底 | TPP Faust | TPP92006 | |
| DMSO | Roth | 4720.1 | |
| 不含Ca²⁺、Mg²⁺的DPBS | Bio&Sell | BS.L182-10 | 用超纯水溶解,并在使用前高压灭菌 |
| 雌二醇,17b-[2,4,6,7-³H] | Hartmann Analytik | ART1555 | |
| 胎牛血清(FBS Superior stabil) | Bio&Sell | FBS.S0615 | |
| 促卵泡激素(FSH,约7,000 IU/mg;来源于人垂体) | Merck | F4021 | 我们倾向于使用2 µg/ml的储存液,用0.9% NaCl稀释;公司分支:Sigma-Aldrich |
| 悬挂式细胞培养小室(0.4 µm孔径) | cellQART | 9320412 | 订购时请注意不同小室的特性;我们倾向于使用透明PET膜,便于相差显微镜观察 |
| HEPES(1 M) | Roth | 9105.2 | 将消化液(HBSS和HEPES)的pH值调节至7.4,并在使用前进行无菌过滤 |
| 全转铁蛋白(牛源) | Merck | T1283 | 用无菌水溶解;公司分支:Sigma-Aldrich |
| innuPREP RNA Mini Kit 2.0 | IST innuscreen | 845-KS-2040250 | |
| 胰岛素(10 mg/ml;来源于牛胰腺) | Merck | I0516 | 用1x PBS溶解;公司分支:Sigma-Aldrich |
| L-谷氨酰胺(200 mM) | Bio&Sell | BS.K0283 | |
| LR3-IGF-1 | Merck | I1146 | 我们使用200 µg/ml的储存液,溶于10 mM HCl和1x PBS(含1 mg/ml BSA);公司分支:Sigma-Aldrich |
| NanoDrop 1000分光光度计 | ThermoScientific | 不适用 | 用于RNA浓度测定 |
| NEA(100倍浓缩液) | Bio&Sell | BS.K0293 | |
| 青霉素/链霉素(10,000 IU/10 mg/ml) | Bio&Sell | BS.A2213 | |
| 纯化水,适用于细胞培养 | Merck | W3500 | 公司分支:Sigma-Aldrich |
| SensiFAST cDNA合成试剂盒 | Bioline | BIO-65054 | 由分销商BioCat提供 |
| 碳酸氢钠(7.5%) | Bio&Sell | BS.L1713 | |
| 亚硒酸钠 | Merck | S9133 | 用无菌水溶解;公司分支:Sigma-Aldrich |
| 恒温振荡器 TS-100C | Fischer Scientific | 12357627 | 与HC18模块(货号12337627)配合使用 |
| α-MEM | Bio&Sell | BS.F0915 |
参考文献
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
重印与许可
