本文介绍了一种结合冷冻固定与膨胀显微技术的详细实验方案(Cryo-ExM),该方法可实现高分辨率成像,并在适用于多种生物样本的同时保持其结构完整性。生物样本经冷冻、包埋于可膨胀聚合物中、变性、膨胀及免疫标记后,可在标准光学显微镜下实现超分辨率成像。
方法文章
扩展显微技术:利用常规显微镜实现高分辨率荧光成像
* These authors contributed equally
本文内容
摘要
摘要
膨胀显微镜技术(ExM)是一种创新的超分辨率荧光显微技术,通过物理性放大生物样本,使得利用共聚焦显微镜等常规系统即可实现突破衍射极限的成像。该技术将样本嵌入可膨胀的水凝胶基质中,实现样本的各向同性膨胀,从而在无需专用纳米成像设备的情况下提高空间分辨率。其高级变体,如超微结构膨胀显微镜(U-ExM),能够保留包括细胞器和大分子复合物在内的精细细胞结构。
特定细胞结构或细胞器的观察在很大程度上取决于样本所采用的固定方法,尤其是使用基于醛类的化学交联剂以及通过冷甲醇进行蛋白质沉淀的方法。近年来,将冷冻固定——一种金标准的固定技术——与U-ExM方法相结合,使得在接近天然的状态下对多种生物样本(从培养的哺乳动物细胞到完整生物体)实现纳米级观测成为可能。扩展显微镜技术是一种研究从孤立细胞器到整个组织等跨尺度生物结构的强大工具。当与冷冻固定技术结合时,该方法在最大限度减少传统固定方法所带来的人工假象的同时,为细胞结构和动态过程提供了前所未有的洞察。这些进展使ExM成为一种适用于高分辨率、近天然状态生物成像的多功能技术平台。
本研究概述了一种针对多种来源样品的冷冻固定与膨胀显微技术相结合的详细实验方案。该方案重点介绍了关键步骤,包括样品固定、聚合物形成、膨胀、免疫染色和成像,为在任何实验室中实施该方法提供了必要的指导。
引言
显微镜技术在生物研究中发挥着关键作用,使我们能够在前所未有的尺度上观察生命系统中的超微结构与组织,从完整生物体到单个分子。显微镜领域包含两种不同的系统:电子显微镜(EM),具有高分辨率,但特异性标记能力有限;光学显微镜,能够实现亚细胞结构的精确且特异性的可视化,但由于光的衍射极限,其分辨率受限。尽管超分辨率荧光显微镜(SRM)已发展成为一种强大的亚衍射分辨率细胞荧光成像方法,但对大分子组装体(如完整生物体)的超微结构细节进行可视化仍然具有挑战性1。此外,SRM技术实现的分辨率范围为10至120 nm,依赖于先进的显微镜设备和图像重建算法,需要专业知识和专用显微镜,这限制了其在许多生物学实验室中的普及性。一种新兴的超分辨率方法——扩张显微镜技术(Expansion microscopy, ExM)——已克服了这些局限。该技术由Edward S. Boyden实验室在十年前开发,是一种创新的光子显微技术,现被视为一种无需专用显微镜即可实现成像的超分辨率显微方法2。ExM不依赖复杂的成像技术,而是将生物样本包埋于一种可膨胀的聚合物中,使其发生各向同性的膨胀。这种物理扩张使样本尺寸增大四倍或更多,从而提高分辨率,并可使用常规光学显微镜进行观察。最初在脑切片中开发的ExM方案已不断改进,以提升分辨率并简化操作流程。该技术已成功应用于多种生物样本,包括真核细胞、单细胞生物、寄生虫、组织以及完整生物体,展现出其广泛的适用性3,4,5,6,7,8,9,10,11,12,13,14,15。
目前存在两类主要的实验方案:扩增前染色法2,16和扩增后染色法17,18,其分类依据为生物样本染色的时机,即在扩增步骤之前或之后进行。本文将重点介绍扩增后染色方案,该方案在样本变性并完成扩增后进行免疫标记。
在本实验方案中,生物样本经过冷冻或化学固定后,与化学试剂孵育,从而使蛋白质锚定于未来的聚合物中。随后将样本包埋在一种可膨胀的聚合物中,该聚合物由丙烯酰胺/双丙烯酰胺(常用于电泳凝胶)和丙烯酸钠(赋予膨胀能力)组成。加水后引发凝胶膨胀,使蛋白质之间的距离随凝胶的膨胀程度成比例增加。随后使用特异性抗体直接在凝胶内对目标蛋白质进行标记(图1)。
上述所有成像技术,包括电子显微镜、光学显微镜、超分辨率显微镜以及扩展显微镜(ExM),均需要对生物样本进行固定。基于醛类的固定方法可在蛋白质之间形成交联,从而在光学或电子显微镜所需的处理过程中维持细胞结构的完整性。然而,固定过程也可能导致细胞产生伪影和形态学变化,这些变化在传统的光学显微镜下可能较为轻微,但随着超分辨率显微镜(SRM)的发展和进步,此类问题日益显著,促使科学家重新审视固定方法所带来的影响19。避免固定相关伪影的一种方法是采用活细胞显微成像,该方法能够在接近天然的状态下动态观察细胞结构。然而,活细胞显微成像也存在若干缺点,尤其是需要外源基因表达,这可能影响细胞生理状态,并导致目标蛋白的行为与其内源对应物产生差异。此外,活细胞成像通常分辨率低于固定样本成像,且标记选择有限,因为荧光标签必须在活体条件下无毒且稳定,从而限制了可用标记物的范围。电子显微镜领域因其高分辨率,在发展能够最大限度保持亚细胞或大分子结构天然状态的最优固定方法方面做出了重要贡献。几十年前,Dubochet、Frank 和 Henderson 的实验室开发了冷冻固定技术,通过将细胞迅速固定于玻璃态冰中,证明这是唯一能够有效保存天然超微结构的方法20,21。尽管纯化的分子可直接在玻璃态冰中通过冷冻电子显微镜进行观察,但细胞样本需先包埋于树脂中并切片后才能观察。为了进一步将样本稳定在尽可能接近天然的状态,通常采用冷冻置换技术。在此过程中,当冰分子恢复为液态时,会立即被丙酮取代,而丙酮的扩散系数高于水。在去除水的过程中,目标分子可能发生聚集和塌陷,类似于化学交联固定中出现的现象。为限制此类聚集,冷冻置换在低温下进行,通过提高细胞内黏度来减少分子聚集22。这种受控的方法可有效抑制大分子聚集的形成,使细胞超微结构更接近其天然状态得以保存。
2022年,越来越多的证据表明化学固定会引入人工假象,同时扩展显微技术不断进步,促使Guichard/Hamel实验室开发出一种将冷冻固定与扩展显微技术相结合的方法,称为“Cryo-ExM”23。该方法结合了两种技术的优势,能够以最小的形变保存生物结构。样品通过高压冷冻或手动浸入冷冻的方式进行冷冻固定,这两种方法均需要电子显微镜实验室或核心设施中常见的专用设备。
本文概述了一种逐步进行冷冻固定后接膨胀显微镜技术的实验方案,并展示了来自两个实验模型的代表性结果:培养的人类细胞和导致昏睡病的单细胞寄生虫Trypanosoma brucei。 我们将重点阐述冷冻固定相较于传统固定方法的优势,并强调该技术中最常见的陷阱及固定相关的人工假象。
方案
注意:本方案中使用的试剂列于材料表中。本方案经过少量修改,已适用于观察多种生物样本中的不同细胞过程(包括酵母24,25、Toxoplasma gondii26、近缘动物物种27、绿藻28,29、微生物真核生物30,以及小鼠23和人类样本23,31,32,33)。针对这些不同样本对方案所做的调整未在本文中提及,相关信息可从原始发表文献中获取。本文以RPE1细胞和Trypanosoma brucei作为哺乳动物细胞和寄生虫的代表。本方案重点介绍生物样本的固定与扩增步骤,因此本文未提供样本培养的相关信息。
1. 储备液的配制
- 多聚赖氨酸溶液
- 重悬聚-L-或聚-D-赖氨酸氢溴化物(poly-L- or poly-D-lysine hydrobromide)材料表) 溶于水中,配制浓度为 1 mg/mL 的多聚赖氨酸储备液。将该储备液于 -20 °C 保存,并在使用时用水稀释至 0.2 mg/mL,用于盖玻片的包被。表1,材料表).
- 锚定溶液
- 在通风橱中,通过混合38 µL甲醛(36.5%-38%)制备新鲜的丙烯酰胺/甲醛溶液; 材料表) 和 50 µL 丙烯酰胺(40%, 材料表) 加入 912 µL PBS 中,定容至 1 mL 溶液。
- 不含APS(引发剂)的凝胶溶液
- 通过加入500 μL的溶液来配制混合液 38% 丙烯酸钠(终浓度19%),40% 的 250 μL 丙烯酰胺(终浓度10%),2%双丙烯酰胺50 μL (终浓度0.1%),50 μL TEMED(终浓度0.5%),以及100 μL 10x PBS(终浓度1x)。 等分试样 体积应适合最多2块凝胶(80–90 μL) 并在使用前于 -20 °C 保存至少 12 小时(参见 表1 用于长期保存。
注意:请注意,所指示的体积 配制凝胶溶液的混合物需进行计算 获得终体积为1 mL,但实际体积 溶液的体积为950 μL,因为APS 各代表总体积的1/20, 添加 现配现用。凝胶溶液的原始保存时间17 在观察到该物质在 -20 °C 下可保存长达 1 个月,且不影响凝胶的坚固性或膨胀效率后,保存时间得以延长。
- 通过加入500 μL的溶液来配制混合液 38% 丙烯酸钠(终浓度19%),40% 的 250 μL 丙烯酰胺(终浓度10%),2%双丙烯酰胺50 μL (终浓度0.1%),50 μL TEMED(终浓度0.5%),以及100 μL 10x PBS(终浓度1x)。 等分试样 体积应适合最多2块凝胶(80–90 μL) 并在使用前于 -20 °C 保存至少 12 小时(参见 表1 用于长期保存。
- TEMED 和 APS
- APS 10% w/v:将APS粉末溶于水,分装后于-20 °C保存。
- TEMED 10% v/v:将TEMED溶于水中,分装后于-20 °C保存。
- 丙烯酸钠(SA)38%
- 从纯化的水杨酸(AK scientific 或 Sigma)制备 38% 水杨酸溶液; 材料表)
- 将38 g丙烯酸钠在持续搅拌下重悬于100 mL水中 (重要)逐步加入SA以避免形成聚集体,并在4 °C下搅拌过夜,以确保完全重悬。确保溶液呈透明或微黄色且无色。分装后于4 °C保存,可保存长达1年。
- 从丙烯酸(Sigma; 材料表)
- 在通风橱中,用 NaOH 中和丙烯酸,制备 90 mL 38% 的丙烯酸钠溶液。
- 在搅拌条件下,将29 mL水与25 mL丙烯酸混合。
注意:从这一步开始,反应必须在冰上进行,并持续控制pH和温度,因为该反应为放热反应。 - 使用巴斯德移液管逐滴加入10 N NaOH。
注意:确保温度不超过 25 °C(若超过,请停止加入 NaOH 并等待温度降至安全范围)。 - 继续中和直至pH达到7-8,并在冰上搅拌1小时。
注意:如果 pH 值突然升至 10 以上,加入丙烯酸直至 pH 值降至 7–8。 - 将溶液置于密闭容器中过夜。若溶液出现沉淀,于1,000 × g离心 g 孵育10分钟。收集上清液,分装后于-20 °C保存。
- 从纯化的水杨酸(AK scientific 或 Sigma)制备 38% 水杨酸溶液; 材料表)
- 变性溶液
- Tris碱 1 M:将121.14 g TrisBase溶于1 L水中,用HCl调节pH至9,室温保存。
- 变性缓冲液:将200 mM十二烷基硫酸钠(SDS)、200 mM氯化钠(NaCl)、50 mM TrisBase溶于水中。配制200 mL溶液时,取10 mL 1 M Tris-BASE(pH 9)加入124.9 mL去离子水中2O,边搅拌边加入57.1 mL十二烷基硫酸钠(20%/700 mM 储液)和8 mL氯化钠(5 M 储液)。室温保存(表1).
2. 冷冻固定与扩增步骤
- 样品制备与冷冻固定
注意:本方案已针对在12 mm盖玻片上培养/接种的样品进行优化。对于其他支撑材料,请调整溶液用量。- 样品制备
- 在适合生物样本的条件下培养样品,可直接在12 mm盖玻片上培养(用于哺乳动物贴壁细胞),或在悬浮条件下培养(T. brucei).
- 将样品加至盖玻片上(T. brucei) 用多聚赖氨酸预包被,步骤如下:将12 mm盖玻片置于多聚赖氨酸(0.2 mg/mL)溶液中,37 °C孵育1 h,迅速洗涤 并自然晾干。
- 将寄生虫在300 × g下离心 g 室温(RT)孵育10分钟。用含10%培养基的PBS重悬,并在冷冻固定前5-10分钟接种到盖玻片上。
- 浸入式装置图2A- C)
注意:操作丙酮时,须在化学通风橱中进行,并佩戴手套和实验服。操作液氮和液乙烷时,须穿戴实验服和护目镜。- 在化学通风橱中,使用注射器和针头将1 mL超干燥丙酮加入5 mL离心管中(每管1个盖玻片),以避免空气污染。
注意:为了更好地保存生物膜,需要添加多聚甲醛(PFA)/戊二醛(GA)(0.1/0.02%)。根据盖玻片的直径调整试管(盖玻片 > 12 mm 的样品无法放入 5 mL 离心管中。 - 使用耐低温的塑料或金属架将试管直立放置,然后在液氮中冷冻。
- 将一个聚苯乙烯盒(30 cm)的一半装满 x 30 cm / 厚壁)与干冰一起使用。
- 将液氮填充至Vitrobot型杜瓦瓶中,直至不再有蒸发,然后等待10–15分钟以使温度稳定。需使用蜘蛛架(spider)以促进系统的冷却图2B,星号)。必要时补充。
- 移除蜘蛛,并用液态乙烷填充金属浸入室。
- 等待10分钟,使乙烷达到平衡。
注意:实验过程中如有需要,可向 plunging 系统补充液态乙烷(此时不再使用 spider)。气态乙烷向液态乙烷的转变较为困难,适当压力对于液态乙烷的形成至关重要。压力过高会导致金属腔室内持续有气体溢出,从而阻碍液态乙烷的形成;压力过低则会在金属腔室及填充管内形成固态乙烷。实验中必须避免冰的形成。将填充尖端维持在液面/空气界面有助于防止固态乙烷的产生。
- 在化学通风橱中,使用注射器和针头将1 mL超干燥丙酮加入5 mL离心管中(每管1个盖玻片),以避免空气污染。
- 浸入图2A- C)
注意:请使用实验服和护目镜 操作液氮和液乙烷时务必小心。- 用细镊子夹取一个12 mm的盖玻片。
- 用纸巾吸去多余的培养基。
- 用镊子夹住盖玻片的一半,并配合适用于冷冻载样器的夹持环。
- 将夹有盖玻片的镊子放入冷冻载样器的夹持装置中。用沃特曼滤纸吸去残留的多余培养基。
- 启动冷冻载网投入装置,将盖玻片浸入金属腔室中的乙烷溶液。
- 将盖玻片迅速转移至含有冷冻丙酮的离心管中(每管1片盖玻片)。
注意:为避免培养基污染,切勿使用同一把镊子进行样本收集和浸入操作。若使用盖玻片,需格外小心。 > 12 mm(可使用15 mm或18 mm直径的盖玻片配合载具,但浸入时可能较难操作)。在此步骤中,可将盖玻片在浸入后立即置于液氮中,以保持样品处于冷冻状态,便于转移至Eppendorf管中。由于丙酮在-96 °C时冻结,因此在进行冷冻置换时,必须将盖玻片放置于已冻结的丙酮上。
- 冷冻置换与再水化
注意:在冻 substitution 过程中操作样品时,必须在通风橱内进行。温度升高会导致管内压力上升,可能引发试管爆炸。- 将试管置于干冰中,并倾斜约45°孵育。
- 在摇床上振荡过夜。将密闭的盒子置于摇床上,于4 °C或室温下放置,使温度从-180 °C逐渐升至-80 °C。
- 从盒子中移除大部分干冰(仅在底部保留少量),通过快速打开并关闭管子释放压力,然后继续在摇床中振荡45分钟,使温度进一步从-80 °C升至-20 °C。
- 将盖玻片转移至含有预冷的纯乙醇(100%)溶液的12孔板(或其他合适的容器)中,孵育5分钟,随后继续下一步操作 逐步复水步骤如下:乙醇 100%(5 分钟)-乙醇 95%(3 分钟)-乙醇 95%(3 分钟)-乙醇 70%(3 分钟)-乙醇 50%(3 分钟)-乙醇 25%(3 分钟)-H2O₂ 100%
- 将盖玻片转移至 PBS 中并调整方向 在显微镜下用尖端刮擦表面,使它们全部朝上。
注意:100% 和 95% 乙醇储存于 -20 °C,70% 和 50% 乙醇储存于 4 °C,25% 乙醇和 ddH₂O 储存于室温。2室温下继续升温至室温。进行膜标记时,除ddH₂O外,丙酮和再水化溶液中均需添加PFA/GA(0.1%/0.02%)。2O.
- 样品制备
- 扩增
- 蛋白质锚定
- 在1× PBS中配制新鲜的1.4%甲醛/2%丙烯酰胺(FA/AA)溶液。
- 将盖玻片放入装有 0.5/1 mL AA/FA 的 4/12 孔板中。
- 37 °C 静置孵育 3–5 小时。
注意:甲醛会将蛋白质的游离胺基团与丙烯酰胺交联。过量的丙烯酰胺有助于限制甲醛通常引起的蛋白质交联,并将蛋白质锚定至后续的膨胀聚合物中。根据生物样本的不同,蛋白质锚定步骤可能需要延长至过夜。无论如何,更长的孵育时间不会影响后续任何步骤。将未使用的孔中加入水或将其置于湿盒中,以避免蒸发。
- 凝胶化
- 解冻,APS(10%),凝胶化 溶液(丙烯酸钠 19%,丙烯酰胺) 10%,双丙烯酰胺 0.1%,TEMED 0.5% 用10倍稀释的PBS稀释 冰上放置10分钟,然后凝胶化。
- 准备一个湿润的孵育盒,内铺一层湿润的纸巾并用封口膜(parafilm)密封,于4 °C放置10分钟。
- 将湿盒置于冰上。
- 将盖玻片从蛋白质锚定溶液中取出并去除 用纸巾擦去多余的溶液(连续两次)。
- 添加 APS(终浓度 0.5%)加入凝胶溶液中,涡旋振荡2-3分钟 秒,取 35 μL 样品加入 2 滴至 保湿室的Parafilm膜。
- 用盖玻片覆盖每个液滴,使细胞面向凝胶溶液。
- 冰上孵育5分钟,以使凝胶充分渗透。
- 37 °C 下孵育 30-60 分钟。
- 变性
- 使用活检打孔工具(直径 0.4 cm)对凝胶进行打孔, 图 2D)并在含有1 mL变性缓冲液的6孔板中振荡10/15分钟,直至凝胶从盖玻片上脱落。
- 将凝胶转移至含有新鲜变性缓冲液的1.5 mL 微离心管中。
- 95 °C 下孵育 1 小时 30 分钟。
- 将凝胶转移至ddH₂O中2O,10分钟,重复3次,以充分洗涤变性缓冲液。
- 使用毫米纸或卡尺测量凝胶,以评估凝胶膨胀因子。
- 将凝胶转移至 PBS 中进行免疫染色。
- 或者,可将凝胶短期(不超过一周)保存于含0.02%叠氮化钠的PBS中,4 °C保存。表1)或在 -20°C 下长期保存(表1)。长期保存时,凝胶需在多批次水中孵育:先在50%甘油溶液中振荡孵育2–3小时,然后置于-20 °C,加入足量的溶液,溶液体积需根据凝胶大小进行调整。
注意:如需要,凝胶可保持完整图 2D,E)(步骤 2.2.3.1)。最多可将 5 个组织芯(相当于整块凝胶)收集于 1 支离心管中(步骤 2.2.3.2)。必须严格遵守变性温度和时间(步骤 2.2.3.3)。高温可能导致管盖弹开,引起变性缓冲液蒸发和/或凝胶喷出。务必使用带安全锁的离心管或对管子进行覆盖。变性后对凝胶的洗涤必须使用蒸馏水,因为 PBS 会引发 SDS 沉淀,影响洗涤效率。此步骤将导致凝胶轻微膨胀,但对后续实验步骤无影响(步骤 2.2.3.4)。若为较大凝胶,甘油可用 PBS 稀释以节省空间。对于 0.4 mm 的组织芯,凝胶最佳保存方式为置于含 3 mL 水:甘油的 12 孔板中。
- 蛋白质锚定
3. 免疫染色与最终扩增
- 更换 PBS 浴液,再孵育 15 分钟。
- 将整个凝胶切成 4 个相等的部分。
- 将凝胶块/打孔样品转移至适配载体中(图 2D、E),并在含 2% BSA 的 PBS 中加入一抗,于摇床上孵育 3 小时至过夜(详细条件见 表 2 和 表 3)。
- 用含 0.1% Tween 的 PBS 在室温下振荡洗涤凝胶 3 次,每次 10 分钟。
- 将凝胶在含 2% BSA 的 PBS 中加入二抗和 Hoechst 染料,于摇床上孵育 3 小时至过夜(详细条件见 表 2 和 表 3)。
- 用含 0.1% Tween 的 PBS 在室温下振荡洗涤凝胶 3 次,每次 10 分钟。
- 可选步骤:通过将凝胶在 PBS 中与 NHS-酯试剂在室温下振荡孵育 1 小时 30 分钟,实现全蛋白质组标记(具体条件见 表 2);随后用含 0.1% Tween 的 PBS 洗涤 3 次,每次 10 分钟。
- 将凝胶转移至适配载体中,通过在蒸馏水(ddH2O)中孵育进行凝胶扩增。
注意:抗体洗涤步骤中所用去污剂(Tween、Triton-X100、皂苷)的种类和浓度可根据生物样本进行调整。多次更换水至关重要,以彻底去除盐分残留,否则会阻碍完全扩增。
4. 封片与成像
- 用多聚赖氨酸(见第1.1节)包被盖玻片:将约200 μL多聚赖氨酸覆盖于盖玻片上,室温孵育1小时,然后洗涤3次 在 ddH₂O 中2O 以去除多余的多聚赖氨酸。让盖玻片干燥,并在4°C下保存备用。
- 将膨胀后的凝胶置于成像腔室内的未包被盖玻片上,使用荧光显微镜检查样品的方向。
- 方向确定后,将凝胶置于无绒纸上干燥以去除多余水分,并固定在多聚赖氨酸包被的盖玻片上(见步骤1.1的实验方案)。
- 使用倒置显微镜观察样品。
结果
本文重点介绍了将冷冻固定与膨胀显微技术结合应用于两种不同类型样本的结果:培养的哺乳动物细胞和T. brucei寄生虫。两种样本在膨胀和免疫染色前,均采用冷冻固定或4%多聚甲醛(PFA)化学固定。需要注意的是,其他化学固定方法可能更适用于特定细胞器(如甲醇或戊二醛),但为简化与冷冻固定的比较,本文仅选用PFA这一常见的化学固定方式。
人RPE1(视网膜色素上皮细胞)经αβ-微管蛋白、ATP5a和Hoechst染色,分别用于可视化微管、线粒体和细胞核。此外,在扩增前将凝胶与荧光NHS酯孵育,该染料可与游离胺基反应,从而标记整个细胞蛋白质组。与化学固定相比,冷冻固定具有多种优势,这已在先前研究中得到证实23。最显著的特点是,冷冻固定可完美保留线粒体网络,无论是通过NHS酯还是针对ATP合酶α亚基(ATP5a)的特异性抗体均可清晰观察到(图3A、B)。此外,由于ATP5a定位于线粒体内膜,我们利用冷冻固定技术成功分辨出线粒体嵴结构(图3B")。相比之下,PFA固定无法有效保留线粒体网络,因此在此条件下无法观察到线粒体嵴(图3C")。我们还对两种条件下的微管进行了染色,结果表明冷冻固定更有利于保存动态微管结构,如胞质微管或星体微管(图3B-E)。然而,对于稳定性较高的微管结构,如中心粒和纤毛(由9组三联或双联微管构成的非膜性细胞器),PFA固定的保存效果与冷冻固定相当,甚至更优(图3B'、C')。值得注意的是,由于冷冻固定能完整保留细胞内蛋白质,可能不适用于中心粒/纤毛等高度致密的结构。类似现象也见于核孔等刚性结构:化学固定会导致胞质蛋白被洗脱,从而更有利于观察核孔结构23,32。最后,我们证实冷冻固定可避免化学固定带来的交联效应,后者会负面影响扩增能力;例如有丝分裂纺锤体在冷冻固定条件下的扩增程度比PFA固定高出近2倍(图3D、E)。
Trypanosoma brucei 细胞经 TDH34 染色(图 4A–D),以显示其独特的线粒体;同时经 BiP35 染色(图 4E、F),以突出内质网结构。此外,凝胶使用荧光 NHS-酯进行染色。与人类细胞中的观察结果类似,相较于 PFA 固定,冷冻固定结合扩增技术能更好地保持整体细胞结构(图 4B、E),尤其是上述两种膜性结构(图 4C、D、F)。T. brucei 的微管细胞骨架比人类细胞的更为 rigid 且稳定;因此,PFA 固定与冷冻固定之间未观察到显著差异。此外,U-ExM 技术的分辨率极限使我们无法区分单个微管(未展示)。
总体而言,冷冻固定克服了传统化学固定的局限性,例如对膜性细胞器(线粒体、内质网)以及动态细胞骨架成分(胞质或星体微管)的保存。此外,由于冷冻固定不会在蛋白质之间产生任何交联,因此能够完全保留膨胀能力,尤其适用于坚硬且致密的结构。
控制冷冻固定和膨胀的质量对于保持生物样本的细胞超微结构至关重要。多种操作失误可能导致固定效果不佳,从而在生物样本中产生伪影。本文重点介绍最常见的冷冻固定缺陷以及固定不良所导致的结果。冷冻固定产生的最明显伪影是在生物样本内部出现裂纹(图5A),这在冷冻电子显微镜中也较为常见。尽管这些裂纹并不会改变细胞器的固有超微结构——如图5A(插图)中线粒体和微管所示——但仍可能引起对这些裂纹生物学意义的误判,因此需谨慎对待。目前尚未发现操作问题与这些裂纹的出现频率或数量之间存在特定的相关性。
提示固定效果不佳的一个特定特征是细胞质内出现“气泡样结构”,表明存在冰晶。这些结构在NHS-酯染色中尤为明显(图5B)。通常还伴随细胞骨架组分的保存有限,例如呈波浪状的微管(图5B),以及膜性细胞器(如线粒体)保存极差(图5B)。这些特征表明固定过程中存在严重问题,可能由以下原因导致:(i)乙烷体积和/或温度不适宜(方案中的步骤2.2.4–2.2.6);(ii)生物样本升温过程未逐步进行(方案中的步骤2.3和2.4);(iii)冷冻置换溶液中存在杂质(方案中的步骤2.2.1)。图5C展示了丙烯酸钠溶液的代表性图像,用以说明适用于膨胀实验的38%丙烯酸钠溶液的预期外观:无色透明[1]或略带黄色且透明[2];而不适用于膨胀实验的溶液则呈黄色/橙色且浑浊[3]。
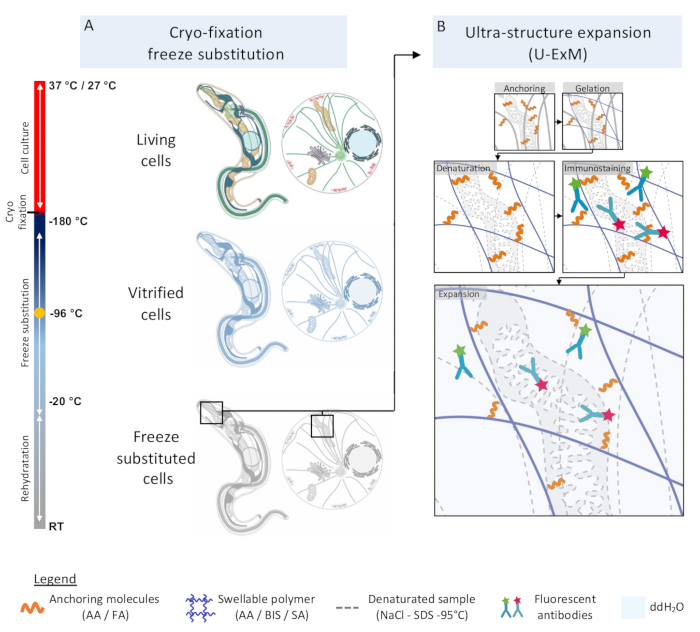
图1 Cryo-ExM工作流程。 (A)活细胞(人源细胞或T. brucei)通过在-180 °C的液态乙烷中快速浸入实现冷冻固定,并在干冰上于冷冻丙酮中孵育。通过在干冰上逐步缓慢升温,从-180 °C升至-80 °C,进行冷冻置换,此过程引发丙酮液化(-96 °C);随后在无干冰条件下继续升温至-20 °C。再通过一系列乙醇与蒸馏水混合溶液的梯度浸泡实现再水合,同时温度从-20 °C持续升至室温。(B)再水合后的样品按以下步骤进行扩增:样品在37 °C下孵育于丙烯酰胺:甲醛(AA/FA)混合液中,使蛋白质锚定于可膨胀的聚合物凝胶(由丙烯酰胺、双丙烯酰胺和丙烯酸钠(AA/BIS/SA)构成),其中丙烯酸钠赋予凝胶膨胀特性。随后在95 °C的NaCl/SDS溶液中孵育,以破坏蛋白质-蛋白质相互作用并实现温和变性,该步骤对实现各向同性膨胀至关重要。然后使用常规的一抗和二抗对样品进行免疫染色,最后在蒸馏水中实现膨胀。请点击此处查看该图的放大版本。
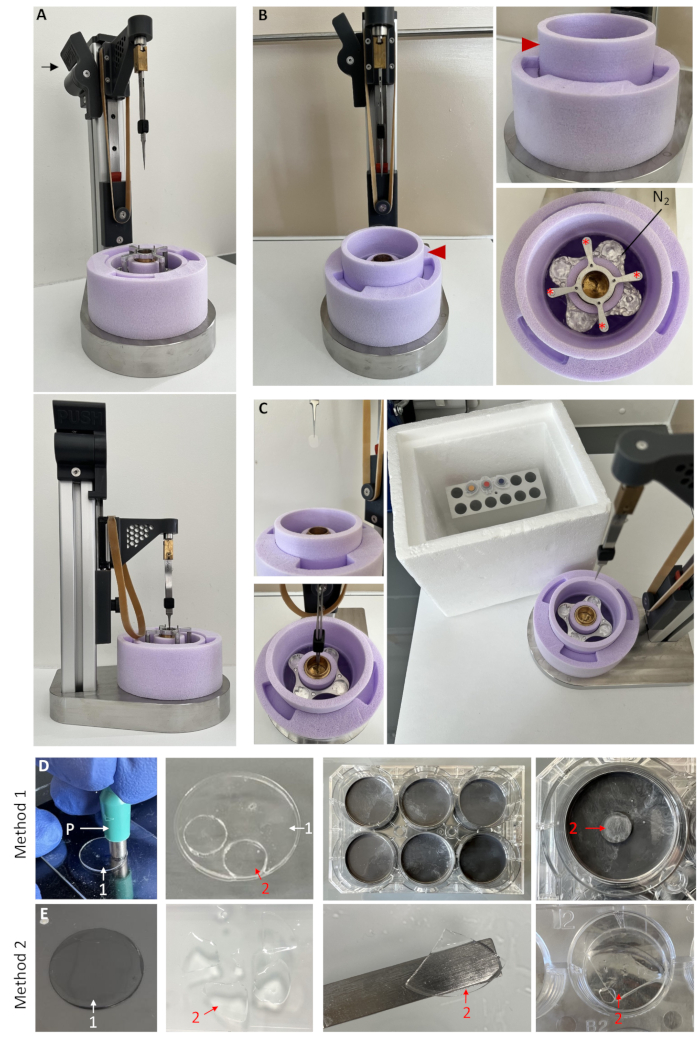
图 2. 冷冻投入与展开装置。 (A)冷冻投入装置处于待命位置(上图)和下压位置(下图)。箭头指示用于启动投入操作的 PUSH 按钮。(B)准备就绪的冷冻投入装置,显示液氮(N2)的合适液位,该液位由杜瓦瓶周围泡沫的高度指示(红色箭头)。可拆卸的蜘蛛架由星号标示。(C)冷冻投入关键步骤示意图:从持握盖玻片(左上),到盖玻片在液态乙烷杜瓦瓶中的位置(左下),以及用于冷冻置换的收集管(右)。(D)针对人源样本免疫染色的“凝胶打孔”法示意图。覆盖在盖玻片上的聚合凝胶(1)使用特制活检打孔器(P)切割,形成直径为 0.4 cm 的凝胶圆片(2),可置于硅化板中进行染色(右图),以减少抗体用量。(E)适用于人源及T. brucei样本免疫染色的“凝胶切割”法示意图。已聚合并变性的凝胶(1)被切成四个相等的部分(2),便于在 12 孔板中与抗体共同孵育。请点击此处查看该图的放大版本。
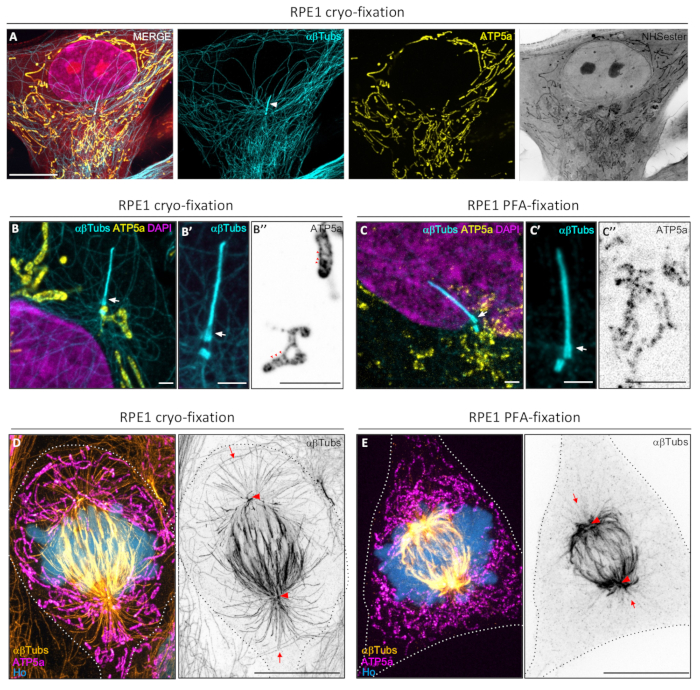
图 3。人源细胞中冷冻固定与PFA固定的比较。(A)经冷冻固定并扩增的RPE1细胞的转盘共聚焦图像,显示αβ-微管蛋白(青色)、线粒体ATP合酶亚基5a(ATP5a,黄色)以及NHS-酯(红色/灰色)染色结果,表明膜性细胞器和细胞骨架结构(包括中心粒和纤毛,箭头所示)均得到了极佳的保存。比例尺:10 µm。(B、C)冷冻固定(B)与PFA固定(C)RPE1细胞的转盘共聚焦图像,染色标记为αβ-微管蛋白(青色)、线粒体ATP5a(黄色)和Hoechst(品红色),重点展示初级纤毛(箭头,B'、C')和线粒体(B"、C")。尽管冷冻固定与PFA固定在保存中心粒和初级纤毛方面效果相当,但在线粒体结构的保存上,冷冻固定显著优于PFA固定(B"、C"中的红色箭头指示仅在冷冻固定条件下可见的线粒体嵴)。比例尺分别为1 µm、1 µm和2.5 µm。(D、E)有丝分裂期RPE1细胞的转盘共聚焦图像,分别为冷冻固定(D)与PFA固定(E),染色标记为αβ-微管蛋白(黄色/灰色)、线粒体ATP5a(品红色)和Hoechst(BOP蓝色),结果显示冷冻固定可实现有丝分裂纺锤体更好的扩展,并更完整地保留纺锤体微管(红色箭头)。有丝分裂纺锤体长度测量值分别为:冷冻固定12 µm,PFA固定7 µm。比例尺:10 µm。请点击此处查看该图的高清版本。
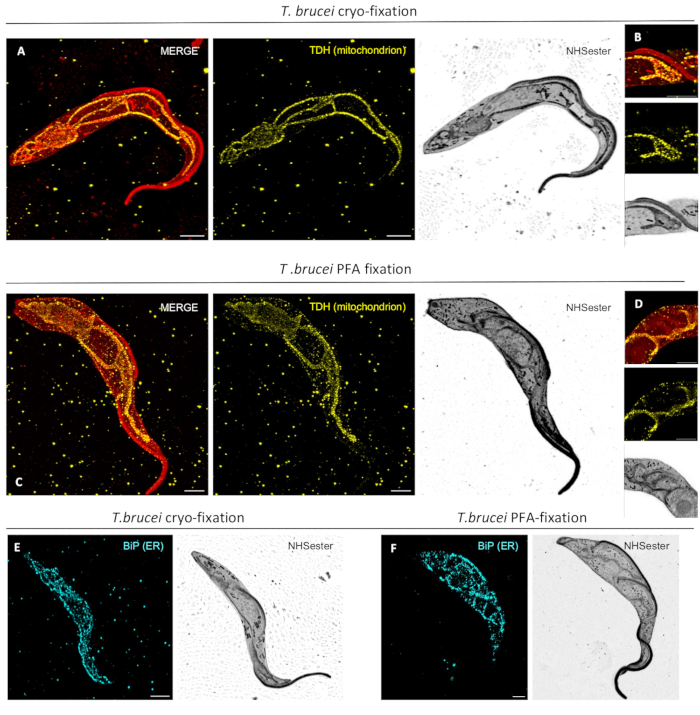
图4.布氏锥虫中冷冻固定与PFA固定的比较。(A、B)经冷冻固定并膨胀处理的T. brucei前循环期细胞的共聚焦图像,标记线粒体苏氨酸脱氢酶(TDH,黄色)和NHS-酯(红色/灰色),显示了独特的线粒体结构及细胞整体构架的良好保存。比例尺:5 µm。(C、D)经PFA固定并膨胀处理的T. brucei前循环期细胞的共聚焦图像,标记TDH(黄色)和NHS-酯(红色/灰色)。比较线粒体结构的保存情况和网络形态,冷冻固定优于PFA固定。比例尺:5 µm。(E、F)经冷冻固定(E)和PFA固定(F)并膨胀处理的T. brucei前循环期细胞的共聚焦图像,标记内质网标志物BiP和NHS-酯(灰色),显示冷冻固定可实现更佳的内质网膨胀与结构保存。比例尺:5 µm。 请点击此处查看该图的放大版本。
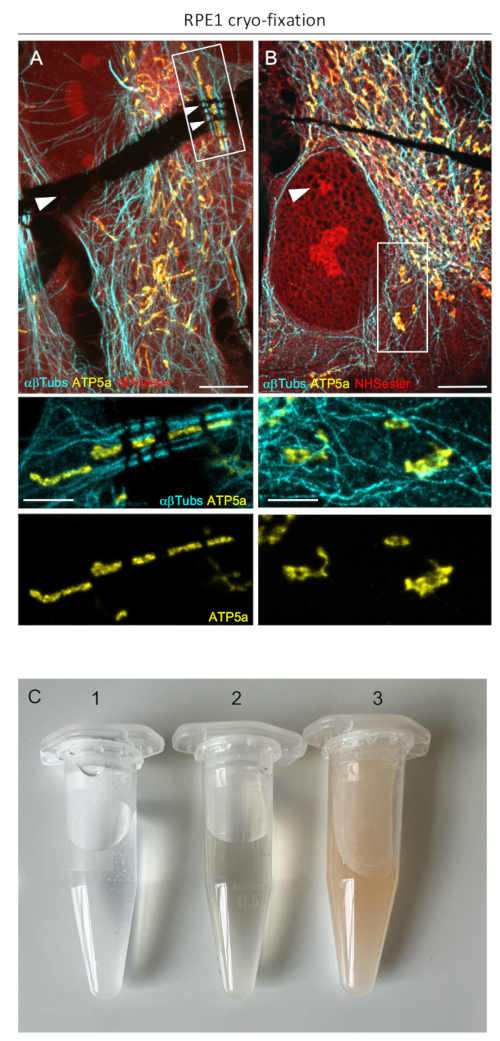
图5.冷冻固定问题。(A,B)经冷冻固定并扩增的RPE1细胞的转盘显微图像,染色标记αβ-微管蛋白(青色)、线粒体ATP合酶亚基5a(ATP5a,黄色)和NHS酯(红色),显示了冷冻固定的典型效应:裂纹(A,箭头)和气泡(B,箭头)。虽然裂纹不影响细胞器的超微结构(A),但细胞质中出现气泡(B)表明固定效果不佳,并显著破坏了亚细胞器(线粒体和微管,插图)的保存状态。比例尺:5 µm 和 2 µm(插图)。(C)不同丙烯酸钠溶液的照片,展示了38%丙烯酸钠溶液预期的外观:可使用状态为无色透明(1)或微黄透明(2);不可用于扩增的状态为黄色/橙色且浑浊(3)。请点击此处查看该图的放大版本。
表1:溶液储存条件 请点击此处下载该表格。
表2:抗体列表 请点击此处下载该表格。
表3:免疫染色条件 请点击此处下载该表格。
讨论
本文介绍了一种将冷冻固定与膨胀显微技术相结合的详细实验方案(Cryo-ExM),该方法可有效避免化学固定常引起的结构扭曲和抗原丢失等假象,从而实现对亚细胞结构的高保真可视化。通过在接近天然状态下保存细胞结构,Cryo-ExM无需进行复杂的固定条件优化,能够更准确地实现蛋白质定位分析。
尽管该实验方案总体上较为直接,但若干关键步骤需要特别注意,以确保获得成功的结果。冷冻投入步骤尤为敏感,不仅需要特定的材料(参见材料表),还要求操作者具备一定的熟练技巧,尤其是在处理液态乙烷填充时,这一环节可能成为潜在的技术难点。具备冷冻固定技术的前期经验将有助于操作;我们建议初次采用此方法时,咨询冷冻电镜专家或电子显微镜设施管理人员。在样品扩增阶段,必须严格遵守变性条件,任何偏离都可能影响样品的保存效果和扩增效率。最后,妥善保存所有试剂(参见表1)对于确保实验的可重复性以及长期稳定的成像质量至关重要。
本文强调了冷冻扩展显微技术(Cryo-ExM)方案的若干关键优势。值得注意的是,冷冻固定可最大限度地减少可溶性蛋白的丢失,而这是传统固定方法常见的局限性,同时能更好地保持膜完整性,从而提高细胞成像的保真度。该技术的一个主要优势在于其与标准宽场和共聚焦显微镜的兼容性。与许多需要专用且通常昂贵设备的超分辨率成像方法不同,扩展显微镜(ExM)可使用常规荧光显微镜实现。ExM的另一重要优势是其广泛的适用性。该技术已成功应用于多种生物样本——从单个细胞到复杂组织——显示出其在不同研究领域中的广泛应用前景。本文特别强调了该方案与两种截然不同的模式系统:T. brucei 和人类细胞的兼容性;但需注意,对于更大或更复杂的样本,需要采用高压冷冻固定,因为手动浸入式冷冻不足以完整保存整个样本24,25,30。扩展显微技术彻底改变了对以往难以甚至无法分辨的纳米级细胞结构的可视化能力,推动了细胞生物学、发育生物学和神经科学等领域的突破36。尤其在寄生虫学领域,该方法带来了变革性进展,因为在该领域传统光学显微镜往往难以满足需求。对于许多寄生虫而言,超微结构扩展显微镜(U-ExM)已成为一项颠覆性技术,能够以前所未有的清晰度对顶质体、锥体结构(conoid)以及细胞骨架元件等复杂细胞器进行高分辨率成像6,37,38。这些进展展示了U-ExM揭示以往无法获取的结构细节的强大能力,为细胞生物学、神经科学和寄生虫生物学的研究开辟了新的途径,并有助于发现潜在的治疗靶点。此外,ExM仍可与常用的免疫荧光抗体兼容,便于整合到现有实验流程中。在大多数情况下,常规用于荧光显微镜或蛋白质印迹(western blotting)的抗体在扩展后的样本上仍能有效发挥作用,无需使用特殊试剂。这种易用性使得Cryo-ExM成为众多生物医学研究实验室极具吸引力的选择,能够在无需承担先进成像系统通常伴随的高昂成本与复杂操作的前提下,实现高分辨率成像。
尽管扩展显微技术(ExM)具有诸多优势,但也存在某些局限性。其中一个主要缺点是抗体消耗量较大,可能导致成本高昂或使用困难,特别是对于产量有限的自制抗体而言尤为突出。因此,我们提出本实验方案策略,以减少免疫染色过程中抗体的使用体积(图2D、E)。此外,扩展过程会增加样品的厚度,由于标准显微镜物镜的工作距离有限,可能影响对深层结构的观察。当研究较大且较厚的样品时,这一限制尤为明显,因为深层区域可能无法通过常规显微镜有效成像。另外,组织扩展有时会引入机械形变,因此需要仔细进行验证和校正,以确保空间结构的准确再现。最后,传统的ExM严格依赖于样品固定,而固定条件需根据不同的生物样品或亚细胞结构进行调整。例如,中心粒和纤毛结构较为稳定,可在无需预固定的条件下直接扩展;而其他细胞器则需要采用不同类型的化学固定(如PFA、甲醇、戊二醛),这些固定方法可能产生人工假象,并阻碍多种细胞结构的同时观察。然而,由于ExM可兼容多种超分辨率成像模式,如结构光照明显微镜(SIM)39、受激辐射损耗显微镜(STED)40、直接随机光学重建显微镜(dSTORM)41,以及近期发展的光片 显微镜42,本研究所描述的方法为高精度解析细胞结构提供了灵活而强大的工具。最近一项研究将冷冻固定与迭代扩展显微技术相结合32,在尽可能保持细胞天然状态的基础上,进一步突破了分辨率的极限。
通过实现这些先进成像技术对细胞天然状态的捕捉,冷冻扩展显微技术(Cryo-ExM)为未来以无与伦比的清晰度研究复杂细胞过程铺平了道路。该方法还为相关光镜与电镜(CLEM)技术开辟了新的可能性,进一步增强了其在多模态成像中的应用潜力。
总之,扩展显微技术(ExM)是一种功能强大的超分辨率成像工具,可广泛应用于多种生物样本。该技术与常规显微镜兼容,适用于多种样本类型,且实施相对简便,因此受到众多实验室的青睐。随着该技术的持续发展,预计在分辨率、抗体使用和样本处理方面将进一步改进,从而提升其性能,并使其在更广泛的生物研究领域中更易于应用。特别是冷冻扩展显微技术(Cryo-ExM),作为一项颇具前景的进展,能够在保持细胞结构天然完整性的前提下,实现对其精细结构的深入研究,最终推动现代显微技术的边界不断拓展。
致谢
我们感谢 Jennifer Vieillard 对本文稿提出的宝贵建议和审阅。我们感谢里昂东部健康科学研究联合单位(SFR Santé Lyon-Est,UAR3453 CNRS,US7 Inserm,UCBL)平台下属的 CIQLE(里昂显微成像中心 LyMIC 成员)在获取 RPE1 细胞图像方面所作的贡献。我们感谢 BIC 的 Mónica Fernández Monreal 为我们提供冷冻压片仪和液态乙烷的使用权限,同时感谢波尔多影像中心(CNRS-INSERM 与波尔多大学的服务单元,国家基础设施 France BioImaging 的成员)在获取 T. brucei 图像方面提供的支持。本研究得到以下机构的支持:法国国家科学研究中心(CNRS,用于 T. brucei 研究)和法国国家健康与医学研究院(INSERM,用于人源细胞研究),并由以下机构资助:法国国家科研署(Agence Nationale de la Recherche,ANR-20-CE91-0003、ANR-19-CE17-0014,授予 M.B)、LabEx ParaFrap(ANR-11-LABX-0024)以及大脑研究基金会(Fondation pour la Recherche sur le Cerveau,FRC-AP2024,授予 M.L)。P.H 得到 ANR-OIL 项目资助(ANR24-CE15-2171-01,授予 L.R);L.K 得到 ANR-BBDIV 项目资助(ANR-22-CE13-0014,授予 B.D)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 5ml 离心管金属支架 | Dominique Dutscher | QB-E5 | 冷冻置换步骤 |
| 620 手动冷冻载网 plunging 装置 | RHOST | https://rhost-em.com/ | 冷冻固定步骤 |
| 丙酮 99.8% AcroSeal | Acros Organics | 货号. no. 67-64-1 | 冷冻置换步骤 |
| 40% 丙烯酰胺 (AA) | Sigma-Aldrich | A4058 | 膨胀程序 (锚定) |
| 丙烯酸 | Sigma-Aldrich | 8.00181 | 膨胀程序(聚合物) |
| 过硫酸铵 (APS) | Thermo Fisher | 17874 | 膨胀程序(聚合物) |
| 活检打孔器 | Dominique Dutscher | PUK-40 | 变性前切割凝胶所需 |
| 牛血清白蛋白 (BSA) | Sigma-Aldrich | P1379 | 免疫染色 |
| Attofluor 细胞培养腔室 | Invitrogen | A7816 | 适用于 24 mm 盖玻片的成像腔室 |
| 细胞腔室 | Life Imagning Service | 10900 | 适用于 18 mm 盖玻片的成像腔室 |
| 12 mm 盖玻片 | Dominique Dutscher | 100040 | 细胞培养 / 固定布氏锥虫 (T.brucei) |
| 24 mm 盖玻片 | Dominique Dutscher | 900547 | 成像 |
| 18 mm 盖玻片 | VWR | 631-0153 | 成像 |
| 乙烷气体 | Linde Gaz | 88888DE | 冷冻固定所需 |
| 甲醛 36.5–38% (FA) | Sigma-Aldrich | F8775 | 膨胀程序 (锚定) |
| 25% 戊二醛 (GA) | Sigma-Aldrich | G5882 | 冷冻置换步骤 |
| 甘油 | Euromedex | EU3550 | 凝胶长期保存 |
| 液氮 | Linde Gaz | 2200975 | 冷冻固定所需(系统冷却) |
| 5 ml 透明锁扣离心管 | Dominique Dutscher | 390932A | 冷冻置换所需 |
| 18G 针头 | Dominique Dutscher | 050123B | 用于收集丙酮 |
| N,N'-亚甲基双丙烯酰胺 2% (BIS) | Sigma-Aldrich | M1533, SIGMA | 膨胀程序(聚合物) |
| 16% 多聚甲醛 (PFA) | EMS | 货号. no. 15710 | 冷冻置换步骤 |
| 聚-D-赖氨酸 | Sigma-Aldrich | P1024 | 样品/成像用盖玻片包被 |
| 聚-L-赖氨酸 | Sigma-Aldrich | P1274 | 样品/成像用盖玻片包被 |
| 减压阀 | Linde Gaz | CPLH0SJ-LIN224 | 用于乙烷分配的减压阀(冷冻固定) |
| Terumo 10 ml 注射器 | Dominique Dutscher | 50132 | 用于收集丙酮 |
| 硅橡胶试剂盒 | Dow | 4001834 | 用于制备硅胶包被孔板的试剂盒(免疫染色) |
| 丙烯酸钠 97-99% (SA) | Sigma-Aldrich | 408220 | 膨胀程序(聚合物) |
| AK Scientific | R624 | 膨胀程序(聚合物) | |
| 十二烷基硫酸钠 | Euromedex | EU0660 | 膨胀程序(变性) |
| 四甲基乙二胺 (TEMED) | Thermo Fisher | 17919 | 膨胀程序(聚合物) |
| 管路 | Thermo Scientific | 8060-0060 | 用于乙烷分配的管路(冷冻固定) |
| 吐温-20 | Euromedex | 1005-7 | 免疫染色 |
| Dumont 镊子 n°5 | FineScienceTools | 11255-20 | 盖玻片操作 |
参考文献
- Jacquemet, G., et al. The cell biologist's guide to super-resolution microscopy. J Cell Sci. 133 (11), jcs240713(2020).
- Chen, F., Tillberg, P. W., Boyden, E. S. Optical imaging: expansion microscopy. Science. 347 (6221), 543-548 (2015).
- Laporte, M. H., et al. Time-series reconstruction of the molecular architecture of human centriole assembly. Cell. 187 (9), 2158-2174 (2024).
- Steib, E., et al. WDR90 is a centriolar microtubule wall protein important for centriole architecture integrity. Elife. 9, e57205(2020).
- Le Borgne, P., et al. The evolutionary conserved proteins CEP90, FOPNL, and OFD1 recruit centriolar distal appendage proteins to initiate their assembly. PLoS Biol. 20 (9), e3001782(2022).
- Bertiaux, E., et al. Expansion microscopy provides new insights into the cytoskeleton of malaria parasites including the conservation of a conoid. PLoS Biol. 19 (3), e3001020(2021).
- Liffner, B., et al. Atlas of Plasmodium falciparum intraerythrocytic development using expansion microscopy. Elife. 12, RP88088(2023).
- Amodeo, S., et al. Characterization of the novel mitochondrial genome segregation factor TAP110 in Trypanosoma brucei. J Cell Sci. 134 (5), jcs254300(2021).
- Corrales, R. M., et al. Tubulin detyrosination shapes Leishmania cytoskeletal architecture and virulence. Proc Natl Acad Sci U S A. 122 (3), e2415296122(2025).
- Brunet, M., et al. Drosophila Alms1 proteins regulate centriolar cartwheel assembly by enabling Plk4-Ana2 amplification loop. EMBO J. 44 (8), 2396(2025).
- Langner, E., et al. Ultrastructure expansion microscopy (U-ExM) of mouse and human kidneys for analysis of subcellular structures. Cytoskeleton (Hoboken). 81 (11), 618-638 (2024).
- Mercey, O., et al. The connecting cilium inner scaffold provides a structural foundation that protects against retinal degeneration. PLoS Biol. 20 (6), e3001649(2022).
- Steib, E., et al. TissUExM enables quantitative ultrastructural analysis in whole vertebrate embryos by expansion microscopy. Cell Rep Methods. 2 (10), 100311(2022).
- Freifeld, L., et al. Expansion microscopy of zebrafish for neuroscience and developmental biology studies. Proc Natl Acad Sci U S A. 114 (50), E10799-E10808 (2017).
- Yu, C. J., Orozco Cosio, D. M., Boyden, E. S. ExCel: super-resolution imaging of C. elegans with expansion microscopy. Methods Mol Biol. 2468, 141-203 (2022).
- Tillberg, P. W., et al. Protein-retention expansion microscopy of cells and tissues labeled using standard fluorescent proteins and antibodies. Nat Biotechnol. 34 (9), 987-992 (2016).
- Gambarotto, D., et al. Imaging cellular ultrastructures using expansion microscopy (U-ExM). Nat Methods. 16 (1), 71-74 (2019).
- Ku, T., et al. Multiplexed and scalable super-resolution imaging of three-dimensional protein localization in size-adjustable tissues. Nat Biotechnol. 34 (9), 973-981 (2016).
- Schnell, U., et al. Immunolabeling artifacts and the need for live-cell imaging. Nat Methods. 9 (2), 152-158 (2012).
- Dubochet, J. Cryo-EM-the first thirty years. J Microsc. 245 (3), 221-224 (2012).
- Neuhaus, E. M., et al. Ethane-freezing/methanol-fixation of cell monolayers: a procedure for improved preservation of structure and antigenicity for light and electron microscopies. J Struct Biol. 121 (3), 326-342 (1998).
- Kellenberger, E. The potential of cryofixation and freeze substitution: observations and theoretical considerations. J Microsc. 161 (Pt 2), 183-203 (1991).
- Laporte, M. H., et al. Visualizing the native cellular organization by coupling cryofixation with expansion microscopy (Cryo-ExM). Nat Methods. 19 (2), 216-222 (2022).
- Hinterndorfer, K., et al. Ultrastructure expansion microscopy reveals the cellular architecture of budding and fission yeast. J Cell Sci. 135 (24), jcs260240(2022).
- Mikus, F., Dey, G. Ultrastructure expansion microscopy (U-ExM) of the fission yeast Schizosaccharomyces pombe. Methods Mol Biol. 2862, 47-59 (2025).
- Ben Chaabene, R., et al. Toxoplasma gondii rhoptry discharge factor 3 is essential for invasion and microtubule-associated vesicle biogenesis. PLoS Biol. 22 (8), e3002745(2024).
- Shah, H., et al. Life-cycle-coupled evolution of mitosis in close relatives of animals. Nature. 630 (8015), 116-122 (2024).
- Klena, N., et al. An in-depth guide to the ultrastructural expansion microscopy (U-ExM) of Chlamydomonas reinhardtii. Bio Protoc. 13 (17), e4792(2023).
- van den Hoek, H., et al. In situ architecture of the ciliary base reveals the stepwise assembly of intraflagellar transport trains. Science. 377 (6605), 543-548 (2022).
- Mikus, F., et al. Charting the landscape of cytoskeletal diversity in microbial eukaryotes. bioRxiv. , (2024).
- Petrich, A., et al. Expanding insights: harnessing expansion microscopy for super-resolution analysis of HIV-1-cell interactions. Viruses. 16 (10), 1610(2024).
- Louvel, V., et al. iU-ExM: nanoscopy of organelles and tissues with iterative ultrastructure expansion microscopy. Nat Commun. 14 (1), 7893(2023).
- Lemaître, F., et al. Unveiling the molecular architecture of T cells and immune synapses with cryo-expansion microscopy. bioRxiv. , (2025).
- Millierioux, Y., et al. De novo biosynthesis of sterols and fatty acids in the Trypanosoma brucei procyclic form: carbon source preferences and metabolic flux redistributions. PLoS Pathog. 14 (5), e1007116(2018).
- Bangs, J. D., et al. Molecular cloning and cellular localization of a BiP homologue in Trypanosoma brucei: divergent ER retention signals in a lower eukaryote. J Cell Sci. 105 (Pt 4), 1101-1113 (1993).
- Dolgin, E. 'Expansion microscopy' turns ten: how a tissue-swelling method brought super-resolution imaging to the masses. Nature. 637 (8046), 752-754 (2025).
- Tosetti, N., et al. Essential function of the alveolin network in the subpellicular microtubules and conoid assembly in Toxoplasma gondii. Elife. 9, e56635(2020).
- Gorilak, P., et al. Expansion microscopy facilitates quantitative super-resolution studies of cytoskeletal structures in kinetoplastid parasites. Open Biol. 11 (9), 210131(2021).
- Halpern, A. R., et al. Hybrid structured illumination expansion microscopy reveals microbial cytoskeleton organization. ACS Nano. 11 (12), 12677-12686 (2017).
- Gao, M., et al. Expansion stimulated emission depletion microscopy (ExSTED). ACS Nano. 12 (5), 4178-4185 (2018).
- Zwettler, F. U., et al. Molecular resolution imaging by post-labeling expansion single-molecule localization microscopy (Ex-SMLM). Nat Commun. 11 (1), 3388(2020).
- Daetwyler, S., Fiolka, R. P. Light-sheets and smart microscopy, an exciting future is dawning. Commun Biol. 6 (1), 502(2023).
重印与许可
