稳定 体外 原始生殖细胞样细胞(PGCLCs)的扩增一直面临技术挑战,PGCLCs 是由多能干细胞衍生而来的胚胎原始生殖细胞的替代模型。本方案支持 PGCLCs 在长期培养中的扩增,处于 体外 无血清或饲养层细胞的培养条件。
本文内容
摘要
摘要
原始生殖细胞(PGCs)是所有雄性和雌性生殖系细胞的共同前体。PGCs 出现在着床期哺乳动物胚胎中,并在性腺原基发生性别分化后转变为性别特异性的生殖细胞前体。 体外 一种被称为原始生殖细胞样细胞(PGCLCs)的模型,由人类多能干细胞衍生而来,是人类胚胎原始生殖细胞的有效替代模型,为研究人类配子发生提供了独特的机会 体外. 本方案支持长期 体外 人类PGCLC的扩增。新分离的PGCLC最初在STO饲养层上维持培养,随后在无饲养层条件下于基底膜提取物上进行扩增。长期培养的PGCLC(LTC-PGCLC)可通过流式细胞荧光分选(FACS)富集为CD38阳性细胞,并可轻松扩增至数千万个细胞,形成纯一、无饲养层、无血清的稳定培养体系,且无明显衰老等限制。从数千个新分离的PGCLC出发,实际操作中可获得超过一百万个纯化的PGCLC群体。人类LTC-PGCLC细胞培养体系是一种有效且便捷的 体外 用于研究人类生殖细胞生物学及其向下游生殖系细胞分化的模型。
引言
原始生殖细胞(PGCs)是所有生殖系细胞的最早前体细胞。人类原始生殖细胞在妊娠2-3周的早期着床后、原肠胚形成阶段的胚胎中,由后部上胚层——可能是未定命运的羊膜前体细胞——产生1,2,3,4,5,6,7。在人类和小鼠原始生殖细胞的特化过程中,骨形态发生蛋白(BMPs)和WNT3激活的信号通路均发挥关键作用3,6。在小鼠原始生殖细胞特化中,三种转录因子BLIMP1、PRDM14和TFAP2C的诱导表达是必需的;而在人类原始生殖细胞特化过程中,PRDM14的作用减弱。SOX17在小鼠原始生殖细胞特化中并非必需,但在人类中却是不可或缺的,其表达由BMP信号通路诱导,且完全依赖于EOMES,或同时依赖于EOMES和TBXT7,8,9。在妊娠5-6周时,人类原始生殖细胞从后部上胚层出发,经由背侧肠系膜向生殖嵴中的性腺原基迁移10,11,12,13,14,15,16。人类原始生殖细胞的迁移可能由趋化性驱动,但尚需实验验证。迁移阶段的人类原始生殖细胞转录组谱型与同期小鼠原始生殖细胞并不相同17,18。例如,人类原始生殖细胞在定居于性腺原基之前即表达DAZL,而小鼠原始生殖细胞仅在定居于性腺后才表达DAZL9。当性腺体细胞启动性别特异性分化时,原始生殖细胞也随之分化为精原细胞(又称生殖细胞)或卵原细胞。
由于技术与伦理障碍导致获取人类胚胎原始生殖细胞(PGCs)极为困难,因此利用多能干细胞衍生的原始生殖细胞样细胞(PGCLCs)正变得越来越普遍3小鼠PGCLC类似于迁移后的原始生殖细胞阶段,其特征是全基因组DNA(gDNA)高度去甲基化,并具有产生成熟且具备受精能力的精子和卵子的潜能。19,20,21相比之下,人类PGCLC与胚胎期原始生殖细胞的较早阶段相似,仅表现出有限的全基因组gDNA去甲基化7,22,23,24越来越多的证据表明,尽管人类PGCLC相对不成熟,但仍具备发育潜能 体外 分化为更高级阶段的生殖细胞,类似于卵原细胞25,26 或精原细胞27.
自从Irie等人以来 2015年,首次报道了由人类多能干细胞生成的原始生殖细胞样细胞(PGCLCs)7,许多实验室已发表多种人类原始生殖细胞样细胞(PGCLC)的制备方案。早期的标准方案涉及多能细胞聚集体的形成,这类聚集体通常被称为拟胚体7,22,24,26,28,29人类PGCLC可通过多种基于聚集体的方案制备,这些方案具有相似的转录组谱,均强烈表达关键的原始生殖细胞标志基因,如PRDM1、SOX17、TFAP2C、POU5F1和NANOS3,而多能性标志基因SOX2或晚期原始生殖细胞标志基因DDX4的表达通常受到抑制24已有成功报道通过单层细胞培养技术生成人类原始生殖细胞样细胞(PGCLCs),以提高可扩展性和操作便利性30尽管PGCLC的产量相对较少,但从多能干细胞成功衍生出人类PGCLC 体外 原肠胚阶段胚胎模型对阐明生殖系特化机制及早期原始生殖细胞发育过程具有重要意义31,32,33,34,35,36.
尽管产量 尽管利用不同细胞培养方法产生的人类原始生殖细胞样细胞(PGCLCs)在数量和质量上已不断改善,但人类PGCLCs在细胞培养中扩增的技术难度仍对其在需要大量同质细胞群体的实验中的应用构成重大障碍,例如化学或遗传筛选,以及生殖系细胞后续发育阶段的生成。26. Gell 等 在含有干细胞因子(SCF)和2.5%胎牛血清(FCS)的FR10培养基中,以STO饲养层培养人PGCLCs最长可达21天,已有相关报道;然而,PGCLCs倾向于偏离原始生殖细胞样特性,转化为可能与生殖系细胞发育无关的其他细胞类型37Murase 等人通过在每次传代时利用流式细胞术(FACS)反复清除这些不需要的细胞,证明了人类原始生殖细胞样细胞(PGCLCs)能够长期维持其增殖潜能。 体外38。随后,Murase 等人. 报道了在含2.5% FCS的培养基中成功扩增人源PGCLC39,但该方法需要使用m220-5饲养层细胞,这些细胞是m220小鼠胚胎细胞中自发出现的MMC耐药亚克隆,通过外源载体表达膜结合形式的小鼠SCF40截至目前,m220-5细胞尚未被保藏于任何公开可获取的资源库中。因此,扩大人类原始生殖细胞样细胞(PGCLC)培养仍面临重大挑战。 体外 在无需非标准饲养细胞资源且不含动物源性试剂的简单条件下,获得大量具有生殖细胞样特性的同质细胞,避免了不同批次试剂效率差异的问题。
为克服上述技术难题,一种能够实现长期 体外 已开发出在无血清且无饲养层细胞的条件下,将人原始生殖细胞样细胞(PGCLCs)扩增为具有均一性的细胞群体并维持其原始生殖细胞样特性的方法。41由于人类原始生殖细胞样细胞(PGCLCs)表达端粒酶,这些细胞以恒定速率扩增,在至少150天内未表现出衰老迹象,也未出现与其他细胞类型偏离的特征。长期培养的PGCLCs(LTC-PGCLCs)维持其人类原始生殖细胞样的转录组特征,尽管在多次传代后其基因组gDNA出现轻度去甲基化。LTC-PGCLCs可高效转化为多能性胚胎生殖细胞样细胞(EGCLCs),恢复类似诱导多能干细胞(iPSC)的转录组和gDNA甲基化组,但H19 RNA表达的印记等位基因限制性丢失。此外,LTC-PGCLCs还能够在xrTestis异种类器官培养体系中分化为表达DAZL、类似于前精原细胞的细胞。27因此,人类LTC-PGCLC模型代表了一种新型的、可稳定维持的、与多能性相关的细胞培养资源,能够长期保留PGCLC的生物学特性,并易于扩增。 体外 作为稳定细胞系。
本文描述了一种将新分离的、经FACS富集的纯人源PGCLC群体适应于无血清、长期维持培养的方法,该方法首先通过标准STO饲养层细胞提供短期支持,随后在无饲养层条件下于基底膜提取物(BME)上进行培养。该方法可支持 体外 使用先前所述的依赖胚状体的方案产生的人类原始生殖细胞样细胞的扩增24,41,42 或由 Sasaki 等人报道22,以及Overeem等人报道的单层培养法30应用于按上述方法制备的人类PGCLC时41,初始细胞数量为10,000个时,可扩增至近1 x 10⁹ 细胞在1.5至2个月内完成传代,群体倍增时间为4至4.5天41该方法也预期适用于通过其他方法产生的人类PGCLCs。
方案
1. 细胞培养基的制备
- 准备 如所述的培养基 表1, 表2, 表3,以及 表4将这些培养基的等分试样冷冻保存。
- 按照所述方法制备PGCLC基础培养基 表1分装为40 mL等份,于-20 °C保存,可稳定6个月。按如下所述配制STO培养基1 表2将50 mL分装至50 mL离心管中,于4 °C保存1个月。
- 按所述制备STO培养基2 表3立即使用。按照所述方法制备丝裂霉素C处理的STO细胞(MMC-STO)冻存培养基 表4将10 mL分装液于-20 °C保存6个月。
警告:二甲基亚砜被视为有害物质(易燃液体),应远离热源、火花、明火或高温表面。其处置应遵循当地的监管规程。
2. 丝裂霉素C处理的STO细胞的制备
注意:丝裂霉素C(MMC)处理STO细胞可使其增殖活性失活,而不会显著影响其存活率。经MMC处理的STO细胞用作人类原始生殖样细胞(PGCLCs)初始培养过程中的饲养层细胞(步骤4),同时也作为无细胞条件培养基的来源(步骤3)。
- 在四个 P15 培养皿中用 STO 培养基 1 培养 STO 细胞至接近汇合。将 STO 培养基 1 更换为 23 mL/皿,并直接向每皿中加入 23 μL 浓度为 10 mg/mL 的丝裂霉素 C(MMC),使其终浓度为 10 μg/mL。
- 充分混匀后,在 37 °C 的 CO2 培养箱中孵育 4 小时。
注意:若摄入大量 MMC 可致死,且其为疑似致癌物。该化合物的操作与处置应遵循当地监管规程。 - 在室温下,用 20 mL/皿的杜氏磷酸盐缓冲液(无钙镁)洗涤细胞两次。
- 在 CO2 培养箱中,用 4 mL/皿的 TrypLE Express 消化细胞 2 分钟,通过轻柔吹打将细胞解离为单细胞悬液。
- 将两皿细胞悬液(共 8 mL)转移至含有 30 mL 冰冷 STO 培养基-1 的 50 mL 离心管中。对另外两皿重复此步骤,共制备两管 38 mL 的细胞悬液。
- 加入 0.2% 台盼蓝染色,使用血细胞计数板或自动细胞计数仪检测细胞活力。
- 在 4 °C 条件下以 300 × g 离心 5 分钟,弃上清。将细胞沉淀重悬于冰冷的冻存液中,调整细胞密度至 5 × 10⁶ 个细胞/mL。
- 将经 MMC 处理的 STO 细胞以 1 mL/管分装至冻存管中,置于泡沫盒或程序降温盒中缓慢冷冻,于 -80 °C 保存,最长可保存 12 个月。
3. STO 条件培养基(S-CM)的制备
注意:MMC-STO 细胞的无细胞条件培养基(在步骤 2 中制备)可支持人 PGCLC 的存活和增殖,同时抑制其向失去 PGC 样特征的细胞发生偏离。
- 第1天:从冻存管中取出经MMC处理的STO细胞,接种5 × 10⁶个细胞至含10 mL/皿STO培养基2的明胶包被P10培养皿中。通常一批处理量为4至8个P10培养皿。将细胞置于37 °C、CO2培养箱中过夜培养。
- 明胶包被操作:每孔加入1 mL 0.1%明胶溶液,室温孵育至少20分钟。吸除多余明胶溶液,将培养器皿置于生物安全柜中晾干。明胶包被的塑料器皿可于室温保存2周,或4 °C保存3个月。
- 在4 °C条件下过夜解冻PGCLC基础培养基。
注意:不建议在更高温度下快速解冻。PGCLC基础培养基在4 °C保存不得超过1周。 - 第2天:弃去并移除STO培养基2。用预热的DPBS(约10 mL/皿)洗涤细胞,随后用预热的PGCLC基础培养基(2 mL/皿)洗涤一次。加入预热的PGCLC基础培养基(12 mL/皿),于37 °C、CO2培养箱中过夜培养。
- 第3天:收集全部条件培养基至50 mL离心管中。每皿重新加入PGCLC基础培养基(12 mL/皿),继续培养以在次日从同一STO细胞培养物中收集条件培养基。将收集的条件培养基于4 °C、300 × g离心5分钟。将上清液(S-CM)分装为每管10 mL至15 mL离心管中。避免吸取50 mL管底部残留的最后3 mL液体,以防MMC-STO细胞污染S-CM。分装后的S-CM可于-80 °C保存长达6个月。
- 第4天:通过重复步骤3.4 每日收集S-CM,直至MMC-STO单层细胞在PGCLC基础培养基中培养5–6天后出现明显退化。当培养皿中脱落细胞比例达到25%或以上时,停止收集。
4. 人类原始生殖细胞样细胞长期培养的适应
- 在MMC-STO饲养层上培养新分离的人类PGCLC。使用先前发表的方法制备人类PGCLC(Mitsunaga等24;Kobayashi等41)。人类PGCLC诱导的详细方案也已有发表42,43。
- 在初始扩增培养最多28天后,将PGCLC转移至基底膜提取物(BME)上进行无饲养层的长期培养(LTC-PGCLC)。在这两个PGCLC培养阶段中,均使用STO条件培养基(S-CM,见步骤3制备),并补充SCF,但不添加胎牛血清(FCS)。ROCK抑制剂仅在传代后立即使用。
注意:在本实验室中,BME使用的是ESC级别的Matrigel 。其他商业产品无法支持LTC-hPGCLC的长期扩增。 - 第1天:将经MMC处理的STO饲养层细胞以8 × 10⁴ 个细胞/cm2的密度接种于明胶包被的6孔板中,每孔加入3 mL STO培养基2。将饲养层在37 °C、CO2培养箱中孵育过夜。
- 第2天:弃去培养孔中的STO培养基,用温热的无血清Dulbecco's MEM洗涤细胞,每孔3 mL。每孔加入3 mL新鲜补充了0.1 mM 2-巯基乙醇、50 µg/mL抗坏血酸、100 ng/mL人重组SCF和10 µM Y-27632的S-CM。将500–2,000个新分离的人类PGCLC接种至每孔的STO饲养层上。在37 °C、CO2培养箱中孵育过夜。
注意:即使低浓度的血清也容易导致人类PGCLC产生非目标类型的细胞41。人类PGCLC的生长严格依赖于SCF41。Y-27632有助于接种时单细胞状态的人类PGCLC的存活,但在维持培养期间无需添加。2-巯基乙醇、抗坏血酸、SCF和Y-27632需新鲜加入培养基中。在典型实验中,PGCLC会被接种至6孔板的所有孔中。若起始材料中PGCLC数量较多,每孔接种密度最高可达10,000个也是可接受的。 - 第3天:更换一半培养基(每孔1.5 mL),加入新鲜补充了0.1 mM 2-巯基乙醇、50 µg/mL抗坏血酸和100 ng/mL人重组SCF(不含Y-27632)的温热S-CM。避免扰动PGCLC,以免因培养基流动过强导致其从饲养层上脱落。
- 第5–28天:每隔一天重复步骤4.5 。由于PGCLC的群体倍增时间通常约为4.5天41,在第6–7天或更晚时会出现小的PGCLC细胞簇(图1A-D)。到第14–15天时,细胞簇将更加明显(图1E,F)。若出现形态异常、偏离正常PGCLC特征的非目标细胞簇,应弃去含有此类细胞簇的孔,或尝试使用后续步骤4.9中所述的差异贴壁技术清除异常细胞。
- 当PGCLC扩增形成的细胞簇覆盖培养面积超过20%时(约第28天),使用细胞解离液(CDS)进行细胞解离。弃去PGCLC培养孔中的S-CM,无需洗涤,直接每孔加入1 mL预热的CDS 。在37 °C、CO2培养箱中孵育5分钟,直至PGCLC从孔底脱落。
注意:推荐使用Accutase作为CDS 以实现温和解离。CDS在37 °C预热时间不应超过5分钟。可通过轻柔吹打促进PGCLC脱落,但无需完全解离为单细胞悬液。保留少量PGCLC聚集体可能有助于提高细胞存活率。若非目标细胞出现并快速增殖,可通过调整CDS解离时间选择性收集较早脱落的PGCLC(其脱落时间通常早于饲养层细胞和大多数非目标细胞)。若非目标细胞持续出现并干扰PGCLC扩增,可尝试利用其在明胶包被孔中更快贴壁的特性,按步骤4.9所述方法去除。由于FACS富集PGCLC可能导致大量活细胞丢失,应相应减少饲养层的面积。 - 为终止CDS的解离作用,将细胞悬液用10倍体积的温热PGCLC基础培养基稀释,并在4 °C下以300 × g离心5分钟。需注意,某些CDS(如Accutase)的酶活性不会被血清或胰蛋白酶抑制剂抑制。弃去上清液,将细胞沉淀重悬于3 mL新鲜补充了0.1 mM 2-巯基乙醇、50 µg/mL抗坏血酸、100 ng/mL人重组SCF和10 µM Y-27632的温热S-CM中。
- 将细胞悬液接种至0.1%明胶包被的6孔板中,37 °C、CO2培养箱中孵育30分钟,以去除快速贴壁的MMC-STO细胞(及非目标细胞)。
注意:建议在孵育20分钟和30分钟时通过相差显微镜观察细胞,以评估饲养层细胞的贴壁情况。必要时可将孵育时间延长至最多45分钟。通常无需使用FACS或MACS去除饲养层细胞,因为经MMC处理的STO细胞无法增殖,并会在S-CM中逐渐退化。 - 将已去除异常细胞类型的PGCLC转移至基底膜基质包被的孔中,开始人类PGCLC的无饲养层长期培养。对于6孔板中的单个孔,建议接种1 × 10⁵个有活力的PGCLC。
注意:通常需要合并最多6个孔的hPGCLC,才能收集到1 × 10⁵个有活力(台盼蓝染色阴性)的PGCLC,并接种至单个孔中以提高接种密度。若收获的PGCLC数量不足1 × 10⁵,可使用较小规格的孔(如12孔板或24孔板)以获得相对较高的PGCLC密度。至首次传代时,大多数MMC-STO饲养层细胞已退化,无法通过传代过程存活。少量有活力的MMC-STO细胞可通过差异贴壁技术有效去除。即使有少量MMC-STO细胞污染至BME包被的孔中,也会在多次传代过程中从培养体系中消失。 - 人类PGCLC以高度分散的细胞群体形式生长,细胞之间无明显直接物理接触(图1)。若出现细胞间紧密连接的细胞簇(图2A),应使用步骤4.7所述方法进行传代。通常每周传代一次(1:4)即可满足需求。
注意:通常无需进行FACS富集人类PGCLC。然而,若在重复使用步骤4.11所述的差异贴壁技术后仍无法有效去除异常细胞,可进行数轮以CD38阳性细胞为标志的FACS富集42,43,以促进获得纯化的LTC-hPGCLC群体。在无饲养层条件下,PGCLC衍生的异常细胞在BME包被培养皿中生长的示例如图3所示。维持相对较高的PGCLC培养密度对于降低产生非目标细胞类型的风险至关重要。- 按照先前描述的方法制备BME包被的培养皿42,43。将BME在冰箱或冷室中置于冰上过夜解冻。切勿在室温下或使用温水浴解冻 冷冻的BME。
- 在冰上将BME(约200 µL;每批次分装体积由生产商确定并标注于瓶身标签)分装至无菌且预冷的低吸附离心管或细胞冻存管中。分装过程中保持BME处于冰上低温状态,以防凝固。分装后储存于-80 °C。
- 取一份BME分装液,用25 mL冰冻DMEM/F12稀释,均匀涂布于三个10 cm培养皿(约8 mL/皿)或四个6孔板(共24孔,每孔1 mL)。室温孵育至少1小时。包被完成后,可用透明封膜密封培养皿,并在室温下保存最多1周。
- 使用前立即吸除培养皿中的液体。包被后的培养皿无需洗涤。
- 在BME上维持相对较高的LTC-PGCLC培养密度,以抑制非目标细胞类型的出现。建议在细胞汇合度超过25%时进行传代。每两天更换一半培养基(每孔1.5 mL),加入新鲜补充了0.1 mM 2-巯基乙醇、50 µg/mL抗坏血酸和100 ng/mL人重组SCF的温热S-CM。
注意:以较低密度接种PGCLC会增加产生非目标细胞的风险。由于人类PGCLC的群体倍增时间约为4.5天41,常规每周传代通常足以维持长期培养。ROCK抑制剂(Y-27632)仅在传代后添加,以提高PGCLC的存活率。 - 避免扰动PGCLC,以免因培养基流动过强导致其从饲养层上脱落。
注意:由于人类PGCLC表达端粒酶,其增殖过程中不会出现明显的衰老迹象,如端粒缩短或衰老相关β-半乳糖苷酶的表达41。 - 当人类PGCLC实现稳定增殖且未产生大量非目标细胞类型时,应通过标志基因的表达谱分析其PGC样特性。
注意:建议采用适用于单细胞分析的技术(如免疫荧光、FACS或单细胞RNA测序)评估可能存在的非目标细胞污染。若上述分析结果支持PGCLC具有PGC样特性,则确认LTC-hPGCLC培养体系已成功建立。 - 将LTC-PGCLC以1 × 10⁶ 个细胞/mL的密度冻存于细胞冻存液中(每支冻存管)。以起始10,000个人类PGCLC为材料,6周内可获得约1 × 106个PGCLC。将装有冻存管的纸盒或塑料盒放入密封性良好的泡沫箱中,于-80 °C冰箱中过夜缓慢冷冻,随后将冻存管转移至-80 °C冰箱或液氮罐中长期保存。
- 从冻存细胞管中启动培养时,请按以下步骤操作:
- 将冻存管在37 °C水浴中快速解冻,手动轻轻摇动,保持管底浸入水中。当管内物质解冻超过>80%时,用无尘纸或等效实验室用纸擦干管身,并用酒精棉片擦拭管盖周围。
- 将细胞转移至含预热(37 °C)PGCLC基础培养基的15 mL离心管中。若管内残留少量冻存细胞,可用PGCLC基础培养基通过吹打回收。
- 立即在室温下以300 × g离心5分钟,并弃去上清液。
- 用9 mL预热的S-CM重悬细胞沉淀,S-CM需新鲜补充0.1 mM 2-巯基乙醇、50 µg/mL抗坏血酸、100 ng/mL人重组SCF和10 µM Y-27632。使用1,000 µL移液枪头轻柔吹打使细胞悬浮。
- 将细胞悬液以每孔3 mL接种至3个BME包被的孔中以启动培养。轻轻垂直和水平摇动培养板,使细胞均匀分布。避免环形摇动,以免细胞聚集至孔中心。细胞从冻存状态复苏后的即时存活率通常高于80%。
结果
代表性结果——PGCLC 通常在接种后约 2 周内在 MMC-STO 饲养层上形成可见的细胞簇(图 1A-D)。大约需要 3–4 周时间,PGCLC 才能准备进入无饲养层培养。由于 PGCLC 具有强烈的细胞分裂活性,其在饲养层上形成细胞簇时,细胞间的相互作用较弱(图 1E,F)。常可观察到 PGCLC 从细胞簇中迁移出来(图 1F,红色箭头)。在无饲养层条件下,LTC-PGCLC 以分散的单细胞形式生长,即使细胞密度较高,也几乎不表现出细胞间黏附现象(图 3)。每个 LTC-PGCLC 均保持 freshly isolated 人 PGCLC 的原始形态,并表现出活跃的细胞分裂特征。当培养中出现偏离原始 PGC 样形态特征的细胞时(图 2),通过重复使用差异贴壁法富集 PGCLC 常可改善培养质量。若异常细胞持续存在,可偶尔采用流式细胞术(FACS)对 CD38 阳性细胞进行富集以提高 PGCLC 纯度。
先前的研究已将人类原始生殖细胞样细胞(PGCLC)鉴定为PRDM1阳性、TFAP2C阳性但SOX2阴性的细胞41。这些细胞也表达POU5F1,但其前体诱导多能干细胞(iPSC)同样表达这一多能性标志物41。强烈建议在扩增的人类PGCLC培养早期,利用基因可诱导标记、免疫荧光、流式细胞术(FACs)或单细胞RNA测序等方法,在单细胞水平上确认其产量和标志物表达谱。然而,在缺乏上述验证性分析的情况下,可通过标准的相差显微镜观察来便捷地评估有或无饲养层细胞存在时人类PGCLC的产量和质量,如图1、图2和图3所示。
在长期培养过程中,LTC-PGCLC 维持一个均一的细胞群体,其中包含一个活跃增殖的亚群,这一点已被早期的单细胞 RNA 测序数据证实41原始PGCLC的转录组谱总体上得以维持,但早期PGCLC标志物GATA2和GATA3的表达迅速丢失41人类iPSCs中的全基因组DNA甲基化水平约为73%,而在新生成的PGCLCs中下降至约64%41全球DNA甲基化水平在12周后进一步下降至约54%,在LTC-PGCLCs中达到该水平 体外 扩增41人类LTC-PGCLC的大多数转录组和表观遗传特征在转化为多能性胚胎生殖细胞时,会完全逆转回原始iPSC的状态,但有几个印记控制区域的等位基因特异性表观遗传标记在PGCLC中被擦除,且不会恢复41.
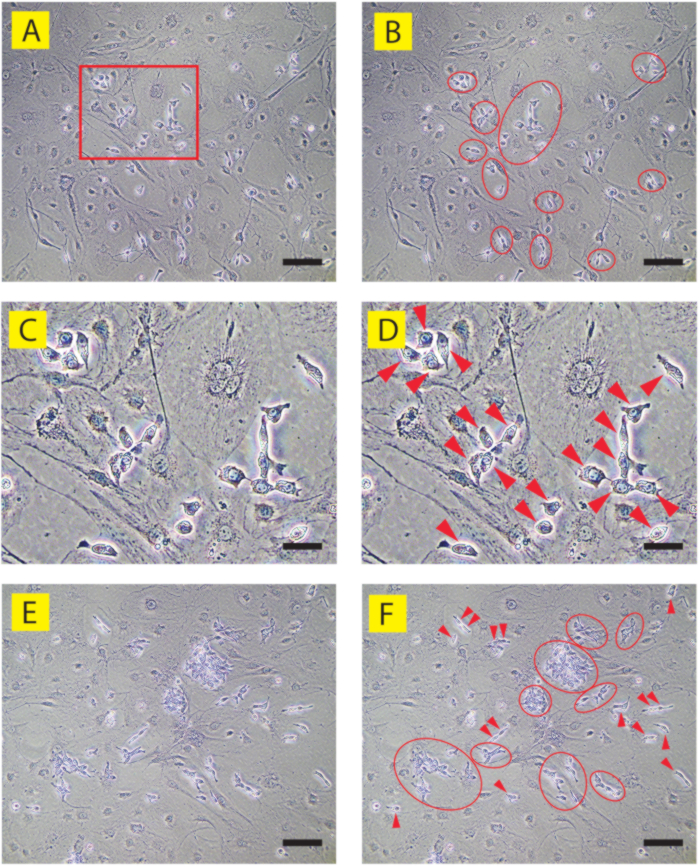
图1:在STO饲养层上正确形成的人类PGCLC的相差显微图像(人iPSC克隆9A13)。(A、C、E)分别在(B、D、F)中标注。(A-D)第6天培养。A图中红色矩形框所示区域在(C、D)中放大显示。大多数PGCLC表现为分散的细胞,常形成松散的细胞簇(红色椭圆)。单个PGCLC(红色箭头)彼此之间不形成紧密接触,在相差显微镜下可清晰识别为从退化、扁平且广泛铺展的STO饲养细胞中突出的细胞。(E, F)第15天培养。可清楚识别出多个PGCLC细胞簇(红色椭圆),但细胞间接触仍较松散。部分PGCLC位于细胞簇外,常以成对形式存在(红色箭头),反映出其在严重退化的饲养层上随机迁移的同时具有活跃的增殖能力。比例尺 = 50 µm(A, B, E, F)或15 µm(C, D)。 请点击此处查看该图的放大版本。
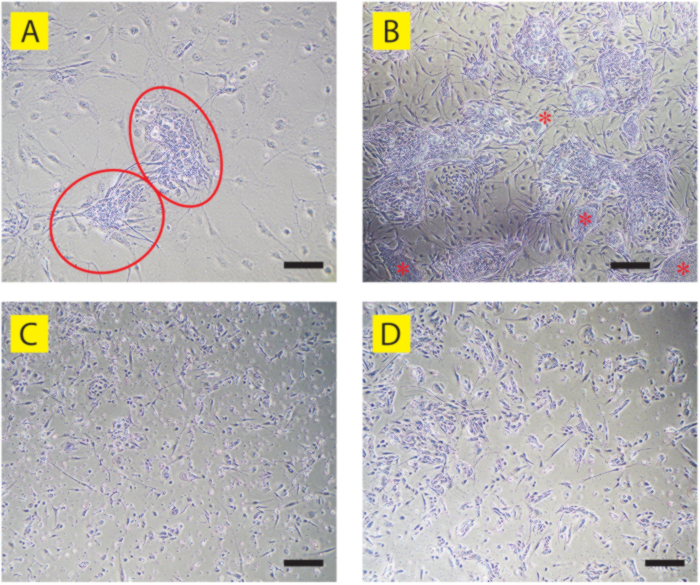
图 2:偏离原始生殖样细胞特征的人类 PGCLC 相差图像。(A)在 STO 饲养层上培养第 9 天的 9A13 PGCLC 培养物中出现两个异常的 PGCLC 簇(红色椭圆)。与正确的 PGCLC 簇(见图 1A-D)不同,这些细胞表现出强烈的细胞间接触,导致各个细胞的边界模糊不清。(B)(A)中所示的人类 PGCLC 培养物在第 18 天的图像。可见多个异常的 PGCLC 簇,其中一些呈现出致密的集落,类似于前体人 iPSC(红色星号)。请注意,簇间大多数细长的成纤维细胞样细胞也是源自 PGCLC 的异常细胞,而大多数 STO 饲养层细胞已退化并脱落。(C)在 BME 包被的无饲养层培养皿中培养的 LTC-hPGCLC(人 iPSC 克隆 B6),表现出大量细胞死亡和异常形态。(D)在 BME 包被的无饲养层培养皿中培养的 LTC-hPGCLC,大部分已转变为具有异常形态的细胞(人 iPSC 克隆 T548)。请将这些异常的 LTC-hPGCLC 与图 3B中所示的正常 LTC-hPGCLC 进行比较。比例尺 = 50 µm(A, B)或 100 µm(C, D)。 请点击此处查看此图的放大版本。
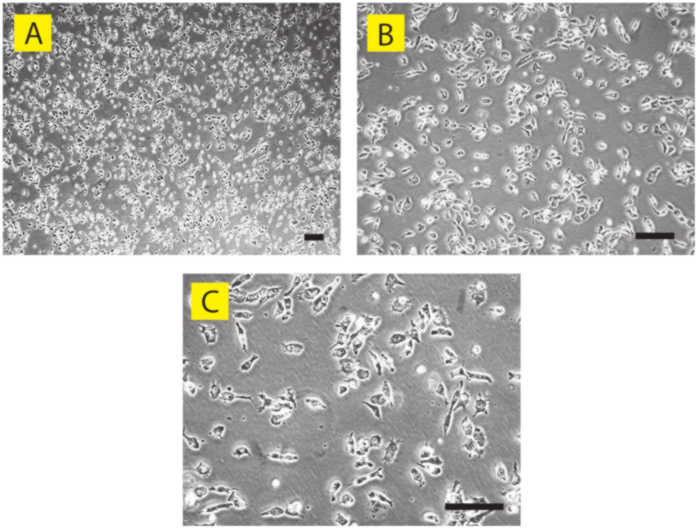
图 3:无饲养层培养条件下正确的人类PGCLC的相差显微图像(人iPSC克隆A4)。 在BME包被的培养皿上进行的LTC-PGCLC无饲养层培养第56天的结果,分别在(A)低倍、(B)中倍和(C)高倍放大下显示。尽管细胞密度相对较高,但每个单独的PGCLC之间并不形成紧密的细胞间接触,仅在最近完成细胞分裂的细胞间可见连接。由于活跃的胞质分裂,部分PGCLC呈现拉长形态,而其他细胞则呈圆形。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
| PGCLC 基础培养基 | |
| 成分 | 体积 |
| Glasgow’s MEM | 500 mL |
| Knockout 血清替代物 (KSR) | 75 mL |
| MEM NEAA (100X) | 6 mL |
| 丙酮酸钠 (100X) | 6 mL |
| 青霉素-链霉素 (100X) | 6 mL |
表1:PGCLC基础培养基。 PGCLC基础培养基的成分(593 mL)。
| STO 培养基 1 | |
| 成分 | 体积e |
| Dulbecco改良的Eagle培养基 | 445 mL |
| 胎牛血清 | 50 mL |
| 青霉素-链霉素(100倍浓缩液) | 5 mL |
表2:STO培养基1。 STO培养基1的成分(500 mL)。
| STO 培养基 2 | |
| 成分 | 体积 |
| Dulbecco’s MEM | 47 mL |
| 胎牛血清 | 2.5 mL |
| 青霉素-链霉素(100X) | 0.5 mL |
| FGF2 (200 µg/mL) | 2.5 µL |
表3:STO培养基2。 STO培养基2的成分,添加FGF2以促进STO细胞的增殖(50 mL)。
| MMC-STO 储存培养基 | |
| 成分 | 体积 |
| Dulbecco’s MEM | 42.5 mL |
| 胎牛血清 | 5 mL |
| 二甲基亚砜 | 2.5 mL |
表4:MMC-STO储存培养基。MMC-STO储存培养基的组成成分,用于制备经MMC处理的STO饲养细胞的冻存液(50 mL)。
讨论
本文所述的人类PGCLC维持方法相对简单,无需任何特定设备或非常规材料。 先前发表的人类PGCLC维持方法由于细胞显著偏离PGCLC样状态,需要频繁进行FACS分选38这些方法还需要一种非标准的饲养层细胞系(m220-5),该细胞系无法通过公开且国际可获取的资源库 readily 获得。39,40. 在培养基中添加胎牛血清(FCS)会因血清特定批次的性能差异而引入不确定性。相比之下,本文所介绍的方法可高效获得数百万个人类原始生殖细胞样细胞(PGCLCs),这些细胞在冻存后仍能保持较高的(> 90%)的存活率,且无需使用血清或其他动物来源的试剂。该方案需要标准的STO饲养层细胞系,该细胞系可从多个公共资源库中常规获得。该方法使得人源PGCLCs的处理如同常规细胞系一般,提供了前所未有的便利性。通过该方法实现的人源PGCLCs的无限供应,将拓展其在人类生殖细胞和/或配子的实验性制备、人类生殖细胞疾病(如不孕症)评估(包括相关干预尝试)等领域的应用范围。 体外 配子发生)或生殖细胞肿瘤,以及潜在生殖细胞毒性物质的毒理学评估。
该方法通过排除S-CM中胎牛血清(FCS)以最大限度减少由人原始生殖细胞样细胞(PGCLCs)产生的非预期细胞类型的出现41一些iPSC克隆在饲养层依赖阶段或之后倾向于产生非预期类型的细胞,其中部分克隆需要经过两到三轮PGCLC的FACS纯化。然而,一旦LTC-PGCLC培养达到超过50%的融合度,通常就不再需要进行FACS纯化。人类PGCLC的生长 体外 严格依赖于 SCF 的存在41如果LTC-PGCLCs的生长速度减慢,建议测试不同批次或不同厂家的SCF试剂。由于人类PGCLCs表达端粒酶,因此在长期扩增过程中不会发生衰老 体外41已成功用于建立来源于不同种族背景的男性和女性人类iPSCs的LTC-PGCLCs41成功应用本方法的实例包括男性人iPSC克隆A4和A5(高加索新生儿)、PGP1(高加索成人)以及9A13(日本成人),以及女性iPSC克隆ATCC-BXS0116(高加索人)和ATCC-BXS0115/ACS-1029(西班牙裔)。该方法及预测标志物的普遍适用性尚需在今后的研究中进一步验证。
人类PGCLC偶尔需要进行FACS纯化,这取决于前体iPSC克隆。某些iPSC克隆在初次分离PGCLC(即CD38阳性细胞)后从不需要FACS富集,而另一些PGCLC在依赖饲养层的阶段则需通过FACS对CD38阳性细胞进行多达三次的富集。经FACS富集的PGCLC被接种至新制备的MMC-STO饲养层细胞中。一旦PGCLC在不含饲养层的BME上开始稳定扩增,通常在每次传代时均无需再进行FACS富集。
目前尚无关于单个iPSC克隆在每次传代过程中维持PGC样特性的细胞比例与偏离为非预期细胞类型的细胞比例的详细数据。通常情况下,经过2至4周的反复传代培养后,LTC-hPGCLC培养体系趋于稳定。当人PGCLC倾向于产生非预期细胞类型时,差异贴附法可有效富集PGCLC,因为大多数非预期细胞类型比PGCLC更牢固地贴附于培养皿表面。若反复进行差异贴附仍无法有效富集PGCLC,则可通过流式细胞分选(FACS)对CD38阳性的人PGCLC进行富集,这通常可去除非预期细胞;此后,即可仅通过差异贴附法维持纯化的LTC-hPGCLC培养。采用Overeem等.描述的二维方法所生成的人PGCLC建立长期培养体系有时具有挑战性。然而,通过CRISPR敲除促凋亡基因而获得抗凋亡能力的相同人PGCLC则可轻松扩增为LTC-hPGCLC。该方法与不同个体来源的人iPSC及PGCLC之间的兼容性,尚需在今后的研究中进一步验证。
尽管经MMC处理的STO饲养层细胞最初可支持新分离的人类PGCLC的存活与增殖,但快速增殖的PGCLC会迅速扩展 体外 无需饲养层,只要使用STO条件培养基并用BME包被培养皿即可维持。本方法相较于其他方法的独特优势在于能够建立无需饲养层的长期培养人原始生殖样细胞(LTC-hPGCLCs)。在S-CM培养基中培养5-6天后,MMC-STO饲养层细胞即开始出现早期退化迹象。至第6-7天图1A- D),饲养层出现轻度损伤,到第14-15天时损伤更为明显(图1E,F在无饲养层细胞的情况下,新分离的人类PGCLCs存活率通常较低,这显然归因于其在细胞培养皿底部贴附能力较差。推测由MMC-STO细胞沉积的细胞外基质蛋白可在MMC-STO细胞退化后仍促进PGCLCs的贴附与存活。一旦人类PGCLCs数量足够多,在第14至15天形成可见的细胞簇后,PGCLCs自身分泌的细胞外基质可能已足以支持其进一步存活与增殖。支持这一假设的是,将新分离的人类PGCLCs以高密度(例如,每12孔板孔中接种100,000个细胞)接种至无饲养层且经BME包被的孔中,常可成功启动LTC-hPGCLC培养的扩增。另一方面,在人类PGCLC培养过程中,必须持续使用MMC-STO条件培养基,这凸显了MMC-STO细胞持续提供条件化支持的重要性。
在基底膜提取物(BME)上培养LTC-PGCLC时,保持相对较高的细胞密度至关重要,以抑制非预期细胞类型的出现。建议在PGCLC融合度超过25%时进行传代。以较低密度接种PGCLC会增加产生非预期细胞的风险。由于人PGCLC的群体倍增时间约为4.5天41,通常每周定期传代足以维持其长期培养。若大部分PGCLC偏离原始生殖细胞样特征,且差速贴附法或FACS不足以清除非预期细胞时,可考虑将MMC-STO饲养层细胞接种于BME包被的孔板而非明胶包被的孔板,并/或在接种PGCLC前将MMC-STO细胞延长培养至3至4天。
不同非目标细胞类型的形态学特征及标志物表达特性存在显著差异,尽管它们在标准相差显微镜下易于识别(图2)。呈现聚集性生长特征或扁平形态的细胞与原始生殖细胞样细胞(PGC-like)特征不符。在这些非目标细胞中,标准PGC标志物(如PRDM1或TFAP2C)的表达通常减弱,但目前尚无明确标准用于区分非目标细胞群体与典型的PGC样细胞群体,后者需通过免疫荧光染色、流式细胞术(FACS)或单细胞RNA测序加以确认。截至目前,LTC-hPGCLC扩增过程中出现的非PGC细胞类型的生物学身份及其意义仍不明确。
尽管本文所述方法使用了STO饲养层细胞,但SNL 76/7细胞也可用于条件培养基和饲养层的制备。某些PGCLC培养物能够在不经过依赖饲养层的培养阶段的情况下适应长期培养,尤其是在接种量较大(>100,000个细胞)时。然而,当起始培养细胞数量少于10,000个时,建立长期培养的PGCLC体系可能具有挑战性。尽管STO条件培养基的关键成分此前已有描述,但支持PGCLC长期扩增的成分尚未被确定44。
披露
作者无任何利益冲突需要披露。
致谢
本研究工作获得了美国国立卫生研究院(NIH)资助项目R01ES035401、R21ES034468、R21HD110839、R21DA059789和R21CA290650(资助对象:TS)的支持。TS还获得了约翰·邓普顿基金会(John Templeton Foundation)项目63299(项目负责人:John McCarrey,德克萨斯大学圣安东尼奥分校)的子课题资助。本研究的部分工作还得到了James Patrick Stowe基金(项目负责人:Philip Saylor,马萨诸塞州总医院)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 6孔细胞培养板 | Corning | 3506 | |
| Accutase | Innovative Cell Technologies | AT104 | 于-20 °C保存6个月。 |
| 细胞培养处理的10 cm塑料培养皿(P10培养皿) | Corning | 353003 | |
| 细胞培养处理的15 cm塑料培养皿(P15培养皿) | Corning | 353025 | |
| 冻存管 | Millipore-Sigma | CLS431417 | |
| CryoStor CS10 | STEMCELL Technologies | 7930 | 于4 °C保存。 |
| 二甲基亚砜 | Fisher Scientific | BP231-1 | 室温保存。细胞培养级。 |
| 杜氏磷酸盐缓冲液(无钙镁)(DPBS) | Gibco | 14190144 | 室温保存。细胞培养级。 |
| 杜氏最低必需培养基(Dulbecco's MEM) | Corning | 10-013-CM | 于4 °C保存。使用含4.5 g/L葡萄糖、1X L-谷氨酰胺和1X丙酮酸钠的培养基。 |
| 胎牛血清 | CPS Serum | FBS-500 | 于-20 °C保存12个月。 |
| 明胶 | STEMCELL Technologies | 7903 | 水配制成0.1%溶液。无菌。 |
| 格拉斯哥最低必需培养基(Glasgow's MEM) | Gibco | 11710-035 | 于4 °C保存。 |
| 人重组成纤维细胞生长因子2(FGF2) | PeproTech | 100-18B | 于-80 °C保存3个月。 |
| 人重组干细胞因子(SCF) | PeproTech | 300-07 | 按照生产商说明书用水溶解。于-80 °C保存3个月。 |
| 无血清替代物(Knockout Serum Replacement) | Gibco | 10828-028 | 于-20 °C保存6个月。 |
| Matrigel(适用于人胚胎干细胞) | Corning | 354277 | |
| 最低必需培养基非必需氨基酸(MEM NEAA) | Gibco | 11140-050 | 于4 °C保存。 |
| 丝裂霉素C(10 mM水溶液) | Millipore-Sigma | M5353 | 将丝裂霉素C(MMC)溶于水中并过滤除菌(0.22 mM孔径)。分装100 mL后于-20 °C保存6个月。解冻时,将紫色晶体置于热水浴(>60 °C)中融化为深紫色溶液。 |
| 青霉素-链霉素(100X) | Gibco | 15140-122 | 于4 °C保存。 |
| 塑料离心管(15 mL) | Corning | 352196 | |
| 塑料离心管(50 mL) | Corning | 352070 | |
| 丙酮酸钠(100X) | Gibco | 11360-070 | 于4 °C保存。 |
| STO小鼠胚胎成纤维细胞 | ATCC | CRL-1503 | |
| 台盼蓝(0.4%) | Fisher Scientific | T10282 | 室温保存。 |
| TrypLE Express | Gibco | 12604-013 | 室温保存。 |
| Y-27632(10 mM水溶液) | Tocris | 1254 | 将ROCK抑制剂Y-27362溶于水中至10 mM浓度,并过滤除菌(0.22 mM孔径)。分装100 mL后于-20 °C保存6个月。 |
参考文献
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
重印与许可
本文已发表
视频即将推出