本方案提供了一套多功能方法,用于优化重组蚕丝蛋白的溶解以进行纺丝;通过手工牵伸测试可纺性;利用自动化湿法纺丝制备长而连续的纤维;并对纤维的形貌、分子取向、力学性能以及纤维中或纤维内的蛋白质二级结构含量进行比较评估。
方法文章
优化与评估手工绘制与湿法纺丝在重组蜘蛛丝纤维生产中的应用
* These authors contributed equally
本文内容
勘误通知
Important: There has been an erratum issued for this article. View Erratum Notice
摘要
摘要
蜘蛛丝以其优异的力学性能而闻名,具有高强度、高延展性,或两者兼备,从而表现出高韧性。典型的雌性圆网蛛可产生七种不同类型的丝,每种丝通常由特定类型的蛋白质纺成,并在力学性能上针对不同的生存功能进行特化。重组蜘蛛丝的生产为获取这些材料提供了一条有前景的途径,不仅规避了获取大量天然丝所面临的困难,还能够实现蛋白质的定制化,例如通过定点突变或融合蛋白构建等方式。
在本方案中,我们介绍了一种评估蛋白质是否适用于手工牵丝和湿法纺丝技术的方法。首先从经过适当纯化的冻干蛋白质粉末开始,详细阐述了优化初始溶解态蛋白质以获得高浓度“纺丝液”的方法。接着,比较了手工牵丝与湿法纺丝两种方法,并讨论了在纺丝过程中通过后拉伸调控纤维性能的技术。随后,详细描述了对所得丝纤维进行表征的典型工作流程,以判断哪些纺丝条件最有可能取得理想结果,包括:利用光学显微镜评估纤维直径及其均匀性;采用偏振光显微镜估算纤维内部(超)分子排列的程度;通过拉伸测试评估纤维的强度、延展性、杨氏模量和韧性;以及使用傅里叶变换红外(FTIR)显微光谱技术分析纤维中蛋白质的二级结构形成情况。
该方案已证明适用于多种不同的重组蜘蛛丝蛋白,这些蛋白基于包裹丝(aciniform silk)的重复和非重复结构域、梨状丝(pyriform silk)以及包含包裹丝、梨状丝和/或大壶状腺丝(牵引丝,dragline silk)的融合蛋白。通过突出显示多个可调整条件和参数的步骤,本方案具有更广泛的适用性,可根据不同蛋白的特性及所需功能结果进行优化。
引言
蜘蛛会为多种特定任务产生丝,包括结网、捕食和保护卵1。蜘蛛丝具有卓越的力学性能,优于大多数已知的天然和合成材料2,这促使人们大力开展研究,致力于开发经过工程化改造和性能增强的蜘蛛丝材料,以用于各种工业和生物医学应用。蛛丝蛋白(spidroin)是构成蜘蛛丝的蛋白质,由一个相对较大且重复的结构域组成,其两端为非重复的N端和C端结构域3,某些类型丝的独特力学性能已被证实与重复结构域内短序列基序的重复有关4,5,6。与 commercially 养殖的家蚕(Bombyx mori)不同,家蚕能以稳定蚕茧形式大量产丝,适合收获;而蜘蛛天生具有同类相食性和领地性,产丝量有限,因此难以进行农业化生产和收集7。鉴于这些限制,重组蜘蛛丝的生产技术已被开发为一种更可行且可持续的替代方案,可可控地获得足量蜘蛛丝用于实际应用。
重组蜘蛛丝的生产需要选择合适的宿主以进行蛋白表达。蜘蛛丝已在多种宿主系统中实现表达,包括细菌8,9、酵母10,11、昆虫细胞12、植物13,14以及哺乳动物细胞15,16,其中大肠杆菌(Escherichia coli)是最常用的宿主系统。蛛丝蛋白(spidroins)的高分子量(可高达700 kDa7)为全长结构的表达带来了重大挑战。为了获得与天然蜘蛛丝性能相当或更优的重组蜘蛛丝,主要策略是表达截短型变体,例如仅包含有限数量重复单元的构建体(可含或不含非重复结构域)、由不同类型丝蛋白组合而成的嵌合体,以及与非丝蛋白融合的杂合丝蛋白。例如,重组主要壶腹腺丝蛋白(284.9 kDa)已在代谢工程改造的大肠杆菌(E. coli)中成功表达,所得丝纤维表现出与天然主要壶腹腺丝相当的力学性能9。此外,一种由两段梨状腺丝蛋白重复单元和两段卵形腺丝蛋白重复单元组成的工程化丝纤维,其延展性优于任一组成的梨状腺或卵形腺丝,且与天然鞭状腺丝的延展性相当17。
重组蛋白的生产还能够简便地将功能性肽段或蛋白质片段整合到丝蛋白中,从而制备出具有特定应用定制性能的生物材料。例如,将RGD细胞结合基序通过基因和化学方法与源自主要壶腹腺丝蛋白(major ampullate spidroins)的基因工程丝蛋白融合,所得薄膜显著增强了成纤维细胞的黏附和增殖能力18。在另一项研究中,一种杂合丝蛋白结构被构建,其包含神经生长因子-β(NGF)结合基序,并与一种嵌合蛋白融合而成,该嵌合蛋白由两段壶腹腺丝蛋白(aciniform spidroin)重复单元和主要壶腹腺丝蛋白的C端结构域组成,实验证明该结构可支持类神经元细胞的生长与分化19。
在成功表达并纯化重组丝蛋白后,可根据预期应用将其加工成多种形态,如水凝胶、薄膜、纤维、纳米颗粒、泡沫和海绵等。20,21为了实现人工蚕丝纤维的生产,研究人员已开发出多种仿生纺丝方法,这些方法模仿了蜘蛛天然纤维纺丝过程中的某些高度复杂且严格调控的环节。在天然大壶状腺丝中,蛛丝蛋白由大壶状腺的上皮细胞合成,并以高浓度(最高达50% (w/v))的可溶状态储存在腺腔内。22,形成水性纺丝原液。当纺丝原液流经纺丝导管时,由于导管逐渐变窄以及纤维牵引过程产生的剪切力,原液的pH值、离子浓度、含水量均发生变化,从而诱导液态丝蛋白转变为固态纤维23,24因此,确定一种合适的溶剂,能够将重组丝蛋白在高浓度下溶解或悬浮以形成纺丝液,是人工纺丝工艺中的关键第一步。
已采用多种溶剂来配制丝蛋白纺丝原液,研究表明溶剂的选择会影响纤维的形成及其力学性能25,26。因此,为优化所得纤维的特性,必须慎重选择纺丝原液所用溶剂。纺丝原液可使用有机或水性溶剂配制,例如1,1,1,3,3,3-六氟异丙醇(HFIP)27、六氟丙酮(HFA)28、三氟乙酸(TFA)与2,2,2-三氟乙醇(TFE)的混合物26、甲酸29以及磷酸钠/Tris缓冲液30。由于蛋白质溶解度通常受pH值、离子强度和浓度等因素影响,确定合适的纺丝原液溶剂通常需要系统评估多种溶剂,优化pH值和蛋白质浓度,并在某些情况下使用溶剂-水混合体系,以确定最佳的纺丝原液条件。此外,在纺丝过程之前评估纺丝原液的黏度是一个重要参数,因为黏度过高的原液可能在纺丝过程中阻碍流体流动,而黏度不足的原液通常不适合纤维形成31,32。需要注意的是,剧烈的纺丝原液条件在长期作用下可能改变蛋白质结构;因此,开发环境友好的纺丝原液溶剂仍是当前活跃的研究领域。
手绘法和湿法纺丝是重组蚕丝纤维纺丝的两种常用方法。每种方法所制备纤维的机械性能在很大程度上既取决于纺丝条件本身,也依赖于纺丝后的加工处理。手绘法又称拉伸纺丝,是一种简单的纤维制备方法,通常使用移液枪头、镊子或钳子从纯化蛋白溶液中直接拉出纤维,随后进行空气干燥和表征33,34,35,36,37。尽管手绘法为快速筛选多种蚕丝纤维成丝条件并初步分类所得纤维的力学行为提供了优良手段,但该技术难以扩展用于制备长尺寸(即数米以上)的连续纤维。作为替代方案,我们采用湿法纺丝,该方法将纺丝液以恒定速度连续挤出至凝固浴中,凝固浴通常由水与乙醇或甲醇组成的水溶液或有机溶剂构成9,15,31,38,39,40。纺丝液进入凝固浴后迅速发生蛋白质脱溶剂化,从而形成连续纤维24。随后,纤维以恒定速度从凝固浴中牵引而出,牵引速度可与挤出速率匹配以获得初生纤维(AS),或在纺丝后进一步拉伸以获得后拉伸纤维(PS),后者通常具有更优的机械性能。后纺拉伸通常涉及将纤维在空气、溶剂中或溶剂浸渍后拉伸至原始长度的2–8倍,各个参数均会影响纤维特定的机械性能15,17,31,38。
尽管本实验方案主要关注手工牵拉和湿法纺丝方法,但将这些方法置于更广泛的背景下进行考量非常重要。已有文献报道,通过电纺丝技术可在水相和有机相条件下对重组蜘蛛丝蛋白进行纺丝,从而制备出纤维膜、取向纤维和纱线,所得纤维直径通常处于纳米尺度41。这种方法可获得纳米级纤维的优势,但如果需要微米级纤维,则可能面临挑战,通常还需进行纺丝后处理以诱导形成β-折叠结构,从而提升材料的力学性能和耐水性。通过有机溶剂干法纺丝,已成功获得长度达数米、宽度和厚度均为微米级的重组蜘蛛丝带状纤维42,最近的研究表明,在纺丝液阶段引入金属离子可改善纤维的力学性能43。基于微流控技术的纺丝方法44,包括近期将3D打印技术与模拟天然纺丝器结构设计的微针喷丝头相结合的新方法45,适用于高可控性的重组丝蛋白纤维纺制。尽管已有多种适用于丝蛋白(或类丝蛋白)纤维制备的方法被报道,本实验方案仍详细描述了手工牵拉与湿法纺丝制备重组蜘蛛丝纤维的具体步骤,因为这些方法在我们实验室中已被证实适用于多种不同类型的重组丝蛋白,并为生物材料的开发与比较评估提供了切实可行的起点。
纤维纺丝与收集完成后,通常结合使用光学、力学和光谱技术对纺出纤维的性能进行表征。每种方法均可提供有关纤维形成过程及其与材料性能之间关联的关键信息。本文重点介绍其中一部分方法,需指出的是,尚有其他多种方法也能提供关于丝纤维性能与特性的关键数据。光学显微镜用于评估纤维形态,可比较在相同或不同条件下纺制的纤维直径17,31,38,46。该技术还对于在后续表征前识别并剔除存在缺陷或异常的纤维段至关重要。此外,可采用偏振光显微镜评估纤维内分子排列的取向程度,因为更高的取向度通常与更优异的力学性能相关17,26,47。力学性能表征通过拉伸测试进行,测量应力-应变曲线,并用于量化拉伸强度、延展性、杨氏模量和韧性等参数,从而为评估纤维在结构材料或生物医学应用中的适用性提供关键信息17,33,48。本文涵盖的最后一种技术是傅里叶变换红外(FTIR)显微光谱法,用于研究蛋白质二级结构,特别是β-折叠的形成程度,因为该结构对纤维的稳定性和力学强度具有关键作用17,46,49。综合而言,这些技术可全面揭示重组表达丝纤维的形貌、结构及力学行为。
方案
本方案中,我们假设起始材料为冻干的丝蛋白粉末,这在我们的工作中通常是一种重组蜘蛛丝蛋白。方案的总体流程如图1所示,以下将详细说明五个步骤:(1)纺丝液的制备与优化;(2)丝纤维的手工牵伸或湿法纺丝;(3)通过光学显微镜评估纤维直径与形貌;(4)通过拉伸试验进行力学性能评估;(5)通过傅里叶变换红外光谱显微技术(FTIR)评估二级结构。
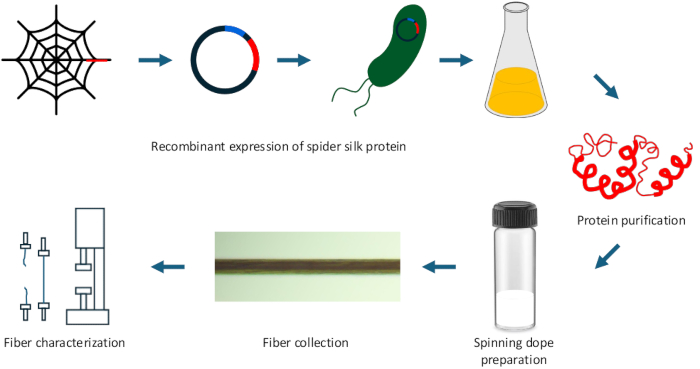
图1:重组蜘蛛丝蛋白纤维制备、收集与表征实验方案中关键步骤的示意图。 请点击此处查看该图的放大版本。
1. 纺丝液的制备与优化
注意:为优化纤维纺丝液,可尝试将不同浓度的重组蜘蛛丝蛋白溶于多种溶剂中以制备纺丝液(表 1)。只有能够完全溶解蛋白、且所得纺丝液澄清无沉淀的溶剂,方可用于后续纤维纺丝尝试。
- 溶剂的制备
- 配制 8:1:1 TFA/TFE/H2O 溶液时,在通风橱内取一个玻璃试管,加入 800 µL TFA、100 µL TFE 和 100 µL 一级超纯水,充分混合所有组分。盖紧试管盖,并用封口膜包裹,以防止挥发性组分蒸发。
注意:纤维纺丝前必须现配新鲜溶液。
警告:操作 TFA 和 TFE 时需格外小心,TFA 具有强腐蚀性和高挥发性,TFE 易燃且有毒。应穿戴适当的个人防护装备(PPE),包括手套、实验服和护目镜,以避免皮肤接触和吸入风险。 - 配制 3:1:1 TFA/TFE/H2O 溶液时,在通风橱内向玻璃试管中加入 300 µL TFA、100 µL TFE 和 100 µL 一级超纯水,并混合均匀。盖紧试管盖,并用封口膜覆盖,以尽量减少挥发性组分的蒸发。
注意:纤维纺丝前必须现配新鲜溶液。 - 配制 7:3 HFIP/H2O 溶液时,将 700 µL 1,1,1,3,3,3-六氟异丙醇(HFIP)与 300 µL 一级超纯水混合,得到 1 mL 溶液。根据需要现配新鲜溶液。
警告:HFIP 应在通风橱内操作,避免吸入或皮肤接触。 - 配制 50 mM 磷酸钾缓冲液(pH 7.5)时,取 800 mL 去离子水置于烧杯中,加入 1.199 g 磷酸二氢钾(KH2PO4,分子量 136.09 g/mol)和 7.173 g 磷酸氢二钾(K2HPO4,分子量 174.18 g/mol),充分溶解并混合。用 NaOH 或 HCl 调节溶液 pH,再用去离子水定容至 1 L,室温保存。
- 配制 10 mM Tris-Cl 缓冲液(pH 8.0)时,将 1.21 g Tris 盐酸盐(分子量 157.60 g/mol)溶于 800 mL 去离子水中。用 NaOH 调节 pH,再用去离子水定容至 1 L。溶液室温保存。
- 配制 20 mM 醋酸钠缓冲液(pH 5.0)时,向 450 mL 去离子水中加入 0.55 g 醋酸钠(分子量 82.03 g/mol)和 0.02 M(6 mL)冰醋酸。用去离子水定容至 500 mL,室温保存。
- 配制 1 M 柠檬酸磷酸盐缓冲液(pH 7.0)时,将 11.69 g 磷酸氢二钠(Na2HPO4,分子量 141.96 g/mol)和 1.85 g 柠檬酸(分子量 192.12 g/mol)溶于 400 mL 去离子水中。用 HCl 或 NaOH 调节溶液 pH,再用去离子水定容至 500 mL。
- 配制 98% 甲酸-CaCl2 溶液时,将 98 mL 甲酸与 2 mL 去离子水混合,稀释为 98% 甲酸溶液,总体积为 100 mL。然后向 100 mL 98% 甲酸溶液中加入 4 g CaCl2,配制成 4% w/v 的甲酸-CaCl2 溶液。溶液室温保存。
注意:参见 表 1。只有能够溶解蛋白并形成无沉淀、澄清的纺丝原液的溶剂,才可用于纤维纺丝尝试。
- 配制 8:1:1 TFA/TFE/H2O 溶液时,在通风橱内取一个玻璃试管,加入 800 µL TFA、100 µL TFE 和 100 µL 一级超纯水,充分混合所有组分。盖紧试管盖,并用封口膜包裹,以防止挥发性组分蒸发。
- 纤维纺丝原液的制备
- 根据所需浓度称取适量冻干的蜘蛛丝蛋白(例如,100 µL 溶剂中配制 10% w/v 溶液需 10 mg 蛋白),并加入相应体积的溶剂(例如,10% w/v 浓度需 100 µL 溶剂)。
- 涡旋混合,直至蛋白粉末完全溶解于溶剂中。
- 由于蜘蛛丝蛋白在不同溶剂和蛋白类型中的溶解度存在差异,建议从低蛋白浓度(10% w/v)开始,根据需要逐步提高浓度(25–30% w/v)。
- 蛋白完全溶解后,定性评估纺丝原液的黏度。若原液黏度不足,可逐步提高蛋白浓度,直至获得澄清且黏稠的溶液。以水作为参考标准。
| 溶剂 | 蛋白质浓度(% - w/v) | 参考文献 |
| 8:1:1 TFA/TFE/H2O | 10 – 25 | 19 |
| 3:1:1 TFA/TFE/H2O | 10 – 30 | 26 |
| 7:3 HFIP/H2O | 15 – 30 | 31 |
| 50 mM potassium phosphate buffer (pH 7.5) | 10 – 25 | 50 |
| 10 mM Tris-Cl buffer (pH 8.0) | 10 – 20 | 34 |
| 20 mM Na-acetate buffer (pH 5.0) | 10 – 25 | 49 |
| 1 M citrate phosphate buffer (pH 7.0) | 10 – 25 | 51 |
| 98% formic acid – CaCl2 | 20 – 25 | 52 |
表1: 制备纤维纺丝液所推荐的溶剂和蛋白质浓度。
2. 纤维纺丝与收集
注:手绘示意图参见图2,下文所述各种湿法纺丝装置的配置参见图3。
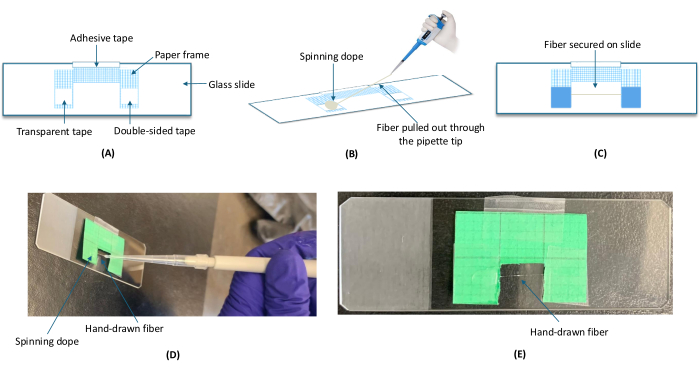
图2:蜘蛛丝纤维的手工牵拉。(A)制备一个C形纸框,并使用透明胶带将其左侧固定在载玻片上,右侧使用双面胶带,以便从左向右牵拉纤维。(B)将一滴纺丝液滴加在透明胶带上,使用塑料移液枪头从C形框开口处将单根纤维从左侧手工牵拉至右侧的双面胶带上。(C)使用左右两侧的胶带将纤维固定在载玻片上的纸框上。(D, E)代表性示例展示:(D)将有效溶解于纺丝液中的重组蜘蛛丝蛋白进行手工牵拉的过程,以及(E)纤维在用胶带固定前的状态。请点击此处查看该图的放大版本。
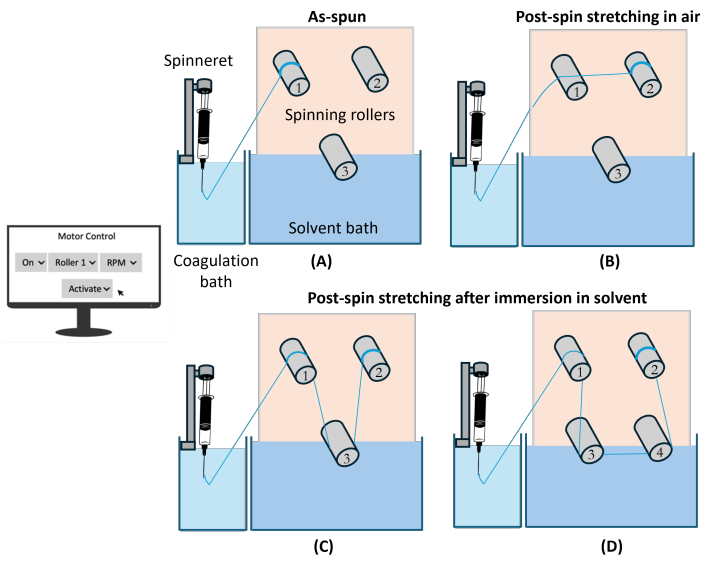
图3:蜘蛛丝纤维的湿法纺丝。在所有情况下,纺丝液被装入玻璃密封注射器中,并通过注射泵以恒定速率经金属钝端针头(即喷丝头)挤出至凝固浴(例如95%乙醇)中。(A) 初生纤维被收集到由计算机控制旋转的导辊1上,其转速与挤出速率相匹配。(B) 通过将纤维引导经过导辊1并收集到导辊2上实现纺丝后在空气中的拉伸,导辊2的转速为导辊1的若干倍(例如,2倍速对应2倍拉伸比)。类似地,可通过以下方式制备纤维:(C) 在溶剂浸渍后(例如40%乙醇、水等,根据特定丝蛋白选择合适溶剂),将纤维从导辊1引导至导辊3(浸没于溶剂浴中,且转速与导辊1相同),再引导至导辊2(转速为导辊1和导辊3的若干倍);或(D) 在溶剂中进行拉伸,将纤维从导辊1引导至导辊3(浸没于溶剂浴中,转速与导辊1相同),再引导至导辊4(同样浸没于溶剂中,转速为导辊1和导辊3的若干倍),最后收集到导辊2上(转速与导辊4匹配)。该模块化设计意味着可方便地测试多种纤维纺丝条件的组合,远不限于此处示意图中所示的四种情况。请点击此处查看该图的放大版本。
- 手绘
- 制备一个带有1 cm × 0.5 cm(长×宽)窗口的C形纸框,将其放置在载玻片上图2)。用胶带将纸框的上部固定在载玻片上。在纸框的一侧臂上贴上透明胶带,以形成用于载药溶液沉积的疏水表面,而在另一侧臂上贴上双面胶带以固定纤维。
- 加入10-20 µL 将纺丝液溶液在室温(22 ± 2 °C).
- 浸入一个 200 µL 用塑料移液枪头插入纺丝溶液液滴中,以恒定速度(约6 mm/s)垂直向上匀速抽出,使纤维从溶液中被拉出。
- 将手工拉制的光纤穿过框架窗口,并粘附到双面胶带上。在室温下将光纤自然晾干,然后用额外的胶带固定光纤的两端。
- 聚焦于跨越纸架的纤维部分,用于后续表征。
- 湿法纺丝
- 构建一台湿法纺丝装置,此处详述的设备相较于早期版本具有更优的电机控制能力31,38.
- 制作一块刚性金属安装板,垂直固定,并加工成合适的结构,用于安装一组步进电机(参见 图3每个电机安装座需要钻孔,以便在安装板背面牢固地用螺栓固定步进电机(即四个位置适当且尺寸合适的孔),并预留第五个孔,以便电机轴穿过。
- 选择具有双极性的步进电机 1.8° 步进,保持转矩 45 N∙cm,轴长 24 mm,直径 5 mm,带 15 mm 长的“D”形切口,本体长度 39 mm,额定电流 1.50 A,相电阻 2.3 Ω
- 开发一种系统,用于控制每个电机的转速和旋转方向,类似于此前用于多种蚕丝纤维类型的系统17,53,54,该系统采用 Python 编写的图形用户界面(GUI),用于连接至多个步进电机控制器的树莓派(Raspberry Pi),具体细节见 https://github.com/raineylab/MotorController.git。
- 用于纺丝时,将每台在特定纺丝配置中使用的电机连接至一个加工好的金属圆柱体(直径 6 cm,长度 8 cm,适用于位置 1 和 2 的电机) 图3,两端直径为9 cm、向中心逐渐变细至直径6 cm的带槽滚轮,位于位置3和4处,长度为7 cm 图3;例如, 图4 用于样品配置。
- 对于纺丝喷头(图3),使用连接在注射泵上的0.25 mL玻璃注射器,配永久固定钝端金属针头(内径0.127 mm),以可控速率将纺丝液挤入凝固浴中。
- 将纺丝液在 20,000-21,000 × g 室温下静置30分钟,收集上清液用于纤维纺丝。
注意:去除残留的颗粒物,以防止湿法纺丝过程中挤出针头堵塞。 - 加入50-80 µL 将纺丝液注入用作喷丝头的注射器中。
- 将注射器固定在注射泵上,并将挤出速率设置为 600 μL/h.
注意:针对特定的蛋白质纺丝液条件,调整并优化挤出速率,以实现纤维的形成。 - 配制凝固浴(95% 乙醇/5% 去离子水,v/v)。
- 将注射泵放置好,使装有铸膜液的注射器针头浸入凝固浴中。
- 将滚轮安装至纺丝装置,使用电机控制软件调节滚轮转速,并开启特定纺丝构型所需的电机。
注意:将滚轮1的旋转速率与挤出速率相匹配。挤出速率为 400 μL/h 或 600 μL/h 对应于滚轮1的6 rpm或9 rpm。如果施加后拉伸,则滚轮2-4中的一个或多个必须相应地设置为更快的转速。 - 启动注射泵,并使用镊子以以下方式之一引导在凝固浴中形成的纤维。
- 收集AS纤维时,将凝固浴中形成的纤维引导至第一辊筒(转速等于挤出速率)进行收集。
- 在空气中进行纺丝后拉伸时,将辊轮2的转速设置为辊轮1转速的倍数。将纤维从凝固浴中引出后,经过辊轮1但不绕其缠绕,直接导向并收卷至辊轮2上。
注:若后拉伸比为2倍,则辊轮2的转速需为辊轮1的两倍;3倍时则为三倍,依此类推。 - 为了在溶剂中浸渍后进行离心后拉伸,将溶剂浴中加入所需溶剂(例如去离子水;2:3 体积比的乙醇/水)2O;等),将纤维从凝固浴经导轮1(转速与挤出速率匹配),再经过溶剂浴中的导轮3(转速与导轮1相同),最后在空气中由导轮2收丝(导轮2的转速快于导轮1和导轮3)。
注意:滚筒2相对于滚筒1和3的旋转速率将决定纺丝后拉伸比,如步骤2.2.8.2所述。 - 在溶剂中进行离心后拉伸时,将溶剂浴中加入所需溶剂(例如去离子水;2:3 v/v 乙醇/H2O;等),将纤维从凝固浴引导至导辊1(转速与挤出速率匹配),再经过溶剂浴中的导辊3(转速与导辊1相同),随后经过溶剂浴中的导辊4(转速为导辊1和导辊3转速的倍数),最后在空气中由导辊2收卷纤维(转速与导辊2匹配)。
注意:滚轮2和4相对于滚轮1和3的旋转速率将决定纺丝后拉伸比,如步骤2.2.8.2所述。
在受控环境条件下收集纤维,以避免湿度和温度对纤维行为的影响。目标相对湿度为 ~28.2 ± 2.4%,温度为 ~28.0 ± 2.2 °C.
- 构建一台湿法纺丝装置,此处详述的设备相较于早期版本具有更优的电机控制能力31,38.
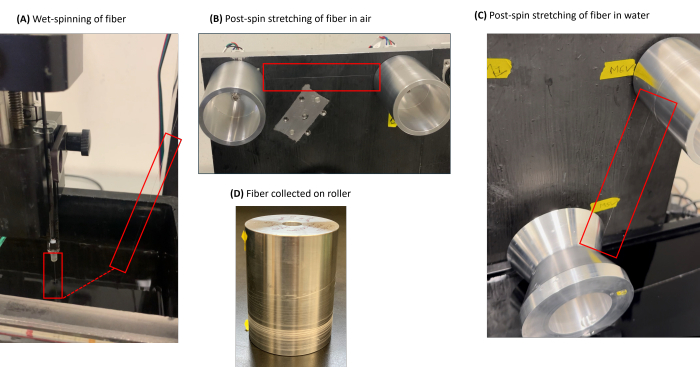
图4:蜘蛛丝纤维湿法纺丝的关键步骤。(A)纺丝液挤出至凝固浴中,随后收集纤维(左侧红色矩形突出显示用于挤出纺丝液的针头;右侧红色矩形表示湿法纺丝丝纤维的路径)。(B)纤维在空气中进行纺后拉伸的示意图(红色矩形用于引导视线)。(C)纤维浸入水中后进行纺后拉伸的示意图(红色矩形用于引导视线)。(D)在滚轮上连续收集的重组丝纤维(例如,红色箭头处卷绕的纤维)。请点击此处查看该图的放大版本。
3. 纤维的光学显微镜评估
- 纤维固定
- 从一块 3 × 2 cm 的矩形纸片上剪下一块 1 × 1 cm 的正方形,制成 C 形纸夹(图 5)。
- 使用胶带将 C 形纸夹固定在玻璃载玻片上。
- 在 C 形纸夹的 1 cm 间隙两侧各贴上一段双面胶带。
- 从收集用的滚轮上取下一束纤维,并剪取一段约 2 cm 长的纤维段。
注意:操作纤维时应避免施加过大的力,以防材料发生形变或其他性能改变。 - 将纤维段放置在双面胶带的上方,确保纤维的长轴方向与纸夹底边平行(图 5)。
- 在两侧双面胶带的上方用遮蔽胶带将纤维固定。
- 另用一段遮蔽胶带将纸夹底部牢固地固定在玻璃载玻片上,防止纤维在使用前发生移动。
- 将固定好的纤维存放在载玻片储存盒中,待用于成像和拉伸测试。
- 直径测定与缺陷评估
- 使用光学显微镜检查已固定的纤维。首先沿纤维全长筛查可见的缺陷,如缩颈、扭曲、鼓包或双纤维等。若发现任何缺陷,应将该纤维排除在力学测试之外。
- 对于无可见缺陷的纤维,在纤维长轴方向上选取三个位置拍摄显微图像,分别为中间位置及两端附近,放大倍数为 10×。
- 使用 ImageJ55 软件测量纤维直径:
- 在 ImageJ 中,进入 分析 菜单并选择 设置比例尺 (补充文件 1 - 补充图 S1)。根据显微镜的校准参数调整比例尺,并将测量单位设为微米(μm)(补充文件 1 - 补充图 S2)。
- 使用 直线工具,画一条垂直于纤维长轴的直线,从纤维一侧边缘延伸至另一侧边缘。
- 对每张显微图像,在纤维上不同位置测量六个区域的直径。
- 每次画线后,点击 分析 菜单中的 测量 ,以显示纤维直径(补充文件 1 - 补充图 S3)。
- 通过偏振光显微镜对分子取向进行定性评估
- 在完成光学显微镜下的直径测定与缺陷评估后,采用偏振光显微镜评估纤维内部的分子取向。
- 使用配备可旋转载物台、固定检偏器滑块和可旋转 90° 起偏器的倒置光学显微镜观察纤维。
- 将纤维放置成与入射平面偏振光方向成约 45° 角,以最大化双折射引起的亮度,从而增强分子结构的可见性。
- 在此条件下拍摄纤维图像,以评估其双折射现象。
注意:高双折射表明分子结构高度取向,而低或无双折射则表明结构更趋于无定形或分子随机排列。
- 在完成光学显微镜下的直径测定与缺陷评估后,采用偏振光显微镜评估纤维内部的分子取向。
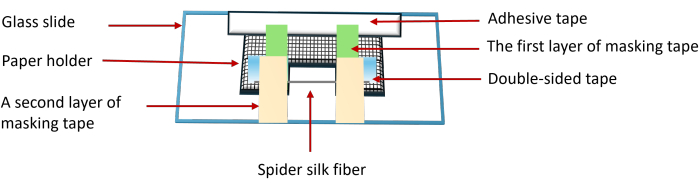
图5:利用C形纸夹持器和多层胶带将蜘蛛丝纤维固定在载玻片上,以便进行后续分析。 请点击此处查看该图的放大版本。
4. 拉伸测试
注意:一种适用于精确评估丝纤维的拉伸测试装置可相对低成本地自行制备25,56。简而言之,制作一对不锈钢夹具,用于牢固夹持被测C形框架中每根纤维的两端(例如,图6)。将其中一个夹具连接至放置在分析天平上的砝码,另一个夹具连接至注射泵。注射泵须设置为以恒定应变速率持续拉伸。分析天平必须与计算机连接,以便记录随时间变化的重量/质量数据。
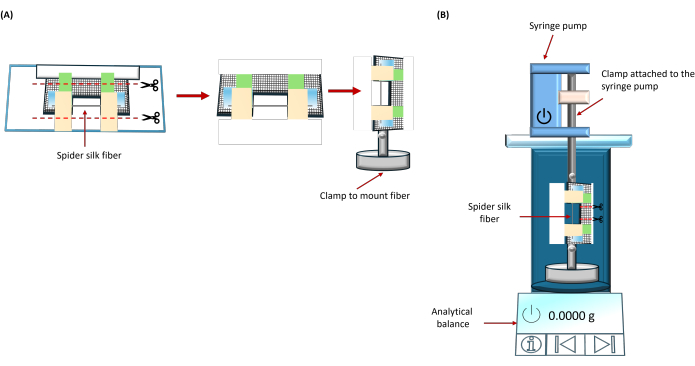
图6:拉伸测试制备步骤的示意图。(A)带有纤维的纸片夹具(配置参见图5)从载玻片上取下,并通过连接在重物上的夹子垂直固定。(B)将此带重物的夹具置于分析天平上,纸片夹具的上部固定在连接于注射泵中固定杆上的夹具上。在开始拉伸测试前,将纸片夹具从中部水平切断。请点击此处查看该图的高清版本。
- 应力-应变曲线数据采集
- 测量纤维直径后,使用自制装置对同一根纤维进行拉伸测试(图6)。
- 将固定纤维的C形纸框从载玻片上取下,并固定在连接重物的夹具上(图6A)。
- 将分析天平连接至数据记录/控制软件,并进入 Workbench 界面(补充文件1 - 补充图S4)。
- 在天平控制软件中点击 Start 按钮以设置实验。提示时输入实验名称(补充文件1 - 补充图S5)。
- 确保分析天平为空,然后将带有纤维的加重重物夹具放置其上。
- 将纸框顶部固定在连接注射泵的夹具上,并剪断纸框的一侧,使纤维可自由移动(图6B)。
注:确保两个夹具相互平行,且纤维在夹具中居中,标距长度为10 mm。 - 将天平归零以消除重物和夹具的质量,然后按下注射泵上的 Run 按钮,并在天平控制软件中点击 OK (补充文件1 - 补充图S6)。
- 当纤维断裂时,按下注射泵上的 Stop 按钮,并在天平控制软件中点击 Yes 按钮(补充文件1 - 补充图S7),以记录随时间变化的测量重量。
- 将数据传输至电子表格或其他合适的数据处理软件中进行处理。将重量-时间数据日志复制到剪贴板,并粘贴至提供的力学测试电子表格(补充文件2),或通过将数据导出为文本文件并以适当方式解析后导入。
- 测量纤维直径后,使用自制装置对同一根纤维进行拉伸测试(图6)。
- 应力-应变曲线数据处理
注:以下方案基于适用于 Microsoft Excel 的力学测试电子表格格式(补充文件2)。- 确保实验参数正确(第C列)。
- 将随时间变化的质量记录添加至电子表格(“Net mass”,即 第F列)。若在拉伸开始前已有质量记录,应删除这些值,并将数据整体上移;若在纤维断裂后仍有质量记录,则删除这些数据单元格。
- 通过递增1的方式自动填充 第E列 中的索引值,使索引总数与 第F列 中测量质量值的总数一致。
- 对“Net mass”进行重缩放,使其从0 g开始并在拉伸过程中递增:将每个净质量值减去初始净质量,再将差值乘以-1(第G列)。
- 通过将测量索引乘以注射泵的拉伸速率以及质量记录之间的时间间隔,计算每次测量时纤维长度的变化(第H列)。
- 通过将纤维长度变化除以原始长度,计算工程应变(第I列)。
注:该计算得到的工程应变单位为 mm/mm。若需转换为%,则将 第I列 的数值乘以100%。 - 将最大工程应变值记录为延展性(单元格T3)。
- 通过将质量从g转换为kg,再乘以标准重力加速度(9.81 m/s2),计算实现每次记录长度变化所需的力(单位:N;第J列)。
- 通过将特定伸长程度下测得的力除以纤维横截面积,计算工程应力(单位:Pa),再乘以10-6 转换为MPa(第K列)。
- 将观测到的最大应力记录为极限应力(单元格U3),将纤维断裂前记录的最后一个应力值记录为断裂应力(单元格V3)。
- 通过梯形法则计算应力-应变曲线下面积,以获得韧性:计算每次测量后曲线下方的面积(第L列),并将这些面积求和得到总韧性(单元格W3)。
- 通过使用 LINEST 函数确定应力-应变曲线初始线性区域的斜率,计算杨氏模量(单位:MPa)。将结果乘以103 转换为GPa(单元格X3)。
5. 傅里叶变换红外(FTIR)显微光谱法
- 通过将第二块载玻片粘贴到已为光学显微镜准备的载玻片底部,制备用于傅里叶变换红外光谱(FTIR)的样品。
- 光学成像与傅里叶变换红外光谱采集
- 用液氮填充探测器杜瓦瓶以冷却探测器。
- 打开FTIR仪器控制软件。
- 在 查看与收集 窗补充文件 1 - 补充图 S8)打开 采集 标签,设置 采集模式 到 ATR 和 检测器 冷却至(补充文件1 - 补充图S9).
- 将载玻片放入载玻片夹持器中,并将夹持器放置于载物台上。
- 将上部照明设为100,光圈和下部照明设为0。
- 使用物理操纵杆或软件中的数字操纵杆,将样品光学显微镜图像视野中心对准光纤,以调节视野中心位置和焦平面。
- 设置 采集模式 绘制补充文件 1 - 补充图 S8).
- 选择要成像和测量的区域 地图视图 - 区域工具. 单击并拖动光标,在显微图像预览中指定需要获取光谱的区域(补充文件1 - 补充图S8)。图像上的每个圆圈代表在该位置获取的一个光谱。如有需要,将光标悬停在指定的框边缘,然后点击并拖动至所需位置,以调整该框的边缘。通过在矩形框内点击并拖动,可移动整个框的位置。修改框的面积和数据点数量,具体数值如下 阶段、光圈和显示 (补充文件 1 - 补充图 S10).
- 右键单击显微照片预览并选择 捕获马赛克 保存图像(补充文件1 - 补充图S8).
- 通过单击来设置ATR压力 当前压力分布 下拉菜单。对于蛋白质纤维,使用2%压力(即最低的ATR压力)以尽量减少对纤维的损伤(补充文件 1 - 补充图 S8).
- 插入ATR FTIR探头。
- 点击 收集 按钮(补充文件 1 - 补充图 S8) 采集背景光谱,然后采集每个选定位置的光谱。数据采集完成后,结果将在新窗口中显示。
- 下游分析的数据准备
- 左键单击 在热图或显微图像上点击相应位置以查看在该位置获取的光谱(补充文件 1 - 补充图 S11).
- 右键单击 在待分析的光谱上选择 复制 (补充文件 1 - 补充图 S11).
- 右键单击 在 Windows 屏幕顶部的工具栏中选择 新窗口 (补充文件 1 - 补充图 S11).
- 点击 粘贴 新窗口打开后,点击屏幕顶部的按钮补充文件 1 - 补充图 S11).
- 采用相同的方法 复制 和 粘贴 任何其他需要分析的光谱均可导入此窗口。
- 通过按下突出显示一个或多个光谱 按住 Ctrl 键并单击 在每个所需谱图上,或通过在下拉菜单中高亮选择所需谱图。
- 点击 另存为… 并将文件保存为.spa格式,以便在光谱仪控制软件中分析数据,或保存为.csv格式,以便在其他软件包中分析数据(补充文件 1 - 补充图 S12).
- 使用仪器专用软件进行二阶导数分析
- 在仪器专用的谱图处理与分析软件包中打开待分析的谱图。
- 在%透光率和吸光度模式之间转换时使用 全选 (透光率转换为吸光度)或 Ctrl+T (吸光度转换为%透光率)
- 通过点击选择感兴趣区域 查看 | 显示限制 (或, Ctrl+D) (补充文件 1 - 补充图 S13A)。要查看酰胺 I 带(1,700-1,600 cm⁻¹)-1) 和酰胺II(1,600-1,500 cm⁻¹)-1)条带,具体来说,设置 开始 和 X轴终点范围 到相应的波数。如果分析多个光谱,请选择 应用于所有光谱. 点击 好的 (补充文件 1 - 补充图 S13B).
- 要绘制二阶导数图,请单击 过程 | 衍生物… 并选择 第二 从下拉菜单中(补充文件 1 - 补充图 S14A)。选择Norris导数,设定片段长度为5,片段间间隔为5(补充文件 1 - 补充图 S14B二阶导数光谱的极小值与原始吸收光谱中的组分峰位置一致。
- 如果光谱噪声过大而无法评估极小值,可通过点击来平滑光谱 过程>自动平滑 (补充文件1 - 补充图S15然后,计算二阶导数并找出极小值点。
- 利用参考表将二阶导数极小值处的波数与二级结构的特征谱带位置相对应(例如, 表 2)以深入了解蛋白质的二级结构。
- 使用特定仪器分析软件进行峰解卷积
- 将显示区域设置为步骤5.4.3中待去卷积的区域。仅此区域将进行去卷积。
- 使用以下方法之一对选定的光谱区域进行基线校正:
- 点击 流程 | 自动基线校正 (补充文件 1 - 补充图 S16);或
- 点击 流程 | 基线校正 (补充文件1 - 补充图S17A)然后选择 线性 从下拉菜单中选择,并通过点击并拖动两个点来指定用于解卷积的光谱区域的上下限,从而在位置光谱上定义需进行基线校正的光谱范围。接下来,选择 添加到窗口 在第二个下拉菜单中并点击 添加 按钮(补充文件 1 - 补充图 S17B).
- 选择基线校正后的光谱后,单击 分析 | 峰分辨… 打开 Peak Resolve 窗口(补充文件 1 - 补充图 S18).
- 使用屏幕左侧的选择栏选择需要分析的光谱和曲线。
- 选择高斯/洛伦兹混合函数 灵敏度 低和高设置 FWHH 2 的设定 寻找峰 选项卡,然后单击 寻找峰 按钮(补充文件 1 - 补充图 S19).
- 点击 峰 单击按钮以打开描述峰的表格。
- 如果选择的峰数量超过物理上合理的范围,请单击 删除峰 直到获得用于分析的正确峰数量为止(补充文件 1 - 补充图 S20)。例如,对于酰胺 I 区,文献中通常报道有 5-11 个峰(表2).
- 为确保拟合后所有峰均为正值,请单击 编辑峰 并将高度最小值设为 0。然后,单击 下一步 并依次对每个峰重复上述操作 好的 以关闭编辑窗口(补充文件 1 - 补充图 S21).
- 如果最终的去卷积结果中需要包含特定的波数,请点击 编辑峰 并固定峰中心至指定波数 数值框 通过选择 固定 或使用范围表示 低限 和 高限 盒子。点击 好的 将这些设置应用于给定的峰。
注意:此步骤中,最好使用在二阶导数分析期间获得的峰位,或来自傅里叶变换红外光谱二级结构参考表中的峰位,理想情况下应针对类似类型的蚕丝样品进行标注(例如, 表2).
- 点击 拟合峰 按钮(补充文件1 - 补充图S22).
- 如果峰拟合算法未能成功收敛,请单击 拟合峰 再次迭代以继续拟合峰。
- 点击 峰…… 单击按钮以获取所有拟合峰的位置、高度、半高全宽(FWHH)和峰面积信息。
- 这些峰可以通过单击复制到剪贴板 剪贴板 以便将其粘贴到其他窗口或文件中(补充文件 1 - 补充图 S23).
- 通过点击窗口选择下拉菜单中下一个目标窗口,将峰和谱图复制到另一个窗口 添加 按钮(补充文件 1 - 补充图 S24).
- 点击 全选 按钮并使用 文件 | 另存为 将峰和光谱保存为 .spa 和/或 .csv 文件(补充文件 1 - 补充图 S25).
- 利用参考表将每个组分峰与二级结构关联。某一特定二级结构对应的峰面积相对于所有指定峰总面积的比例,即为该蛋白质中具有该二级结构的比例。
- 使用第三方软件进行下游分析的数据准备
- 打开工作簿,并通过选择第三方光谱处理与分析软件加载光谱数据 数据 | 连接到文件 | 文本/CSV 菜单项 (补充文件 1 - 补充图 S26). 选择所需的文件 文件资源管理器 并单击 打开.
- 通过选中要绘制的数据列并选择相应选项来绘制谱图 图表 | 基础二维 | 折线图 菜单项 (补充文件1 - 补充图S27).
- 双击 x轴 并使用 量程 调整范围以适应酰胺 I 峰补充文件1 - 补充图S28).
- 如果数据噪声较大,可通过选择平滑曲线 分析 | 信号处理>平滑>打开对话框… 菜单项(补充文件1 - 补充图S29A).
- 设置 重新计算 设为自动选项, 方法 Savitzky-Golay 窗口要点 至 5, 边界条件 无 多项式阶数 至 2 (补充文件1 - 补充图S29B).
- 点击 好的 处理。
- 使用第三方软件进行二阶导数分析
- 选择 分析 | 数学 | 求导 | 打开对话框… 菜单项(补充文件1 - 补充图S30).
- 设置 重新计算 设为自动,设置 导数阶数 到 2,选择 绘制导数曲线 选项,并单击 好的 (补充文件 1 - 补充图 S31).
- 如果得到的二阶导数曲线噪声很大,则按照步骤5.7.1和5.7.2操作,选择 Savitzky-Golay 平滑 在 平滑 的标签 分化 对话。
- 与5.4.5节相同,将二阶导数极小值处的波数与二级结构相关联。
- 使用第三方软件进行峰解卷积
- 点击酰胺 I 吸收光谱图后,选择 分析 | 峰值与基线 | 峰值分析器 | 打开对话框… 菜单项补充文件 1 - 补充图 S32).
- 在 目标——拟合峰(Pro) 对话框中,设置 重新计算 设为自动,选择 拟合峰,然后单击 下一步. (补充文件1 - 补充图S33A).
- 在 基线模式 对话框中,设置 基线模式 参数设为直线并单击 下一步 (补充文件 1 - 补充图 S33B).
- 在 基线治疗 对话框中,选择 自动减去基线,点击 立即扣除 按钮,然后单击 下一步 (补充文件1 - 补充图S33C).
- 在 寻找峰 对话框,禁用 启用自动查找 并点击 添加.
- 双击包含待拟合峰的光谱图窗口。
- 根据二阶导数中观察到的极小值(步骤 5.7.4)或参考表格(例如 表2).
- 点击 完成 然后点击 下一步 (补充文件1 - 补充图S33D).
- 在 拟合峰(Pro) 对话框中,选择 根据当前拟合结果生成报告 并点击 适合,随后 完成 (补充文件1 - 补充图S33E).
- 评估 峰特性1 工作表中的标签,查看每个峰的中心位置、积分面积和半高宽(FWHM)补充文件1 - 补充图S34与步骤5.5.9相同,将每个组分峰与一种二级结构类型关联,并评估蛋白质结构中具有该二级结构的百分比。
| 波数范围 (cm-1) | 归属 |
| 1605−1615 | Tyr 侧链/聚集的 β-折叠 |
| 1616−1621 | 聚集的 β-折叠/分子内 β-折叠 [弱] |
| 1622−1627 | 分子间 β-折叠 [强] |
| 1628−1637 | 分子内 β-折叠 [强] |
| 1638−1646 | 无规卷曲/伸展链 |
| 1647−1655 | 无规卷曲 |
| 1656−1662 | α-螺旋 |
| 1663−1696 | 转角 |
| 1697-1703 | 分子间 β-折叠 [弱] |
表2:基于Hu等人的多项研究比较评估得出的家蚕(Bombyx mori)丝蛋白酰胺I区振动谱带归属57。
结果
理想的可纺流体溶液应为澄清、无沉淀且黏稠的溶液,表明蛋白质已完全溶解(图 7A)。相反,若溶解不完全,则会形成乳白色悬浮液或出现可见沉淀(图 7B、C)。蛋白质完全溶解所需时间因溶剂而异:某些溶剂(如 TFA/TFE/H2O 混合液)通常可在 30 分钟内完全溶解蛋白质,而其他溶剂(如 HFIP)则可能需要过夜搅拌并间歇性涡旋振荡。
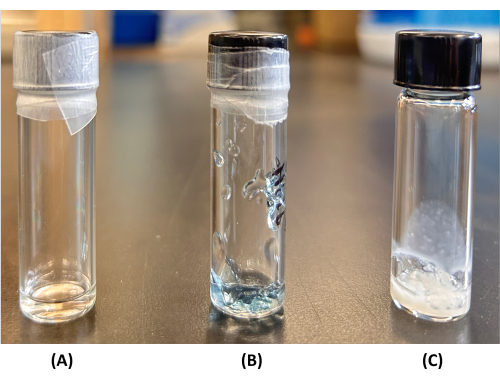
图7:纺丝液溶液的优化。(A)一种能够完全溶解蛋白质的溶剂可产生澄清且具有适当黏度、可用于纺丝的溶液。若选择非最优溶剂导致蛋白质部分溶解或悬浮,则可能形成(B)过度黏稠的状态,通常伴有可见沉淀,或(C)乳状悬浮液。请点击此处查看该图的高清版本。
图2E 展示了一根典型的徒手绘制的纤维,而 图4D 展示了一根卷绕的湿法纺丝纤维。在进行任何下游分析之前,光学显微镜检查对于评估纤维质量至关重要。图8 展示了适用于下游分析的重组丝纤维的代表性光学显微图像,这些纤维采用两种不同条件纺制(湿法纺丝样品配置见 图3)。通过光学显微镜观察(图8A)可以明显看出,这些纤维具有均匀的直径,并且在施加纺后牵伸处理后直径减小(即:未牵伸的初生纤维(AS)与在40%乙醇中以4倍比率进行纺后拉伸的纤维(4x-EtOH)相比)。偏光显微镜下(图8B)更高的双折射程度导致更强的对比度,这表明纺后牵伸工艺改善了纤维中分子的取向排列。最后需要指出的是,在部分被评估的纤维中很可能观察到缺陷,使得某些纤维片段不适合用于下游分析。两种此类缺陷示例见 图9。
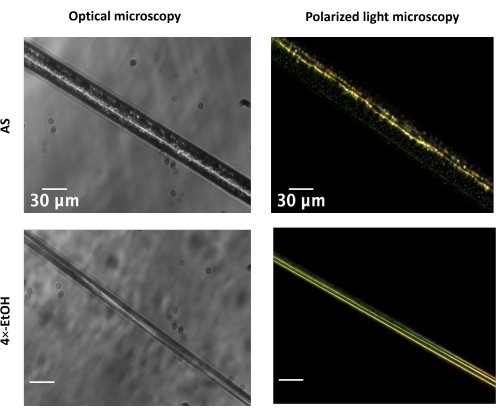
图8:湿法纺丝重组蜘蛛丝纤维的代表性光学显微图像。通过光学显微镜(左列)和偏振光显微镜(右列)观察一种嵌合型梨状腺-椭球状腺丝蛋白构建体(Py2W2)在初生状态(AS)以及经乙醇(EtOH)后拉伸4倍后的纤维。图片经Ghimire等17许可转载。比例尺 = 30 µm。缩写:AS = 初生状态;EtOH = 乙醇。请点击此处查看本图的高清版本。
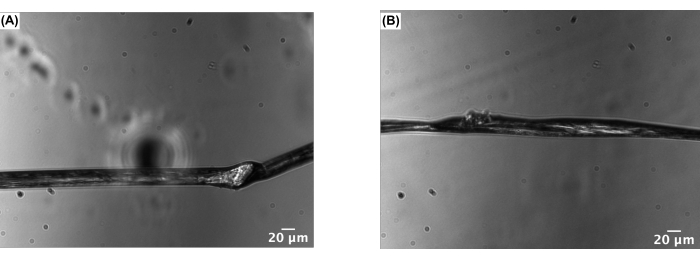
图9:通过光学显微镜可观察到的潜在纤维缺陷示例。 (A)“鼓胀”缺陷的示例。(B)“缩颈”缺陷的示例。比例尺 = 20 µm 请点击此处查看该图的高清版本。
在确认选定的纤维段无缺陷并完成直径测定(方案第3.2节)后,可进行拉伸测试(例如,图6)。图10展示了在不同条件下制备的嵌合型重组蜘蛛丝纤维的典型应力-应变曲线。根据不同的纺丝条件,所得纤维的力学性能差异显著,从脆性状态(AS状态)到具有与AS状态相似强度但高度可延展的纤维(2x-air状态),再到强度更高但延展性较低的纤维(4x-EtOH状态)。需要注意的是,必须对多个纤维段及多批纺丝样品进行测试,才能明确且严谨地评估其力学行为。
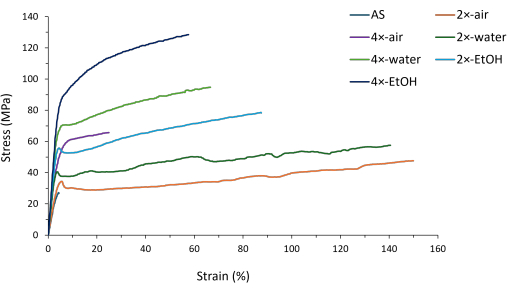
图10:由不同条件纺丝所得纤维的代表性应力-应变曲线。 纤维分析状态包括初生纤维状态(AS),或通过自动化纺后拉伸工艺制备的纤维(标示出拉伸比及拉伸条件(空气 vs. 溶剂))。该图经改编,引自 Ghimire 等人(2024)17,已获许可。缩写:AS = 初生纤维。 请点击此处查看该图的放大版本。
最后,可采用ATR-FTIR显微红外光谱法评估纤维状态的二级结构。通过该方法获得的典型蚕丝纤维光谱(图11A,B)包含特征性蛋白质谱带,如宽泛的酰胺A峰(中心位于约~3,300 cm-1)、酰胺I峰(~1,600–1,700 cm-1)以及酰胺II峰(~1,500–1,600 cm-1)。本研究重点关注酰胺I区(例如,图11C,D)的分析。二阶导数分析有助于识别酰胺I峰中的关键组分(图11E,F),为定量的峰解卷积(图11G–J)提供依据,从而实现对特定条件下纺丝所得蚕丝纤维中各类二级结构比例的评估与比较。
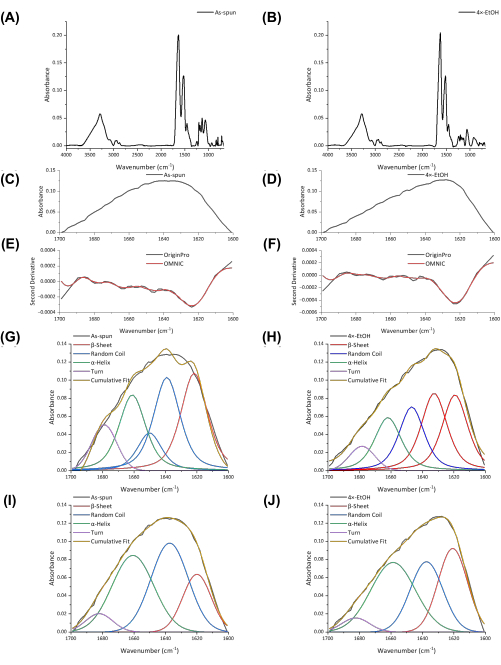
图11:FTIR光谱与二级结构分析。(A,B)通过湿法纺丝制备的Py2W2纤维在(A)初生态(AS)和(B)在乙醇中进行4倍后拉伸后的FTIR光谱。(C,D)分别为图A和B所示FTIR光谱的酰胺I区。(E–F)分别为图C和D所示酰胺I区的二阶导数光谱,使用指定软件包计算得出。(G–J)使用(G和I)OMNIC或(H和J)OriginPro软件包对酰胺I峰进行解卷积,其中图G和I对应于图C,图H和J对应于图D。缩写:FTIR = 傅里叶变换红外光谱;AS = 初生态。请点击此处查看该图的放大版本。
除了单个技术手段之外,二级结构、力学性能以及(超)分子取向数据之间的关联分析通常对于理解不同纺丝参数对所得材料的影响以及合理优化纺丝工艺至关重要。例如,在图11所示的FTIR去卷积结果中,比较嵌合型丝素蛋白在AS与4×-EtOH条件下的情况,两种条件下酰胺I带均显示出显著的β-折叠贡献,但相对于AS状态,后纺丝拉伸状态下的β-折叠在总二级结构中所占比例更高,且该结论不受去卷积方法影响(例如,图11G、H 与 图11I、J 的对比)。这一结果与4×-EtOH条件下观察到的显著高于AS状态的强度(图10)以及分子取向在4×-EtOH条件下相对于AS状态的改善(图9)相一致。此前已有研究详细报道了涵盖图10所示各种条件的表征与分析17。因此,本文未重复全部分析过程,而是通过这一成对比较示例,展示这三类数据如何相互补充,从而实现对纤维行为的更全面理解,远超单一技术独立使用所能达到的程度。
补充文件 1:包含补充图 S1-S34 的文件,展示纤维直径测量、力学数据处理以及 FTIR 数据采集与处理。 请点击此处下载该文件。
补充文件 2:一个可根据质量与时间数据确定关键力学性能(即应力、应变、杨氏模量和韧性)的电子表格。 请点击此处下载该文件。
讨论
重组蛋白的生产使得以多种形态制备材料成为可能,近年来的技术进展表明,这些基于蛋白质的材料正逐步接近更广泛的工业应用58。本文重点关注由重组蛛丝蛋白制备纤维,因为这种形式与天然的纤维状蛛丝直接相关。由于天然蛛丝具有卓越的机械性能,以及可持续生产高性能纤维的潜力,蛛丝纤维被认为在多个领域具有广阔的应用前景32。其潜在应用范围涵盖高性能纺织品、能量吸收材料、个人护理产品以及医疗健康领域58,59。此外,以可穿戴设备或其他增强电导性能的形式存在的蛛丝基装置与材料,也正在生物医学及其他更广泛的应用领域中被积极研究60。因此,开发、优化和定制化蛛丝基材料引起了广泛关注。在本实验方案中,我们介绍了一系列旨在快速制备纤维的操作流程,既可用于新重组蛛丝蛋白的纤维化制备,也可用于调控已具备可纺性的重组蛛丝材料的性能。
无论采用何种纺丝方法,确定能够通过筛选溶剂/缓冲液条件和蛋白质浓度来制备纺丝液的条件都至关重要,具体方法如本文所述。最终目标是在足够高的浓度下使蛋白质溶解,从而快速转化为纤维,同时避免发生偏离正确路径的自组装,形成聚集体或其他不溶性物质,这些物质将阻碍"有效"纺丝。理想的纺丝液通常是一种透明且具有一定黏度的溶液,其中很可能包含胶束/纳米颗粒26,61和/或液-液相分离等自组装结构62。本方案未详细说明全面评估纺丝液状态的方法,因为成功的纤维纺丝可通过反复测试不同纺丝液和纺丝配置来实现。对纺丝液状态的深入分子及超分子层面的理解,可借助黏度测定、光散射、远紫外圆二色光谱、核磁共振波谱和/或电子显微镜等技术实现26。还应注意,重组蛋白本身也可进行改造以改善其纺丝性能,例如引入球状非重复的N端和C端结构域,即为提高蛛丝蛋白溶解度的一种策略32。总之,若无法确定合适的纺丝液,则无法开展纺丝条件的比较测试。
一旦确定了一种或多种纺丝液条件,手工牵丝即可作为快速评估丝纤维性能的有效途径。由于手工牵丝所需的纺丝液体积显著减少,因而所需纯蛋白质量也大幅降低,使其成为自动化湿法纺丝前的理想预实验方法。该方法还提供了一种简便且易于操作的手段,用于直接比较不同蛛丝蛋白(spidroins)的纤维性能。33,其优势在于使用少量蛋白质即可相对简便地制备纤维。这意味着,为湿法纺丝获得所需更高产量而进行的蛋白质表达与纯化方案优化,可集中于最有前景的蛛丝蛋白。当然,手工牵丝的缺点在于难以高效地制备长而连续的纤维,或大量纤维。
在蛋白质充足的情况下,湿法纺丝能够为长而连续纤维的高效生产提供优势32。不仅如此,还可通过纺丝过程便捷地调控纤维性能。例如,选择不同的纺丝液条件即为改善纤维力学性能的一条明确途径。以一种约60 kDa的重组拟鞭毛状丝蛋白为例,当其他纺丝参数保持不变时,仅改变纺丝液即可导致纤维延展性的显著变化26。这种变化可进一步关联到拟鞭毛状蛛丝蛋白在纺丝前于纺丝液中自组装的方式,其中纺丝液中自组装纳米颗粒的均一性提升与纤维力学性能的改善呈正相关。此外,在纺丝后进行牵伸处理(需注意牵伸比应针对特定纤维类型进行优化)通常也能通过提高分子链取向以及促进形成如β-折叠晶区等结构的协同作用,从而改善丝纤维的力学性能32。最后,在纺丝后牵伸阶段采用不同条件也为调控纤维性能提供了手段。在牵伸前或牵伸过程中暴露于溶剂,可能显著改变纤维的力学和结构特性17,38,需注意不同蛛丝蛋白对溶剂的偏好性和耐受性各不相同(例如,重组拟鞭毛状纤维具有高度亲水性26,31,而重组梨状纤维在水中会发生收缩38;尽管嵌合型梨状-拟鞭毛状蛛丝蛋白中拟鞭毛状成分质量占比不足一半,其纤维仍表现出与拟鞭毛状蛛丝蛋白相似的亲水性17)。
本方案提供了一种高度可定制且用途广泛的策略,用于评估和优化重组蜘蛛丝的可纺性及纤维特性。在所有情况下,均须对所得纤维特性进行持续且稳健的分析与比较。本文推荐采用光学显微镜(包括偏光显微镜)、拉伸测试和傅里叶变换红外光谱显微技术作为实现该目标的"标准工具包"。此外还可应用其他生物物理和材料表征技术,以进一步深入理解所得纤维的性质,但本套技术已能全面覆盖形态学、原纤内部分子取向/各向异性、力学性能以及蛋白质二级结构等关键特性。尤其需要指出的是,尽管傅里叶变换红外光谱显微技术可相对简便地评估丝纤维的蛋白质二级结构,偏光显微镜也可用于推断分子取向增强程度,但仍应考虑采用其他方法(如固态核磁共振波谱63,64、X射线衍射64、偏振拉曼光谱显微技术65和/或非线性光学显微技术54),以便更全面地评估丝纤维内部的结晶度、分子取向和结构特征,从而阐明其结构-力学关系。鉴于湿法纺丝技术也适用于其他类型的蛋白质66,我们预期本方案不仅限于重组丝蛋白,还可广泛适用于其他体系。
披露
Jan K. Rainey 报告与 3DBioFibR Inc. 存在关系,包括股权或股票以及资助拨款。其他作者声明无利益冲突。
致谢
本研究工作得到了加拿大自然科学与工程研究理事会(NSERC)发现基金(X-QL 获得 RGPIN-2020-06083,JKR 获得 RGPIN-2023-05912)、加拿大国防部/NSERC 补充基金(JKR 获得 DGDND-2023-05912)、NSERC 联盟基金(JKR 获得 ALLRP-578541-22,合作单位为 3DBioFibR Inc)以及 NSERC 研究工具与仪器基金的资助。AG 获得了新斯科舍省博士研究生奖学金(NSGS-D)以及由 Molly Appeal 捐赠者资助的达尔豪斯大学医学院 2024 年研究生奖学金;HB 获得了由 NSERC 资助的加拿大范尔博士研究生奖学金、基拉姆博士前奖学金(二级)和 NSGS-D 奖学金;SE 获得了 NSERC 博士后研究生奖学金(PGS-D)、NSERC/加拿大国防部补充资助奖以及沃尔特·C·萨姆纳纪念奖学金。作者感谢 Sophie Haverstock 和 Emily Smith 提供的技术支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1,1,1,3,3,3-六氟丙醇(HFIP) | Thermo Fisher Scientific | 445820500 | 用于纺丝液制备 |
| 1725LTSN 带鲁尔接头固定针头的注射器 | Hamilton | 81100 | 用于湿法纺丝 |
| 2,2,2-三氟乙醇(TFE) | Sigma-Aldrich | T63002-500G | 用于纺丝液制备 |
| 无水乙醇 | Fisher Scientific | BP28184 | 用于凝固浴 |
| 乙酸 | Fisher Scientific | A38-212 | 用于纺丝液制备 |
| 分析天平 | Mettler Toledo | XS105 Dual Range | 拉伸测试装置 |
| 氯化钙(CaCl2) | Sigma-Aldrich | C-3881 | 用于纺丝液制备 |
| 柠檬酸 | Millipore Sigma | 77-92-9 | 用于纺丝液制备 |
| 计算机 | Raspberry Pi | Raspberry Pi 4 Model B | 湿法纺丝装置——提供图形用户界面以控制步进电机 |
| 磷酸氢二钠(Na2HPO4) | Millipore Sigma | 7558-79-4 | 用于纺丝液制备 |
| 甲酸 | Fisher Scientific | A118-500 | 用于纺丝液制备 |
| 载玻片 | Millipore Sigma | S8902-1PAK | 用于纤维固定 |
| 盐酸(HCl) | EM Science | HX0603-53 | 用于纺丝液制备 |
| MCT-A 冷却检测器 | Thermo Fisher Scientific | 840-199300 | 纤维二级结构的傅里叶变换红外光谱(FTIR)评估 |
| 安装板 | 实验室自制 | 湿法纺丝装置 | |
| NEMA 17 双极性步进电机 | STEPPERONLINE | 17HS15-1504S-X1 | 湿法纺丝装置——注意:需要多个电机以实现纺丝后拉伸 |
| Nicolet iN10 FTIR 显微光谱仪 | Thermo Fisher Scientific | 912A0604 | 纤维二级结构的傅里叶变换红外光谱(FTIR)评估 |
| Nicolet iN10 映射平台 | Thermo Fisher Scientific | 840-198800 | 纤维二级结构的傅里叶变换红外光谱(FTIR)评估 |
| Nicolet iN10 电动平台操纵杆 | Thermo Fisher Scientific | 840-199800 | 纤维二级结构的傅里叶变换红外光谱(FTIR)评估 |
| Nicolet Slide-On Ge 微尖 ATR 350 | Thermo Fisher Scientific | 840-194800 | 纤维二级结构的傅里叶变换红外光谱(FTIR)评估 |
| OMNIC Picta 版本 1.7.224 | Thermo Fisher Scientific | INQSOF018 | FTIR 仪器控制软件 |
| OMNIC 版本 9.11.745 | Thermo Fisher Scientific | INQSOF018 | FTIR 仪器专用数据处理与分析软件 |
| 光学/偏振光 显微镜 | Zeiss Canada | Axio Observer A1 | 倒置光学显微镜 |
| OriginPro 2025 10.2 SR1 | OriginLab Corporation | OriginPro 10.200196 | 第三方 FTIR 数据处理与分析软件 |
| 磷酸二氢钾(KH2PO4) | Fisher Scientific | P285-10 | 用于纺丝液制备 |
| 磷酸氢二钾(K2HPO4) | Fisher Scientific | BP363-500 | 用于纺丝液制备 |
| 电源 | ALITOVE | ALT-1205 | 湿法纺丝装置——12V 5A 电源适配器转换器,交流输入 100–240V,直流输出插头 5.5×2.5mm——注意:为获得最佳性能,每个电机可能需要独立电源 |
| 乙酸钠 | Sigma-Aldrich | S2889-1KG | 用于纺丝液制备 |
| 氢氧化钠(NaOH) | Millipore Sigma | 1310-73-2 | 用于纺丝液制备 |
| 纺丝辊筒 | 实验室自制 | 用于湿法纺丝 | |
| 步进电机电缆 | XMSJSIY | B0BD5FV3R2 | 湿法纺丝装置——提供步进电机控制器与步进电机之间的连接 |
| 步进电机控制器(Pi HAT) | Adafruit | DC & Stepper Motor HAT for Raspberry Pi | 湿法纺丝装置电机控制器变体 1——注意其电机转速有限,约为 46 rpm |
| 步进电机控制器(USB) | Polulu | Tic T249 | 湿法纺丝装置电机控制器变体 2——当需要超过 46 rpm 的转速时使用 |
| 注射泵 | KD Scientific | Model 100 | 拉伸测试装置和湿法纺丝装置 |
| 三氟乙酸(TFA) | Millipore Sigma | TX1276-7 | 用于纺丝液制备 |
| 三羟甲基氨基甲烷盐酸盐 | EMD Millipore | 9310-500GM | 用于纺丝液制备 |
| USB 集线器 | Acasis | B07Q3TYF15 | 湿法纺丝装置——48W 有源 USB 集线器——ACASIS 10 端口 USB 3.0 数据集线器——带独立开关及 12V/4A 电源适配器的 USB 分路器——用于 Raspberry Pi 与 Tic T249 步进电机控制器之间的接口 |
参考文献
- Gosline, J. M., Demont, M. E., Denny, M. W. The structure and properties of spider silk. Endeavour. 10 (1), 37-43 (1986).
- Gosline, J. M., Guerette, P. A., Ortlepp, C. S., Savage, K. N. The mechanical design of spider silks: from fibroin sequence to mechanical function. J Exp Biol. 202 (23), 3295-3303 (1999).
- Lewis, R. V. Spider silk: Ancient ideas for new biomaterials. Chem Rev. 106 (9), 3762-3774 (2006).
- Omenetto, F. G., Kaplan, D. L. New opportunities for an ancient material. Science. 329 (5991), 528-531 (2010).
- Hayashi, C. Y., Shipley, N. H., Lewis, R. V. Hypotheses that correlate the sequence, structure, and mechanical properties of spider silk proteins. Int J Biol Macromol. 24 (2-3), 271-275 (1999).
- Römer, L., Scheibel, T. The elaborate structure of spider silk: structure and function of a natural high performance fiber. Prion. 2 (4), 154-161 (2008).
- Altman, G. H., et al. Silk-based biomaterials. Biomaterials. 24 (3), 401-416 (2003).
- Fahnestock, S. R., Irwin, S. L. Synthetic spider dragline silk proteins and their production in Escherichia coli. Appl Microbiol Biotechnol. 47, 23-32 (1997).
- Xia, X. -X., et al. Native-sized recombinant spider silk protein produced in metabolically engineered Escherichia coli results in a strong fiber. Proc Natl Acad Sci USA. 107 (32), 14059-14063 (2010).
- Fahnestock, S. R., Bedzyk, L. A. Production of synthetic spider dragline silk protein in Pichia pastoris. Appl Microbiol Biotechnol. 47, 33-39 (1997).
- Bogush, V. G., et al. Recombinant analogue of spidroin 2 for biomedical materials. Dokl Biochem Biophys. 441, 276-279 (2011).
- Huemmerich, D., et al. Novel assembly properties of recombinant spider dragline silk proteins. Curr Biol. 14 (22), 2070-2074 (2004).
- Menassa, R., et al. Spider dragline silk proteins in transgenic tobacco leaves: Accumulation and field production. Plant Biotechnol J. 2 (5), 431-438 (2004).
- Hauptmann, V., et al. Native-sized spider silk proteins synthesized in planta via intein-based multimerization. Transgenic Res. 22, 369-377 (2013).
- Lazaris, A., et al. Spider silk fibers spun from soluble recombinant silk produced in mammalian cells. Science. 295 (5554), 472-476 (2002).
- Xu, H. T., et al. Construct synthetic gene encoding artificial spider dragline silk protein and its expression in milk of transgenic mice. Anim Biotechnol. 18, 1-12 (2007).
- Ghimire, A., Xu, L., Liu, X. Q., Rainey, J. K. A recombinant chimeric spider pyriform-aciniform silk with highly tunable mechanical performance. Mater Today Bio. 26, 101073(2024).
- Wohlrab, S., et al. Cell adhesion and proliferation on RGD-modified recombinant spider silk proteins. Biomaterials. 33 (28), 6650-6659 (2012).
- Baker, L. A., et al. Nerve growth factor-binding engineered silk films promote neuronal attachment and neurite outgrowth. Adv Funct Mater. 32 (45), 2205178(2022).
- Kluge, J. A., Rabotyagova, O., Leisk, G. G., Kaplan, D. L. Spider silks and their applications. Trends Biotechnol. 26 (5), 244-251 (2008).
- Bakhshandeh, B., Nateghi, S. S., Gazani, M. M., Dehghani, Z., Mohammadzadeh, F. A review on advances in the applications of spider silk in biomedical issues. Int J Biol Macromol. 192, 258-271 (2021).
- Hijirida, D. H., et al. 13C NMR of Nephila clavipes major ampullate silk gland. Biophys J. 71 (6), 3442-3447 (1996).
- Vollrath, F., Knight, D. P. Liquid Crystalline Spinning of Spider Silk. Nature. 410 (6828), 541-548 (2001).
- Doblhofer, E., Heidebrecht, A., Scheibel, T. To spin or not to spin: spider silk fibers and more. Appl Microbiol Biotechnol. 99, 9361-9380 (2015).
- Koeppel, A., Holland, C. Progress and trends in artificial silk spinning: A systematic review. ACS Biomater Sci Eng. 3 (3), 226-237 (2017).
- Xu, L., Weatherbee-Martin, N., Liu, X. Q., Rainey, J. K. Recombinant silk fiber properties correlate to prefibrillar self-assembly. Small. 15 (12), 1805294(2019).
- Teulé, F., et al. A protocol for the production of recombinant spider silk-like proteins for artificial fiber spinning. Nat Protoc. 4 (3), 341-355 (2009).
- Yang, M., Kawamura, J., Zhu, Z., Yamauchi, K., Asakura, T. Development of silk-like materials based on Bombyx mori and Nephila clavipes dragline silk fibroins. Polymer. 50 (1), 117-124 (2009).
- Lewis, R. V., Hinman, M., Kothakota, S., Fournier, M. J. Expression and purification of a spider silk protein: a new strategy for producing repetitive proteins. Protein Express Purif. 7 (4), 400-406 (1996).
- Arcidiacono, S., et al. Aqueous processing and fiber spinning of recombinant spider silks. Macromolecules. 35 (4), 1262-1266 (2002).
- Weatherbee-Martin, N., et al. Identification of wet-spinning and post-spin stretching methods amenable to recombinant spider aciniform silk. Biomacromolecules. 17 (8), 2737-2746 (2016).
- Schmuck, B., et al. Strategies for making high-performance artificial spider silk fibers. Adv Funct Mater. 34 (35), 2305040(2024).
- Xu, L., et al. Structural and mechanical roles for the C-terminal nonrepetitive domain become apparent in recombinant spider aciniform silk. Biomacromolecules. 18, 3678-3686 (2017).
- Xu, L., Rainey, J. K., Meng, Q., Liu, X. Q. Recombinant minimalist spider wrapping silk proteins capable of native-like fiber formation. PLoS One. 7 (11), e50227(2012).
- Exler, J. H., Hümmerich, D., Scheibel, T. The amphiphilic properties of spider silks are important for spinning. Angew. Chem, Int Ed. 46 (19), 3559-3562 (2007).
- Teulé, F., Furin, W. A., Cooper, A. R., Duncan, J. R., Lewis, R. V. Modifications of spider silk sequences in an attempt to control the mechanical properties of the synthetic fibers. J Mater Sci. 42, 8974-8985 (2007).
- Khan, A. Q., et al. Innovations in spider silk-inspired artificial gel fibers: methods, properties, strengthening, functionality, and challenges. SusMat. 4 (3), e205(2024).
- Simmons, J. R., Xu, L., Rainey, J. K. Recombinant pyriform silk fiber mechanics are modulated by wet-spinning conditions. ACS Biomater Sci Eng. 5 (10), 4985-4993 (2019).
- Seidel, A., Liivak, O., Jelinski, L. W. Artificial spinning of spider silk. Macromolecules. 31 (19), 6733-6736 (1998).
- Venkatesan, H., et al. Artificial spider silk is smart like natural one: Having humidity-sensitive shape memory with superior recovery stress. Mater Chem Front. 3 (11), 2472-2482 (2019).
- Sommer, C., Scheibel, T. Suitable electrospinning approaches for recombinant spider silk proteins. Open Ceramics. 15, 100420(2023).
- Wang, M. Y., et al. Dry-spinning of artificial spider silk ribbons from regenerated natural spidroin in an organic medium. Macromol Rapid Commun. 44 (12), 2300024(2023).
- Chang, M., Zhang, X., Yang, Z. Artificial metal-ion doped spider silk fibers with excellent mechanical property and humidity-driven actuator property. Macromol Chem Phys. 226 (10), 2400502(2025).
- Kang, E., et al. Digitally tunable physicochemical coding of material composition and topography in continuous microfibres. Nat Mater. 10 (11), 877-883 (2011).
- Lin, B., et al. Overexpressed artificial spidroin based microneedle spinneret for 3D air spinning of hybrid spider silk. ACS Nano. 18 (37), 25778-25794 (2024).
- Gonska, N., et al. Structure-function relationship of artificial spider silk fibers produced by straining flow spinning. Biomacromolecules. 21 (6), 2116-2124 (2020).
- Blackledge, T. A., Cardullo, R. A., Hayashi, C. Y. Polarized light microscopy, variability in spider silk diameters, and the mechanical characterization of spider silk. Invert Biol. 124 (2), 165-173 (2005).
- Greco, G., et al. Properties of biomimetic artificial spider silk fibers tuned by postspin bath incubation. Molecules. 25 (14), 3244(2020).
- Andersson, M., et al. Biomimetic spinning of artificial spider silk from a chimeric minispidroin. Nat Chem Biol. 13 (3), 262-264 (2017).
- Tremblay, M. L., et al. Spider wrapping silk fibre architecture arising from its modular soluble protein precursor. Sci Rep. 5 (1), 11502(2015).
- Schmuck, B., et al. Impact of physio-chemical spinning conditions on the mechanical properties of biomimetic spider silk fibers. Commun Mater. 3 (1), 83(2022).
- Yue, X., et al. A novel route to prepare dry-spun silk fibers from CaCl2-formic acid solution. Mater Lett. 128, 175-178 (2014).
- Sulekha, A., et al. An engineered recombinant spider silk protein providing disulfide-locked control over self-assembly and fiber formation. Adv Funct Mater. 35 (15), 2420254(2025).
- Harvey, M., Ghimire, A., Cisek, R., Kreplak, L., Rainey, J. K., Tokarz, D. Polarization-resolved second harmonic generation microscopy of silk fibers is sensitive to β-sheet orientation and molecular structure. ACS Appl Bio Mater. 8 (6), 5229-5238 (2025).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Huan, Y., et al. Experimental study of the mechanical properties of a novel supramolecular polymer filament using a microtensile tester based on electronic balance. Exp Tech. 40, 737-742 (2014).
- Hu, X., Kaplan, D., Cebe, P. Determining beta-sheet crystallinity in fibrous proteins by thermal analysis and infrared spectroscopy. Macromolecules. 39 (18), 6161-6170 (2006).
- Breslauer, D. N. Current progress on scale-up and commercialization of microbially-produced silk. Adv Funct Mater. 35 (15), 2408386(2025).
- Branković, M., et al. Review of spider silk applications in biomedical and tissue engineering. Biomimetics. 9 (3), 169(2024).
- Pan, L., et al. A supertough electro-tendon based on spider silk composites. Nat Commun. 11 (1), 1332(2020).
- Jin, H. J., Kaplan, D. L. Mechanism of silk processing in insects and spiders. Nature. 424 (6952), 1057-1061 (2003).
- Malay, A. D., et al. Spider silk self-assembly via modular liquid-liquid phase separation and nanofibrillation. Sci Adv. 6 (45), eabb6030(2020).
- Asakura, T., Naito, A. Structure of spider silk studied with solid-state NMR. Adv Funct Mater. 35 (15), 2407544(2024).
- Yarger, J. L., Cherry, B. R., Van Der Vaart, A. Uncovering the structure-function relationship in spider silk. Nat Rev Mater. 3 (3), 1-11 (2018).
- Lefèvre, T., Paquet-Mercier, F., Rioux-Dubé, J. F., Pézolet, M. Structure of silk by Raman spectromicroscopy: from the spinning glands to the fibers. Biopolymers. 97 (6), 322-336 (2012).
- Schiller, T., Scheibel, T. Bioinspired and biomimetic protein-based fibers and their applications. Commun Mater. 5 (1), 56(2024).
重印与许可
勘误
Formal Correction: Erratum: Optimizing and Evaluating Hand-drawing and Wet-spinning for Recombinant Spider Silk Fiber Production
Posted by JoVE Editors on 9/08/2025. Citeable Link.
This corrects the article 10.3791/68714
标签
本文已发表
视频即将推出