本研究通过多组学和临床分析,探讨LLT1作为胃癌免疫治疗预测性生物标志物的作用。该研究评估了LLT1在免疫逃逸及肿瘤微环境调控中的功能,以促进精准免疫治疗策略的制定,提高治疗效果。
本文内容
摘要
摘要
LLT1 是一种新型免疫检查点分子和潜在的治疗靶点。免疫治疗已改善了晚期胃癌的治疗效果;然而,许多患者并未产生应答或出现耐药,且目前缺乏有效的预测性生物标志物。LLT1 在胃癌免疫逃逸中的作用及其对免疫治疗应答的影响尚不明确。为评估这一点,本研究利用多个算法(TIMER、CIBERSORT 和 ESTIMATE)分析了癌症基因组图谱(TCGA)胃腺癌数据集中 LLT1 的表达情况,以量化肿瘤微环境中的免疫细胞浸润。通过免疫组织化学(IHC)在 268 例胃腺癌样本中验证了蛋白表达,并通过多重免疫荧光(MIF)在 115 例免疫治疗后组织中进行了验证。整合转录组和蛋白质组数据,分析其与肿瘤微环境特征及临床免疫治疗结局的关联。结果显示,高 LLT1 蛋白表达与较不侵袭性的肿瘤特征显著相关(较低的浸润深度和淋巴结转移;P < 0.05),并伴随更长的总生存期(P = 0.012)。LLT1 的 mRNA 和蛋白水平与肿瘤微环境中更多的 CD8+ T 细胞和 M1 型巨噬细胞浸润以及 PD-L1 表达升高相关。在第一个包含 198 例具有预后数据患者的队列中,LLT1 高表达患者(n=117)的总生存期显著长于低表达患者(n=81)。在第二个接受联合免疫治疗与化疗的患者队列中,LLT1 高表达的肿瘤(n=48)比 LLT1 低表达的肿瘤(n=67)具有更长的无进展生存期(P = 0.014)。在免疫治疗有效的患者(n=62)中,观察到 PD-1+CD161+ 免疫细胞群体显著增加(P < 0.05),相较于治疗耐药患者(n=53)。综上所述,LLT1 表达是胃癌良好预后的潜在生物标志物。据我们所知,本研究首次证实 LLT1 表达可预测胃癌患者对联合化疗与免疫治疗的更好应答,提示其在指导免疫治疗策略中的潜在价值。
引言
胃食管癌,尤其是胃癌(GC),位居全球第五th 全球最常见的癌症形式以及第五大th 最致命的。全球统计数据显示,每年约有100万例新发病例,其中东亚地区承担了不成比例的疾病负担,贡献了全球半数以上的发病率1对于早期胃癌患者,经内镜下黏膜剥离术(ESD)或根治性手术治疗后,预后良好,5年生存率超过90%2然而,由于早期症状较为隐匿,常导致诊断时已处于局部晚期或转移阶段3,4对于处于这些晚期阶段的患者,预后极差,未经治疗者的中位总生存期(OS)仅约6个月。即使采用基于氟尿嘧啶和铂类的联合化疗方案,中位总生存期也仅延长至大约一年。5.
近年来,由于一类名为免疫检查点抑制剂的新药问世,晚期胃癌的治疗发生了显著变化。这类药物类似于针对具有特定标志物PD-L1(即联合阳性评分(CPS)至少达到1分)的癌细胞的“魔法子弹”。对于DNA高度紊乱的肿瘤——即具有高微卫星不稳定性(MSI-H)的癌症,这些疗法同样具有显著疗效。这种新方法使患者生存时间得以延长6,7。关键性临床试验表明,在PD-L1阳性人群中,CPS评分达到10或更高的个体在接受PD-1单克隆抗体治疗后,生存期的延长更为显著8,9。然而,当前的免疫治疗仍面临多项临床挑战:客观缓解率(ORR)普遍低于20%,继发性耐药率高达40%-60%,生物标志物预测系统尚不完善(现有生物标志物仅能识别出30%-40%的潜在获益者),以及免疫相关不良事件(irAEs)的管理困难10,11,12,13,14。尽管双免疫检查点阻断(如联合PD-1/CTLA-4抑制)或化疗联合免疫治疗方案可将缓解率提升至40%-60%,但仍有约一半患者无法获得持续的临床获益15。因此,基于多组学特征建立精准分类体系、发现新的预测性生物标志物以及识别新的免疫检查点,已成为提升胃癌免疫治疗临床疗效的关键研究方向。
凝集素样转录物1(LLT1)是一种C型凝集素相关蛋白,其已知的结合伴侣为自然杀伤(NK)细胞受体家族的成员CD161。CLEC2D基因负责LLT1的合成,通过选择性剪接跳过某些外显子,产生五种不同的异构体。其中,变体1即LLT1,已被证实是唯一存在于细胞膜上的异构体16,17。LLT1的表达主要见于多种免疫细胞类型,如B淋巴细胞、NK细胞、树突状细胞(DCs)、特定T细胞亚群(包括活化T细胞和调节性T细胞)、单核细胞和巨噬细胞,同时也可在某些恶性细胞及炎症发作期间被检测到18。初步研究表明,在Toll样受体(TLR)刺激后,DCs和B细胞中的LLT1表达上调。LLT1与CD161的结合已被证明可抑制NK细胞介导的细胞毒性,提示其在调节免疫应答中的作用18。在B细胞中,病毒感染或炎症刺激可上调LLT1的表达。当B细胞作为抗原呈递细胞(APCs)时,LLT1-CD161相互作用表现出双重免疫调节效应:一方面抑制NK细胞功能,另一方面共刺激T细胞增殖或干扰素-γ(IFN-γ)的产生19。
LLT1 存在于多种癌细胞中,包括三阴性乳腺癌、胶质母细胞瘤和B细胞非霍奇金淋巴瘤。该蛋白可与自然杀伤细胞(NK细胞)上的CD161受体结合,有效阻断NK细胞对癌细胞的杀伤能力,从而帮助肿瘤逃避免疫应答20,21,22。在人乳头瘤病毒(HPV)阴性的口咽部鳞状细胞癌中,LLT1呈现可变表达;免疫组织化学研究表明,当LLT1在三级淋巴结构(TLS)中高表达时具有良好的预后意义,而当其在肿瘤细胞上表达时则与较差的临床结局相关23。此外,在非小细胞肺癌(NSCLC)中,LLT1在肿瘤细胞本身中未被检测到,而是存在于肿瘤微环境(TME)中,且其mRNA表达水平与较好的预后相关24。
正如 Mathewson 等人在胶质瘤研究中所证实,阻断 CD161 可增强 T 细胞对胶质瘤细胞的杀伤作用 体外 并增强其抗肿瘤功能 体内,强调了CD161作为免疫检查点靶点的治疗潜力25鉴于LLT1是CD161的典型配体18,其作为免疫治疗靶点的作用值得认真考虑。类似于免疫治疗中PD-1与PD-L1之间的关键相互作用,探究LLT1在胃癌中的生物学功能及其与免疫治疗疗效的相关性具有重要的临床价值。
本研究对胃癌肿瘤微环境中LLT1的表达模式进行了全面分析,整合了mRNA和蛋白质水平的检测结果。系统评估了LLT1作为晚期胃癌预后生物标志物的潜力,并探讨其对免疫治疗疗效的预测价值。这些发现有助于深入理解LLT1在临床转化中的潜在应用意义。
方案
本研究涉及人类受试者,已由苏州大学附属第一医院伦理委员会审查并批准(批准号:2019026)。苏州大学附属第一医院伦理审查委员会已批准或豁免了本数据使用的伦理审查。此外,所有参与者均签署了知情同意书。
生物信息学数据分析
在对TCGA和肿瘤免疫估计资源(TIMER)数据库进行系统的泛癌表达分析后,研究了LLT1在多种癌症类型中的表达特征,尤其聚焦于胃癌。利用TISIDB数据库探究LLT1表达水平与胃癌不同分子亚型之间的相关性。进一步通过R语言编程分析TCGA数据中患者临床特征与LLT1表达的相关性。采用GO和KEGG分析以探讨LLT1在胃癌发生过程中的功能作用。此外,应用ESTIMATE(基于表达数据估算肿瘤组织中基质细胞和免疫细胞含量)算法,根据LLT1的表达模式量化肿瘤组织中免疫细胞和基质细胞的浸润水平。进一步利用CIBERSORT算法分析LLT1表达水平与肿瘤微环境中特定免疫细胞浸润模式之间的相关性。使用TCGA数据集及R统计编程(v4.4.1)开展全面的生物信息学分析,以探究LLT1表达谱与免疫调节生物标志物之间的潜在关联。最后,利用TCIA(癌症免疫组图谱)数据库分析LLT1表达是否可预测患者对PD-1/PD-L1免疫检查点阻断治疗的应答情况。
胃腺癌标本及组织微阵列(TMA)构建
两组组织微阵列数据的生成方法如下:
第一组研究回顾性分析了2011年接受手术治疗的268例胃腺癌(GAC)患者的标本。病理学家筛选出石蜡包埋块,确定肿瘤核心区域,并构建组织微阵列。每个独立的样本位点均被分配一个唯一的标识符,以精确追踪相关的临床参数,包括性别、年龄、肿瘤大小、肿瘤分化程度、癌症进展阶段、浸润深度、淋巴结受累情况以及是否存在远处转移。总生存期(OS)定义为从治疗开始至死亡发生或截至2017年12月截尾日期的时间间隔。需要强调的是,完整的OS数据仅适用于其中198名参与者子集。
第二组包括115名未经治疗的晚期胃癌患者,这些患者于2016年至2023年间在苏州大学第一附属医院接受了手术或内镜下切除。病理学家对石蜡包埋组织块进行评估,并构建了组织微阵列,同时对疾病进展进行了密切随访。值得注意的是,所有标本均在任何术前治疗之前采集,术后治疗主要为PD-1单克隆抗体联合化疗。
所有手术切除标本均取自胃窦。所有样本均用中性缓冲甲醛固定,并包埋于石蜡中。根据苏木精-伊红(H&E)染色切片的评估结果,两名资深病理学家独立确定了石蜡包埋标本中最具代表性的组织区域。组织微阵列(TMA)采用自动组织芯片仪构建,按照预设模块将组织芯精确地排列在TMA蜡块中。最后,由经验丰富的组织技术员将完成的TMA蜡块切成4 µm厚的切片。
免疫组织化学(IHC)和多重免疫荧光(mIHC)
免疫组织化学和多重免疫荧光检测在构建的组织微阵列上进行。免疫组织化学染色按照先前建立的方法进行。26第一组微阵列石蜡切片转移至载玻片上,并在72 °C下烘烤1小时。切片经二甲苯脱蜡,并依次用浓度递增的乙醇溶液水化后,加入过氧化物酶阻断液作用30分钟以阻断内源性过氧化物酶活性。抗原修复通过将载玻片置于柠檬酸抗原修复液(pH 6.0)中,于110 °C煮沸3分钟完成。用5% BSA封闭缓冲液封闭后,切片在4 °C下与以下一抗孵育过夜:小鼠抗人CLEC2D单克隆抗体、小鼠抗人CD3单克隆抗体(即用型)、小鼠抗人CD4单克隆抗体(即用型)、兔抗人CD8单克隆抗体(即用型)、小鼠抗人CD11c单克隆抗体(1:50)、小鼠抗人CD19单克隆抗体(即用型)、小鼠抗人CD31单克隆抗体(即用型)、小鼠抗人CD56单克隆抗体(即用型)、小鼠抗人CD68单克隆抗体(即用型)、兔抗人Foxp3单克隆抗体(1:50)、小鼠抗人IL-17单克隆抗体(1:50)、小鼠抗人IFN-γ单克隆抗体(1:50)、小鼠抗人Ki67单克隆抗体(1:50)、小鼠抗人PD-L1单克隆抗体(即用型)27,28载玻片随后经洗涤,并在室温下与辣根过氧化物酶标记的二抗(抗小鼠和抗兔)孵育30分钟。孵育后,样本再次洗涤,采用EnVision检测系统进行免疫检测。显微镜下观察,当芯片上出现棕黄色区域时需仔细观察,一旦棕黄色区域不再增加,应立即终止显色反应。载玻片用Mayer苏木精复染,并用中性树胶封片。阴性对照中,以小鼠或兔IgG替代一抗;阳性对照采用人扁桃体组织。第二组组织微阵列切片用于多重免疫组化(mIHC)。重复使用前述抗原修复和封闭条件,抗体组合的光谱优化如下:PD-L1(480 nm)、CD161(520 nm)、LLT1(570 nm)、PD-1(620 nm)、CD8(690 nm)和PAN-CK(780 nm)。一抗孵育条件与原始方案相同。29 (PANCK 和 CD161 为新引入的抗体除外),均按推荐的 1:100 稀释比例孵育,随后进行酪胺信号放大(TSA)荧光染色。每轮荧光染色完成后,需进行抗体剥离,接着重复抗原修复、内源性过氧化物酶阻断以及非特异性靶点阻断,然后孵育下一种一抗。进行多重免疫组化时,有三个关键点:每种荧光染料均需预先开展预实验,高表达的抗体应与弱荧光信号配对,而低表达的抗体则应与强荧光信号配对;每完成一种荧光标记的染色后,必须在避光条件下于显微镜下观察染色结果。完成第 6 种标记染色后th 荧光染料,应用DAPI复染以标记细胞核,然后封片。最后,所有组织微阵列均使用数字病理扫描仪进行扫描,并通过人工智能驱动的数字病理图像分析软件进行分析。
IHC/mIHC 染色评估
染色结果由两名经验丰富的病理学家以双盲方式解读。他们使用高倍物镜(200倍放大)或相应的荧光设置(200倍)评估染色强度,评分范围为0(无染色)至3(强染色)。胃癌样本中LLT1阳性细胞的比例被分为四个等级:0(<5%)、1(5–25%)、2(26–50%)和3(>50%)。免疫反应性评分(IRS)由染色强度评分与LLT1阳性细胞比例评分相乘得出。评分为0的样本被视为阴性,评分1–4表示弱表达,5–7为中等表达,8–9为强表达;该标准同样用于评估其他标志物(如Ki67和CD3)的表达水平。根据上述评估与分组方法,样本被标记为强表达(IRS 8–9)、中等表达(IRS 5–7)、弱表达(IRS 1–4)或无表达(IRS 0)。评分最低的患者(IRS ≤ 4)被归入低表达组,评分较高的患者(IRS ≥ 5)被归入高表达组。
然而,对于PD-L1标志物,采用了不同的方法,即使用CPS。该评分通过PD-L1阳性细胞(包括肿瘤细胞、免疫细胞和基质细胞)与存活肿瘤细胞总数的比值乘以100来确定。CPS超过5的个体被归入高表达组,而CPS为5或低于5的个体则被归入低表达组。
免疫治疗反应分组
根据实体瘤疗效评价标准1.1版(RECIST 1.1),患者靶病灶的疗效评估分为以下四个明确类别:(a)完全缓解(CR):所有靶病灶完全消失,且所有病理学淋巴结(包括靶病灶和非靶病灶)的短轴直径均小于10 mm;(b)部分缓解(PR):所有可测量靶病灶的直径总和较基线水平减少至少30%;(c)疾病进展(PD):靶病灶的直径总和较研究期间记录的最小值增加至少20%(若基线值为最小值,则以基线为参考),且绝对增加值不少于5 mm;此外,出现新病灶也归类为疾病进展(PD);(d)疾病稳定(SD):靶病灶的直径总和在研究期间既未达到PR的缩小标准,也未达到PD的增大标准。本研究采用了两种分层方法。第一种方法根据患者的治疗反应状态进行分组,其中PD患者(n=53)和SD患者(n=46)被归为无应答组(n=99),而PR患者(n=15)和CR患者(n=1)则构成应答组(n=16)。第二种方法根据疾病是否进展进行分类,将CR、PR和SD患者归为免疫治疗有效队列(n=62),PD患者归为免疫治疗无效队列(n=53)。
统计分析
采用 R 计算平台(版本 4.4.1)和 SPSS 统计软件包(版本 27.0)进行实证评估。通过卡方列联表分析检验各研究队列之间的差异。采用 Spearman 非参数相关分析方法探究变量间关联的强度与方向。通过构建 Kaplan-Meier 估计量并结合对数秩检验评估生存时间的差异。随后,采用 Cox 比例风险回归模型识别可能影响患者生存结局的因素。统计学显著性预先定义为双侧 p 值阈值 <0.05。为确保研究结果的稳健性,进行了全面的敏感性分析以评估潜在的混杂变量,并对多变量模型进行相应调整。此外,对风险比进行了明确解释,以促进临床理解,强调所识别风险因素对患者预后的实际意义。
结果
关联性 CLEC2D mRNA表达与胃癌亚分类/临床参数
利用TCGA数据集并通过TIMER数据库辅助进行的初步综合性癌症分析,揭示了显著升高的水平 CLEC2D 不同癌组织中的转录水平,如图所示 图1A这一观察结果表明 CLEC2D 可能作为参与多种癌症发病机制与演进过程的普遍致癌因子。对各项指标的细致比较 CLEC2D 利用TCGA-STAD数据集对胃癌与非癌胃组织间的mRNA水平进行了分析。对408例非配对样本的评估显示,mRNA水平存在统计学上显著升高 CLEC2D 肿瘤标本与其正常对应组织相比的mRNA表达水平(P < 0.01, 图1B)。为了验证这些结果,对27对匹配的肿瘤-正常样本对进行了Wilcoxon符号秩检验,结果证实了显著增强的 CLEC2D 胃癌组织中的表达(P < 0.01, 图1C)。这种双重验证机制有力地支持了表达模式的失调 CLEC2D 在胃癌病理学中。
值得注意的是,CLEC2D 表达水平与胃癌的分子亚型之间存在显著相关性的研究结果。在 TCGA 分子亚型和 ACRG 相关分类中30,31,EB病毒阳性(EBV)组和高突变-插入/缺失(HM-indel)组的 CLEC2D 表达水平均显著更高(图 1D)。此外,基于肿瘤微环境特征的免疫亚型分析显示32,与其它组相比,C2(以 IFN-γ 为主)和 C6(以 TGF-β 为主)亚型中 CLEC2D 的表达显著升高(图 1E)。CLEC2D 在 mRNA 水平的表达与预后无显著相关性(图 1F);尽管其在一定程度上与临床特征相关(图 1G-L),但相关性并不强。
LLT1 蛋白表达与胃癌临床参数/预后之间的关联
在患者队列中观察到不同的 LLT1 蛋白表达谱,免疫反应强度从弱到强不等(图 2A-D)。我们的分析揭示了 LLT1 表达水平与某些病理参数之间存在显著相关性。具体而言,LLT1 表达与肿瘤分期呈负相关(相关系数为 -0.170,统计学显著性 P = 0.005),与肿瘤浸润深度呈负相关(相关系数为 -0.136,P = 0.025),以及与淋巴结转移可能性呈负相关(相关系数为 -0.204,P 值高度显著,< 0.001;表 1)。为了展示 LLT1 表达与多种临床参数之间的关系,我们根据上述标准构建了柱状图,以描绘不同亚组中的 LLT1 表达水平(图 2E-H)。数据显示,在肿瘤分期更晚、肿瘤浸润更深、淋巴结转移负荷更高以及肿瘤分化程度降低的病例中,高 LLT1 表达的发生率明显较低。这些结果提示,LLT1 可能作为胃癌的预后标志物,并可能参与恶性进展过程。
共获得198例患者的完整生存数据,其中高表达组117例,低表达组81例。生存率的Kaplan-Meier分析(图2I)显示,LLT1高表达组的总生存期显著长于低表达组,且该差异具有统计学意义(P = 0.0118)。
单变量分析(表2)显示,临床分期(P < 0.001)、肿瘤浸润深度(P < 0.001)、淋巴结转移(P = 0.004)和远处转移(P < 0.001)均与预后存在统计学显著关联。为验证LLT1作为胃癌独立预后指标的价值,将LLT1表达水平与包括肿瘤分期、浸润深度、淋巴结转移状态及远处器官转移在内的传统临床参数共同纳入多变量Cox比例风险回归模型。分析结果具有统计学显著性,证实LLT1表达水平与患者生存之间存在显著相关性(P = 0.03)。
为了进一步分析LLT1表达与胃癌临床参数之间的关系,对肿瘤区域和间质区域中的LLT1表达进行了评估和分析(表3)。同时,间质区和肿瘤区高表达组与低表达组的生存曲线比较显示,间质区LLT1高表达的患者预后较好(图2J、K)。
关联性 CLEC2D mRNA表达与肿瘤微环境
为了研究功能作用 CLEC2D 在胃癌中,采用TCGA-STAD数据集的转录组数据进行KEGG和GO富集分析。该分析(图3A,B) 精确定位到 CLEC2D 主要富集于免疫反应相关通路,尤其是与T细胞和B细胞功能相关的通路。
ESTIMATE 算法分析表明,高表达组CLEC2D高表达组的免疫评分和基质评分显著高于低表达组(图3C)。为了研究潜在的调控作用 CLEC2D 在胃癌的肿瘤免疫微环境(TIME)中,基于22种免疫细胞亚群的富集评分开展了全面的免疫浸润分析。对不同组别间进行了比较分析 CLEC2D高和 CLEC2D高表达组与低表达组的比较结果表明,高表达组的肿瘤 CLEC2D 表达显示出CD8+ T淋巴细胞、记忆B细胞、滤泡辅助性T细胞和活化的记忆CD4+ T细胞的显著富集,同时M0型巨噬细胞、活化的肥大细胞和中性粒细胞的浸润水平明显降低(图3D).
对复杂关系进行了深入研究 CLEC2D 胃癌中mRNA水平与免疫细胞浸润。通过相关性分析匹配 CLEC2D mRNA表达与多种免疫细胞类型的丰度之间存在显著关联,如图所示 图3E, CLEC2D mRNA 表达水平与活化记忆性 CD4 T 细胞的浸润呈显著正相关r = 0.34, P < 0.001),CD8 T细胞(r = 0.32, P < 0.001),记忆B细胞(r = 0.28, P < 0.001),滤泡辅助性T细胞(r = 0.21, P < 0.001)以及中性粒细胞(r = 0.21, P < 0.001; 图3F- I)。相反,M0型巨噬细胞浸润则呈现负相关关系(r = -0.33, P < 0.001),活化的肥大细胞(r = -0.29, P < 0.001)、中性粒细胞(r = -0.20, P = 0.0019),以及组织驻留记忆性CD4 T细胞(r = -0.64, P < 0.001; 图3J- M结合KEGG和GO富集分析,这些发现提示其可能参与调控T细胞和B细胞。
LLT1蛋白表达与胃癌肿瘤免疫微环境(TIME)的关联性
为探究LLT1在肿瘤免疫微环境(TIME)中潜在的调控作用,采用免疫组织化学法(IHC)对268例胃癌患者的连续组织切片进行了系统性分析。通过建立多层免疫标志物检测面板,分析聚焦于三类生物标志物:免疫细胞亚群标志物(CD3、CD4、CD8、Foxp3、CD19、CD11c、CD56和CD68)、免疫效应分子(IL-17和IFN-γ)、以及血管生成标志物(CD31)和免疫检查点分子(PD-L1)。通过定量病理分析与统计学建模,发现LLT1蛋白表达与多个关键免疫指标之间存在显著相关性。如表4所示,LLT1表达与以下标志物呈显著正相关:CD3(r= 0.192,P = 0.002)、CD4(r= 0.143,P = 0.007)、Foxp3(r= 0.174,P = 0.005)、IL-17(r= 0.204,P < 0.001)、CD19(r= 0.181,P = 0.003)、CD11c(r= 0.279,P < 0.001)以及CD68(r= 0.139,P = 0.024)。尽管LLT1与CD8 T细胞标志物(r= 0.098,P = 0.079)或IFN-γ(r= 0.098,P = 0.079)之间的相关性未达到统计学显著性,但仍观察到正向趋势。图4展示了相应的实验图像。
这些发现与先前的转录组学数据一致,表明LLT1表达与免疫细胞浸润相关,进一步证实了LLT1在塑造胃癌肿瘤免疫微环境(TIME)中的关键作用。值得注意的是,LLT1与PD-L1表达呈显著正相关(r = 0.142,P = 0.021),提示LLT1可能通过调控肿瘤免疫微环境影响免疫治疗的疗效。
关联性 CLEC2D 胃癌中mRNA表达水平与免疫治疗疗效的关系
为了理解如何 CLEC2D 表达水平与免疫治疗干预的成功率相关,因此对TCGA-STAD数据集进行了全面分析。检测了40种免疫检查点分子的mRNA表达水平,并发现这些分子之间存在显著相关性 CLEC2D 以及发现了若干关键的免疫检查点,尤其是 PD-1 和 PD-L1(图 5A)。更详细的相关性分析表明,两者之间存在显著的正相关关系 CLEC2D 基因表达和PDCD1(r= 0.42, P < 0.001), CD274 (r= 0.69, P < 0.001),以及 PDCD1LG2 (r= 0.63, P < 0.001)表达,如图所示 图5B- D,这与先前的免疫组织化学结果一致 图4.
为了验证这些观察结果,我们将分析扩展至TCIA数据库,并研究了CLEC2D mRNA水平与免疫表型评分(IPS)之间的关系。后续分析结果如图5E-H所示,表明CLEC2D高表达个体的PD-1/PD-L1相关IPS评分显著更高。这提示肿瘤微环境中CLEC2D的表达增加可能增强对靶向PD-1/PD-L1的免疫治疗的响应。这些发现与我们先前研究得出的结论一致。
LLT1蛋白表达水平与胃癌免疫治疗疗效之间的关联
通过多重免疫组织化学(mIHC)进行的分析揭示了一项值得注意的发现(图6A):胃癌微环境中LLT1蛋白水平的差异对应着独特的免疫细胞浸润模式,提示其可能影响对免疫治疗干预的应答。该组织微阵列的临床分组信息总结于表5。根据我们对免疫治疗疗效的分层,卡方分析显示PD-L1表达水平与免疫治疗无应答之间存在显著相关性(P = 0.002;表6),这与近期临床研究的结果相一致8。值得注意的是,尽管在治疗有应答与无应答个体之间LLT1表达水平无显著差异,但在比较免疫治疗疗效分组时,LLT1浸润程度和PD-L1评分均显示出统计学上的显著差异(P = 0.008 和 P = 0.009,分别对应;表7)。这些数据提示LLT1可能与无进展生存期(PFS)存在相关性。进一步针对无进展生存期(PFS)并结合生存指标的分析显示,PD-L1高表达的患者相较于低表达患者具有显著延长的PFS(P = 0.0266,图6B)。这一结果与临床证据一致,支持PD-1阻断剂作为晚期胃癌主要治疗手段的有效性8。值得注意的是,LLT1高表达组也呈现出类似趋势,其PFS较LLT1低表达组更长(P = 0.0142,图6C)。
为了确定LLT1作为接受化疗联合基于PD-1抑制剂免疫治疗的晚期胃癌患者无进展生存期(PFS)独立预测因子的潜力,本研究进行了单因素和多因素分析以识别PFS的预测因子。如表8所示,单因素分析表明肿瘤浸润深度(T分期)对PFS具有显著影响,其p值略低于0.05的阈值。由于所有受试者均患有晚期胃癌并接受了免疫治疗,队列中未观察到临床分期或远处转移(M分期)的差异。考虑到临床意义,年龄、淋巴结转移(N分期)和肿瘤分化程度被纳入Cox比例风险模型作为混杂变量。随后的多因素Cox回归分析证实,LLT1表达水平可独立预测胃癌患者的无进展生存期(P = 0.048)。进一步评估LLT1在肿瘤细胞和间质细胞中的表达(表9)显示,间质中LLT1的表达与疾病进展的相关性更强。值得注意的是,无进展生存期(PFS)分析显示,间质LLT1高表达患者的预后显著优于低表达患者(图6D、E)。
研究目的是通过绘制在不同LLT1表达水平的患者组中CD161阳性细胞周围LLT1的分布情况,来理解LLT1的表达如何影响免疫治疗的效果。空间分析显示,在LLT1高表达的肿瘤中,与LLT1低表达样本相比,CD161阳性细胞周围三个渐进性远端区域(0–25 µm、25–50 µm 和 50–100 µm)内LLT1阳性细胞的密度显著增加(图7A-C)。此外,在对免疫治疗有应答的患者中,CD161阳性细胞占PD1阳性细胞的比例显著升高,与无有效应答的患者形成明显区别(图7D)。多重免疫组织化学图像表明,在免疫治疗有效组中,PD1阳性细胞中CD161阳性细胞的比例显著高于无效组(图7E-L)。
数据可用性
原始数据已上传至公共存储库,访问链接如下: https://doi.org/10.5281/zenodo.16432301。

图1:CLEC2D mRNA表达水平与胃癌亚分类/临床参数之间的关联。(A) 所有肿瘤组织与相邻非肿瘤组织中CLEC2D mRNA的表达水平。(B) 胃癌样本中肿瘤组织(n=32)与相邻组织(n=375)之间CLEC2D mRNA表达的差异。(C) 胃癌患者配对的肿瘤组织(n=24)与相邻组织(n=24)之间CLEC2D mRNA表达的差异。(D) 不同免疫亚型中CLEC2D mRNA的表达水平:C1(伤口愈合型,n=129)、C2(IFN-γ主导型,n=210)、C3(炎症型,n=36)、C4(淋巴细胞耗竭型,n=9)、C5(免疫静止型,n=0,未显示)和C6(TGF-β主导型,n=7)。(E) 不同分子亚型中CLEC2D mRNA的表达水平:CIN(染色体不稳定性,n=223)、EBV(EB病毒阳性,n=30)、GS(基因组稳定型,n=50)、HM-SNV(高突变-单核苷酸变异型,n=7)和HM-indel(高突变-插入/缺失型,n=73)。(F) CLEC2D mRNA表达水平与患者总生存期(OS)之间的关系。(G-L) 按不同临床参数分层的亚组中CLEC2D mRNA的表达情况。(A-B和G-L采用非配对t检验分析,C采用配对t检验分析,D-E采用Kruskal-Wallis检验分析,F采用log-rank检验分析。*P < 0.05;**P < 0.01;***P < 0.001)请点击此处查看该图的高清版本。
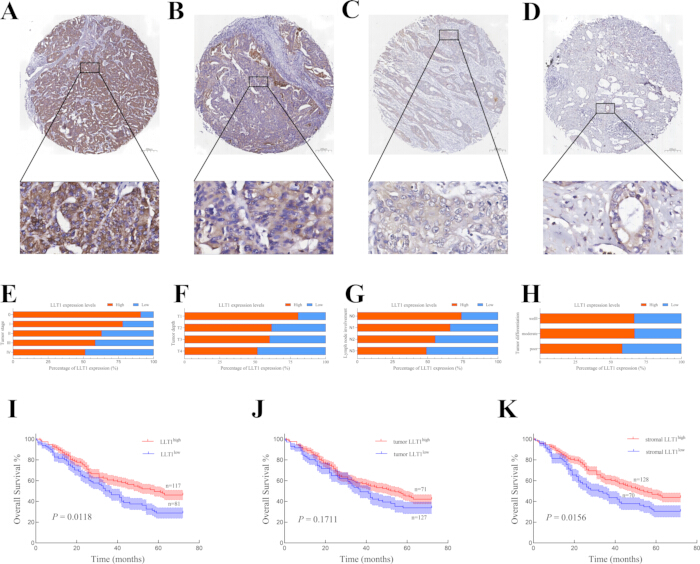
图2:LLT1蛋白表达与胃癌临床参数及预后的关系。(A-D)胃癌样本中LLT1表达的代表性图像:(A)强表达(n=69);(B)中等表达(n=98);(C)弱表达(n=82);(D)无表达(n=19)(概览图像比例尺:200 µm;放大图像比例尺:25 µm)。(E-H)根据肿瘤分期、淋巴结转移数量、肿瘤浸润深度和分化程度分层的亚组中高表达与低表达LLT1的分布比例。(I)高表达组与低表达组之间的生存预后差异。(J-K)肿瘤区域(J)和间质区域(K)中LLT1高表达与低表达的生存预后差异。(I-K)采用log-rank检验进行分析。请点击此处查看该图的放大版本。
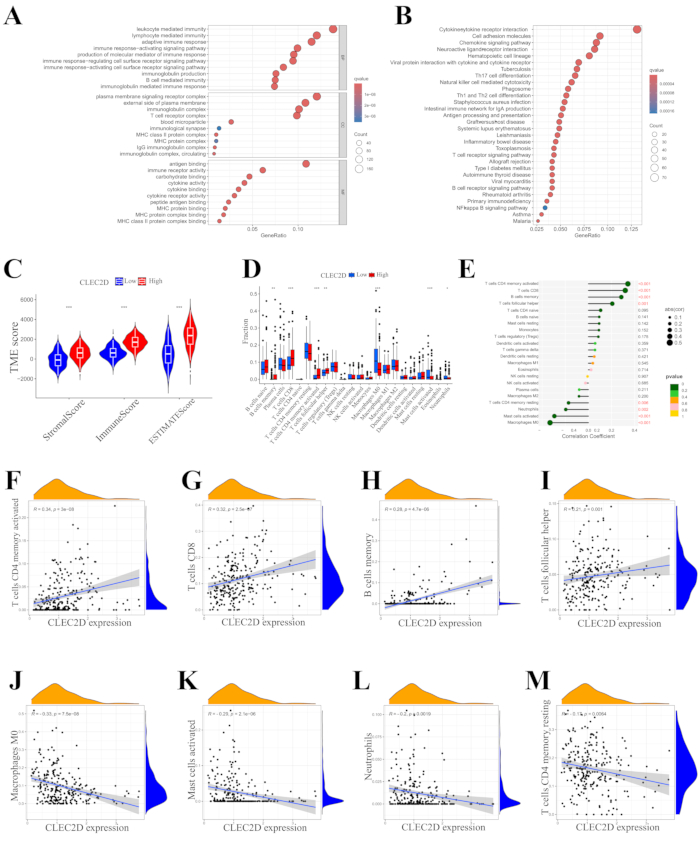
图3浸润 CLEC2D 在胃癌的免疫微环境中。 (A-BGO 和 KEGG 富集分析结果 CLEC2D 在TCGA-STAD样本的转录组数据中。C免疫评分在 CLEC2D 高表达组和低表达组。D22 种免疫细胞类型间免疫评分的差异 CLEC2D 高表达组和低表达组。E相关性 CLEC2D mRNA 表达及22种免疫细胞类型的标志物。F-M散点图展示相关性 CLEC2D mRNA 表达和免疫细胞标志物,包括活化的记忆性 CD4+ T 细胞、CD8+ T 细胞、记忆性 B 细胞、中性粒细胞、滤泡辅助性 T 细胞、M0 巨噬细胞、肥大细胞以及组织驻留记忆性 CD4+ T 细胞。 请点击此处查看此图的放大版本。

图 4:胃癌中 LLT1 和 TIME 标志物的表达。概览图像比例尺:200 µm;放大图像比例尺:50 µm。 请点击此处查看该图的放大版本。
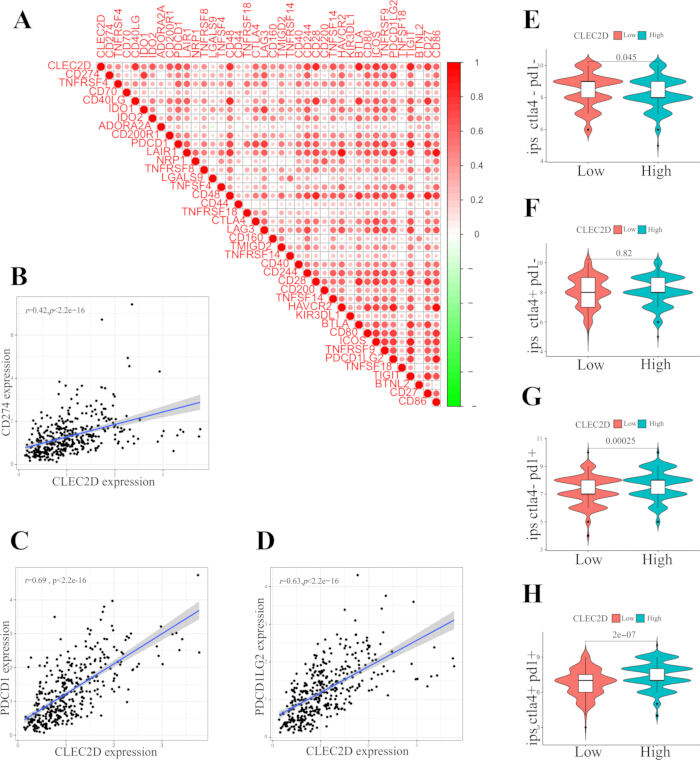
图5:CLEC2D mRNA表达与胃癌免疫治疗反应之间的关联。(A)CLEC2D mRNA表达与肿瘤微环境中其他免疫检查点之间的相关性。(B-D)CLEC2D mRNA表达水平与肿瘤微环境中CD274(B)、PDCD1(C)和PDCD1LG2(D)的关联。(E-H)高表达与低表达CLEC2D组之间的差异免疫表型评分(IPS)评估。请点击此处查看该图的放大版本。

图6:LLT1高表达与低表达组的多重免疫荧光图像,以及不同组别间的无进展生存曲线。(A)LLT1高表达(n=48)与低表达(n=67)组的多重免疫荧光图像。比例尺如下:全景图像:200 µm;放大视图:100 µm;详细放大:50 µm。(B)PDL1高表达(n=63)与低表达(n=52)组间的无进展生存曲线。(C)LLT1高表达(n=48)与低表达(n=67)组间的无进展生存曲线。(D)肿瘤细胞上LLT1高表达(n=23)与低表达(n=92)组间的无进展生存曲线。(E)基质细胞上LLT1高表达(n=58)与低表达(n=57)组间的无进展生存曲线。(B-E均采用Log-rank检验进行分析。) 请点击此处查看该图的放大版本。

图7:LLT1-CD161空间邻近性分析及CD161/PD-1共表达情况。(A-C)在LLT1高表达组与低表达组中,距离CD161+细胞0–25 µm、25–50 µm和50–100 µm范围内LLT1+细胞的密度。(D)免疫治疗有效组与无效组之间CD161+细胞与PD-1+细胞比例的差异。(E-H)代表性图谱和点图,显示免疫治疗有效组(E-F)和无效组(G-H)中PD-1+细胞内CD161+细胞所占百分比。(I-L)对应区域(E-H)的高倍放大视图。概览图像比例尺:150 µm;放大视图比例尺:50 µm。(A-D均采用非配对t检验进行分析。) 请点击此处查看该图的放大版本。
表1:胃癌肿瘤微环境中LLT1蛋白表达水平与临床参数的相关性(芯片1队列)。 请点击此处下载该表格。
表2:胃癌患者生存预后因素的单变量和多变量Cox回归分析(Chip 1队列)。 请点击此处下载该表格。
表3:间质区和肿瘤区LLT1蛋白表达与临床参数的相关性(芯片1队列)。 请点击此处下载该表格。
表4:胃癌(芯片1队列)肿瘤免疫微环境(TIME)中LLT1蛋白表达水平与其他生物标志物之间的相关性。 请点击此处下载该表格。
表5:临床信息表(芯片2队列)。 请点击此处下载该表格。
表6:生物标志物蛋白表达与免疫治疗反应之间的相关性(Chip 2 队列)。 请点击此处下载该表格。
表7:生物标志物蛋白表达与疾病进展的相关性(Chip 2 队列)。 请点击此处下载该表格。
表8:胃癌患者无进展生存期预后因素的单变量与多变量Cox回归分析(芯片2队列)。 请点击此处下载该表格。
表9:肿瘤细胞和基质细胞上LLT1表达与疾病进展的相关性(Chip 2队列)。 请点击此处下载该表格。
讨论
我们的研究显示,肿瘤组织中 CLEC2D mRNA 的表达水平高于正常组织。胃癌的免疫组化结果表明,肿瘤组织中 LLT1 蛋白的高表达与较好的预后相关,并且与肿瘤微环境中免疫细胞的浸润呈正相关。对接受免疫治疗的胃癌患者组织进行分析显示,LLT1 高表达可预测更佳的免疫治疗反应。本研究探讨了 LLT1 在胃癌组织中的表达及其临床意义,为胃癌的临床免疫治疗提供了一个新的评估标志物。
CLEC2D mRNA 表达水平与相应蛋白水平之间存在差异。这种不一致可能归因于 CLEC2D 基因存在五种选择性剪接变体,其中仅有一种编码功能性 LLT1 蛋白。其余四种非编码剪接变体的存在可能导致 mRNA 丰度与蛋白表达之间相关性不完善。此外,翻译后修饰(如磷酸化、糖基化)以及泛素介导的蛋白质降解途径也可能在不依赖转录活性的情况下独立调控 LLT1 蛋白水平。
生物信息学分析显示,CLEC2D 高表达组具有更高的免疫评分以及更显著的免疫细胞浸润水平。大量文献表明,肿瘤组织中免疫治疗疗效与免疫细胞浸润之间存在复杂关系:效应免疫细胞(如 CD8+ T 细胞)的高浸润通常预示着更好的治疗效果33,而免疫抑制性细胞(如 Treg 细胞、MDSCs)则可能削弱治疗反应34,35,36。免疫细胞分布的空间异质性,尤其是三级淋巴结构的存在37,也是一个关键因素。基于胃癌的异质性特征,TCGA 和 ACRG 开展的分子分型研究极大地推动了精准医学和免疫治疗的发展。应用这些分子分型策略发现,预后较好的亚组(EBV 阳性、MSI-H 以及以 IFN-γ 为主导的亚型)均持续表现出 CLEC2D 的高表达,这与 CLEC2D 与免疫治疗反应相关联的假说相一致。
我们的结果表明,LLT1 高表达与免疫细胞浸润增加及更好的临床结局相关。肿瘤免疫微环境具有高度复杂且动态平衡的免疫调节特性,表现为抗肿瘤免疫应答与肿瘤免疫逃逸机制之间的持续相互作用38,39,40,41,42。作为该微环境的关键组分,免疫细胞既可通过抗肿瘤免疫抑制肿瘤生长,也可能被肿瘤细胞所劫持,从而促进免疫逃逸和疾病进展43,44,45,46。尽管免疫细胞浸润程度更高并不总是与更佳的预后相关,但本研究观察到 LLT1 表达与 CD8+ T 细胞浸润之间存在正相关关系。CD8+ T 细胞是清除肿瘤细胞的关键效应细胞,大量证据支持其在抗肿瘤中的重要作用。Smyth 等人的开创性研究首次通过基因敲除模型证明,CD8+ T 细胞主要通过细胞毒性效应分子穿孔素(perforin)介导肿瘤细胞杀伤47。此外,Galon 等人确立了免疫评分系统的预后意义,表明肿瘤核心区域中 CD8+ T 细胞的富集程度与患者生存期延长直接相关48。这些发现共同提示,LLT1 高表达患者所表现出的良好预后可能归因于更高的免疫评分,尤其是显著的 CD8+ T 细胞聚集。
在接受PD-1抑制剂联合化疗的患者队列中,LLT1高表达者表现出显著更优的疾病控制,提示其对免疫治疗的反应更佳。LLT1表达水平升高与CD3+ T细胞、CD8+细胞毒性T细胞及辅助性T细胞的浸润增加相关,呈现出“热肿瘤”典型的免疫表型49。已有研究证实,热肿瘤中预先存在但受到抑制的T细胞免疫状态是决定免疫治疗成功的关键因素50。胃癌免疫亚型分析显示,高LLT1表达与免疫炎症型亚型显著相关,而与免疫沙漠型亚型关联较弱,后者通常预示较差的免疫治疗疗效50。这些发现与Tumeh等人在黑色素瘤中的开创性研究结果一致33,该研究指出,在肿瘤侵袭边缘及肿瘤核心区域存在大量CD8+、PD-1+和PD-L1+细胞,可预测更佳的免疫治疗反应。在本研究中,LLT1表达与肿瘤微环境中CD8、PD-1和PD-L1的表达呈正相关,且高LLT1表达可可靠地预测免疫治疗疗效的提升。值得注意的是,LLT1高表达的肿瘤中,LLT1+细胞周围出现CD161+细胞的富集,且PD-1+细胞中CD161表达升高与PD-1阻断治疗带来的更大获益相关。这提示LLT1-CD161轴与PD-1通路之间可能存在功能联系。作为共刺激分子,CD161与PD-1可能协同调控T细胞功能。Mathewson等人的研究支持这一观点,其结果显示靶向CD161可下调PD-1的表达25。CD161与PD-1之间的相互作用可能影响免疫治疗的疗效,而LLT1可能在其中发挥调节作用。重要的是,尽管LLT1与富含免疫细胞的微环境相关,但LLT1-CD161相互作用已被证实具有免疫抑制效应20,21,25。这一表面矛盾的现象提示,高LLT1表达标志着预先存在但受到限制的T细胞群体扩增,而正是这些T细胞的存在构成了免疫治疗显著疗效的基础50。
本研究存在若干局限性。尽管已证实LLT1表达与免疫治疗反应之间的相关性,揭示了其潜在的临床价值,但其潜在的生物学机制仍有待充分阐明。此外,由于缺乏在免疫细胞定量方面具有更高准确性的流式细胞术数据,可能会影响本研究数据的可靠性。
综上所述,肿瘤微环境在癌症进展中发挥着根本性作用,其中免疫细胞浸润是决定肿瘤行为的关键因素。我们的研究结果证实,LLT1 的表达与肿瘤微环境中的免疫细胞浸润密切相关,表明其在胃癌中具有作为预后生物标志物以及免疫治疗疗效预测因子的潜力。
披露
作者声明无潜在利益冲突。
致谢
感谢TCGA数据库提供数据支持。本研究得到国家自然科学基金(项目编号:81974375)和苏州市科技发展计划(SKY2022129)的资助。本研究遵循ARRIVE指南。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 5% BSA 封闭缓冲液 | Beijing Solarbio Science & Technology Co., Ltd.,China | SW3015 | |
| anti-CD11c | ZSGB-BIO,China | 5D11 | |
| 抗 CD161 | Abcam,Cambridge, UK | ab302564 | |
| anti-CD19 | ZSGB-BIO,China | EPl69 | |
| anti-CD3 | ZSGB-BIO,China | LNl0 | |
| 抗 CD31 | ZSGB-BIO,China | UMAB30 | |
| 抗 CD4 | ZSGB-BIO,China | UMAB64 | |
| anti-CD56 | ZSGB-BIO,China | UMAB83 | |
| anti-CD68 | ZSGB-BIO,China | KP1 | |
| 抗 CD8 | ZSGB-BIO,China | EP334 | |
| 抗 CLEC2D | Abcam,Cambridge, UK | ab197341 | |
| 抗 Foxp3 | R&D Systems, USA | 1054C | |
| 抗 IFN-γ | Santa Cruz Biotechnology | sc-74108 | |
| 抗 IL-17 | R&D Systems, USA | MAB317 | |
| 抗 Ki67 | ZSGB-BIO,China | 8H5 | |
| 抗泛细胞角蛋白 | Abcam,Cambridge, UK | ab7753 | |
| 抗 PD-1 | Abcam,Cambridge, UK | ab137132 | |
| 抗 PD-L1 | DAKO,Denmark | 22C3 | |
| 全自动组织芯片仪 | Estigen OU, Tartu, Estonia | Beecher ATA 27 | 该仪器主要用于构建组织微阵列。 |
| 柠檬酸抗原修复液 | Aladdin Biochemical Technology Co., Ltd , China | C752119 | |
| DAB 显色试剂盒 | AiFang Biological,China | AFIHC004 | |
| 数字病理扫描仪 | Ningbo Jiangfeng Bio-Information Technology Co., Ltd,China | KF-FL-020 | 该仪器主要用于扫描免疫组织化学和多重免疫组织化学芯片。 |
| GraphPad Prism 10 | GraphPad Software,USA | v10.0.3 | 该软件用于绘制 Kaplan-Meier 曲线(含 log-rank 统计分析)、科学数据可视化及图像制备。 |
| PBS | Aladdin Biochemical Technology Co., Ltd , China | P743267 | |
| 过氧化物酶封闭液 | AiFang Biological,China | AFIHC012 | |
| 聚合物-HRP 标记的羊抗小鼠/兔二抗 | AiFang Biological,China | AFIHC001 | |
| 六色七标记多重免疫荧光染色试剂盒 | AiFang Biological,China | AFIHC037 | 该试剂盒专为多重免疫组织化学(mIHC)设计。 |
| SPSS | IBM Corporation,USA | IBM SPSS Statistics 27 | 该软件用于数据的统计分析。 |
| R 项目 | R Core Team | V4.4.1 | 所有 R 包、相关代码和原始文件均已上传至公共数据库。 |
| VISIOPHARM 软件 | Visiopharm,Denmark | 2025.02.2.18022 x64 | 该软件主要用于病理图像的定量分析。 |
参考文献
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Suzuki, H., et al. Long-term survival after endoscopic resection for gastric cancer: Real-world evidence from a multicenter prospective cohort. Clin Gastroenterol Hepatol. 21 (2), 307-318.e2 (2023).
- Ma, S., et al. Clinical application and detection techniques of liquid biopsy in gastric cancer. Mol Cancer. 22 (1), 7(2023).
- Ugai, T., et al. Is early-onset cancer an emerging global epidemic? Current evidence and future implications. Nat Rev Clin Oncol. 19 (10), 656-673 (2022).
- Wagner, A. D., et al. Chemotherapy for advanced gastric cancer. Cochrane Database Syst Rev. 8 (8), Cd004064(2017).
- Chao, J., et al. Assessment of pembrolizumab therapy for the treatment of microsatellite instability-high gastric or gastroesophageal junction cancer among patients in the keynote-059, keynote-061, and keynote-062 clinical trials. JAMA Oncol. 7 (6), 895-902 (2021).
- Lee, K. W., et al. Association of tumor mutational burden with efficacy of pembrolizumab±chemotherapy as first-line therapy for gastric cancer in the phase III Keynote-062 study. Clin Cancer Res. 28 (16), 3489-3498 (2022).
- Wainberg, Z. A., et al. Efficacy of pembrolizumab monotherapy for advanced gastric/gastroesophageal junction cancer with programmed death ligand 1 combined positive score ≥10. Clin Cancer Res. 27 (7), 1923-1931 (2021).
- Zhao, J. J., et al. Low programmed death-ligand 1-expressing subgroup outcomes of first-line immune checkpoint inhibitors in gastric or esophageal adenocarcinoma. J Clin Oncol. 40 (4), 392-402 (2022).
- Zhu, Q., Zhang, R., Zhao, Z., Xie, T., Sui, X. Harnessing phytochemicals: Innovative strategies to enhance cancer immunotherapy. Drug Resist Updat. 79, 101206(2025).
- Khosravi, G. R., et al. Immunologic tumor microenvironment modulators for turning cold tumors hot. Cancer Commun (Lond). 44 (5), 521-553 (2024).
- Gibney, G. T., Weiner, L. M., Atkins, M. B. Predictive biomarkers for checkpoint inhibitor-based immunotherapy. Lancet Oncol. 17 (12), e542-e551 (2016).
- Sharma, P., Hu-Lieskovan, S., Wargo, J. A., Ribas, A. Primary, adaptive, and acquired resistance to cancer immunotherapy. Cell. 168 (4), 707-723 (2017).
- Naidoo, J., et al. Toxicities of the anti-PD-1 and anti-PD-L1 immune checkpoint antibodies. Ann Oncol. 27 (7), 1362(2016).
- Yang, M., Lin, W., Huang, J., Mannucci, A., Luo, H. Novel immunotherapeutic approaches in gastric cancer. Precis Clin Med. 7 (4), pbae020(2024).
- Germain, C., et al. Characterization of alternatively spliced transcript variants of clec2d gene. J Biol Chem. 285 (46), 36207-36215 (2010).
- Boles, K. S., Barten, R., Kumaresan, P. R., Trowsdale, J., Mathew, P. A. Cloning of a new lectin-like receptor expressed on human NK cells. Immunogenetics. 50 (1-2), 1-7 (1999).
- Rosen, D. B., et al. Cutting edge: Lectin-like transcript-1 is a ligand for the inhibitory human nkr-p1a receptor. J Immunol. 175 (12), 7796-7799 (2005).
- Germain, C., et al. Induction of lectin-like transcript 1 (llt1) protein cell surface expression by pathogens and interferon-γ contributes to modulate immune responses. J Biol Chem. 286 (44), 37964-37975 (2011).
- Marrufo, A. M., et al. Blocking llt1 (clec2d, ocil)-nkrp1a (cd161) interaction enhances natural killer cell-mediated lysis of triple-negative breast cancer cells. Am J Cancer Res. 8 (6), 1050-1063 (2018).
- Germain, C., et al. Lectin-like transcript 1 is a marker of germinal center-derived B-cell non-Hodgkin's lymphomas, dampening natural killer cell functions. Oncoimmunology. 4 (8), e1026503(2015).
- Roth, P., et al. Malignant glioma cells counteract antitumor immune responses through expression of lectin-like transcript-1. Cancer Res. 67 (8), 3540-3544 (2007).
- Sanchez-Canteli, M., et al. Lectin-like transcript 1 (llt1) checkpoint: A novel independent prognostic factor in hpv-negative oropharyngeal squamous cell carcinoma. Biomedicines. 8 (12), 535(2020).
- Braud, V. M., et al. Expression of llt1 and its receptor CD161 in lung cancer is associated with better clinical outcome. Oncoimmunology. 7 (5), e1423184(2018).
- Mathewson, N. D., et al. Inhibitory CD161 receptor identified in glioma-infiltrating T cells by single-cell analysis. Cell. 184 (5), 1281-1298.e26 (2021).
- Guo, L., et al. Association of increased B7 protein expression by infiltrating immune cells with progression of gastric carcinogenesis. Medicine (Baltimore). 98 (8), e14663(2019).
- Quan, Q., et al. Expression and clinical significance of PD-L1 and infiltrated immune cells in the gastric adenocarcinoma microenvironment. Medicine (Baltimore). 102 (48), e36323(2023).
- Varaden, D., Moodley, J., Onyangunga, O. A., Naicker, T. Morphometric image analysis of placental c-type lectin domain family 2, member d (clec2d) immuno-expression in hiv associated pre-eclampsia. Eur J Obstet Gynecol Reprod Biol X. 3, 100039(2019).
- Chen, S., et al. B7-h3 and CD47 co-expression in gastric cancer is a predictor of poor prognosis and potential targets for future dual-targeting immunotherapy. J Cancer Res Clin Oncol. 149 (18), 16609-16621 (2023).
- Cancer Genome Atlas Research Network. Comprehensive molecular characterization of gastric adenocarcinoma. Nature. 513 (7517), 202-209 (2014).
- Cristescu, R., et al. Molecular analysis of gastric cancer identifies subtypes associated with distinct clinical outcomes. Nat Med. 21 (5), 449-456 (2015).
- Thorsson, V., et al. The immune landscape of cancer. Immunity. 48 (4), 812-830.e14 (2018).
- Tumeh, P. C., et al. Pd-1 blockade induces responses by inhibiting adaptive immune resistance. Nature. 515 (7528), 568-571 (2014).
- Lopez De Rodas, M., et al. Biological and clinical significance of tumour-infiltrating lymphocytes in the era of immunotherapy: A multidimensional approach. Nat Rev Clin Oncol. , (2025).
- Myojin, Y., et al. Multiomics analysis of immune correlatives in hepatocellular carcinoma patients treated with tremelimumab plus durvalumab. Gut. , (2025).
- Marvel, D., Gabrilovich, D. I. Myeloid-derived suppressor cells in the tumor microenvironment: Expect the unexpected. J Clin Invest. 125 (9), 3356-3364 (2015).
- Sautès-Fridman, C., Petitprez, F., Calderaro, J., Fridman, W. H. Tertiary lymphoid structures in the era of cancer immunotherapy. Nat Rev Cancer. 19 (6), 307-325 (2019).
- Ye, Z., et al. Gastric cancer-derived exosomal let-7 g-5p mediated by serpine1 promotes macrophage m2 polarization and gastric cancer progression. J Exp Clin Cancer Res. 44 (1), 2(2025).
- Gajewski, T. F., Schreiber, H., Fu, Y. X. Innate and adaptive immune cells in the tumor microenvironment. Nat Immunol. 14 (10), 1014-1022 (2013).
- Vivier, E., et al. Innate or adaptive immunity? The example of natural killer cells. Science. 331 (6013), 44-49 (2011).
- Xiong, S., Dong, L., Cheng, L. Neutrophils in cancer carcinogenesis and metastasis. J Hematol Oncol. 14 (1), 173(2021).
- Mantovani, A., Locati, M. Tumor-associated macrophages as a paradigm of macrophage plasticity, diversity, and polarization: Lessons and open questions. Arterioscler Thromb Vasc Biol. 33 (7), 1478-1483 (2013).
- Niu, X., et al. Autophagy in cancer development, immune evasion, and drug resistance. Drug Resist Updat. 78, 101170(2025).
- Ikeda, H., et al. Immune evasion through mitochondrial transfer in the tumour microenvironment. Nature. 638 (8049), 225-236 (2025).
- Gabrilovich, D. I., Nagaraj, S. Myeloid-derived suppressor cells as regulators of the immune system. Nat Rev Immunol. 9 (3), 162-174 (2009).
- Pan, Y., et al. The protective and pathogenic role of Th17 cell plasticity and function in the tumor microenvironment. Front Immunol. 14, 1192303(2023).
- Smyth, M. J., et al. Perforin-mediated cytotoxicity is critical for surveillance of spontaneous lymphoma. J Exp Med. 192 (5), 755-760 (2000).
- Galon, J., et al. Type, density, and location of immune cells within human colorectal tumors predict clinical outcome. Science. 313 (5795), 1960-1964 (2006).
- Galon, J., Bruni, D. Approaches to treat immune hot, altered, and cold tumours with combination immunotherapies. Nat Rev Drug Discov. 18 (3), 197-218 (2019).
- Chen, D. S., Mellman, I. Elements of cancer immunity and the cancer-immune set point. Nature. 541 (7637), 321-330 (2017).