本文介绍一种简单快速的检测蜜蜂病原体(如Lotmaria passim和Nosema ceranae)DNA的方法,该方法结合了即用型细胞裂解、重组酶聚合酶扩增以及CRISPR/Cas12a检测技术。
方法文章
现场检测锥虫科寄生虫和Nosema ceranae的DNA:基于碱裂解联合RPA/CRISPR/Cas12a系统的方法
本文内容
勘误通知
Important: There has been an erratum issued for this article. View Erratum Notice
摘要
摘要
早期对微观病原体进行现场检测对于蜜蜂蜂群的有效管理和健康至关重要。目前,蜜蜂病原体分子检测的金标准是qPCR或RT-qPCR。本文介绍一种快速、灵敏且成本低廉的替代方法,可用于野外部署的DNA病原体检测。该方法结合了工蜂腹部组织的直接裂解(无需纯化即可用于扩增)、重组酶聚合酶扩增(RPA)、CRISPR/Cas12a介导的报告探针反式切割以及侧向流动检测技术。我们已在感染以下病原体的蜜蜂中成功验证了该方案: Nosema ceranae 和 Lotmaria passim该方案可使用简单的加热块或在室温下进行,理论上适用于任何基于DNA的蜜蜂病原体或肠道微生物群检测。整个过程约需180分钟,灵敏度与qPCR相当,可检测低至96个寄生虫拷贝/µL。综上所述,该方法为蜜蜂感染的可靠、快速现场诊断提供了一种有前景的工具,无需复杂的实验室设备,非常适合蜂群的现场监测。
引言
蜜蜂是植物授粉的关键物种,在植物繁殖、生物多样性以及粮食安全中发挥着至关重要的作用1。蜜蜂的授粉服务惠及多种具有高经济价值的农作物,每年为全球农业贡献约2350亿至5770亿美元。然而,全球范围内蜜蜂数量的下降已引发严重关切,因其可能对生态稳定性和作物生产力造成严重影响,据估计,在重债贫穷国家已导致约48亿至163亿美元的经济损失2。蜜蜂大规模消失涉及多种因素之间的相互作用,包括农药使用、栖息地丧失、气候变化以及病原体感染,后者涵盖病毒、细菌、真菌和原生生物。
在这些微生物中,Nosema 属是一种微孢子虫真菌,可干扰肠道功能,而锥虫样原生动物寄生虫——尤其是 Lotmaria passim — 在全球范围内的蜜蜂蜂群中广泛分布3,4。近期研究发现,即使 L. passim 感染无临床症状,也可下调与免疫相关的基因表达,并改变蜜蜂的能量代谢,可能在额外压力下削弱其适应能力5。同样,Nosema 属感染会缩短蜜蜂寿命,抑制免疫功能,并扰乱蜂群的觅食行为,导致蜂蜜产量下降和蜂群死亡率升高。此外,Nosema 属与锥虫样原生动物的共感染可能产生协同效应,加剧生理应激并削弱宿主防御能力。这些发现凸显了同时监测多种病原体的重要性。
应对这些威胁需要开发快速且准确的诊断工具,而这又依赖于对这些病原体的生物学特性、传播方式及生存策略的深入理解6。通过传统方法(包括光学显微镜检查和分子扩增技术)检测这些病原体仍然可靠,但存在一定的局限性。已开发出多种检测方法,例如定量PCR(qPCR)、逆转录定量PCR(RTqPCR,需在不同温度下循环扩增)以及等温扩增方法,如环介导等温扩增(LAMP,可在恒定温度下进行),用于真菌、病毒、细菌或原生动物寄生虫的检测6,7,8,9,10。然而,这些方法的实施需要专业设备、经过培训的技术人员以及配备完善的实验室设施,限制了其在野外应用和大规模监测中的实用性。为解决这些问题,已开发出新的分子检测技术——利用重组酶聚合酶扩增(RPA)对DNA靶标进行扩增,并结合基于CRISPR/Cas12a的检测方法,该方法具有快速、特异性强和灵敏度高的优点。据Shao等人11和Xiao等人12所述,该方法在恒温条件下运行,可产生可视化的检测结果,适用于现场或即时检测(point-of-care diagnostics)。
RPA 是一种简单且快速的DNA扩增方法,可在恒定 温度下进行,通常为37 °C至42 °C之间。该方法依赖于重组酶、单链DNA结合蛋白以及具有链置换活性的DNA聚合酶,无需热循环即可实现DNA扩增。由于其速度快、所需设备极少,并可直接使用粗提样本,RPA特别适用于现场检测和实地诊断11,12,13。为了提高特异性,可利用Cas12a核酸酶对RPA扩增产物进行检测,Cas12a同样在相同的温度范围内发挥作用。Cas12a可结合CRISPR向导RNA(gRNA),这种短链RNA能引导Cas12a靶向识别并结合DNA中的互补序列。一旦结合,Cas12a即被激活,并表现出附带的(反式)切割活性,特异性地切割单链DNA(ssDNA)。这一特性使得可使用带有荧光基团或生物素标记的ssDNA报告分子,从而产生荧光信号或可视化信号,包括侧向流动试纸条读数。RPA与CRISPR/Cas12a相结合,构成了一种快速、灵敏且适用于野外或资源有限环境的分子诊断平台12。
为了进一步提高这种分子诊断方法的实用性,我们还采用了一种基于氢氧化钠(NaOH)裂解蜜蜂腹部的简化扩增就绪型细胞裂解(ARCL)方法11,14,无需复杂的样品 前处理和实验室试剂。这种快速核酸提取技术结合等温扩增与CRISPR/Cas12a检测系统,实现了真正可用于野外的检测流程,显著缩短了检测时间并降低了成本。重要的是,该检测方法在质量、高灵敏度和特异性方面均保持了与qPCR相当的水平,而qPCR目前仍是蜜蜂病原体检测的金标准。
在此,我们成功应用该方法检测了蜜蜂体内的Nosema ceranae和L. passim(图1)。我们将该方法与标准的qPCR检测法进行了比较,并利用自然感染样本验证了其性能。研究结果表明,该方法是蜂群健康野外监测的一种实用且可靠的替代方案,在养蜂业的大规模监测和早期干预方面具有广阔的应用前景。
方案
所有操作均按照机构和国家关于无脊椎动物实验的指南进行,并使用验证概念所需的最少数量的蜜蜂。蜜蜂被放置在带有通风装置和适当温度控制的专用蜂箱中运输,并在实验室中于-20 °C保存,直至分析。
1. HotSHOT 碱性细胞裂解法
- 溶液配制
- HotSHOT 裂解缓冲液——配制 100 mL
- 称取 99.993 mg NaOH 和 8.32 mg EDTA,加入 90 mL 蒸馏水并混匀。调节 pH 至 12,定容至 100 mL,然后进行高压灭菌。
- 40 mM Tris-HCl,pH 5
- 向 484.544 mg Tris 中加入 90 mL 去离子水,用 HCl 调节 pH 至 5,再定容至 100 mL。
- HotSHOT 裂解缓冲液——配制 100 mL
- 裂解步骤
- 使用无菌手术刀解剖蜜蜂腹部,并将解剖得到的组织转移至 1.5 mL 微量离心管中。
注意:用于病原体检测时仅使用腹部组织,其余身体部分应丢弃。 - 加入 400 µL HotSHOT 缓冲液,使用一次性研磨棒研磨组织,再通过涡旋振荡进一步均质化。
注意:若将研磨棒在 0.1 N NaOH 溶液中孵育过夜以去污染,随后用双蒸去离子水冲洗,再经过一次高压灭菌并置于培养箱中干燥,则可重复使用。 - 将匀浆液在 95 °C 下孵育 10 分钟以裂解细胞。孵育结束后,立即将离心管置于冰上冷却。
- 为中和反应,加入等体积(400 µL)的 40 mM Tris-HCl,使溶液中 Tris-HCl 的终浓度为 20 mM。
注意:该裂解流程如 图 2 所示。
- 使用无菌手术刀解剖蜜蜂腹部,并将解剖得到的组织转移至 1.5 mL 微量离心管中。
2. 通过RPA进行等温扩增
注意:引物设计借助 eprimer3 软件工具完成(https://www.bioinformatics.nl/cgi-bin/emboss/eprimer3),但也可使用其他引物设计工具。
- 工作溶液的配制
- RPA 引物溶液
- 准备 储备液 按照制造商说明书,将引物配制成100 µM的浓度。例如,将10.0 nmol冻干引物溶于100 µL焦碳酸二乙酯(DEPC)处理水中,并于-20 °C保存。通过将原液按1:10稀释,制备10 µM的工作溶液;在0.2 mL离心管中,将10 µL 100 µM原液与90 µL DEPC处理水混合。将这些工作溶液于-20 °C保存。
- RPA 引物溶液
- RPA 实验方案
- 根据要进行的反应数量配制主混合液。设置一个阴性对照(用DEPC处理水替代ARCL)和一个阳性对照(使用病原体DNA,在本示例中为细胞培养来源的DNA) L. passim 前鞭毛体和蜜蜂检测呈阳性 微孢子虫 种(复数形式). (显微镜下检测到的孢子)表1).
注意:RPA预混液务必在冰上配制,并使用滤芯吸头以避免污染。 - 将46.5 µL主混合液分装至每个0.2 mL离心管中。
- 加入醋酸镁(MgOAc)和模板DNA至各管盖内,体积按指定要求进行 表 2短暂离心试管以混匀内容物并启动RPA反应。
注意:为了提高实验可重复性,使用前应对所有组分进行短暂涡旋振荡和离心。每次实验批次中必须包含阳性和阴性对照,以验证反应的有效性。 - 将样品在 39 °C 下孵育 40 分钟,进行 RPA 扩增反应。
注意:孵育后,RPA 反应产物可直接用于下游检测(例如基于 CRISPR/Cas12a 的检测),详见第 3 节。
- 根据要进行的反应数量配制主混合液。设置一个阴性对照(用DEPC处理水替代ARCL)和一个阳性对照(使用病原体DNA,在本示例中为细胞培养来源的DNA) L. passim 前鞭毛体和蜜蜂检测呈阳性 微孢子虫 种(复数形式). (显微镜下检测到的孢子)表1).
3. 基于CRISPR/Cas12a的病原体DNA检测
注意:RPA 后的检测可通过不同方式进行。在本方案中,我们将详细介绍荧光检测(FAM-TTTTTTTT-MGB)和免疫层析试纸条检测(Biotin-TTTTTTTT-FITC)。
所有操作均应在洁净且无DNA的区域(例如专用的PCR空间)中进行。使用0.5%次氯酸钠溶液清洁工作台面和移液器,随后用70%乙醇处理。始终使用带滤芯的吸头并佩戴手套。DNA或扩增产物的操作区域应与试剂配制区域分开。所有试剂均需在冰上解冻,并在整个配制过程中保持低温条件。
- 工作溶液的配制
- crRNA
注意:Nosema ceranae 和 Lotmaria passim 的 crRNA 设计使用了真核病原体 CRISPR 引导 RNA/DNA 设计工具(EuPaGDT) http://grna.ctegd.uga.edu/。 对于定制化的 crRNA 设计,也可使用其他软件,如 GPP sgRNA 设计器(https://portals.broadinstitute.org/gpp/public/analysis-tools/sgrna-design)或 CHOPCHOP(https://chopchop.cbu.uib.no/)。- 配制 100 µM 的 crRNA 储存液:将每份冻干的 crRNA(10 nmol)用 100 µL 的 DEPC 处理水溶解,并于 -20 °C 保存。配制 1 µM 的工作溶液时,取 1 µL 的 100 µM 储存液与 99 µL 的 DEPC 处理水在 0.2 mL 离心管中混合,进行 1:100 稀释(图 3)。
注意:两种溶液均应保存在 -20 °C。
- 配制 100 µM 的 crRNA 储存液:将每份冻干的 crRNA(10 nmol)用 100 µL 的 DEPC 处理水溶解,并于 -20 °C 保存。配制 1 µM 的工作溶液时,取 1 µL 的 100 µM 储存液与 99 µL 的 DEPC 处理水在 0.2 mL 离心管中混合,进行 1:100 稀释(图 3)。
- Cas12a 的配制
注意:Cas12a 可提供 1 µM 或 100 µM 两种浓度。- 若提供的 Cas12a 浓度为 100 µM,使用前需将其稀释为 1 µM 的工作溶液,即取 1 µL 的 100 µM Cas12a 酶与 99 µL 试剂盒中提供的稀释液混合(1:100 稀释,图 3)。
注意:Cas12a 酶的浓度可根据样本类型进行调整。由于该酶保存于含甘油的稀释液中,加入的酶体积不应超过总反应体积的 20%,以避免可能的抑制效应。
- 若提供的 Cas12a 浓度为 100 µM,使用前需将其稀释为 1 µM 的工作溶液,即取 1 µL 的 100 µM Cas12a 酶与 99 µL 试剂盒中提供的稀释液混合(1:100 稀释,图 3)。
- FAM 和生物素探针溶液的配制
注意:FAM 探针以冻干形式提供。- 配制 100 µM 储存液:按每 1 nmol 探针加入 1 µL DEPC 处理水进行重悬(例如,102 nmol 探针加入 102 µL DEPC 处理水)。储存液保存于 -20 °C。用于检测主混合液时,将储存液按 1:10 稀释(90 µL DEPC 处理水加入 10 µL 100 µM FAM 溶液),得到 10 µM 的工作溶液(图 3)。
- crRNA
- CRISPR/Cas12a 检测流程
- 基于荧光的检测(FAM 探针)
- 在 1.5 mL 微量离心管中,按照 表 3 所述配制反应体系,但不加入扩增产物。
- 使用涡旋振荡器充分混匀,并将混合液分装至 PCR 管中。
- 然后,向每根 PCR 管中加入 4 µL RPA 扩增产物(见步骤 2.2)。
- 将反应体系置于具有荧光读取功能的 PCR 仪中,在 37 °C 孵育 120 分钟,每分钟记录一次荧光值。
- 可选步骤:孵育结束后,将反应液转移至 0.2 mL 管中,使用凝胶成像系统进行可视化检测。
- 使用生物素探针进行侧向流动检测
- 在 1.5 mL 微量离心管中,加入 表 4 所示的组分。
- 按照第 3.2.1 节所述方法配制混合液,混匀后分装至 PCR 板中。最后,向各孔中加入 4 µL 扩增产物。
- 在 37 °C 的 PCR 仪(无需荧光读取功能)或恒温金属块中孵育 120 分钟。
- 将样品转移至 0.2 mL 管中,使用免疫层析试纸条进行检测。具体操作为:向每管中加入 50 µL 运行缓冲液和 10 µL 反应混合液,然后将试纸条直接插入管中。室温孵育 15 分钟,在浸入 10 分钟后读取结果,如 图 3 所示。
- 基于荧光的检测(FAM 探针)
结果
本文介绍了一种快速的现场检测方法,该方法通过碱裂解工蜂腹部,结合RPA扩增及基于CRISPR/Cas12a的荧光和/或侧向层析检测技术。完整工作流程示意图见图3,工蜂腹部HotSHOT碱裂解流程示意图见图4。RPA/CRISPR/Cas12a检测的代表性结果见图5。为检测L. passim和N. ceranae,使用荧光定量PCR仪通过FAM标记探针测定相对荧光单位(RFUs)(图4A)。RPA反应使用10 ng DNA进行,荧光数据以图表形式呈现(图4B)。在检测的最后阶段,使用凝胶成像系统对锥形管中的样品进行拍照(图4C)。对于使用生物素标记探针的检测,样品在恒温金属浴中孵育(图4A);检测溶液按制造商说明书配制,并加至侧向层析试纸条上(图4B、C)。该方法成功实现了对两种蜜蜂病原体的检测。
为了确定RPA反应的效率,我们使用参考试剂盒(见材料表)从蜜蜂中纯化的DNA,将该方法与标准qPCR进行了比较。共对32个蜜蜂样本进行了检测,两种方法均采用靶向β-tubulin基因的引物扩增L. passim,随后通过CRISPR/Cas12a对荧光探针的反式切割进行检测。值得注意的是,qPCR检测出12个样本为阳性,而RPA/CRISPR/Cas12a在16个样本中检测到了L. passim(图5A)。这表明,作为金标准的DNA扩增方法,RPA反应的灵敏度高于PCR。
同样,我们使用浓度范围从 66 ng 到 6 fg 的 L. passim DNA 进行系列稀释,以 L. passim DNA 作为病原体模型,确定了 qPCR 以及与 CRISPR/Cas12a 检测偶联的 RPA 的检测限(LOD)。qPCR 最低可检测到 6 pg,相当于约 96 个寄生虫(图 5B)。相比之下,RPA 的检测限相当于 96 个寄生虫(图 5C,D)。
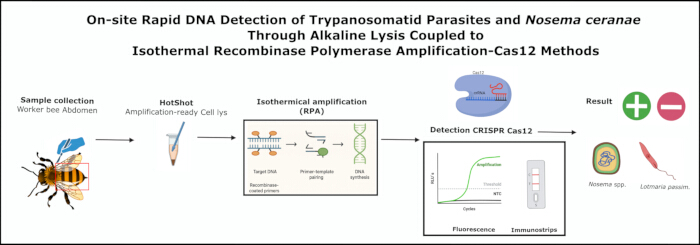
图1:蜜蜂样本中HotSHOT碱裂解联合RPA扩增与Cas12检测方法的总体工作流程。 缩写:RPA = 重组酶聚合酶扩增;CRISPR = 成簇规律间隔短回文重复序列;Cas = CRISPR相关蛋白。 请点击此处查看该图的放大版本。
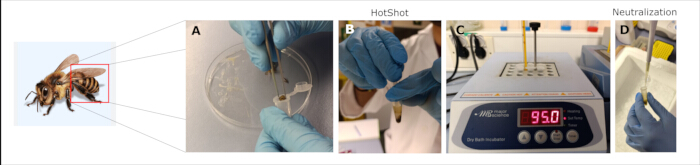
图2:使用HotSHOT缓冲液处理可直接用于扩增的细胞裂解液。(A)用解剖刀切下蜜蜂腹部并放入离心管中;(B)加入400 µL HotShot溶液,用研杵充分研磨匀浆;(C)在金属浴或加热块中95 °C孵育10分钟;(D)加入400 µL 40 mM Tris-HCl溶液进行中和。请点击此处查看该图的高清版本。
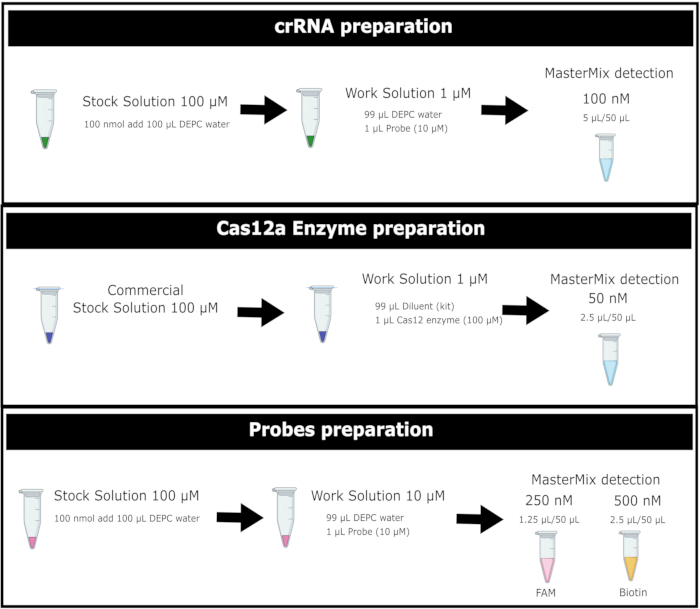
图3:Cas12a酶及FAM和生物素标记报告探针溶液制备的一般工作流程。缩写:DEPC-水 = 焦碳酸二乙酯处理水;crRNA = RNA CRISPR;Cas12 = 一种CRISPR相关蛋白。请点击此处查看该图的放大版本。
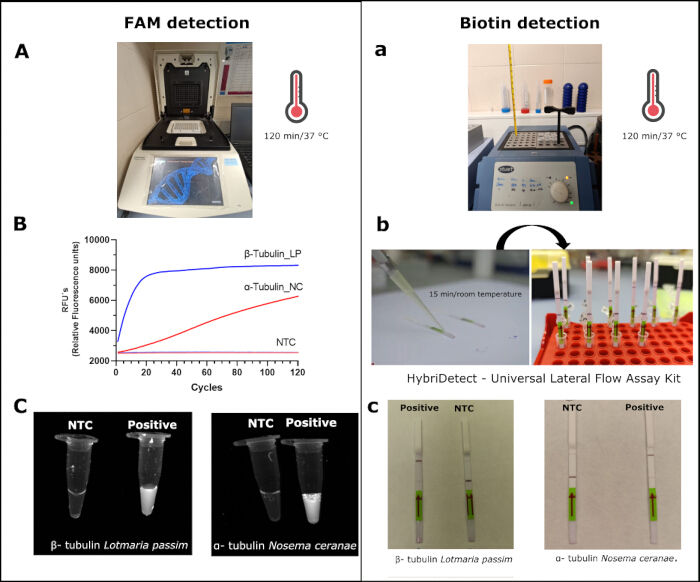
图 4:利用 CRISPR/Cas12a 方法结合 FAM 和生物素探针对 Lotmaria passim 和 Nosema ceranae 的检测。 在 FAM 检测中,(A) 样品正在热循环仪中孵育;(B) L. passim 和 N. ceranae 的相对荧光单位 (RFU);(C) 在成像记录系统下对相同样品进行可视化观察。在生物素检测中,(a) 样品正在金属浴中孵育;(b) 将样品加入试剂盒提供的免疫试纸条中(参见材料表);(c) 孵育后的检测结果。缩写:LP = Lotmaria passim;NC = Nosema ceranae;NTC = 无模板对照;RFU:相对荧光单位 请点击此处查看该图的高清版本。
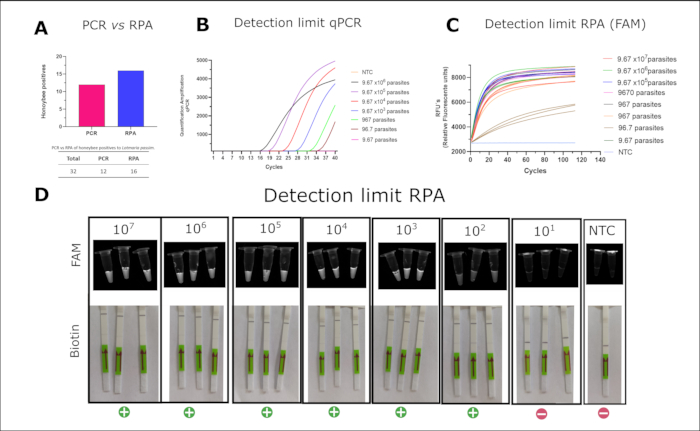
图5:qPCR与RPA的比较及Lotmaria passim的检测限。(A)使用常规qPCR和RPA检测蜜蜂样本中的L. passim。(B)使用SsoFast EvaGreen进行L. passim的qPCR检测限。(C)使用FAM标记探针的CRISPR/Cas12a系统检测L. passim的检测限;(D)在凝胶成像系统下观察相同的CRISPR/Cas12a检测结果(来自C,上排),以及使用生物素标记探针的CRISPR/Cas12a进行横向流动检测的结果(下排)。缩写:RPA = 重组酶聚合酶扩增;qPCR = 定量聚合酶链式反应。请点击此处查看该图的放大版本。
| 试剂 | 终浓度 | 10 µL | 50 µL |
| 2x 反应缓冲液 | 1x | 5 µL | 25 µL |
| dNTPs (10 mM) | 1.8 mM | 1.8 µL | 9 µL |
| 10x Basic E-Mix | 1x | 1 µL | 5 µL |
| 上游引物 (10 µM) | 480 nM | 0.5 µL | 2.4 µL |
| 下游引物 (10 µM) | 480 nM | 0.5 µL | 2.4 µL |
| 20x Core Reaction Mix | 1x | 0.5 µL | 2.5 µL |
| DEPC 水 | -- | 0.7 µL | 3.7 µL |
表1:RPA反应体系组分(终体积分别为10 µL和50 µL)及其对应的工作浓度:
| 试剂 | 终浓度 | 10 µL 反应体系 | 50 µL 反应体系 |
| 280 mM MgOAc | 1.8 mM | 0.5 µL | 2.5 µL |
| DNA | 10–0.1 ng | 1 µL | 2 µL |
表2:RPA反应中每个样本需添加的试剂体积
| 试剂 | [储存浓度] | [终浓度] | 1x (µL) |
| Cas12a enzyme | 1 µM | 50 nM | 2.5 |
| cRNA | 1 µM | 100 nM | 5 |
| FAM probe | 10 µM | 250 nM | 1.25 |
| NEB buffer 10x | 10x | 1x | 5 |
| RPA amplicon | - | - | 4 |
| Water | - | - | 32.25 |
| 总计 | 50 |
表3:采用CRISPR/Cas12a方法进行FAM检测时反应体系中各试剂的浓度。
| 试剂 | [储存浓度] | [终浓度] | 1x (µL) |
| Cas12a enzyme | 1 µM | 50 nM | 2.5 |
| cRNA | 1 µM | 100 nM | 5 |
| Biotin probe | 10 µM | 500 nM | 2.5 |
| NEB buffer 10x | 10X | 1X | 5 |
| RPA amplicon | - | - | 4 |
| Water | - | - | 31 |
| 总计 | 50 |
表4:利用CRISPR/Cas12a方法进行生物素检测反应体系中各试剂的浓度。
讨论
本研究开发并验证了一种用于检测蜜蜂病原体的实用分子诊断方案。该流程整合了可直接用于扩增的细胞裂解、基于RPA的等温扩增以及通过CRISPR/Cas12a实现的高度特异性检测。在所评估的多种化学法DNA提取方法中,HotSHOT碱裂解法在成本、速度和操作简便性方面具有显著优势。该方法无需依赖商业试剂盒,即可高效制备适用于扩增反应的裂解液。该方法已在多种应用中被证实可靠,包括蜜蜂病原体检测14,15,16,17,18。高温碱性条件可破坏细胞膜及DNA链间的氢键,从而释放出适用于下游扩增的单链DNA。尽管该方法可能存在PCR抑制物残留或中和不完全等潜在局限性,但碱裂解法已被证明在多种生物中均有效,包括古菌19、细菌20和真菌14,并可兼容PCR、qPCR以及LAMP21和RPA12等等温扩增技术。
在我们的实验中,RPA/CRISPR/Cas12a 系统表现出高度的特异性和满意的灵敏度。通过使用靶向每种病原体保守区域的 crRNA,能够实现准确鉴定,且对宿主 DNA 或无关微生物无交叉反应。此前该系统在蜜蜂中的应用已实现对畸形翼病毒 A 型和 B 型的检测限分别约为 6.5 × 10² 和 6.2 × 101 拷贝/µL8,12。然而,这些检测方法尚未针对现场条件下快速提取 RNA 和/或 DNA 的情况进行优化。在本研究中,我们对该方法进行了专门改进,用于检测 DNA 病原体—— N. ceranae 和 L. passim,从而实现适用于野外现场的检测。
我们的结果表明,RPA/CRISPR/Cas12a 在识别阳性样本方面优于传统 PCR(16 例 vs. 12 例),这可能是由于 CRISPR/Cas12a 的附属切割活性增强了信号,即使在粗裂解液中仍保持有效。相较于基于 PCR 的方法,其灵敏度的提升已在多种病原体模型中被报道,例如 Yersinia enterocolitica22、Diaporthe aspalathi23 和 Vibrio vulnificus24。此外,在实验室条件下,定量分析显示 RPA/CRISPR/Cas12a 与 qPCR 具有相当的检测下限(约 96 个寄生虫拷贝/µL)。这表明该方法具有良好的性能,且由于 crRNA 提供了额外的序列识别能力,其特异性可与 TaqMan qPCR 相媲美。此外,该检测仅需最少的设备,不依赖于热循环仪或荧光检测仪,并可使用侧向流动试纸条进行可视化检测,该方法此前已在其他病原体检测中开发应用25,26。这简化了结果判读,使该检测对现场技术人员和养蜂人具有高度可及性。
当前方案可获得可靠的结果,但仍有进一步改进的空间。若将该检测方法用于靶向其他基于DNA的蜜蜂病原体,仅需重新设计RPA引物和crRNA即可。对于RNA病毒,可如先前针对多种病毒性传染病(包括蜜蜂中的DWV-A和DWV-B15)所报道的那样,在本方案中增加逆转录步骤(RT-RPA)26,27,28。此外,目前总检测时间约为180分钟,通过优化各步骤的操作时间,有望进一步缩短。另一种替代方案是采用“一步法”RPA/CRISPR/Cas12a,即将所有RPA与CRISPR/Cas12a试剂整合于单一反应体系中。这种一体化方法已成功应用于多种病毒和细菌病原体的检测25,26,29。尽管目前Cas12a检测主要使用单链DNA(ssDNA)探针并已得到广泛推广,但已有研究报道Cas12a也具备反式剪切双链DNA(dsDNA)探针的能力,鉴于dsDNA具有更高的稳定性,这一特性值得进一步测试验证30。若能实现,将有望使检测结果在30分钟内获得,进一步提升其在实地检测中的适用性。此外,将RPA和CRISPR试剂冻干化,也有助于提高试剂稳定性,避免对冷链运输的依赖,从而更适用于偏远或资源有限的环境。已有研究证实,使用冻干化的RPA/CRISPR/Cas12a试剂可成功检测猪胸膜肺炎放线杆菌(Actinobacillus pleuropneumonia)31以及多种呼吸道感染病毒28,32,包括SARS-CoV-226。
综上所述,本研究提出了一种完全适用于野外、低成本且便携的分子诊断平台,用于蜜蜂病原体的检测。当前方法的整个流程大约需要180分钟,但其总耗时仍有进一步优化的空间。尽管本研究以L. passim和Nosema spp.作为概念验证的目标病原体,但该系统具有模块化设计,可灵活适配多种基于DNA的蜜蜂病原体(例如Paenibacillus larvae或Melisococcus plutonious),也可用于监测特定的共生微生物。该方法拓展了分子诊断技术在传统实验室环境之外的应用,有助于养蜂业中的早期干预策略。更广泛而言,我们的结果证明了基于CRISPR的技术在适用于野外现场诊断场景中的可行性。
披露
作者无任何利益冲突需要披露。
致谢
本工作由以下资助项目支持 "西班牙格拉纳达省养蜂场蜜蜂疾病的快速监测新分子工具" (GOPG-GR-23-0002)项目,系根据安达卢西亚政府欧洲创新协会(AEI)农业生产力与可持续性行动小组资助计划所设立。同时感谢西班牙知识生成与研发创新体系科学技术强化计划的支持,该项目编号为PID2021-126938OB-I00,由MCIN/AEI/10.13039/501100011033资助。 "欧洲区域发展基金/欧盟"我们衷心感谢格拉纳达小型养蜂人协会(Asociación de Pequeños Apicultores de Granada,APAG)和格拉纳达农业食品合作社(Cooperativas Agroalimentarias de Granada,FAECA)提供的帮助与资源支持。本研究是 D. Pedro García Olmedo 博士论文的一部分,所属博士项目为系统与基础生物学(格拉纳达大学,UGR)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 mL 无 DNA酶和RNA酶的Eppendorf离心管 | Axygen | MTC-02-C | |
| 1.5 mL 无 DNA酶和RNA酶的Eppendorf离心管 | Axygen | MTC-150-C | |
| 10 μL 低吸附带滤芯吸头 | LabClinics | 5-063-P5-0 | |
| 100 μL 低吸附带滤芯吸头 | LabClinics | 5-120-P5-0 | |
| 1000 μL 低吸附带滤芯吸头 | LabClinics | 5-203-P4-0 | |
| BH-200 系列 Stuart 干式恒温加热器 | Cole-Parmer | EW-36610-00 | |
| DEPC处理水 | Ambicon | AM9906 | |
| EDTA | Sigma-Aldrich | 798681 | |
| EnGen Lba Cas12a (Cpf1) | New England Biolabs | M0653T | |
| Sigma-Aldrich | Sigma-Aldrich | 64-17-5 | |
| HCl | Sigma-Aldrich | 7647-01-0 | |
| 微型离心管研磨杵 | Fisherbrand | 12141364 | |
| Milenia GenLine HybriDetect | Milenia | MGHD 1 | |
| NaOH | Sigma-Aldrich | 221465 | |
| RPA试剂盒 TwistAmp Liquid Basic | TwistAmp | TALQBAS01 | |
| 手术刀片 | Swann-Morton | 201 | |
| 单通道移液器 PIPETMAN P1000L 微量移液器 金属弹射头 | Gilson | F144059M | |
| 单通道移液器 PIPETMAN P100L 微量移液器 金属弹射头 | Gilson | F144057M | |
| 单通道移液器 PIPETMAN P10L 微量移液器 金属弹射头 | Gilson | F144055M | |
| 次氯酸钠 | |||
| Touch 实时荧光定量PCR检测系统 | BioRad | CFX96 | |
| Tris-HCl | Sigma-Aldrich | T1503 | |
| TwistAmp Liquid Basic | Twist | TALQBAS01 |
参考文献
- Goulson, D., Nicholls, E., Botías, C., Rotheray, E. L. Bee declines driven by combined stress from parasites, pesticides, and lack of flowers. Science. 347 (6229), 1255957(2015).
- Murphy, J. T., Breeze, T. D., Willcox, B., Kavanagh, S., Stout, J. C. Globalisation and pollinators: pollinator declines are an economic threat to global food systems. People and Nature. 4 (3), 773-785 (2022).
- Zattara, E. E., Aizen, M. A. Worldwide occurrence records suggest a global decline in bee species richness. One Earth. 4 (1), 114-123 (2021).
- Carreira de Paula, J., et al. Promastigote EPS secretion and haptomonad biofilm formation as evolutionary adaptations of trypanosomatid parasites for colonizing honeybee hosts. NPJ Biofilms Microbiomes. 10 (1), 27(2024).
- Requier, F., et al. First large-scale study reveals important losses of managed honeybee and stingless bee colonies inLatin America. Sci Rep. 14 (1), 10079(2024).
- Babin, A., Schurr, F., Rivière, M. P., Chauzat, M. P., Dubois, E. Specific detection and quantification of three microsporidia infecting bees, Nosema apis, Nosema ceranae, and Nosema bombi, using probe-based real-time PCR. Eur J Protistol. 86, 125935(2022).
- Cameron, T. C., Wiles, D., Beddoe, T. Current status of loop-mediated isothermal amplification technologies for the detection of honeybee pathogens. Front Vet Sci. 8, 659683(2021).
- Schurr, F., et al. Validation of quantitative real-time RT-PCR assays for the detection of six honeybee viruses. J Virol Methods. 270, 70-78 (2019).
- Xu, G., et al. Triplex real-time PCR for detection of Crithidia mellificae and Lotmaria passim in honeybees. Parasitol Res. 117 (2), 623-628 (2018).
- D'Alvise, P., Seeburger, V., Gihring, K., Kieboom, M., Hasselmann, M. Seasonal dynamics and co-occurrence patterns of honeybee pathogens revealed by high-throughput RT-qPCR analysis. Ecol Evol. 9 (18), 10241-10252 (2019).
- Shao, G., Zhu, X., Hua, R., Chen, Y., Yang, G. Development of a copro-RPA-CRISPR/Cas12a assay to detect Echinococcus granulosus nucleic acids isolated from canine feces using NaOH-based DNA extraction method. PLoS Negl Trop Dis. 18 (12), e0012753(2024).
- Xiao, Y., Fei, D., Li, M., Ma, Y., Ma, M. Establishment and application of CRISPR-Cas12a-based recombinase polymerase amplification and a lateral flow dipstick and fluorescence for the detection and distinction of deformed wing virus types A and B. Viruses. 15 (10), 2041(2023).
- Li, Z., et al. Cas-OPRAD: a one-pot RPA/PCR CRISPR/Cas12 assay for on-site Phytophthora root rot detection. Front Microbiol. 15, 1390422(2024).
- Osmundson, T. W., Eyre, C. A., Hayden, K. M., Dhillon, J., Garbelotto, M. M. Back to basics: an evaluation of NaOH and alternative rapid DNA extraction protocols for DNA barcoding, genotyping, and disease diagnostics from fungal and oomycete samples. Mol Ecol Resour. 13 (1), 66-74 (2013).
- Truett, G. E., et al. Preparation of PCR-quality mouse genomic DNA with hot sodium hydroxide and Tris (HotSHOT). BioTechniques. 29 (1), 52-54 (2000).
- Klintschar, M., Neuhuber, F. Evaluation of an alkaline lysis method for the extraction of DNA from whole blood and forensic stains for STR analysis. J Forensic Sci. 45 (3), 669-673 (2000).
- Galanis, A., et al. Bee foraging preferences, microbiota and pathogens revealed by direct shotgun metagenomics of honey. Mol Ecol Resour. 22 (7), 2506-2523 (2022).
- Xiang, Z., et al. A simple alkali lysis method for Plasmodium falciparum DNA extraction from filter paper blood samples. Mol Biochem Parasitol. , 254(2023).
- Shwani, A., Zuo, B., Alrubaye, A., Zhao, J., Rhoads, D. D. A simple, inexpensive alkaline method for bacterial DNA extraction from environmental samples for PCR surveillance and microbiome analyses. Appl Sci. 14 (1), 141(2024).
- Fowler, E. V., et al. Development of a cost-effective, morphology-preserving method for DNA isolation from bulk invertebrate trap catches: tephritid fruit flies as an exemplar. PLoS One. 18 (2), e0281759(2023).
- Yuan, J., et al. CRISPR-Cas12a-mediated hue-recognition lateral flow assay for point-of-need detection of Salmonella. Anal Chem. 96 (1), 220-228 (2024).
- Xiao, Y., et al. Ultra-sensitive and rapid detection of pathogenic Yersinia enterocolitica based on the CRISPR/Cas12a nucleic acid identification platform. Foods. 11 (14), 2160(2022).
- Dong, J., et al. Comparative evaluation of PCR-based, LAMP and RPA-CRISPR/Cas12a assays for the rapid detection of Diaporthe aspalathi. Int J Mol Sci. 25 (11), 5773(2024).
- Zhang, X., et al. CRISPR/Cas12a combined with recombinase polymerase amplification for rapid and sensitive detection of Vibrio vulnificus in one tube. Acta Biochim Biophys Sin. 55 (2), 322-326 (2023).
- Li, P. R., et al. An RPA-assisted CRISPR/Cas12a assay combining fluorescence and lateral flow strips for the rapid detection of enterotoxigenic Bacillus cereus. J Agric Food Chem. 72 (24), 14000-14010 (2024).
- Sun, Y., et al. One-tube SARS-CoV-2 detection platform based on RT-RPA and CRISPR/Cas12a. J Transl Med. 19 (1), 74(2021).
- Aman, R., et al. iSCAN-V2: a one-pot RT-RPA-CRISPR/Cas12b assay for point-of-care SARS-CoV-2 detection. Front Bioeng Biotechnol. 9, 800104(2022).
- Peng, R., Lu, Z., Liu, M., Hu, F. RT-RPA-assisted CRISPR/Cas12a for rapid and multiplex detection of respiratory infectious viruses based on centrifugal microfluidics. Sens Actuators B Chem. 399, 134838(2024).
- Liu, Y., et al. One-tube RPA-CRISPR Cas12a/Cas13a rapid detection of methicillin-resistant Staphylococcus aureus. Anal Chim Acta. 1278, 341757(2023).
- Nguyen, L. T., Smith, B. M., Jain, P. K. Enhancement of trans-cleavage activity of Cas12a with engineered crRNA enables amplified nucleic acid detection. Biochemistry. 59 (17), 1474-1481 (2020).
- Hao, J., et al. Application of a lyophilized CRISPR/Cas12a and RPA assay for rapid detection of Actinobacillus pleuropneumoniae. Microchem J. 206, 111443(2024).
- Lin, C., et al. A universal all-in-one RPA-Cas12a strategy with de novo autodesigner and its application in on-site ultrasensitive detection of DNA and RNA viruses. Biosens Bioelectron. 239, 115609(2023).
重印与许可
勘误
Formal Correction: Erratum: On-site DNA Detection of Trypanosomatid Parasites and Nosema ceranae Through Alkaline Lysis Coupled to RPA/CRISPR/Cas12a System
Posted by JoVE Editors on 8/14/2025. Citeable Link.
This corrects the article 10.3791/68874
