本文展示了在雌雄同体斯氏线虫(Steinernema hermaphroditum)中利用CRISPR-Cas9进行基因组编辑的技术,该线虫是一种昆虫病原性(EPN:寄生昆虫的)线虫,正逐渐成为一种新兴的遗传学研究模型。该技术可用于构建突变体,有助于阐明与线虫生物学中互利共生和寄生性共生相关的基因功能。
本文内容
摘要
摘要
斯氏线虫属(Steinernema)和异小杆线虫属(Heterorhabditis)的昆虫病原线虫分别与共生细菌致病杆菌属(Xenorhabdus)和发光杆菌属(Photorhabdus)维持互惠共生关系。这些线虫-细菌组合可侵染并杀死主要来自鳞翅目(Lepidoptera)和鞘翅目(Coleoptera)的昆虫幼虫,构成一个易于研究的三界互作体系,可用于解析互惠共生与寄生关系的分子基础。充分开发利用该模型的关键一步是在昆虫病原线虫中建立稳定且可跨代遗传的遗传 工具。本文中,我们展示了在新兴模式生物——雌雄同体斯氏线虫(Steinernema hermaphroditum)中建立的一种可靠的CRISPR–Cas9基因组编辑平台。该物种易于在体内(in vivo)和体外(in vitro)培养,并且对性腺显微注射具有高度可操作性。尤为重要的是,其雌雄同体的繁殖方式极大地简化了纯合突变系的建立与维持。我们提供了一套详细的实验方案,通过显微注射递送Cas9核糖核蛋白复合物,实现高效、靶向的基因敲除。作为概念验证,我们对保守的肌肉相关基因unc-22进行了修饰,获得了特征性的抽搐表型,证实了该系统中靶向诱变的有效性。该CRISPR–Cas9平台为在S. hermaphroditum中开展稳定的遗传操作(例如外源基因表达)打开了大门,并为拓展至其他具有农业与生态重要性的昆虫病原线虫物种提供了可借鉴的技术框架。
引言
昆虫病原线虫(EPNs)是一类能够杀死昆虫的寄生性线虫,其与细菌共生体形成物种特异性的互利共生关系1。EPNs 包含两个科:斯氏线虫科(Steinermatidae)和异小杆线虫科(Heterorhabditidae),分别与革兰氏阴性菌Photorhabdus 属和Xenorhabdus 属共生2,3。在斯氏线虫属(Steinernema)线虫的自由生活感染期幼虫阶段(IJ),Xenorhabdus 细菌被储存在线虫肠道内的一个称为“ receptacle”( receptacle,贮菌器)的特化结构中;当线虫侵入昆虫血腔后,细菌被释放出来,随后大量增殖,并通过败血症杀死昆虫宿主3,4。在这种互利共生关系中,细菌产生抗菌和杀虫化合物,以抵御昆虫宿主的免疫反应,并为线虫提供营养支持5。作为回报,细菌则得益于线虫宿主提供的保护,避免受到环境中其他微生物的侵害,并借助线虫实现向新的昆虫猎物的传播6,7。
在过去的几十年中,Steinernema-Xenorhabdus 共生体系已被确立为研究寄生与互利互作多个方面的有力实验系统,例如昆虫宿主搜寻行为3、细菌在线虫宿主体内的定殖8,以及促进共生细菌在线虫与昆虫宿主动物之间转换的适应性行为9。EPNs 在土壤可持续性方面也具有重要意义,并被用作有机害虫防治剂以促进农业生产力10,11。
尽管共生细菌的遗传工具已迅速发展 Xenorhabdus 和 Photorhabdus12,EPN中一致的遗传工具一直较为稀缺。性腺显微注射已在两种 异小杆线虫属 和 斯氏线虫属 线虫13,14此前,性腺显微注射在 Heterorhabditis bacteriophora 已用于在子一代中持续递送双链RNA以实现基因敲低13,15最近,CRISPR-Cas9 基因组编辑在 斯氏线虫属 已开发并递送 通过 性腺显微注射,并产生了精确、稳定且可遗传的突变14.
一种斯氏线虫属(Steinernema spp.)物种——S. hermaphroditum,已被证明具有高度可操作性,是一种极具潜力的新兴遗传学模式生物4,14。该物种最初从印度尼西亚的土壤中分离获得16,后在 印度被再次分离17。S. hermaphroditum 始终表现为雌雄同体,每代仅有少量雄性个体,这两个特征有利于借鉴经典模式线虫 C. elegans 的遗传学工具4。此外,S. hermaphroditum 的基因组已完成测序并组装至染色体水平,这简化了潜在 Cas9 靶位点的鉴定以及引物设计工作18。
在对EPN进行显微注射时,通过从石英毛细管拉制而成的针头,将含有适当试剂(如dsRNA、Cas9蛋白或向导RNA)的注射混合物注入同步体性线虫生殖腺。via该方法,适当的注射体积和压力可在生殖腺臂内产生可见的液体“流动”。由于这些线虫具有一对由共享同一细胞质的生殖系细胞核组成的合胞体生殖腺19,这种显微注射方法可在细胞质分裂发生前,使多个生殖细胞暴露于编辑作用之下,而细胞质分裂会将生殖系细胞核分隔形成发育中的卵母细胞20。尽管生殖腺显微注射作为一种稳定的技术已应用于多种非模式线虫物种的遗传调控14,21,22,23,24,25,但为了确保 递送的成功率和高效率,必须根据每种线虫物种相应的生殖腺结构、生活阶段及生理状态调整注射技术。注射后的恢复技术以及突变品系的维持同样重要,以确保该技术具有成本效益。
本研究展示了一种CRISPR-Cas9基因组编辑方案 斯氏线虫属 Hermaphroditum 种性腺显微注射法在年轻成虫阶段进行,该阶段对高压显微注射具有较强耐受性,并易于接受基因编辑14此外,还提供了关于如何维持可遗传且稳定的突变品系的详细方法, 通过 通过昆虫进行冷冻保存与扩增.
方案
所用试剂和设备列于材料表中。
1. 显微注射前的线虫准备
- 制备接种细菌的线虫生长培养基(NGM)平板 Xenorhabdus griffiniae 和 Comamonas aquaticus.
注意:培养 S. hermaphroditum 线虫与其天然共生细菌 Xenorhabdus griffiniae 显微注射前培养线虫以促进其生长,并在细菌上回收注射后的线虫 Comamonas aquaticus 提高注射后的存活率14.- 划线接种细菌 X. griffiniae 在LB-丙酮酸琼脂平板(2.5 g酵母提取物,5 g胰蛋白胨,2.5 g氯化钠,0.5 g丙酮酸钠,7.5 g琼脂溶于500 mL水中)上培养,并于30 °C过夜孵育。
- 划线接种细菌 C. aquaticus 在LB琼脂平板上培养,并于37 °C过夜孵育。
- 挑取单个细菌菌落 接种于避光的LB液体培养基(每升水中含5 g酵母提取物、10 g胰蛋白胨、5 g氯化钠)中,于有氧条件下培养细菌过夜(最长时间16小时)。 (X. griffiniae 在 30 °C 下 C. aquaticus 在 37 °C 下。
- 制备NGM琼脂:将3 g NaCl、2.5 g蛋白胨和20 g琼脂加入975 mL水中,再加入1 mL胆固醇、1 mL 1 M CaCl₂、1 mL 1 M MgSO₄,定容至1 L。2,1 mL 1 M MgSO₄4,25 mL 1 M KPO4 高压灭菌后加入)每个60 mm × 15 mm培养皿加入10 mL。
- 种子细菌:在每块NGM琼脂平板上加入几滴过夜培养的细菌菌液,轻轻晃动平板,使菌液均匀分散成菌斑。
- 将接种细菌的NGM平板在室温下孵育,使琼脂干燥并促进细菌生长。
注意: X. griffiniae-接种后的培养板应尽快使用; C. aquaticus 平板可在室温下保存1至2周。
- 线虫发育阶段鉴定
注意:在注射前一晚挑选雌雄同体的 J3 期幼虫,于注射当天选择年轻成虫。- 挑选或分段 S. hermaphroditum 线虫转移到已接种的制备好的NGM平板上 X. griffiniae在25-28 °C温度下孵育,以获得最佳生长效果。
- 显微注射前一晚,挑选处于J3期的雌雄同体线虫,转移到接种了大肠杆菌的NGM琼脂平板上 X. griffiniae 如图所示 图1A,通过线虫的大小以及生殖腺和阴门的形态来估计其J3阶段。
- 显微注射当天,挑选年轻成虫期的雌雄同体线虫(图1B).
2. 显微注射用CRISPR-Cas9的制备
- 选择 CRISPR crRNA 及试剂储存
- 利用 BlastP(PRJNA982879)从参考基因组 Steinernema hermaphroditum 中提取目标基因序列。
- 尽可能选择早期编码外显子序列,优先选择第一个外显子,并将序列输入 CRISPRScan,使用默认设置26生成可能的 CRISPR RNA(crRNA)列表。
- 将排名靠前的 crRNA 与 S. hermaphroditum 基因组进行 Blast 比对,确保仅选择唯一性 crRNA。
注:可选步骤:在设计 crRNA 前,可通过 PCR 扩增和 Sanger 测序确认基因组目标区域的序列,以确保 crRNA 的高效结合。 - 将 CRISPR RNA(crRNA)和通用反式激活 CRISPR RNA(tracrRNA)分别以 100 µM 浓度溶于双链缓冲液中,于 -80 °C 保存。
- Cas9 蛋白以 10 mg/mL 浓度在 -20 °C 或 -80 °C 保存。1 M KCl 于 4 °C 保存。
- 制备用于显微注射的 2% 琼脂糖垫(改编自 Berkowitz 等人27)
- 使用微波炉加热使 2% 琼脂糖在水中融化。
- 将 50 µL 融化的琼脂糖转移至盖玻片(48 x 60 mm,1 号)上,立即用另一张盖玻片覆盖琼脂糖液滴。
- 室温下静置干燥 20 分钟,随后移除上层盖玻片,并标记琼脂糖垫正面。
注:可选步骤:可将琼脂糖垫在 37 °C 下烘烤过夜,以进一步干燥。 - 2% 琼脂糖垫可在室温下保存数月甚至数年。
- 玻璃微针制备
- 使用激光毛细管拉制仪,按照以下参数制备石英玻璃微针。本研究所用拉针仪的推荐程序如下:加热温度:700,毛细管:4,速度:60,延迟:145,拉力:175。
- 在注射前或提前拉制石英微针(外径:1.0 mm,内径:0.7 mm),并将其存放于移液器储存盒中。
注:也可使用硼硅酸盐玻璃微针(外径:1.2 mm,内径:0.68 mm)进行注射,效果良好。请注意,不同规格的微针需匹配相应尺寸的微针夹持器。
3. 线虫的 CRISPR-Cas9 显微注射及注射后的恢复
- 制备CRISPR-Cas9显微注射混合物(改编自Wang等)28)
- 通过将选定的crRNA与通用tracrRNA按1:1比例混合,制备新鲜的引导RNA双链体,即在PCR管中按总crRNA与tracrRNA的等量比例混合:
crRNA #1 (100 µM) - 1.5 µL
crRNA #2 (100 µM) - 1.5 µL
tracrRNA (100 µM) - 3.0 μL
注意:如果使用共CRISPR(co-CRISPR),crRNA #1 靶向的是 unc-22 标记基因,而crRNA #2可替换为靶向另一个目的基因的序列。 - 将PCR管置于热循环仪中,94 °C孵育2分钟,然后冷却至室温。
- 将以下成分混合以配制注射混合液,室温孵育5分钟:
Cas9(10 mg/mL)- 2 µL
1M KCl - 0.58 µL
gRNA 双链(来自步骤 3.1.1)— 2.7 µL - 轻弹PCR管三次混匀,随后在小型离心机中短暂离心(10–15秒)以收集管内液体。最后一次混匀后,延长离心时间,最长可达1分钟。
- 通过将选定的crRNA与通用tracrRNA按1:1比例混合,制备新鲜的引导RNA双链体,即在PCR管中按总crRNA与tracrRNA的等量比例混合:
- 装载并折断针头
- 使用微量加样头吸取1-2 µL注射混合液,加载至针头中。
- 将针头安装到移液器(针头) holder 上,然后通过将针头在涂有卤代烃油的双面胶带上拖动以打开针尖。使用以下方法测试针头开口 清洁 显微注射仪的功能。
- 向年轻成年线虫的合胞体性生殖腺进行显微注射
- 将一小滴卤代烷油转移至2%琼脂糖垫上。
- 在解剖立体显微镜下,使用一根细(柔软)的铂丝挑取一只年轻的成年雌雄同体线虫,并将其在M9缓冲液(每升含3 g KH₂PO₄、6 g Na₂HPO₄、5 g NaCl、1 mM MgSO₄)中清洗2PO4, 11.3 g Na2HPO4,5 g NaCl,加入1 ml 1 M MgSO₄4 添加至高压灭菌后)以去除细菌(参见年轻成虫线虫 图1).
- 将洗涤后的线虫转移至琼脂糖垫上,并置于卤代烃油滴中。用柔软的铂金丝轻轻刷拭线虫,直至其被固定不动。
- 将琼脂糖垫小心放置在显微注射台上。生殖腺合胞体的方向应朝向显微注射针,角度约为45°。先从5倍放大开始,然后切换至20倍和40倍放大进行注射。
- 确保针头穿透合胞体,然后使用 清洁 功能的 显微注射仪 以约99 psi的压力注入混合液,直至观察到生殖腺中出现清晰的液体流动,以确保试剂能够进入生殖腺合胞体中的生殖细胞。
- 如果第二条性腺臂可及,则移动载物台,使针头对准第二条性腺臂进行注射。
- 注射后线虫回收
- 注射后立即在琼脂糖垫上用 1–2 µL M9 缓冲液重悬已注射的动物。
- 使用一根细的铂金丝,将注射后的线虫从琼脂糖垫上挑起,并用M9缓冲液洗去油滴。
- 在铺有细菌菌苔的 NGM 平板上回收线虫 C. aquatica 细菌(NGM 平板制备:见步骤 1.1),可提高线虫注射后的存活率1425 °C 下孵育过夜。
- 第二天,将每只注射过的线虫(P0)分离至分别接种有大肠杆菌的NGM平板上 X. griffiniae让P0代动物过夜产生F1代子代(通过产卵或套袋法),用于表型分析和基因型鉴定(见步骤4)。
4. 筛选以确认CRISPR-Cas9介导的基因敲除
- 基于尼古丁的(注意)筛选F1代个体的抽搐表型 unc-22 作为共CRISPR标记
- 将注射后的P0代动物产生的F1代子代转移至2%尼古丁溶液的液滴中。
- 从尼古丁斑点中挑选一只单独抽搐的动物,并立即将其转移至接种有大肠杆菌的NGM琼脂平板上恢复 X. griffiniae将每只出现抽搐表型的F1代个体分离至单独的培养板中,使其繁殖产生用于基因分型的F2代后代(见步骤4.2)。
- 基因分型
- 从每条F1抽搐系中选取八只F2或F3子代进行基因分型。这些个体很可能同时包含+/突变 杂合子和 mut/mut 纯合子动物。
- 通过添加新鲜配制DNA提取缓冲液 20 µL 蛋白酶K(10 mg/mL)加入180 µL 蠕虫裂解缓冲液(50 mM KCl,10 mM Tris pH 8.0,2.5 mM MgCl₂)20.45% NP-40,0.45% Tween 20,0.01% 明胶
- 将线虫加入10 µL DNA提取缓冲液中 在PCR管中,65 °C孵育10分钟,然后95 °C孵育15分钟以提取基因组DNA。
- 使用步骤4.2.2中获得的1–2 µL裂解液,按照制造商说明书通过PCR扩增Cas9靶向区域,对线虫进行基因型鉴定。若可能,应确保Cas9切割位点与引物结合位点之间留有足够距离(至少300 bp),以防发生大片段缺失。
注意:在测序前可使用琼脂糖凝胶电泳来确认扩增是否成功。 - 按照制造商的说明纯化PCR产物,以确保准确的Sanger测序迹线分析。
- 使用Sanger测序法对步骤4.2.4中产生的PCR扩增产物进行测序,并利用ICE程序分析色谱图29.
- 如果在步骤4.2.6中确认了突变等位基因,则返回原始的F1颤动平板,挑取至少八条雌雄同体线虫至各自的平板中。让每条线虫单独产生成年子代,随后对子代进行群体基因型鉴定以确认纯合性。纯合品系可按照步骤5所述方法在实验室中进行保种。
5. CRISPR 品系的维持
注意:线虫保种主要有三种方法,包括基于海藻糖-DMSO 的冷冻保存法(步骤 5.1)、通过大蜡螟幼虫进行的 体内 传代法(步骤 5.2),以及在 NGM 平板上进行的 体外 培养维持法(步骤 5.3)。
- 海藻糖-DMSO 冷冻保存野生型和突变品系
注意:采用海藻糖-DMSO 冷冻保存方法4, S. hermaphroditum 可在 -80 °C 长期稳定保存,并能在 NGM 培养基上恢复培养。线虫保存于 2 mL 冻存管中。使用聚苯乙烯泡沫盒进行逐步降温,可实现最佳冻存效果。- 培养 S. hermaphroditum 在接种有 X. griffiniae (参见步骤1.1),直至群体中大部分为J1阶段或正在形成囊状的两性个体。
注意:避免使用感染期幼虫(IJ),因为它们采用此方法冷冻效果不佳。 - 从NGM琼脂平板上用M9缓冲液冲洗线虫,并收集至15 mL圆锥形离心管中,液面高度不超过5 mL。通过离心浓缩样品 (1372 x g 1-2分30秒即可。
- 移除上清液,加入5 mL室温海藻糖-DMSO冻存缓冲液重悬,按照步骤5.1.2提供的参数进行离心洗涤一次。
- 将线虫重悬于 5 mL 室温海藻糖-DMSO 冻存缓冲液中。将离心管侧放,在室温下孵育 30 分钟。此步骤可提高存活率。
- 将1 mL分装至4个冻存管中,每管1 mL。
- 将小瓶置于聚苯乙烯泡沫盒中,放入-80 °C超低温冰箱。
- 一周后,取其中一个小瓶进行解冻测试。
- 将剩余的小瓶转移至 -80°C 冻存盒中长期保存。
- 检测解冻或复苏 S. hermaphroditum 来自冻存菌种
- 从冷冻箱中取出一个冻存管,在室温下放置直至完全解冻。
- 将液体内容物倒入新的NGM平板上。注意,无需额外添加共生细菌,因为冻存菌株通常含有足够的共生细菌。线虫应在数分钟至数小时内开始恢复活动。
- 观察线虫的运动和繁殖情况。一到两天后,将数条线虫转移至新接种大肠杆菌的NGM平板上 X. griffiniae
- 培养 S. hermaphroditum 在接种有 X. griffiniae (参见步骤1.1),直至群体中大部分为J1阶段或正在形成囊状的两性个体。
- 体内 维持通过 Galleria mellonella
注意:对于 体内 生长,扩增 S. hermaphroditum 通过突变品系 Galleria mellonella (蜡虫)5th 龄幼虫 该方法对于在冷冻保存后无法存活的品系尤为有用。有关通过昆虫及其他培养基进行昆虫病原线虫自然繁殖的详细且类似方案,可参见(McMullen 等)。30)。简而言之:- 让线虫在NGM平板上饥饿并发育为感染性幼虫(IJs)。
- 使用 用M9缓冲液将IJs从NGM平板上洗脱。
- 转移 IJs 进行感染 大蜡螟 使用白板诱捕器捕捉昆虫。
- 对于 体外 在NGM平板上进行培养时,遵循以下步骤:
- 在NGM平板上接种约100 µL新鲜液体培养物 S. hermaphroditum 共生体, X. griffiniae.
- 待细菌菌落完全干燥后,再将线虫转移至培养皿上。
- 将培养皿置于 25 °C 培养,每隔约一个月将线虫转移至新接种的培养皿中。
结果
设计了两种CRISPR RNA(以Pam位点编号命名——Pam 3和Pam 5),靶向先前已发表的Pam位点处的S. hermaphroditum中unc-22的同源基因14(图2A)。每种crRNA与tracrRNA结合形成单导向RNA(sgRNA),并按步骤3.1所述整合入Cas9,形成核糖核蛋白复合物。本方案中设计了两种靶向同一基因的crRNA;然而,若采用先前为C. elegans开发的共CRISPR(co-CRISPR)方法31,可将crRNA #2替换为靶向目标基因的crRNA。或者,也可在两种靶向目标基因的crRNA基础上加入unc-22 crRNA,但需确保总crRNA与tracrRNA的比例保持1:1。
显微注射前一天,挑选摄食良好、具有可见性腺臂的早期J3期线虫(图1A),将其转移至接种有共生菌 Xenorhabdus griffiniae 的新鲜培养皿中,在室温下培养过夜,使其发育为年轻成虫(图1B)。注射当天,选取携带少量或无受精胚胎的年轻成虫(图1B),将其分离至新的培养皿中用于注射。根据观察,较年轻的线虫角质层相对更易穿透,但注射后恢复能力较差。制备注射针(见步骤2.3),加载注射混合物,并按步骤3.2所述将其尖端折断打开。将线虫用M9缓冲液清洗,并在琼脂糖垫上的卤代烃油滴中固定(步骤2.2)。在注射位点(图1C),利用显微注射仪施加外部压力,使生殖腺合胞体中产生可见的液体流动,确保生殖系细胞核充分接触注射混合物(步骤3.3)。在可能的情况下,对两个性腺均进行注射,以提高获得基因编辑F1代后代的概率。
注射后的线虫(P0)通过M9缓冲液快速冲洗回收,并在接种了Comamonas aquaticus细菌的NGM平板上过夜培养以恢复(步骤3.4)。大约40%–90%的注射P0个体在注射后很快恢复,其中20%–90%的P0线虫能在C. aquatica上存活过夜(表1)。存活下来的单个P0个体随后被分离至接种有X. griffiniae的NGM培养皿中,转移率为20%–90%。对F1、F2和F3代个体进行尼古丁筛选,以检测unc-22基因缺失表型,从而确定该缺失的可遗传性(步骤4.1)。当暴露于2%尼古丁时,携带unc-22基因缺失的S. hermaphroditum线虫会出现抽搐反应,而野生型线虫则发生麻痹,由此可实现对潜在基因缺失个体的筛选与选择28。在本实验中,来自注射P0的F1代线虫中,最多有64%可稳定产生抽搐表型的F2后代(表1)。为便于共CRISPR注射的筛选,可利用成像与追踪系统对单个抽搐线虫进行监测与定量分析,一个示例见图2B。
为确认抽搐表型后代的基因型,从F3代线虫中提取基因组DNA用于基因分型 unc-22 位点(步骤 4.2)。通过 PCR 扩增靶向位点周围的基因组区域,观察到多条微弱条带,表明存在小片段和大片段的插入与缺失(indels)图2C,D),其中部分结果经测序分析确认(图2E。这些数据表明,CRISPR-Cas9 在基因组靶位点处产生了双链断裂,随后这些断裂被修复 通过 非同源末端连接(NHEJ)。为在核苷酸水平上确认基因组的特异性修饰,对靶位点的PCR扩增产物进行Sanger测序分析:通过比对运动异常和野生型线虫的测序色谱图,可识别靶位点处的插入或缺失图 2E)。经表型和基因型鉴定确认后,可通过昆虫传代在实验室中维持CRISPR突变品系 Galleria mellonella (蜡虫)或通过冷冻保存(步骤5)。如果使用 unc-22 作为共CRISPR标记,参见 图3 有关分离目标基因突变的F2和F3后代的建议策略示意图。
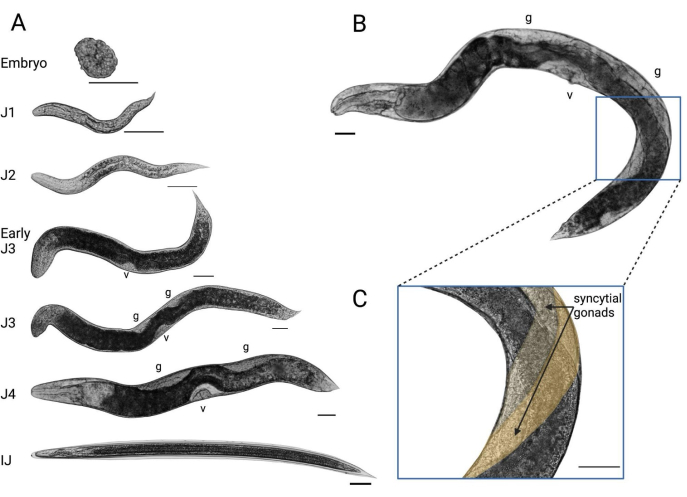
图1:实验室条件下 S. hermaphroditum 的发育过程。(A)在NGM琼脂上以共生细菌 X. griffiniae 为食的雌雄同体个体的估计发育阶段。比例尺 = 50 µM。v = 阴门;g = 性腺。(B)处于适合性腺显微注射发育阶段的年轻成虫雌雄同体。蓝色框:性腺注射位置。(C)作为显微注射靶标的雌雄同体合胞体性腺。两个性腺以不同深浅的黄色着色,以便于观察。请点击此处查看该图的放大版本。
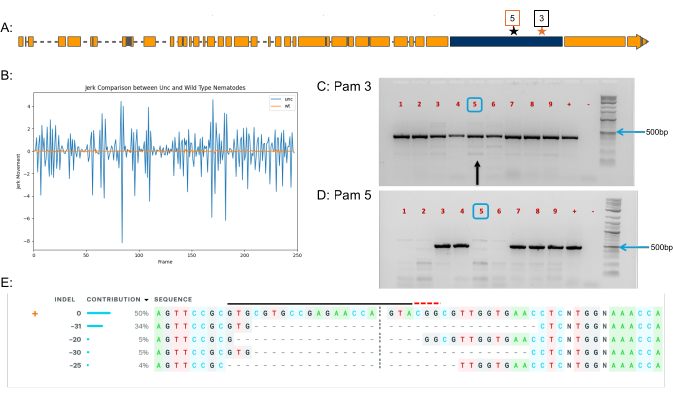
图 2:S. hermaphroditum 中 CRISPR-Cas9 基因组编辑的代表性结果。(A)S. hermaphroditum unc-22 同源基因的基因结构。蓝色方框:靶向外显子。黑色星号:Pam 3 靶位点。红色星号:Pam 5 靶位点。(B)代表性抽搐后代的表型分析,基于使用 2% 尼古丁处理时的抽搐运动。蓝色:来自 unc-22 突变系的抽搐成虫。橙色:被 2% 尼古丁麻痹的野生型成虫。(C,D)来自两只注射的 P0 动物的九个独立 F3 抽搐品系(1-9)的基因分型。每个样本包含来自同一 F1 品系的四个 F3 后代。引物用于扩增 Pam 3(C)和 Pam 5(D)周围的基因组区域。“+”:野生型对照;“-”:未加 DNA 的阴性对照。蓝色方框:琼脂糖凝胶上确认的杂合样本扩增子示例。(C)中的黑色箭头指示(E)中分析的扩增子。(E)Pam 3 位点 unc-22 突变体的 ICE 分析。(C)中第 5 号 PCR 样本(黑色箭头)经测序并使用 ICE 进行分析,结果显示 50% 的等位基因为野生型,而在基因组 DNA 中检测到多种缺失突变(长度范围为 20 bp 至 31 bp)。请点击此处查看该图的放大版本。
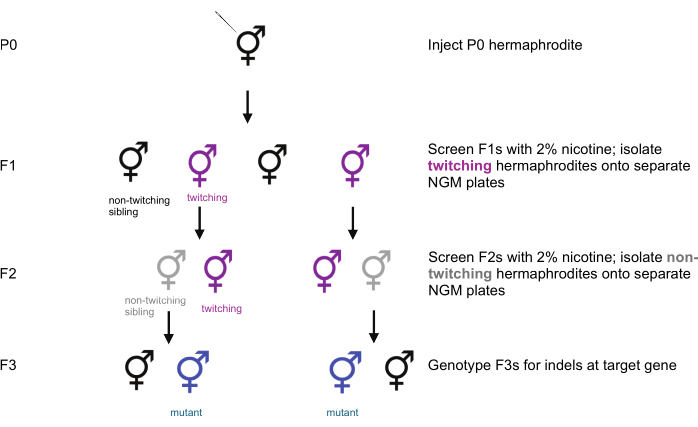
图3:利用共CRISPR筛选分离目标基因突变体的工作流程。 当使用unc-22作为共CRISPR标记时,对F1线虫用2%尼古丁进行筛选,并将出现抽搐表型的F1个体转移至分别接种有共生 细菌 X. griffiniae的NGM平板上。随后对抽搐F1后代的F2子代进行筛选,将不出现抽搐表型的F2个体分离至单独的平板。在让F2个体产生成年后,对F3代进行基因型鉴定,以确定目标基因是否已被敲除。此外,抽搐线虫中不抽搐的兄弟个体也可能携带目标基因中的插入/缺失突变(indels),因此也应纳入基因型分析。请点击此处查看该图的放大版本。
| 重复 | 注射的 P0 数量 | 注射后存活的 P0 数量* | 过夜后存活的 P0 数量 | 转移至 X. griffiniae 菌斑的 P0 数量 | 产生抽搐 F2 的 P0 数量 | 产生抽搐 F2 的 P0 占注射总数的百分比 |
| 1 | 8 | 4 | 4 | 3 | 0 | 0 |
| 2 | 9 | 4 | 4 | 4 | 3 | 33.33 |
| 3 | 11 | 10 | 10 | 10 | 7 | 63.64 |
| 4 | 9 | 4 | 2 | 2 | 2 | 22.22 |
表1:代表性实验结果 S. hermaphroditum unc-22 同源基因修饰 通过 显微注射及通过子代抽搐表型所证实的成功率。 通过显微注射后约30分钟观察咽泵运动来确定存活情况。
讨论
非常规的遗传模式动物系统为在这些性状自然发生的生态和生理背景下研究真核生物基因功能提供了宝贵的机会,例如在寄生宿主存在的情况下或生物体自身的原生微生物组环境中。在昆虫病原线虫(EPNs)中,基因操作主要依赖于某些基于RNA干扰(RNAi)的方法13,32。尽管RNAi可在某些物种中实现功能性的 遗传学研究,但其应用受限于双链RNA(dsRNA)的瞬时性,且基因沉默可能无法稳定遗传。这些局限性凸显了对稳定、可跨代遗传的遗传工具的需求33,34。本研究描述了首个针对斯氏线虫科(Steinernematids)的精确基因组编辑方案,斯氏线虫科是小杆目(Rhabditida)中两个EPN科之一,相关方法已在Cao(2023)14中得到验证。
成功的CRISPR-Cas9诱变依赖于对线虫的精细操作。营养不良的个体常出现萎缩的性腺,难以用注射针穿透。注射体积必须进行调整,可通过略微扩大针尖开口或精细调节注射压力,以确保注射混合物充分灌注性腺。注射后的动物需迅速从琼脂糖垫转移至 C. aquatica 恢复平板对于注射后的线虫存活至关重要,操作速度会随着经验积累而显著提高。注射后,受伤的线虫需及时转移至恢复平板中 不 暴露于其共生细菌,因为恢复在 X. griffiniae 较低14.
针头堵塞是显微注射过程中常见的技术难题。有时可通过将针头轻轻在浸有卤代烃油的双面胶带上拖动来清除堵塞。在显微注射前用M9缓冲液充分清洗线虫,也可防止共生细菌进入并阻塞针头。如果堵塞持续存在,可小心扩大针尖开口以恢复液体流动,但过度扩大会导致注射液不受控制地喷出。将针头制备材料从硼硅酸盐玻璃14 更换为石英毛细管,可显著改善注射性能。石英针头能形成更锐利的尖端,有助于成功对角质层较厚的稍大龄成虫进行注射,从而提高存活率。
本方案目前存在一个局限性,即基于CRISPR的转基因插入仍然具有挑战性,需要进一步优化。在S. hermaphroditum中使用短单链DNA供体实现Cas9诱导的双链断裂的同源定向修复(HDR)较为困难14,35。精确的转基因插入是任何遗传模型中的关键能力,可实现高保真度的修饰,例如单氨基酸替换或转录报告系统36。因此,开发一种可靠的CRISPR-Cas9介导的基因敲入方案将显著推进昆虫病原线虫(EPN)的遗传工具包,并惠及寄生虫学、微生物共生关系及相关领域的更广泛研究群体。
披露
作者声明不存在利益冲突。
致谢
我们感谢 Margaret McFall-Ngai 和 Edward Ruby 提供共聚焦显微镜的使用机会。感谢 Alexis (Cody) Hargadon 和 Grischa Chen 在共聚焦显微镜操作方面的培训,以及 Carly R. Myers 在图像获取和抽搐视频分析方面的帮助。我们还感谢 Stephanie Hampton 为购买显微注射系统的经费分配。本研究工作得到了卡内基科学研究所的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂糖(80-100 目) | Fisher Scientific | BP26411 | 也用于LB丙酮酸平板 |
| 琼脂糖 | Fisher Scientific | 16500500 | 也用于基因分型 |
| Alt-R CRISPR-Cas9 tracrRNA | IDT | 1072532 | |
| Alt-R S.p. Cas9 核酸酶 V3 | IDT | 1081058 | |
| 硼硅酸盐针头 | 世界精密仪器公司 | 1B120F-4 | |
| 氯化钙(CaCl₂) | Sigma Aldrich | C4901 | |
| 胆固醇 | VWR | 433 | 5 mg/mL,溶于乙醇 |
| Comamonas aquatica (DA1877) | |||
| 琼脂糖垫用盖玻片 | 脑科学研究实验室 | #4860-1D | 48 × 60 mm,1号厚度 |
| CRISPRScan | https://www.crisprscan.org/ | ||
| 二甲基亚砜(DMSO) | Sigma-Aldrich | 472301 | 0.5 M |
| DNA纯化与浓缩试剂盒-5 | Zymo Research | D4014 | |
| FemtoJet 4x 微注射仪,配备 Grip 头部组件,4 号尺寸 0 针 holder | Eppendorf/Calibre | 5253000017 | |
| 甘蓝夜蛾第五龄幼虫 | GrubCo | https://www.grubco.com/index.cfm | |
| 凝胶成像系统 | Azure400 | AZI400-01 | |
| 上样缓冲液 | 赛默飞世尔科技 | B72 | |
| 明胶(2%) | Sigma Aldrich | G1393 | |
| GelRed | Biotium | #41003 | |
| 基因分型引物:DNA寡核苷酸,25 nmol | IDT | N/A | |
| Gibco Bacto 胰蛋白胨 | Fisher Scientific | DF0118-17-0 | |
| Gibco Bacto 胰蛋白胨 | Fisher Scientific | DF0123-17-3 | 也用于暗LB、LB丙酮酸盐平板 |
| Gibco Bacto 酵母提取物 | Fisher Scientific | DF0127-17-9 | 也用于暗LB、LB丙酮酸盐平板 |
| 4号持针钳 Grip Head 套装 | 校准 | EPE-5196083008 | (与硼硅酸盐针头 1B120F-4 配对使用) |
| 卤代烃油 700 | Sigma Aldrich | H8898 | |
| 用于日常维护的硬质铂金丝线虫挑取工具 | Tritech Research | PT-9901 | |
| CRISPR编辑推断(ICE) | Synthego | N/A | 用于分析Sanger测序结果以鉴定插入缺失突变的软件 |
| KCl | Sigma Aldrich | P9541 | |
| 激光拉针仪 P-2000 | Sutter | P-2000G | |
| 氯化镁(MgCl2) | Sigma Aldrich | M8266 | |
| 硫酸镁(MgSO4) | Sigma Aldrich | M7506 | 用于M9缓冲液,也用于NGM |
| Microloader尖端 2x96ST | 校准器 | 930001007 | |
| 蔡司 Axio Observer 和 Axiovert 200 显微镜用显微操作仪安装适配器 | Tritech Research | NZ-19-2 | |
| 显微镜 | Tritech | SMT1 | |
| 尼古丁 | Sigma Aldrich | N3876 | |
| NP-40 | 赛默飞世尔科技 | 85124 | |
| 无核酸酶双链缓冲液 | IDT | 11-01-03-01 | |
| OneTaq MasterMix | NEB | M0486 | |
| 移液器储存盒 | Sutter Instruments | BX10 | |
| 氯化钾(KCl) | Sigma Aldrich | 793590 | |
| 磷酸氢二钾(K2HPO4) | Sigma Aldrich | P3786 | KOH用于NGM |
| 磷酸二氢钾(KH2PO4) | Sigma Aldrich | P5655 | 用于M9缓冲液,也用于NGM |
| 蛋白酶K | Sigma Aldrich | P6556 | |
| 石英针 | Sutter Instruments | QF100-70-10 | |
| S. hermaphroditium 基因组 | NCBI | https://www.ncbi.nlm.nih.gov/datasets/genome/GCA_030435675.1/ | |
| sh-unc-22 Alt-R CRISPR-Cas9 crRNA | IDT | N/A | |
| 氯化钠(NaCl) | VWR | SS0430 | 也用于M9、暗LB、LB丙酮酸盐平板 |
| 磷酸氢二钠(Na2HPO4·7H2O) | Sigma Aldrich | S9390 | M9 缓冲液 |
| 丙酮酸钠 | Sigma Aldrich | P2256 | 也用于LB丙酮酸平板 |
| 用于显微注射的软质铂金丝挑虫针 | Surepure Chemetals | 6824 | 铂90%,铱10%合金丝,直径0.002英寸,长5英尺 |
| 标准持针器 | Tritech Research | HI-7 | |
| 斯氏线虫属 Hermaphroditum 种 | |||
| 体视显微镜 | Leica | Inveta 3 | |
| 海藻糖 | Cole-Parmer | EW-88195-99 | 0.08 M |
| Tris | Fisher Scientific | AM9855G | pH 8.0 |
| Tween 20 | Sigma Aldrich | P1379 | |
| 垂直显微操作器安装适配器 | Tritech Research | NR2 | |
| Xenorhabdus griffiniae (HGB2511) |
参考文献
- Stock, S., Blair, H. G. Entomopathogenic nematodes and their bacterial symbionts: The inside out of a mutualistic association. Symbiosis. 46, 65-75 (2008).
- Murfin, K. E., et al. Nematode-bacterium symbioses--cooperation and conflict revealed in the "omics" age. Biological Bull. 223 (1), 85-102 (2012).
- Dillman, A. R., et al. An entomopathogenic nematode by any other name. PLoS Pathog. 8 (3), e1002527(2012).
- Cao, M., Schwartz, H. T., Tan, C. -H., Sternberg, P. W. The entomopathogenic nematode Steinernema hermaphroditum is a self-fertilizing hermaphrodite and a genetically tractable system for the study of parasitic and mutualistic symbiosis. Genetics. 220 (1), iyab170(2022).
- Sergeant, M., et al. Identification, typing, and insecticidal activity of Xenorhabdus isolates from entomopathogenic nematodes in United Kingdom soil and characterization of the xpt toxin loci. Appl Environ Microbiol. 72 (9), 5895-5907 (2006).
- Walsh, K. T., Webster, J. M. Interaction of microbial populations in Steinernema (Steinernematidae, Nematoda) infected Galleria mellonella larvae. J Invertebr Pathol. 83 (2), 118-126 (2003).
- Herbert, E. E., Goodrich-Blair, H. Friend and foe: The two faces of Xenorhabdus nematophila. Nat Rev Microbiol. 5 (8), 634-646 (2007).
- Flores-Lara, Y., Renneckar, D., Forst, S., Goodrich-Blair, H., Stock, P. Influence of nematode age and culture conditions on morphological and physiological parameters in the bacterial vesicle of Steinernema carpocapsae (Nematoda: Steinernematidae). J Invertebr Pathol. 95 (2), 110-118 (2007).
- Cao, M., Goodrich-Blair, H. Ready or Not: Microbial adaptive responses in dynamic symbiosis environments. J Bacteriol. 199 (15), e00883-e00916 (2017).
- Lacey, L. A., et al. Insect pathogens as biological control agents: Back to the future. J Invertebr Pathol. 132 (C), 1-41 (2015).
- Campos-Herrera, R., et al. Intraspecific virulence of entomopathogenic nematodes against the pests Frankliniella occidentalis (Thysanoptera: Thripidae) and Tuta absoluta (Lepidoptera: Gelechiidae). J Nematol. 53 (1), 1-14 (2021).
- Rill, A., Zhao, L., Bode, H. B. Genetic toolbox for Photorhabdus and Xenorhabdus: pSEVA based heterologous expression systems and CRISPR/Cpf1 based genome editing for rapid natural product profiling. Microb Cell Fact. 23 (1), 98(2024).
- Ratnappan, R., et al. RNAi-mediated gene knockdown by microinjection in the model entomopathogenic nematode Heterorhabditis bacteriophora. Parasit Vectors. 9 (1), 160(2016).
- Cao, M. CRISPR-Cas9 genome editing in Steinernema entomopathogenic nematodes. bioRxiv. , (2023).
- Heryanto, C., Ratnappan, R., O'Halloran, D. M., Hawdon, J. M., Eleftherianos, I. Culturing and genetically manipulating entomopathogenic nematodes. J Vis Exp. (181), e63885(2022).
- Stock, S. P., Griffin, C. T., Chaerani, R. Morphological and molecular characterisation of Steinernema hermaphroditum n. sp. (Nematoda: Steinernematidae), an entomopathogenic nematode from Indonesia, and its phylogenetic relationships with other members of the genus. Nematology. 6 (3), 401-412 (2004).
- Bhat, A. H., Chaubey, A. K., Shokoohi, E., William Mashela, P. Study of Steinernema hermaphroditum (Nematoda, Rhabditida), from West Uttar Pradesh, India. Acta Parasitol. 64 (4), 720-737 (2019).
- Schwarz, E. M., et al. Genomes of the entomopathogenic nematode Steinernema hermaphroditum and its associated bacteria. bioRxiv. , (2025).
- Haglund, K., Nezis, I. P., Stenmark, H. Structure and functions of stable intercellular bridges formed by incomplete cytokinesis during development. Commun Integr Biol. 4 (1), 1-9 (2011).
- Ghanta, K. S., Ishidate, T., Mello, C. C. Microinjection for precision genome editing in Caenorhabditis elegans. STAR Protoc. 2 (3), 100748(2021).
- Gang, S. S., et al. Targeted mutagenesis in a human-parasitic nematode. PLoS Pathog. 13 (10), e1006675(2017).
- Adams, S., Pathak, P., Shao, H., Lok, J. B., Pires-daSilva, A. Liposome-based transfection enhances RNAi and CRISPR-mediated mutagenesis in non-model nematode systems. Sci Rep. 9 (1), 483(2019).
- Culp, E., et al. Genome editing in the nematode Caenorhabditis briggsae using the CRISPR/Cas9 system. Biol Methods Protoc. 5 (1), bpaa003(2020).
- Hellekes, V., et al. CRISPR/Cas9 mediated gene editing in non-model nematode Panagrolaimus sp. PS1159. Front Genome Ed. 5, 1078359(2023).
- Patel, R., et al. The generation of stable transgenic lines in the human-infective nematode Strongyloides stercoralis. G3 (Bethesda). 14 (8), jkae122(2024).
- Moreno-Mateos, M. A., et al. CRISPRscan: Designing highly efficient sgRNAs for CRISPR-Cas9 targeting in vivo. Nat Methods. 12 (10), 982-988 (2015).
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of stable transgenic C. elegans using microinjection. J Vis Exp. (18), e833(2008).
- Wang, H., Park, H., Liu, J., Sternberg, P. W. An efficient genome editing strategy to generate putative null mutants in Caenorhabditis elegans using CRISPR/Cas9. G3 (Bethesda). 8 (11), 3607-3616 (2018).
- Conant, D., et al. Inference of CRISPR Edits from Sanger Trace Data. CRISPR J. 5 (1), 123-130 (2022).
- McMullen, J. G. 2nd, Stock, S. P. In vivo and in vitro rearing of entomopathogenic nematodes (Steinernematidae and Heterorhabditidae). J Vis Exp. (91), e52096(2014).
- Kim, H., et al. A co-CRISPR strategy for efficient genome editing in Caenorhabditis elegans. Genetics. 197 (4), 1069-1080 (2014).
- Ciche, T. A., Sternberg, P. W. Postembryonic RNAi in Heterorhabditis bacteriophora: A nematode insect parasite and host for insect pathogenic symbionts. BMC Dev Biol. 7 (1), 101(2007).
- Du, X., McManus, D. P., French, J. D., Jones, M. K., You, H. CRISPR/Cas9: A new tool for the study and control of helminth parasites. Bioessays. 43 (1), e2000185(2021).
- Quinzo, M. J., Perteguer, M. J., Brindley, P. J., Loukas, A., Sotillo, J. Transgenesis in parasitic helminths: A brief history and prospects for the future. Parasit Vectors. 15 (1), 110(2022).
- Schwartz, H. T., Tan, C. -H., Peraza, J., Raymundo, K. L. T., Sternberg, P. W. Molecular identification of a peroxidase gene controlling body size in the entomopathogenic nematode Steinernema hermaphroditum. Genetics. 226 (2), (2024).
- Dokshin, G. A., Ghanta, K. S., Piscopo, K. M., Mello, C. C. Robust genome editing with short single-stranded and long, partially single-stranded DNA donors in Caenorhabditis elegans. Genetics. 210 (3), 781-787 (2018).
重印与许可
