本研究优化了一种基于热酚法的RNA提取方法 分枝杆菌属,获得的高质量RNA适用于转录组学分析。在相同条件下与TRIzol和RNeasy进行比较时,该方法具有更高的得率、相当的完整性以及更优的成本效益,为大规模基因表达研究提供了实用的替代方案。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
Mycobacterium tuberculosis(Mtb)仍然是全球主要的健康威胁,凸显了开展可靠的转录组学研究以深入了解其生物学特性及耐药机制的必要性。此类分析依赖于获取高质量、高得率的RNA。尽管已有多种RNA提取方法,但许多方法需要昂贵的试剂、大量培养物或专用设备,限制了其在大规模研究中的适用性,尤其是在资源有限的环境中。本文介绍了一种针对分枝杆菌优化的基于热酚法的RNA提取方法。该方法仅需少量培养物,并使用常规试剂,即可稳定获得适用于高通量转录组学应用的高质量RNA。通过凝胶电泳和RNA完整性分析(RIN)评估RNA的数量和完整性,并通过qPCR和Qubit 4验证其在下游应用中的适用性。为评估优化后方法的性能,我们在相同实验条件下平行开展了TRIzol与RNeasy试剂盒的RNA提取,包括使用相同的Mycobacterium物种、培养物体积、生长阶段(对数期和稳定期)以及裂解条件。这使得在得率、质量、可行性及成本方面实现了直接比较。优化后的热酚法在RNA得率和质量上表现出与对照方法相当甚至更优的结果,同时显著降低了试剂成本和对专用设备的依赖。由于其高效性、可重复性和经济性,本方案为Mtb及其他分枝杆菌物种的大规模基因表达和转录组学研究提供了一种切实可行的替代方法。
引言
M. tuberculosis(Mtb)是结核病(TB)的致病菌,至今仍是单一传染性病原体导致死亡的首要原因,其致死人数超过艾滋病/艾滋病病毒(HIV/AIDS)。2024年,全球结核病导致约130万人死亡1。此外,耐多药(MDR)和广泛耐药(XDR)菌株的流行率不断上升,进一步加重了这一疾病负担。因此,迫切需要深入了解结核病发病机制的分子基础,并发现新的治疗靶点2。
结核分枝杆菌(Mtb)的转录谱分析已成为阐明宿主-病原体相互作用3、环境应激适应4以及药物耐药机制5中相关功能元件的重要工具。实时PCR、微阵列和RNA测序(RNA-seq)等先进方法显著提升了分析分枝杆菌转录组的能力6。然而,这些方法的成功高度依赖于高质量RNA的获取,而后者又取决于提取过程中高效的细胞裂解。Mtb复杂的由分枝菌酸–阿拉伯半乳聚糖–肽聚糖构成的细胞壁使得RNA提取尤为困难7。现有的裂解技术,包括酶解8、超声处理9和珠磨法10,通常需要昂贵的设备和大量培养物,限制了其在许多生物安全三级(BSL-3)实验室中的实用性。此外,Mtb生长缓慢,需要较长的培养时间才能获得足够的生物量11。
为了克服这些局限性,开发了一种基于热酚法的优化RNA提取方法,该方法快速且经济。仅使用3 mL对数中期培养物,即可获得45–60 µg高质量RNA,适用于后续转录组学分析。细胞裂解采用紧凑型手持式组织研磨器和 readily available 试剂完成,无需昂贵仪器。尽管热酚法此前已有报道11,12,但优化后的热酚法在便捷性、成本效益和RNA得率方面均有提升。该方法以M. smegmatis mc2155(Msmeg)进行优化,并成功在中国台湾H37Rv菌株中得到验证。
访问受限。请登录或开始试用以查看此内容。
方案
所用试剂和设备列于材料表中。
1. 培养 分枝杆菌
- 将 Msmeg 或 Mtb 的甘油菌种 1 mL 接种于 10 mL 添加了 0.2% 甘油、0.05% 吐温 80 和 10% ADC 的 Middlebrook 7H9 培养基中,在 37 °C、150 rpm 振荡培养,直至 OD 达到 1–1.5。
- 取 1% 的初级培养物加入 10 mL 7H9 培养基中,继续培养至对数中期,OD600nm = 0.6–0.7。
- 将培养物分装为每份 3 mL,于室温(23–25 °C)下以 2000 × g 离心 5 分钟。
- 将菌体沉淀储存于 -80 °C,待进行 RNA 提取。
注意:对于 Mtb 培养物,应遵循适当的 BSL3 操作规范,并在 95 °C 加热灭活沉淀 20–25 分钟。
说明:图 1 展示了采用热酚法提取 RNA 过程中的基本步骤流程图。
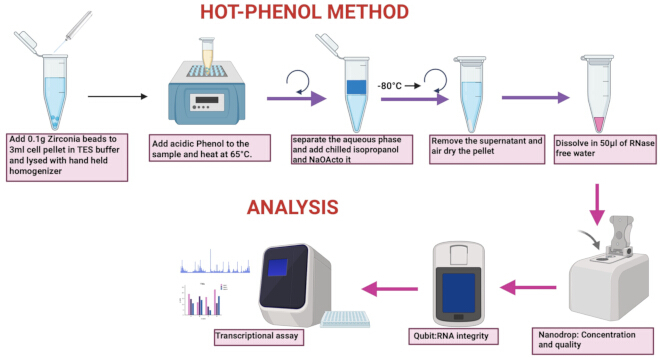
图1: 热酚法及分析流程示意图。 请点击此处查看此图的放大版本。
2. RNA 提取
- 热酚法(HP法)
- 添加 200 µL 加入 TES 缓冲液(100 mM Tris-HCl,pH 8.0;5 mM EDTA,pH 8.0;0.1 M NaCl;% SDS;1% β-巯基乙醇)至细胞沉淀中,通过涡旋振荡重悬沉淀。
- 加入约 0.1 g 的 0.1 mm 硅胶珠至样品中。使用手持式组织研磨器在冰上研磨 10–15 秒,直至沉淀完全解冻。重复此步骤 2 个循环,每次重复后均在液氮中快速冷冻。
- 或 使用高速台式珠磨破碎仪,在室温下以速度5(5.0 m/s)处理1分钟。重复该步骤共3个循环,每次循环后将样品置于冰上孵育,以防止过热。
注意:使用手持式组织研磨器或珠击破碎仪,对结核分枝杆菌细胞进行 6–8 个循环的裂解(每个循环 1 分钟),每完成一个循环后将样品置于冰上间歇冷却。RNA 提取所需的所有缓冲液和试剂均应使用经 DEPC(焦碳酸二乙酯)处理的水配制。 - 添加一个额外的 200 µL TES 缓冲液(预热至 65 °C) 加入各样品中,补足体积至 400 µL向每个样品中加入 200 µL 酸性苯酚(用100 mM柠檬酸缓冲液平衡,pH 4.5) 200 µL 氯仿(在加入样品前,将酸性酚与氯仿等比例混合)。
- 将样品在指定条件下孵育 65 °C 在900 rpm振荡条件下于加热模块上孵育30分钟,随后以12000 x g 室温下孵育15分钟。离心后应确保充分的相分离(可见清晰的上层水相含有RNA,明显的中间相含有DNA,以及下层有机相含有蛋白质和脂质)。
- 移除上层水相,并将其转移至新的1.5 mL微量离心管中。再次加入等体积的酸性酚:氯仿。在12,000 x g 室温下孵育15分钟。确保充分的相分离。
- 移除上层水相至新的1.5 mL微量离心管中,然后加入 30 µL 3 M 醋酸钠缓冲液,pH 5.3,以及 240 µL 冰冷异丙醇。在 −80 °C 30分钟至1小时。
注意:微量离心管可在 -80 °C 在此步骤中,用多层封口膜密封微量离心管,以防止其开启。 65 °C 孵育期间
警告: 苯酚和氯仿为危险化学品,因此应遵循适当的个人防护装备(PPE)使用规范、工程控制措施(如通风橱)以及特定的废弃物处理程序。 - 在 12,000 × g 条件下离心 g 室温孵育1 h。确保形成沉淀,小心移除上清液,避免扰动沉淀。
- 将沉淀重悬于1 mL 75%乙醇中,于12,000 x g 室温下孵育1分钟。重复此步骤两次,然后将沉淀物风干。
- 将沉淀重悬于 50 µL 无核酸酶水。
注意:溶解RNA时,将其在室温下于无RNase的水中孵育10–30分钟。
- TRIzol 法
- 添加 200 µL 加入TRIzol试剂至细胞沉淀中。
警告: TRIzol 是一种危险化学品,因此应遵循适当的个人防护装备(PPE)使用规范、工程控制措施(如通风橱)以及特定的废弃物处理程序。 - 按照步骤 2.1.2 - 2.1.3 中的细胞裂解方法进行操作。
- 添加一个额外的 200 µL TRIzol试剂,随后 200 µL 加入氯仿,涡旋1分钟。在13,400 x g 15 分钟 4 °C确保离心后正确分相。
- 小心地将水相转移至新的1.5 mL微量离心管中。
- 通过加入沉淀RNA 500 µL 加入异丙醇至水相,并在−80 °C 30分钟至1小时。
- 通过15,000 x g离心沉淀RNA g 20 分钟 4 °C小心观察沉淀物,移除上清液时避免扰动沉淀。
- 用1 mL 75%乙醇重悬沉淀,于13,400 x g离心 g 1 分钟,于 4 °C重复此步骤两次,室温下将沉淀晾干30分钟,然后重悬于 50 µL 无核酸酶水。
- 添加 200 µL 加入TRIzol试剂至细胞沉淀中。
- 市售RNA提取试剂盒方法
- 重悬细胞沉淀于 200 µL 重悬缓冲液(试剂盒中提供)
- 按照步骤 2.1.2 - 2.1.3 中的细胞裂解方法进行操作。
- 按照制造商的说明进行后续实验。
3. DNase 处理、定量与可视化
- 为去除基因组DNA污染,向每个RNA样本中加入1 µL DNase I(10 units)和5 µL RDD缓冲液(1x),室温孵育30分钟。
- 使用Nanodrop分光光度法测定RNA样本浓度,并使用Qubit4测定RNA完整性。RIN值在7.5–10之间为可接受范围。A260/A280和A260/A230的可接受值分别在1.8–2.0和2.0–2.2范围内。
- 使用1X RNA上样染料在1%琼脂糖凝胶上进行RNA电泳可视化。
4. cDNA 合成与定量实时 PCR
- 使用cDNA反转录试剂盒,在PCR仪中按照制造商说明书,以1 µg RNA为模板配制20 µL的cDNA合成反应体系。
- 使用50 ng cDNA、每种引物0.4 µM以及SYBR,按照制造商说明书配制10 µL的实时PCR反应体系,并在实时荧光定量PCR仪上运行样品。
注意:qPCR分析使用以下引物:
Mtb sigA Fw 5' cctcaaacagatcggcaagg 3',Mtb sigA Rv 5' cagatccacatcatgtcgcg 3'
Mtb hsp70 Fw 5’ gctggtggacaagttcaagg 3',Mtb hsp70 Rv 5' ggtcagctgctcgtctaaga 3'
Mtb16srRNA Fw 5' gcgatacgggcagactagag 3',Mtb16srRNA Rv 5' aaggaaggaaacccacacct 3'
Ms. sigA Fw 5' gaagacaccgacctggaact 3',Ms.sigA ms Rv. 5' gactcttcctcgtcccacac 3'
Ms. sigH Fw 5' gaagggttcccgtacaagg 3',Ms sigH Rv. 5' tcatgacgtcacctcctcg 3'
Ms. sigE Fw 5' caccaccaaccttttcctcg 3',Ms. sigE Rv. 5' accctcgatgtcacacagg 3'
5. 统计学分析
- 使用 Graph Pad Prism 对所有生物学重复进行学生氏 t-test 分析,当 P ≤ 0.05 时认为具有统计学显著性。误差线表示至少三次生物学重复的标准误差。
访问受限。请登录或开始试用以查看此内容。
结果
RNA 质量与得率
RNA 的质量和数量通过琼脂糖凝胶电泳进行评估(图2). 所有提取方法均观察到对应于23S和16S rRNA的清晰、锐利条带,证实总RNA成功分离。热酚法和TRIzol法显示出三条清晰条带,分别代表23S(~2900 bp)、16S(~1500 bp)和5S rRNA(~120 bp),表明RNA完整且质量较高。相比之下,基于柱纯化的试剂盒方法仅显示23S和16S条带,5S rRNA条带缺失或低于检测限,可能由于柱纯化过程中小分子RNA优先丢失所致。在产量方面,热酚法获得的RNA量分别为TRIzol和RNeasy的1.5–2倍图 2A,C。平均产量约为 ~60 µg 热酚法,约45 µg TRIzol用,以及~30 µg 对于RNeasy,后者的产量比热酚法低约50%。尽管产量存在差异,但各方法在RNA完整性与纯度方面相当(
访问受限。请登录或开始试用以查看此内容。
讨论
为了建立一种简单且可靠的Mycobacterium RNA提取方法,本研究对热酚法进行了优化。随后,将提取的RNA与两种广泛应用的方法——TRIzol法和基于离心柱的试剂盒法——进行了比较12,13。这些技术根据RNA得率、纯度、完整性、成本和处理时间进行评估,以判断其在下游分子应用中的实用性。尽管热酚法和TRIzol法相较于试剂盒法相对耗时,但两者均能获得完整且高质量的RNA。三种方法所得RNA在纯度和完整性方面相当;然而,热酚法始终提供更高的RNA得率。此外,使用热酚法和TRIzol法提取的RNA获得的Ct值相似。然而,热酚法与RNeasy法之间的Ct值存在统计学显著差异。由于实验中使用的RNA量相等,预期所有方法的Ct值应相近。RNeasy法中观察到的差异可能归因于RNA提取化学原理的不同。热酚法和TRIzol法属于有机溶剂法,通常对难溶转录本(如编码内在膜蛋白的转录本或高GC含量的转录本)具有更强的溶解能力。相比之下,RNeasy法基于二氧化硅离心柱,某些转录本可能因与膜结合效率低或在洗涤步骤中...
访问受限。请登录或开始试用以查看此内容。
披露
作者之间不存在利益冲突。所有作者均已批准投稿。
致谢
谨此感谢印度生物技术部(DBT)、印度医学研究理事会(ICMR)以及科学与工程研究委员会(SERB)提供的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.1 mm 二氧化硅珠 | MP Biomedicals | MP116911050 | |
| 2-丙醇 | Sigma | 278475 | |
| Bead Ruptor 4 | revvity | ||
| 氯仿 | Sigma | 288306 | |
| 低温离心机 | ThermoScientific | 42541217 | |
| DNase I | qiagen | 79254 | |
| EDTA | sigma | E02SS | |
| HCl | SRL | 62889 | |
| 加热块 | MIULAB | MU-E02-1049 | |
| High-Capacity cDNA Reverse Transcription 试剂盒 | Thermo Fischer Scientific | 4368814 | |
| 电动组织研磨器 G10 | Coron | G22616008 | |
| NaCl | sigma | S5886 | |
| Nanophotometer N50 | IMPLEM | T51601 | |
| 用 0.1 M 柠檬酸缓冲液(pH 4.5)平衡的苯酚 | Sigma | P4682 | |
| PowerUP SYBR | Applied Biosystems | A25742 | |
| Qubit 4 荧光仪 | Invitrogen | 2.32262E+12 | |
| 实时荧光定量 PCR 仪 | Analytik Jena AG | 844-00503-2 | |
| RNA easy 试剂盒 | Qiagen | 74104 | |
| SDS | Sigma | S9888 | |
| 乙酸钠 | Sigma | S2889 | |
| PCR 仪 | Biorad | 621BR29739 | |
| TRI Reagent | Sigma | T9424 | |
| Tris 碱 | Himedia | MB029 | |
| β-巯基乙醇 | Sigma | 516732 |
参考文献
- Global tuberculosis report, 2024. , Available from: https://www.who.int/publications/b/74877 (2024).
- Lange, C., et al. Drug-resistant tuberculosis: An update on disease burden, diagnosis and treatment. Respirology. 23 (7), 656-673 (2018).
- Tailleux, L., et al. Probing host-pathogen cross-talk by transcriptional profiling of both Mycobacterium tuberculosis and infected human dendritic cells and macrophages. PLoS One. 3 (1), e1403(2008).
- Voskuil, M. I., et al. Inhibition of respiration by nitric oxide induces a Mycobacterium tuberculosis dormancy program. J Exp Med. 198 (5), 705-713 (2003).
- Zhang, Y., Yew, W. W. Mechanisms of drug resistance in Mycobacterium tuberculosis. Int J Tuberc Lung Dis. 13 (11), 1320-1330 (2009).
- Arnvig, K. B., Young, D. B. Identification of small RNAs in Mycobacterium tuberculosis. Mol Microbiol. 73 (3), 397-408 (2009).
- Brennan, P. J., Nikaido, H. The envelope of mycobacteria. Annu Rev Biochem. 64, 29-63 (1995).
- Belisle, J. T., Sonnenberg, M. G. Isolation of genomic DNA from mycobacteria. Methods Mol Biol. 101, 31-44 (1998).
- Manganelli, R., et al. Role of the extracytoplasmic-function sigma factor σH in Mycobacterium tuberculosis global gene expression. Mol Microbiol. 45 (2), 365-374 (2002).
- Rustad, T. R., et al. Global analysis of mRNA stability in Mycobacterium tuberculosis. Nucleic Acids Res. 41 (1), 509-517 (2013).
- Mangan, J. A., Sole, K. M., Mitchson, D. A., Butcher, P. D. An effective method of RNA extraction from bacteria refractory to disruption, including mycobacteria. Nucleic Acids Res. 25 (3), 675-676 (1997).
- Venkataraman, B., Gupta, N., Gupta, A. A robust and efficient method for the isolation of DNA-free, pure and intact RNA from Mycobacterium tuberculosis. J Microbiol Meth. 93 (3), 198-202 (2013).
- Hiebert, R. M., et al. RNA extraction and RNA-sequencing method for transcriptomic analysis of Mycobacterium tuberculosis. Biotechniques. 77 (1), 23-34 (2025).
- Kumar, K., Tharad, M., Ganapathy, S., et al. Phenylalanine-rich peptides potently bind ESAT6, a virulence determinant of Mycobacterium tuberculosis, and concurrently affect the pathogen's growth. PLoS One. 4, e7615(2009).
- Alli, A. O., et al. Optimization of RNA extraction in Mycobacterium tuberculosis for studying intracellular gene expression. Afr J Clin Exp Microbiol. 10 (2), 64-79 (2009).
访问受限。请登录或开始试用以查看此内容。
重印与许可
