本方案详细描述了一种针对年轻 RAC1/CED-10 突变型 Caenorhabditis elegans 的定量排便检测方法,为研究帕金森病前驱期提供了简便的模型。该方法克服了其他动物模型的局限性,有助于测试针对早期帕金森病理的治疗策略。
本文内容
摘要
摘要
帕金森病(PD)是最常见的神经退行性疾病之一,通常基于多巴胺能神经元大量丢失后出现的运动症状进行诊断。而非运动症状(如便秘)最为常见,且往往更早出现,提示疾病已开始发展。目前有许多用于研究神经退行性疾病的动物模型,但大多数模型聚焦于疾病晚期阶段。由于难以确定神经退行过程的精确起始时间,尚无单一模型能够完整模拟整个疾病进展过程。哺乳动物模型因其生命周期较长,实验耗时且成本高昂。相比之下,秀丽隐杆线虫(Caenorhabditis elegans,简称 C. elegans)是一种透明的约1 mm长的线虫,具有较短的寿命和繁殖周期(分别约为3周和3天),其快速的世代更替使其成为更快速、更经济的实验模型。C. elegans 的排便运动程序由一系列节律性周期组成,受复杂的遗传网络调控,其中包含 Rho/rac GTP酶家族成员,RAC1(在线虫中为 CED-10)即为其中之一。我们已证实,RAC1/CED-10 突变体会导致GABA能神经元形态与功能受损,从而破坏排便周期。本文介绍了在疾病早期阶段检测 RAC1/CED-10 突变型 C. elegans 便秘表型的实验方案。该方案不仅可作为在神经退行发生前研究帕金森病早期症状的预测工具,还可作为评估药理干预效果的早期终点指标。由于这些变化并非某种疾病所特有,我们认为该模型为研究其他疾病早期出现的生理改变提供了有价值的工具。
引言
帕金森病(PD)是第二常见的神经退行性疾病,也是导致神经系统功能障碍的主要原因之一1,2。其病理特征包括主要由α-突触核蛋白构成的路易小体和路易神经突,以及黑质和其他脑区的神经元丢失3。
临床上,帕金森病(PD)被归类为运动障碍,但也表现为广泛的非运动症状。运动功能障碍源于黑质多巴胺能神经元的变性及纹状体多巴胺的耗竭。然而,非运动症状(如便秘、焦虑和快速眼动睡眠行为障碍4)常在数年前即已出现,处于前驱期,此时神经变性已累及黑质外结构(如脑干、嗅觉系统和自主神经通路)5。
帕金森病(PD)研究中的一个主要挑战是临床症状出现较晚:通常只有在多巴胺能神经元丢失60%-80%之后,运动症状才会显现3,此时治疗干预的效果已大打折扣。早期非运动症状(例如自主神经功能障碍)可能作为前驱期PD的生物标志物6,但其非特异性使得明确诊断变得复杂。鉴于这些局限性,动物模型对于研究PD早期阶段、标准化症状表征以及开发目前尚缺乏的神经保护疗法至关重要,这类疗法有望延缓或阻止神经退行性病变。
RAC1/CED-10 C. elegans 突变体重现了帕金森病(PD)早期和晚期的关键特征6。我们先前已证明,RAC1 活性对多巴胺能神经元的存活和功能至关重要,可抵御α-突触核蛋白诱导的毒性7。此外,RAC1/CED-10 突变体表现出类似早期 PD 的表型改变,包括脂质代谢失调和 GABA 能功能障碍,后者表现为排便周期紊乱6。这些发现确立了 RAC1/CED-10 突变体作为研究帕金森病退变前期病理生理机制的可行模型。
本文介绍了一种针对RAC1/CED-10突变体优化的排便检测方法,该方法可定量捕捉肠道运动功能障碍,从而系统研究帕金森病前驱期的胃肠道特征。
方案
注意:使用野生型 N2 布里斯托菌株。早期帕金森病 RAC1/CED-10 模型:菌株 BR3579 的基因型为 ced-10(n3246),本文中称为 RAC1/CED-10。该菌株由德国弗莱堡/布赖斯高阿尔伯特-路德维希大学的 Ralf Baumeister 博士慷慨惠赠。该 ced-10(n3246) 变异属于强等位基因。ced-10(n3246) 突变为 G 到 A 的转换,导致 CED-10 蛋白第 60 位甘氨酸变为精氨酸(G60R),从而引起非无效的功能改变8,9。与其他 ced-10 等位基因相比,该等位基因的表型更为严重10。本研究全程使用雌雄同体线虫。
1. 线虫培养
- 将25 mL线虫生长培养基(NGM)倒入150 mm的培养皿中,待琼脂凝固。每块平板接种500 µL的大肠杆菌(Escherichia coli)OP50菌液,并将菌液均匀涂布于琼脂表面。将平板置于30 °C过夜培养,以促进细菌生长。使用前24小时完成平板的制备。
2. 获得同步化处于4期的线虫 th 幼虫发育阶段(L4)
- 在L4幼虫发育阶段同步的线虫中进行肠道蠕动的测量。为获得该发育阶段的线虫,请遵循下述漂白方案(改编自 11) 对RAC1/CED-10表型进行了轻微修改11.
- 将10只怀卵成虫加入NGM平板中 大肠杆菌 OP50(按步骤1制备)上产卵,并让线虫生长3天。或者,将含有混合种群的NGM平板上的琼脂块转移至新的NGM平板。此种情况下,生命周期的控制不如使用10条怀卵成虫精确。80小时后,获得混合种群的 秀丽隐杆线虫 野生型个体中观察到具有孕卵成虫的两性个体。RAC1/CED-10突变体表现出发育延迟6小时。6因此,成年 gravid 个体在 86 小时出现。
注意:通过观察成虫体内是否存在卵来识别 gravid 成虫。 - 用10 mL M9缓冲液冲洗培养板,将带有相应基因型的成年饱食线虫收集至15 mL离心管中(管上标记对应基因型)。
- 通过在 2000 x g 条件下离心 2 分钟收集线虫沉淀 g (在标准台式离心机中约1500 rpm)室温离心,弃去上清液,加入10 mL新鲜M9缓冲液。
注意:尽管在室温下操作有效,但我们发现在 10 °C 下离心效果更佳。 - 重复步骤2.4三次,或直至上清液中无可见细菌(透明上清液)。若上清液呈微黄色且浑浊,可推断其中仍存在细菌。
- 加入M9缓冲液至终体积为3.5 mL。
注意:根据我们的经验,此步骤可使用无菌蒸馏水甚至自来水,而不会引入污染,因为后续的漂白处理可消除所有微生物。然而,为确保不同实验室之间的实验可重复性,我们建议使用M9缓冲液或无菌水。 - 将0.5 mL的5M NaOH与1 mL漂白剂混合,配制漂白溶液。该溶液需在使用前新鲜配制。向含有线虫的离心管中加入1.5 mL上述混合液。
- 在漂白过程中剧烈振荡试管,同时在解剖显微镜下观察成体组织的降解情况。一旦仅剩少量成体残留物可见,立即停止反应。
注意:漂白处理可裂解成虫和幼虫,而胚胎因卵壳对漂白剂具有保护作用而保持存活。此步骤对于获得存活个体至关重要。处理时间过长会杀死所有线虫。强烈建议使用涡旋振荡器,但需每隔3分钟检查一次角质层的破坏情况。RAC1/CED-10突变体对漂白剂更为敏感,应每隔2分钟监测一次成虫组织的解体情况,且处理时间绝不可超过8分钟。 - 加入M9缓冲液至管中(约15 mL)以终止反应。立即离心(因处理可能仍有活性),2,000 x g离心1分钟。 g 弃去上清液。
- 将沉淀用 M9 缓冲液重悬,按上述方法离心,重复洗涤 3 次。最后一次洗涤后,小心吸除上清液,直至约剩余 0.1 mL。
- 将这些卵加入新的15 mL离心管中,并用M9缓冲液定容至5 mL。在室温下轻轻旋转孵育,应提供适当的通气条件。
注意:除步骤 2.9 外,其余所有步骤中使用自来水替代 M9 均获得了良好的同步化结果。 - 24 h后,停止旋转,于2,000 x g离心收集线虫沉淀。 g 10 °C 下持续 1 分钟。
- 将相应基因型的线虫沉淀重悬后,取 30–50 µL 接种于已涂布 OP50 并标记相应基因型的 150 cm NGM 平板上。部分 RAC1/CED-10 线虫呈现死亡表型,此为 RAC1/CED-10 基因型的固有特性(个人观察)。因此,此类突变体应接种双倍体积,并于次日进行观察。
注意:接种线虫的数量取决于漂白步骤的产量。每块平板上的线虫数量不得超过250条,否则食物会更快耗尽,导致线虫进入饥饿状态。可合理利用不同品系发育时间的差异,先记录野生型线虫的首次排便周期,随后记录RAC1/CED-10线虫的排便周期(见下一部分)。 - 孵育34小时后,检查幼虫发育至L4阶段的野生型蠕虫。RAC1/CED-10蠕虫达到相同发育阶段需要40小时。6通过测量体型(约650 µm)并检查其月牙形的阴门结构,区分L4幼虫与L3幼虫及年轻成虫12.
3. 记录肠道蠕动
- 用 3 mL M9 缓冲液洗涤平板,将 L4 期线虫回收至两个 1.5 mL 离心管中。
- 在 2,000 × g 条件下离心 1 分钟(图 1A),弃去上清液,加入 1 mL 新鲜 M9 缓冲液。重复此步骤 3 次。
- 将洗涤后的线虫转移至不含 OP50 的 NGM 平板中(图 1B)。通过上述洗涤及最终铺板步骤,去除过量细菌。
- 将线虫逐个转移至含有 5 µL 接种 OP50 细菌的 12 孔板中(图 1C)。在 20 °C 条件下适应 1 小时。
注意:这些平板在接种细菌后已预先晾干再加入线虫。建议不要提前准备这些平板,因为细菌过度生长会干扰排便周期的观察。 - 将含有线虫的 12 孔板置于显微镜下,定位一只线虫并开始录像。记录 15 分钟内的排便周期(共 15 个周期;图 1D)。使用 5 倍物镜配合具备 12 位分辨率和每秒 60 帧(fps)帧率的相机进行成像。通过 Windows 系统的截图工具进行视频采集。当观察到第一个排便周期时开始录制。
注意:若显微镜连接至计算机,可直接使用截图工具录制屏幕画面。我们强烈建议使用计算机计时器监测排便周期,在每次排便周期结束时点击“计圈”按钮。
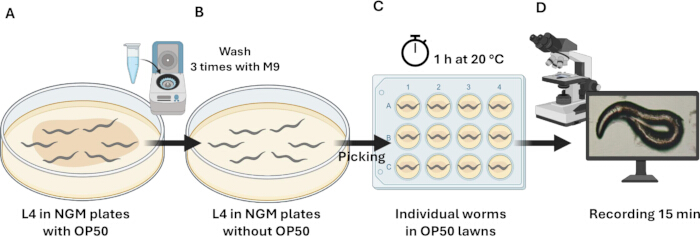
图1:测量肠道蠕动的实验方案示意图。(A)处于L4发育阶段的同步化蠕虫。这些蠕虫经收集后用M9缓冲液清洗3次。(B)将清洗后的蠕虫接种至不含OP50的NGM平板上。(C)将单个蠕虫转移至含有OP50的12孔板中,在20 °C下爬行1小时。在此期间,蠕虫适应新的培养环境,并从转移操作带来的应激中恢复。(D)对单个蠕虫进行15分钟的录像,以分析其肠道蠕动情况。请点击此处查看该图的放大版本。
4. 排便周期的分析
注意:在 C. elegans 中,排便运动程序由复杂的遗传网络调控,包含有节律的周期性活动。该程序由三个依次发生的、不同的肌肉收缩步骤组成,每个步骤均可在解剖显微镜下清晰观察到。第一步为体壁后部肌肉收缩(pBoc),随后是体壁前部肌肉收缩(aBoc),最后是肠道肌肉收缩(EMC),导致肠道内容物排出(Exp)13(图2)。
- 在 20 ˚C 下进行实验。所有视频录制完成后,开始数据分析。
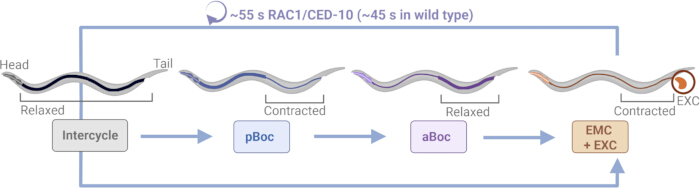
图2: 排便周期在 秀丽隐杆线虫 RAC1/CED-10 突变体. 示意图展示 秀丽隐杆线虫 RAC1/CED-10突变线虫的排便周期。pBoc表示后部体壁肌肉收缩;aBoc表示前部体壁肌肉收缩,EMC + EXC对应肠道内容物的排出。在未受干扰、正常进食的野生型动物中,该运动程序每45秒高度规律地启动一次。18线虫头部朝左,尾部朝右。排泄(EXC)结构以橙色标出。该图已根据原图修改6. 请点击此处以查看此图的放大版本。
5. 视频分析
- 使用视频播放程序打开一个视频。
注意:我们使用的是 Windows Media Player Legacy v12。也可使用其他视频播放程序。 - 准备电子表格文件。打开提供的模板文件(补充表 1),在指定字段中输入视频文件名和线虫大小(可选),然后开始播放视频。
- 定义并记录第一次排泄。将时间零点定义为线虫置于显微镜下时开始记录的时刻。观察线虫的肛门区域,识别第一次排泄事件,并在电子表格中标记为“第一次排泄”的单元格中记录该事件的时间(单位:秒)。
注意:由于记录前一次排泄发生的时间未知,不同线虫的首次排泄时间会有所差异(例如,线虫1 = 5 秒,线虫2 = 26 秒,线虫3 = 34 秒)。 - 记录后续排泄事件:继续播放视频,依次记录每一次后续排泄事件(第二次排泄、第三次排泄等),直至总共记录16次排泄事件。
- 计算周期间隔:模板将自动计算连续两次排泄之间的时间间隔(例如,第二次排泄 − 第一次排泄;第三次排泄 − 第二次排泄;……)。将这些间隔作为排泄周期长度。
- 确定总周期时间:记录完16次事件后,模板将计算线虫完成15个周期所需的时间。该数值将显示在电子表格中标记为“总时间”的单元格中。对每条线虫重复此过程。
注意:目前尚无自动化软件能够可靠地检测 C. elegans 的排泄周期。尽管 WMicrotracker 等平台在量化运动参数(如速度、移动距离、线虫数量或体长14,15)方面有效,但其分辨率不足以监测肛门区域并识别收缩或排泄事件。因此,仍需人工评分,这与咽泵活动检测实验中所观察到的局限性类似16。
6. 周期长度测量
- 将排泄周期长度记为两次连续排泄之间的时间。计算方法为:用下一个周期的结束时间减去当前周期的结束时间,具体说明见 表1 和公式1。
循环周期(n)(单位:秒)= 排泄时间(n+1)- 排泄时间(n) 公式1
周期长度 (1st) = 66 秒 ((排泄时间 2 = 71 秒) - (排泄时间 1 = 5 秒)) - 对于每个数据集,使用统计分析软件计算排便周期的平均周期、标准差(SD)和平均值的标准误差(SEM)。
7. 排便周期的节律性或规律性
- 变异系数(CV)用于描述相对变异性,反映数据相对于均值的离散程度。此前已被用作衡量秀丽隐杆线虫(C. elegans)排便周期规律性的指标6。通过应用公式2计算每条线虫的CV。
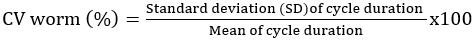 公式2
- 对于每种秀丽隐杆线虫(C. elegans)品系,使用统计分析软件计算平均CV、标准差(SD)以及均值的标准误差(SEM)。
8. 统计分析
- 在三个独立的重复实验中进行实验,每种条件下分析五条蠕虫。使用Shapiro-Wilk检验(α=0.05)评估数据的正态性,该方法推荐用于 n < 50 的情况。
- 由于周期长度的测量值不符合正态分布,因此采用非参数的Mann-Whitney检验进行分析,该方法适用于小样本量下中位数差异的检测。相反,变异系数(CV,%)数据呈正态分布;使用带有Welch校正的非配对t检验进行分析,以校正方差不齐的情况。
- 使用统计分析软件完成所有统计分析。对于包含两个以上菌株的实验,应采用其他检验方法,例如单因素方差分析(one-way ANOVA),并持续验证样本分布情况。
结果
本研究在帕金森病早期的 C. elegans RAC1/CED-10 模型中应用了所述的基于视频的检测方法,以定量评估肠道蠕动功能。鉴于 RAC1/CED-10 突变体存在发育延迟,实验中对同步化培养的线虫群体进行了调整,以确保与野生型对照组在发育阶段上匹配。在 L4 阶段对单个线虫进行录像,并分析连续 15 个排便周期,以确定周期长度和规律性。该方法可实现对肠道运动功能的精确、高分辨率测量,并能够检测与 C. elegans 帕金森病早期表型相关的细微非运动性改变。
用于同步实验的 RAC1/CED-10 动物的发育延迟
由于在 C. elegans RAC1/CED-10 突变体中观察到发育延迟6,因此与野生型动物平行进行的同步化实验需要进行时间上的调整。为校正这一延迟并确保在视频记录期间进行发育阶段匹配的比较,RAC1/CED-10 动物比野生型对照组提前 6 小时接种到培养板上。
利用 RAC1/CED-10 蠕虫研究与帕金森病相关的排便功能改变
便秘可能在运动型帕金森病(motor-PD)诊断前二十年就已出现,使其成为提示疾病早期 onset 的最早可识别症状之一17。我们先前已证明,在神经退行性病变发生之前的 L4 发育阶段,RAC1/CED-10 模型即表现出非运动性改变6,其中肠道蠕动异常便是其中之一。如实验方案所述,我们在 L4 阶段对单条线虫进行了记录。图3 展示了一条典型的 RAC1/CED-10 线虫。
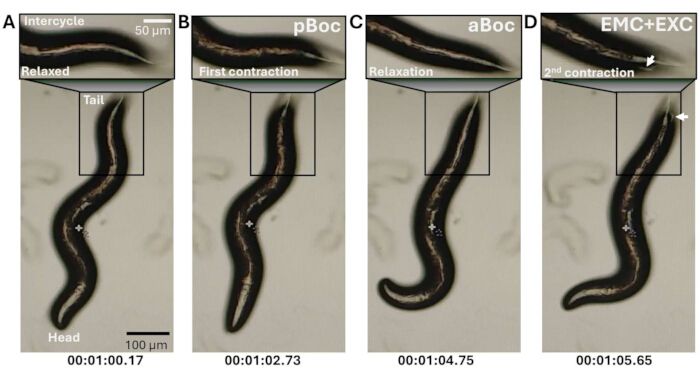
图 3:C. elegans RAC1/CED-10 突变体动物排便周期的图像展示。 RAC1/CED-10 突变体中排便周期的图像。线虫方向为头部朝下。水平框标示的尾部区域显示了排便运动步骤的序列,如文献6所述,并在图 2中示意图化:(A)前段肠道松弛,(B)后部体壁收缩(pBoc),(C)前部体壁收缩(aBoc),以及(D)肠肌收缩并伴随排泄(EMC+EXC)。周期持续时间在下方标示。箭头指示排出的物质。请点击此处查看该图的放大版本。
用于分析肠道蠕动的两个参数是周期长度和周期规律性13。首先,我们测量了每条线虫的15个周期,如图4所示。
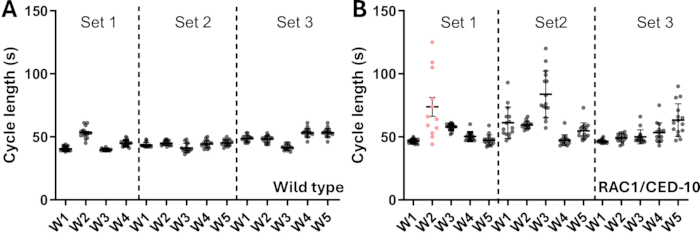
图 4:野生型(A)和 RAC1/CED-10 个体(B)的周期持续时间。 实验组 1、2 和 3 表示独立重复实验。每个点代表一次排便周期,每条线虫包含 15 个周期。B 中的粉红色 W2 因未完成 15 个周期而被排除在后续分析之外。W = 线虫。本图未进行统计学分析。请点击此处查看该图的放大版本。
在不同的实验重复中(Set = 1、2、3),每条线虫均以 W 标记(W1、W2 等)。针对每条线虫(W),在 15 分钟内共进行 15 次测量。在第一组野生型动物的实验中(图 4A,Set 1),有一条线虫因处于年轻成虫阶段而非 L4 阶段而被排除。对于 RAC1/CED-10 线虫,有一条因在数据处理后发现其在 15 分钟内未完成 15 个周期而被剔除。因此,我们建议使用时钟应用程序记录已完成的周期数,因为 RAC1/CED-10 线虫的运动节律较为不规则。
根据这些个体数值,计算了野生型蠕虫和RAC1/CED-10突变体的周期长度的平均值和标准差(表1 和 图5)。如先前报道6,RAC1/CED-10蠕虫的周期比野生型蠕虫更长且规律性更差。野生型蠕虫的周期较短(46 s ± 5 s),而RAC1/CED-10突变体的周期较长(55 s ± 12 s)。
表1:单条线虫排泄周期测量的代表性数据集。该表格总结了从三条线虫获得的代表性数据。对于每条线虫,数据集包括视频文件编号、体长(µm)、对应每次排泄事件的时间点(单位为 s)、连续15个周期的计算周期长度,以及总记录时长。周期长度通过相邻排泄时间点相减得到(例如,线虫 VID_154028 的第一个周期长度为 66 s,由 71 - 5 计算得出)。其余条目展示了另外两条线虫的类似测量结果,体现了该数据集中典型的变异性。请点击此处下载该表格。
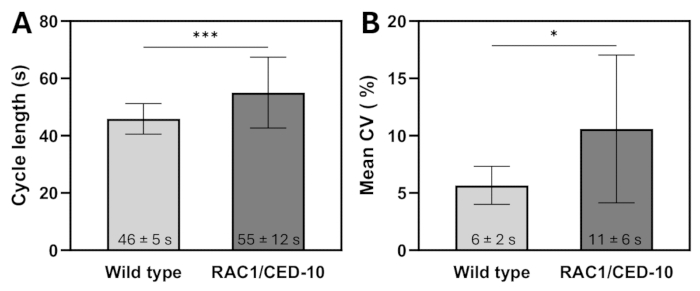
图 5:排便周期参数。(A)野生型与 RAC1/CED-10 线虫的排便周期长度;(B)平均变异系数(CV)。数据以均值 ± 标准差(SD)表示。N=3,n=5。排便周期长度采用非参数 Mann-Whitney 检验进行分析;平均 CV 数据采用带 Welch 校正的非配对 t 检验。*** p < 0.001,* p < 0.05。统计分析方法详见步骤 8。请点击此处查看该图的放大版本。
通过计算平均变异系数(CV)来评估周期规律性,该值为实验中每条线虫变异系数的平均值18。图5B显示,与野生型动物相比,RAC1/CED-10突变型动物的周期变异性更大。野生型的平均CV为6% ± 2%,而RAC1/CED-10突变型为11% ± 6%。
补充表1:计算排便周期长度的模板 秀丽隐杆线虫用户应在第一列中输入每个蠕虫文件的名称,并可选择性记录蠕虫的体长。随后根据视频回放结果,依次输入每次排泄事件(排泄1-16)对应的时间(单位:秒)。模板将自动计算连续两次排泄之间的时间间隔(排泄N时间 - 排泄N-1时间),即排便周期长度。当输入16次排泄事件后,完成十五个完整周期所需的总时间将自动计算并显示在“总时间(mm:ss)”单元格中。 请点击此处下载此文件。
讨论
C. elegans 作为研究帕金森病前驱期的有力模型
尽管大多数神经退行性疾病模型集中于晚期病理研究19,对疾病早期发病机制的研究在技术上仍然具有挑战性。传统哺乳动物模型(如小鼠、大鼠或灵长类动物)受限于较长的生命周期和高昂的成本。C. elegans作为一种微型线虫,具有3周的寿命、3天的繁殖周期以及良好的遗传可操作性,克服了上述局限,成为开展高效、大规模神经退行性研究的理想体系6。
C. elegans RAC1/CED-10 突变体为研究帕金森病(PD)早期发病机制提供了三个关键优势。首先,其精确的时间分辨率使得神经退行性事件能够在明确定义的发育阶段中被追踪6。其次,该模型具有极高的实验灵活性,具备遗传操作简便、维护成本低以及适用于高通量筛选的特点6,7。第三,由于C. elegans本身缺乏内源性α-突触核蛋白同源物,包括在RAC-1/CED-10模型中也是如此,因此具有重要优势。研究人员可在无α-突触核蛋白干扰的情况下研究帕金森病的临床前期机制,从而避免晚期阶段特征的干扰6 。这使得该模型成为研究初始致病事件的理想工具,并可后续引入α-突触核蛋白表达以探究晚期发病机制。最后,CED-10与人类RAC1之间在进化上的同源性保守,确保了其直接的转化医学相关性10,20。
C. elegans 模型非常适合进行药理学检测17,21。由于 RAC-1/CED-10 突变体会表现出发育迟缓,在实验初始阶段无法实施盲法,因其表型无法像野生型那样被隐藏。然而,在进行药理学筛选时,可通过采用双盲设计来尽量减少偏差,即负责收集数据的实验人员和负责数据分析的人员均不了解所有实验变量。
便秘几乎影响所有帕金森病(PD)患者在前驱期的阶段,通常早于运动症状的出现5。C. elegans 为研究这种早期胃肠道功能障碍提供了独特优势。与需要侵入性干预的哺乳动物模型不同,这种线虫的透明性和结构简单性使其能够以非侵入方式实时观察其高度刻板的排便运动程序——这一特性对于量化肠道蠕动缺陷至关重要。秀丽隐杆线虫(C. elegans)短暂的生命周期和精确的节律性排便行为,使其能够快速且可重复地分析功能损伤。在 RAC1/CED-10 突变体中,排便时间的异常与前驱期帕金森病中观察到的类似便秘表型相一致6。这些发现为后续在更复杂的哺乳动物(如小鼠、灵长类)中进行验证提供了基础框架,同时直接将 RAC1 信号通路与肠神经系统功能障碍联系起来。
除了其机制上的相关性外,RAC1/CED-10模型还具有转化应用价值。排便周期检测方法操作简便、可重复性强且易于扩展,适用于早期药物筛选。能够使周期时序或规律性恢复正常的小分子化合物可被快速优先筛选出来,用于后续哺乳动物模型的验证,从而为潜在治疗候选物提供一种经济高效的筛选手段。由于胃肠道功能障碍在多种神经退行性疾病中普遍存在4,该检测方法的应用范围也可超越帕金森病(PD),既可作为发现新靶点的工具,也可成为连接基础研究与临床前研究的转化桥梁。
实验方案中的关键步骤
我们提出了一种改进的方法,用于研究RAC1/CED-10突变体中的肠道运动障碍,这是一种与帕金森病前驱期相关的关键非运动表型。尽管该方法基于已建立的排便检测方法18,22,但本实验方案针对RAC1/CED-10突变体带来的独特挑战进行了优化,以确保结果的可靠性和可重复性。
RAC1/CED-10 突变体的关键适应性变化如下:
同步化调整:与野生型菌株相比,RAC1/CED-10突变体的繁殖力降低(个人观察结果)。为弥补后代产量较低的问题,在同步化过程中需进行如下调整:采用平板块法时,应使用较大的接种量,体积约为野生型菌株的2倍,以应对发育差异性的增加;采用成年 gravid 成虫法时,转移15–20只成虫(标准为10只),以确保获得足够数量的胚胎用于后续实验。
漂白剂敏感性:RAC1/CED-10 突变体的胚胎对次氯酸盐处理表现出更高的敏感性。为尽量减少损伤,与野生型方案相比,应将漂白处理时间缩短20%-30%,并在处理后通过显微镜检查胚胎完整性。
发育延迟的注意事项:RAC1/CED-10 突变体的成熟速度比野生型线虫更慢10。为了在记录过程中实现适当的同步,应首先对野生型线虫进行视频分析,以建立时间参考,并根据形态学阶段(例如阴门形态)而非实际年龄来对突变体进行记录。
工作流程原理:使用野生型 C. elegans 进行初步实验可控制环境变异性,并为正常的排便节律提供参考基准。由于 RAC1/CED-10-10 突变体存在发育延迟,记录时间表应相应调整,优先进行发育阶段匹配(而非严格年龄匹配)的比较。
品系特异性时间考量:突变体的发育延迟需要灵活安排实验时间,重点在于匹配不同基因型之间的发育阶段,而不仅仅依赖于实际年龄。
线虫模型的局限性
尽管秀丽隐杆线虫(C. elegans)缺乏哺乳动物系统的解剖复杂性和通路冗余性——这在某些转化研究中存在局限性——但其结构简单性有利于研究特定的生物学功能。以肠道蠕动为研究焦点正是利用了这一优势,因为线虫简化的生理结构使得对特定功能参数进行精确分析成为可能。尽管仍需开展相应的哺乳动物研究以验证治疗效果,但C. elegans为研究保守的生物学过程的机制提供了卓越的平台21,23。
我们的模型还缺乏内源性 α-突触核蛋白,这对于研究早期、临床前帕金森病(Parkinson's disease, PD)具有优势,因为在该阶段便秘可能作为前驱症状出现3。排便周期长度提供了一种客观且高通量的检测指标,但它仅反映胃肠道功能障碍的一个方面,且不具备疾病特异性。
尽管该检测方法无法捕捉到人类帕金森病中出现的进行性α-突触核蛋白聚集、复杂的神经退行性变或与年龄相关的系统性病理变化5,但我们观察到多巴胺能和GABA能功能的改变以及Rac1信号通路的紊乱6,这凸显了该模型在机制上的相关性。因此,该模型在解析帕金森病早期相关的神经-胃肠道机制及保守通路方面仍具有重要价值。
披露
作者无任何利益冲突需要披露。
致谢
A.M.J. 感谢西班牙巴塞罗那自治大学生物技术博士项目框架下的博士奖学金(FPU18/05190)。AL 和 AMJ 感谢 MCIN/AEI//10.13039/501100011033/FEDER 资助的项目 PID2021-122645OB-100 和 PID2024-1576370B-100。 "一种构建欧洲的方式";的 "Severo Ochoa" 卓越中心计划,R&D CEX2019-000917-S(FUNFUTURE)、CEX2023-001263-S(MATRANS42)、加泰罗尼亚自治区政府2021S00446项目,以及欧盟“地平线欧洲”研究与创新计划(资助协议编号101057527,NextGEM)。EDC感谢由加泰罗尼亚生命与健康科学研究所研究与创新基金会(IRIS-CC)和加泰罗尼亚健康科学高等研究基金会(FESS)资助的APR-2024项目(PMI24006)提供的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 12孔培养板,经处理,无菌 | Labbox | CCPP-012-100 | |
| 琼脂 | VWR | AAA10752-0E | 制备NGM平板 |
| 胰蛋白胨 | VWR | 90000-264 | 制备NGM平板 |
| 漂白剂 | 任何家庭 | 对于漂白过程 | |
| CaCl2 | Labkem | CACH-02P-1K0 | 制备NGM平板 |
| Centrifuge Sorvall ST8 | Sorvall | 15194923 | |
| 胆固醇 | Sigma-Aldrich | C8667-25G | 制备NGM平板 |
| 时钟 | Windows | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| 乙醇 | Panreac | 131086.1214 | 制备NGM平板 |
| 培养箱 20 °C | 生态遗传学 | CIR180 | |
| KH2PO4 | Sigma-Aldrich | P0662 | 制备M9缓冲液 |
| KPO₄ | Sigma-Aldrich | P5655 + P3786 | KH2PO4 + K2HPO4;制备NGM平板 |
| MgSO4 | Sigma-Aldrich | M7506 | 制备NGM平板;制备M9缓冲液 |
| 显微镜 | Olympus | 奥林巴斯 BX51 | |
| Na2HPO4 | Sigma-Aldrich | S9763 | 制备M9缓冲液 |
| Na2HPO4 | Sigma Aldrich | 7558-79-4 | 制备M9缓冲液 |
| NaCl | Sigma-Aldrich | S5886 | 制备NGM平板;制备M9缓冲液;LB |
| NaOH | Sigma-Aldrich | 567530 | 对于漂白过程;LB |
| Windows 剪取工具 | Windows | v 11.2504.42.0 | |
| 胰蛋白胨 | CONDA | 1612 | LB |
| 酵母提取物 | CONDA | 1702 | LB |
参考文献
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
重印与许可
