现代神经科学需要探索多种物种之间的差异,包括实验啮齿类动物和人类。然而,在涉及大脑较大的哺乳动物时,技术难题随之而来。该方法针对差异较大的哺乳动物中神经元群体的种间变异进行研究,获得可比较的结果,进而绘制出揭示进化模式的图谱。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
大多数神经生物学研究是在实验啮齿类动物上进行的。尽管哺乳动物大脑之间存在许多相似之处,但也存在重要差异,这些差异在转化研究中可能产生误导。在脑可塑性,特别是神经发生方面,已发现显著的物种间差异。由于进化过程中的权衡,不同的神经发生过程可能占据主导地位,从而在脑结构和哺乳动物之间表现出差异,并改变不同物种(如小鼠与人类)的可塑性潜力。比较差异较大的物种会引发多个问题:当涉及大脑体积较大的物种时,比较研究会遇到技术困难;不同实验室采用异质性的实验方法可能限制结果的可比性;这种异质性可能与哺乳动物神经发育过程的时间进程不同有关,从而为比较增加了额外变量。
为了克服这些局限性,建立了一种研究哺乳动物皮层第II层未成熟神经元群体在物种间差异的方法,所涉哺乳动物在脑容量、大脑沟回结构、社会生态位和年龄方面存在显著差异。尽管存在一些无法完全标准化的变量,本文提出了一种方法,通过减少脑组织采集过程中的异质性,并采用共同的解剖结构作为参考点,以在对应的脑区水平上进行细胞计数。所获得的数据(如细胞密度)可映射到系统发育树上,以揭示进化模式,并可分析其与神经解剖学特征(如脑容量、皮层表面积)之间的协变关系。该方法已显示出不同系统发育类群之间皮层未成熟神经元数量存在显著差异,并揭示了其与脑容量之间的协变关系。该方法还可用于量化同一物种在不同发育阶段的差异,并可推广至其他多种哺乳动物及其他生物学过程,以获得可比较的结果,从而更准确地量化成年脑中不同细胞群体的数量,支持脑可塑性的研究。
引言
神经科学研究在很大程度上依赖近交系小鼠和大鼠,以将研究结果外推至人类。尽管在分子、细胞甚至解剖结构方面存在诸多相似之处,但重要的种间差异仍然存在,这可能对临床前数据的解释产生误导1,2。尽管需要开展比较研究,但当涉及较大体积的脑组织时(例如,从小鼠平均0.5 g到人类1300 g;图1A),技术与实际操作上的困难往往限制了此类研究的进行。此外,不同实验室采用的实验方法存在异质性,这可能限制结果之间的比较,尤其是定量分析,有时会引发争议。脑结构可塑性研究便是如此,特别是与神经发生过程相关的研究3,4,5,这一主题对于理解发育期神经可塑性及脑修复机制具有重要意义6,7。
脑可塑性领域的最新发现强烈表明,在进化过程中,不同类型的神经发生过程在发生频率、速率以及解剖学位置上出现了显著差异8。一个例子是,与实验啮齿类动物相比,成年大型哺乳动物中由干细胞驱动的神经发生明显减少5,9,10,这可能与脑区和功能在适应生态压力过程中表现出的不同程度的扩展有关7,8,同时也可能与不同的神经发育时间进程相关11,12。神经发生的速率在小鼠与人类之间似乎存在显著差异,从而引发了研究结果可否转化的问题13。
另一方面,一种新型的“不分裂的神经发生”现象,表现为神经元停滞于成熟受阻阶段(即所谓的未成熟或静息神经元14,15,16,17,18,19),据推测其在小脑容量到大脑容量的物种中逐渐增加20,21。有趣的是,这种不依赖干细胞的未成熟神经元群体存在于大脑皮层中(在具有脑回结构的物种中,该区域负责高级认知功能22,23),远离经典的神经发生区域;而后者主要与嗅觉和空间导航相关,在无脑回结构的物种中仍具有重要意义7,8。这些跨脑结构和哺乳动物物种之间的差异已超出单纯的比较研究兴趣,因为它们可能在从小鼠到人类的转化研究中影响可塑性的潜力。因此,至关重要的是以“可比较的方式”评估这些差异在多大程度上代表了广泛不同的哺乳动物之间的系统发育变异,尤其应重点关注实验啮齿类动物与灵长类动物之间的比较。
本文介绍了一种近期建立的研究方法,用于分析在脑大小、脑回复杂程度及社会生态位方面存在显著差异的哺乳动物中,大脑皮层第II层未成熟神经元(cINs)种间变异的方法22,24,25。该方法基于三个原则:i)选择多个(多样化的)哺乳动物物种,并采用相同的实验流程进行平行处理;ii)尽量减少在结构差异较大的脑组织中难以完全标准化的变量(如固定程序、死后间隔时间、年龄),并通过使用所研究细胞群体中广泛共有的特征作为内部阳性对照,来解决免疫细胞化学中抗体的物种特异性问题;iii)确立对应的解剖结构作为参考点,以便在不同物种脑组织的相应解剖水平上进行细胞计数(图1B 和 图2)。通过计数使用公认标记物双皮质素(DCX15,17,26)识别的细胞所获得的数据(例如细胞密度),可映射到系统发育树上以揭示进化模式,并进一步分析其与脑大小、脑回复杂程度及皮层表面积等不同参数之间的协变关系。
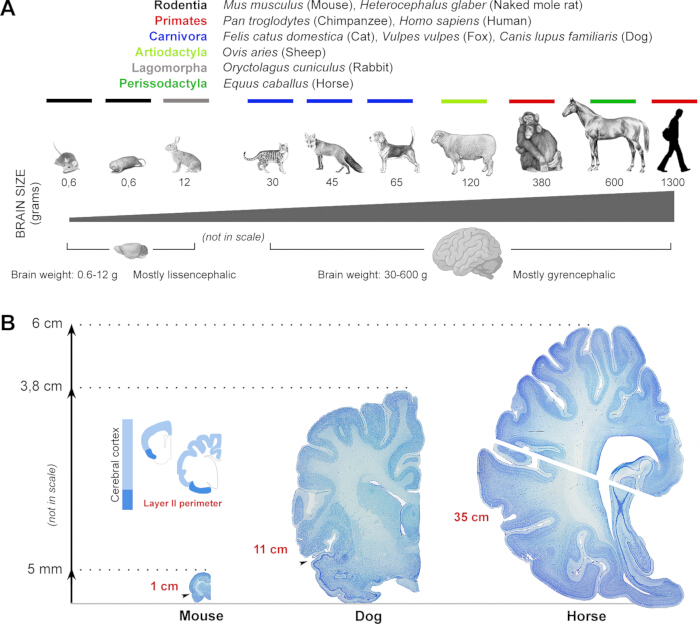
图 1:用于评估皮层被膜中cINs分布与数量的多种不同哺乳动物脑组织的处理。(A)属于不同物种和目类的哺乳动物具有显著差异的脑大小、脑沟回程度以及皮层扩展程度。脑图标经BioRender授权复制。(B)从脑大小和皮层被膜延伸程度差异显著的动物脑组织中切取的代表性冠状面甲苯胺蓝染色切片。使用组织学染色的连续切片(冰冻切片,冠状面,厚40 µm)以识别每种动物的主要神经解剖结构(见图 3);注意脑大小和皮层周长的显著差异。图A中的动物图标已获La Rosa等22许可复制。请点击此处查看该图的放大版本。
最后,由于所有可塑性过程通常都会随着年龄增长而逐渐减弱27,28,比较神经可塑性研究中的另一个问题是评估这种减弱过程在不同物种中的时间进程差异,而这些差异可能与哺乳动物间不同的神经发育过程时间进程相关12,29,30。事实上,存在快速成熟(如小鼠)与缓慢成熟(如灵长类)物种这一事实,进一步限制了目前最常用的模式系统——实验小鼠——在解决生物医学科学难题方面的能力。本文所述方法还可用于分析各物种生命周期中不同年龄阶段的细胞群体,并进一步比较不同物种间的变化趋势。在小脑容量与大脑容量不同的哺乳动物之间,已发现cIN密度的系统发育差异以及这些细胞随年龄持续存在的差异22,28。
访问受限。请登录或开始试用以查看此内容。
方案
所有动物实验均符合相关的国家和机构法规。小鼠组织由意大利奥尔巴萨诺的神经科学研究所Cavalieri Ottolenghi(NICO)提供,经意大利卫生部授权(RRID: MGI:3696370),承蒙Serena Bovetti和Charles River Laboratories惠赠。裸鼹鼠组织由伦敦玛丽女王大学(英国)在依据1986年《动物(科学程序)法案》附表1实施安乐死后立即采集。兔类实验遵循欧洲共同体理事会指令86/609/EU及意大利法律(DL.vo 116/92),并获得意大利卫生部批准(授权号66/99-A)。绵羊和马脑组织在欧盟指令86/609/EEC规定及持续兽医监督下,从商业屠宰场获取。犬脑组织由法国里昂的MarshallBio Laboratories在获得必要授权后提供尸后样本;猫脑组织在主人同意下,于帕多瓦大学常规诊断性尸检过程中获取尸后样本。所有操作均遵循欧盟和意大利法律法规。黑猩猩样本的处理遵循国际医学科学组织理事会(CIOMS)的国际指导原则,并依据美国国立卫生研究院实验动物福利办公室(NIH-OLAW)许可A5761-01进行(各动物种类及实验详情参见补充表1及参考文献22,25)。
1. 收集脑组织
- 直接或从其他机构及组织库收集大脑,但仅限使用完整的大脑半球。与相关机构共同制定从动物物种中提取大脑的最佳操作流程,尽量减少对半球的损伤,并确保在取出后最短的死后间隔时间(PMI,见下文注释),并迅速浸入固定液中。
注释:根据所关注抗体的敏感性,需注意PMI的影响。鉴于双皮质素(doublecortin, DCX)对降解高度敏感,应收集PMI在0–1小时范围内的样本(黑猩猩除外,其PMI最长可达14小时,但并未影响染色质量,参见补充表1)。 - 鉴于动物寿命存在较大差异,应在研究涉及的不同哺乳动物中预先确定将要采集的年龄组,以获得可比较的数据。
- 为本研究设计并建立可比的年龄分组,需分析两个关于动物历史与多样性的数据库信息:AnAge(一个经过审校的动物衰老与生命史数据库)和Animal Diversity Web(一个关于动物自然史、分布、分类及保护生物学的在线数据库)。
- 参考美国兽医协会(AVMA)对犬类生命阶段的分类31,将动物寿命划分为四个阶段(一个青春期前阶段和三个青春期后阶段,统称为“成年”),原分类将寿命分为六个阶段:幼犬期、青年期、成年期、成熟期、老年期和高龄期。
- 通过合并老年期与高龄期,以及成年期与成熟期,采用以下术语:青春期前、青年成年、中年、老年/高龄22。
2. 脑组织固定与处理
注意:固定程序可能因脑的大小以及对某些动物物种的伦理问题而异(大多数大脑较大的灵长类动物或马无法进行灌注固定,必须在取出后浸入固定液中进行固定)。
- 将脑组织完全浸入固定液(推荐使用4%多聚甲醛或10%福尔马林)中。
注意:固定时间根据脑组织大小而异(例如,犬脑约需3周,马脑约需3个月,见补充表1)。避免固定时间过短或过长,以保持目标抗原的完整性。 - 使用直尺(确保切面平直)和刺刀沿脑组织优选半球切成等厚切片(每片厚1–1.5 cm)。
- 将脑切片浸入0.1 M磷酸盐缓冲液(PB)中(含28.49 g磷酸氢二钠和7.8 g磷酸二氢钠溶于蒸馏水中,pH 7.4),置于摇床上轻柔振荡24小时。如需要(见下文注释),次日弃去原液,更换新鲜的0.1 M PB缓冲液(pH 7.4)。
注意:0.1 M PB缓冲液的洗涤体积和次数依脑组织大小而定(例如,小鼠脑约30分钟,马脑约3天)。确保脑组织完全浸没于0.1 M PB中,并确认福尔马林、血液及组织残渣已完全清除后,方可停止洗涤。 - 将切片依次浸入浓度逐步增加的蔗糖溶液(10%、20%至30%)中进行冷冻保护,溶剂为0.1 M PB(pH 7.4),并在摇床上轻柔振荡处理。
注意:蔗糖溶液的用量依脑组织大小而异。确保脑切片完全浸没于蔗糖溶液中,并在转移至更高浓度蔗糖溶液前已完全沉底。
3. 半脑整体冷冻切片
- 使用弯头镊子去除脑切片上的脑膜,以避免切片过程中出现问题。
- 将切片放入盛有最佳切割温度(OCT)包埋剂的包埋模具中。如果切片未完全覆盖模具,可裁剪一块略大于脑切片的方形Parafilm,在其中心滴加OCT介质,然后将切片置于OCT之上。
- 将切片浸入-50 °C的液氮冷却异戊烷(300 mL)中进行速冻,直至OCT介质完全变为白色。脑切片可在-80 °C条件下长期保存,直至进行切片处理。
- 切片前,将脑切片在-20 °C下放置至少5小时,使组织缓慢且均匀地达到与冷冻切片机相同的温度。
- 使用冷冻切片机将切片切成40 µm厚的连续冠状切面,切片室内温度应维持在-20 °C至-25 °C之间。
- 将游离切片收集至12孔板中,并储存在冷冻保护液中(150 mL甘油、150 mL乙二醇、150 mL蒸馏水和50 mL F缓冲液[将1.682 g一水合磷酸二氢钠和0.385 g氢氧化钠溶于蒸馏水中,pH 7.4]),每孔1 mL,若为较大脑组织则可增加液体量以完全覆盖切片,于-20 °C保存直至染色。
注意:完整半脑切片的大小因脑体积而异。较大的脑组织(如黑猩猩、马)需分为两个相等的部分(背侧和腹侧),以便在冷冻切片机中处理。此时,游离切片可分别收集于两个6孔板中。另一种方法是使用滑动式切片机对大脑物种的半脑进行切片,该方法可处理更大尺寸的组织块。
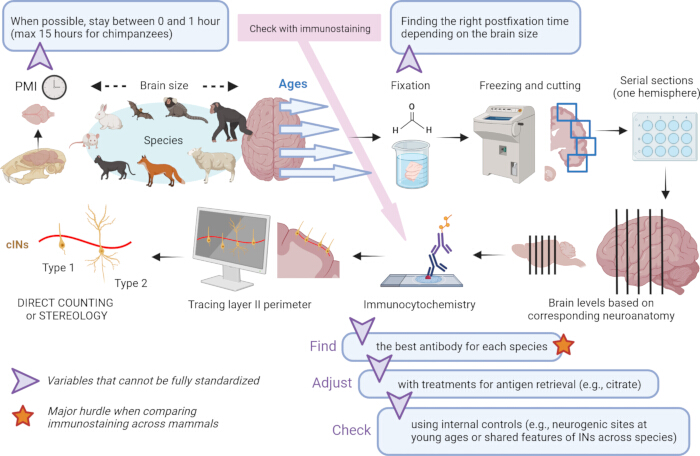
图 2:采用相同流程处理差异较大的脑组织,并应对无法标准化的变量。 在上述方法中,所有可标准化的步骤均以相同方式进行(通用固定、对整个半球进行相同厚度的连续冠状切片、通用免疫细胞化学流程、细胞计数)。该图使用 BioRender 创建(https://app.biorender.com/)。 请点击此处查看此图的放大版本。
4. 组织学染色
- 选取连续冠状切片(每12片中取1片)。为获得此间距,从12孔板中取出某一孔内的所有切片。使用这些切片以获得整个半脑的完整表征,并作为参考,用于在不同研究物种之间选取可比较脑区水平的冠状切片(见第5节)。将切片贴附于1%明胶包被的载玻片上,室温干燥数小时。
- 配制以下溶液(每种溶液150 mL):50%、70%、96%、100%乙醇、二甲苯和甲苯胺蓝溶液。
- 染色程序:将载玻片依次浸入浓度递增的乙醇溶液(50%–100%),50%–70%各1分钟,96%–100%各2分钟,然后转移至二甲苯溶液中1分钟。
- 将载玻片按相反顺序处理:先置于二甲苯溶液中1分钟,再依次浸入浓度递减的乙醇溶液(100%–50%),100%–96%各2分钟,70%–50%各1分钟。
- 将载玻片放入150 mL蒸馏H2O中漂洗2分钟。
- 将载玻片置于甲苯胺蓝染色液中染色(5–10分钟)。此步骤后,染色切片呈深蓝色。
注意:组织学染色中切片在各溶液中的处理时间可能因物种而异。建议先对目标物种的脑切片进行预实验,以确定最佳染色条件。 - 用150 mL蒸馏H2O漂洗载玻片1分钟。
- 进行分化步骤:将载玻片依次浸入浓度递增的乙醇溶液(70%–100%),70%中1分钟,96%–100%各2分钟,然后转移至二甲苯溶液中1分30秒。在此过程中,切片颜色将由深蓝色逐渐变为天蓝色。
- 封片前确保切片仍保持上一步二甲苯处理后的湿润状态(若已干燥,需在二甲苯溶液中重新漂洗5秒)。随后将载玻片静置干燥数天。
5. 脑组织切片水平选择与免疫组织化学染色
- 以第4节获得的组织学染色切片作为参考,根据特定的神经解剖学特征确定脑区水平:第1水平(L1)——从侧脑室前部开口至L2;第2水平(L2)——从内囊前部起始处至L3;第3水平(L3)——从杏仁核前部起始处至L4;第4水平(L4)——从侧脑室后部闭合处延伸至与L2等长的范围(相同数量的40 µm厚连续切片;图3)。
注意:上述神经解剖学参考标记的目的是便于比较大小和脑回复杂程度差异显著的脑组织的大脑皮层。根据感兴趣的脑区不同,所使用的解剖学参考特征可能有所调整。 - 从每个脑区水平中选取三张等间距的冠状切片。
注意:下一步中所用每种缓冲液的体积取决于脑组织大小(例如,小鼠切片为0.5 mL/孔,马切片为1.5 mL/孔)。确保漂浮切片完全浸没于每种缓冲液中。 - 用0.01 M PBS(pH 7.4)洗涤切片三次,每次5分钟。
- 将切片在内源性过氧化物酶封闭液(0.6% H2O2,1% Triton X-100 溶于0.01 M PBS,pH 7.4;室温孵育20分钟)中孵育,或采用柠檬酸抗原修复法(蒸馏水中含10 mM柠檬酸并补充0.05% Tween 20,pH 6.0),90 °C孵育5分钟。
注意:根据固定方法/时间及目标抗原的不同,可能需要进行抗原修复以获得最佳染色效果(所用缓冲液、温度、pH值和孵育时间可能因目标抗原而异)。 - 再次用0.01 M PBS(pH 7.4)洗涤切片三次,每次5分钟。
- 将切片在封闭液(1–5% 牛血清白蛋白(BSA)、正常血清、1–1.5% Triton X-100 溶于0.01 M PBS,pH 7.4;室温孵育90分钟)中孵育。
- 将切片与一抗溶液(1–5% BSA,2–3% 正常血清,1–1.5% Triton X-100,一抗溶于0.01 M PBS,pH 7.4;4 °C轻度振荡孵育48小时)共同孵育。
注意:针对目标抗原的一抗在不同脑区和不同物种中可能表现出染色质量的差异26。需比较来自不同厂商的一组抗体,以选择适用于本研究中各物种的最佳抗体(以减少样本间的变异性)。 - 重复步骤5.3所述的洗涤步骤。
- 将切片与二抗生物素化抗体溶液(1–5% BSA,2–3% 正常血清,1–1.5% Triton X-100,二抗生物素化抗体溶于0.01 M PBS,pH 7.4;室温孵育2小时)共同孵育。
注意:细胞计数使用Neurolucida系统时采用亲和素-生物素-过氧化物酶复合物法(见第6节),因其可产生致密且持久的沉淀,便于在计数时聚焦穿过整个切片厚度。免疫荧光与共聚焦分析也可用于进行双重或三重免疫染色,以进一步表征细胞类型(相关实验方案参见文献22,25,32)。 - 使用现有试剂盒配制亲和素-生物素-过氧化物酶复合物。
注意:应在使用前至少1小时,用0.05 M Tris-HCl缓冲液(pH 7.5)配制亲和素-生物素-过氧化物酶复合物溶液(该缓冲液可为复合物形成提供稳定的pH环境),以确保充分形成复合物。 - 用0.01 M PBS(pH 7.4)洗涤切片两次,每次5分钟,再用0.05 M Tris-HCl缓冲液(pH 7.5)洗涤一次,5分钟。
注意:由于亲和素-生物素-过氧化物酶复合物溶于0.05 M Tris-HCl中,使用相同缓冲液进行漂洗可使组织适应该溶液环境。 - 将切片在亲和素-生物素-过氧化物酶复合物溶液中孵育(室温1小时)。
- 用0.05 M Tris-HCl缓冲液(pH 7.5)洗涤切片三次,每次5分钟。
- 在通风橱内,将切片置于3,3'-二氨基联苯胺(DAB)显色液(H2O2 和 DAB 溶于0.05 M Tris-HCl,pH 7.5)中孵育,直至获得理想染色效果。此过程中,切片颜色由透明逐渐变为棕褐色/酒红色。
注意:达到理想染色所需时间因分析物种而异(例如,DCX染色中小鼠切片约需2–5分钟,马切片约需20–30分钟)。应每隔2分钟检查一次染色情况,避免过度显色。 - 用0.01 M PBS(pH 7.4)洗涤切片三次,每次5分钟。
- 将切片贴附于载玻片上,干燥后用封片剂加盖盖玻片,并将载玻片静置数天使其完全干燥。
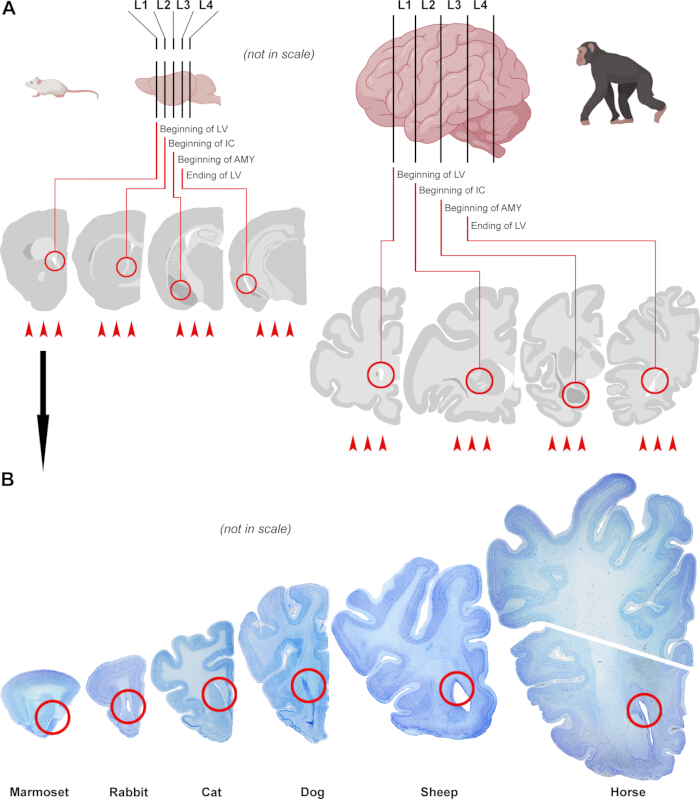
图3:建立神经解剖学脑区层面,用于研究大脑皮层中DCX+未成熟神经元的分布与数量。 在所有被研究的哺乳动物中,选取四个对应的神经解剖结构(侧脑室前起始部 [层面1,L1];内囊前起始部 [L2];杏仁核前起始部 [L3];侧脑室后闭合部 [L4];以红色圆圈标示),以确立四个从前到后的对应“脑层面”,从而以“可比较”的方式研究大脑皮层内cIN的数量。(A) 以实验啮齿类动物(小鼠,左)和灵长类动物(黑猩猩,右)为例。每个脑层面选取三张冠状切片(共12张切片;红色箭头所示),用于对每张冠状切片全层II周长范围内的细胞进行计数(注:所有切片均包含新皮层,但其中仅部分切片同时包含古皮层)。该方法旨在使分析能够在大小差异显著的脑组织中,于对应的神经解剖学层面上进行。(B) 展示了在组织学染色切片中识别不同哺乳动物物种第一层面(L1)的示例。脑与动物图标使用BioRender绘制。 请点击此处查看该图的放大版本。
6. 细胞计数
- 在工作站上打开 Neurolucida 软件,将切片置于显微镜下,并选择用于细胞计数的物镜。
注意:对于 DCX+ 细胞计数,使用 20x 物镜。 - 在低倍镜下(例如 4x),使用软件中 Trace 菜单下的 Freehand 轮廓线工具,绘制皮层第二层的轮廓,以获得周长(包括古皮层和新皮层)。
- 在屏幕左侧的 Markers toolbar 上选择用于细胞计数的符号。在本分析中,根据细胞形态对每个感兴趣区域(古皮层、新皮层)中的两种不同类型细胞进行区分计数(对应不同的成熟状态:1 型细胞,胞体较小,呈双极形态,胞体直径范围为 3–9 µm;2 型细胞,胞体较大,具有复杂的树突分支,胞体直径范围为 9–18 µm)。
注意:在本分析中,在 Markers Toolbar 上为每个感兴趣区域选择两种不同的符号/细胞类型。将胞体直径划分为不同范围,对于细致分类形态不清晰、可能处于中间成熟阶段的细胞至关重要。为避免重复计数,排除切片上表面被截断的细胞。 - 从三个不同区域收集用于系统发育分析的数据:古皮层、新皮层和大脑皮层(后者通过合并古皮层和新皮层的数据获得)。
- 在电子表格文件中记录软件 Contour Measurements 工具栏中显示的皮层第二层周长(mm)。
- 在同一电子表格中,记录每个脑区和脑层面(每个层面 3 个切片,每只标本共 12 个切片)中 1 型和 2 型细胞的数量(可在 Markers Toolbar 中查看),以及总细胞数(1 型与 2 型细胞数之和)。
- 利用这些数据,计算每个区域每张切片的线性细胞密度(细胞数/mm),以及 1 型和 2 型细胞所占百分比(1 型或 2 型细胞数除以总细胞数再乘以 100)。
- 计算每只标本所考虑的 12 张切片的密度中位数(使用电子表格中的 Median 函数),以图形化表示线性细胞密度。选用中位数作为中心趋势度量,是因为每组样本量相对较小(每组 4 只动物),且部分组别呈现非对称分布(中位数受极值影响较小)。
- 计算每只标本中 1 型和 2 型细胞的百分比(使用上述公式),然后计算每物种四只标本间的平均百分比(使用电子表格中的 Average 函数)。随后,使用线性细胞密度进行系统发育分析(见第 7 节),并利用每个冠状切片中计数的总细胞数估算每个半球未成熟神经元的总数。
- 在 Neurolucida 软件中使用 Freehand 轮廓工具,沿胞体主轴垂直方向绘制一条穿过胞体直径的线。通过此步骤,对每个物种(每只标本 25 个细胞)每个脑区中随机选取的至少 100 个 DCX 阳性(DCX+)细胞(两种类型)进行胞体直径测量,以确定 1 型和 2 型细胞的胞体直径范围。
7. 系统发育分析:系统发育树构建
- 使用记事本(Notepad)以物种的科学名称创建所分析物种的列表,然后将其上传至网站 https://timetree.org/。
注意:可通过以下网站核对科学名称:https://www.ncbi.nlm.nih.gov/taxonomy - 点击 Newick file 按钮导出获得的树文件。
8. 系统发育分析:系统发育树中的计数数据整合
- 在数据表的独立列中,列出所有被分析的物种及其相应的待关联数据(本案例中为:全皮层 DCX+ 细胞密度、新皮层 DCX+ 细胞密度和古皮层 DCX+ 细胞密度)。若每个物种有多个个体,计算所选参数的中位密度的平均值。
- 下载 Mesquite Project 软件(https://www.mesquiteproject.org/),以将系统发育树与计数数据合并。
注意:该软件要求计算机上已安装 Java。 - 通过点击 Open File 打开之前由 Timetree 保存的 Newick 文件。然后选择 Simple Newick/Phylip Treefile 选项。将文件作为文本处理,并将其另存为 ".nex" 格式。
- 在新打开的页面中,选择 Taxa&Trees,然后选择 New Three Window,并选择 With Trees from Source。在弹出窗口中选择 Stored Tree,然后点击 OK。此时将显示一个名为 Imported Trees 的新标签页。
- 在 Display 区域中,以图形方式修改系统发育树(例如字体、大小、分支长度比例等)。
- 在 Mesquite 中添加一个新标签页,选择 Add,然后选择 New Character Matrix,并选择特征数量(本研究中数量 = 3,对应三种 DCX+ 细胞密度)。将特征设为 连续数据。
注意:特征代表将与系统发育树进行关联的数据。 - 将待与系统发育树关联的数据(第 6.4 步)复制到此新建的标签页中,并保存文件。
- 在 Imported trees tab 中,选择 Analysis:Tree,然后选择 Trace Character History,以执行 Parsimony Ancestral States 分析。
- 将文件另存为 PDF 格式。
9. 系统发育分析:脑容量与DCX+细胞密度的相关性
- 在先前创建的数据表中,为每个物种添加一列脑容量数据。
- 计算 DCX+ 细胞密度和脑容量的自然对数。
- 启动首选的统计分析软件包(https://www.statskingdom.com/linear-regression-calculator.html),并进行简单线性回归分析。
- 下载结果文件,并将残差作为新列保存到数据表中。
注意:残差表示数据点相对于回归线的偏离程度。 - 在数据表中,选中残差列和包含物种名称的列。然后进入插入选项,选择直方图图表以图形化显示残差分布。
10. 系统发育分析:新皮质延伸与新皮质DCX+细胞密度的相关性
- 在先前创建的数据表中,添加一列用于输入各物种新皮质第II层表面积的数据,并计算其自然对数。
- 在统计分析软件中,以新皮质第II层表面积的对数值作为X变量,以新皮质DCX+细胞密度的对数值作为Y变量,进行简单线性回归分析。
- 下载所得文件,并将残差保存在数据表的新一列中,以便按照步骤9.5的方法绘制残差图。
访问受限。请登录或开始试用以查看此内容。
结果
在所有被研究物种的大脑皮层中,DCX+细胞始终具有一系列共同特征,表明存在一个高度保守的未分化神经元群体(图4A)。简而言之,这些细胞:(i)在拓扑结构上排列成单层,位于皮层第二层(cortical layer II);(ii)表现出未成熟神经元在不同发育阶段所描述的形态学亚型,(a)其中以体积较小的单极/双极细胞为主,仅少数细胞具有复杂的树突结构,类似锥体神经元;(b)大多数细胞共表达未成熟标志物PSA-NCAM和DCX,但从不共表达与细胞分裂相关的Ki67抗原;(c)一个亚群的大体积复杂细胞还表达NeuN,表明其已启动成熟过程22,25。
除了这些共同特征外,当使用本文所述方法对cINs的线密度进行量化时,不同物种间的差异极为显著,在所检测的样本中差异幅度可达一个数量级(图4B)。在哺乳动物中,未成熟细胞群体具有共同特征,而细胞出现频率和数量却...
访问受限。请登录或开始试用以查看此内容。
讨论
本文所述方法在考虑脑尺寸和神经解剖结构差异显著的多种物种时,可提供可比的定量数据。该方法可用于评估不同哺乳动物全脑中细胞群体的一致性,也可用于追踪单一物种从出生后到衰老各阶段的发育过程。本方法基于以下假设:将涉及相对较多样本数量的脑组织(完整的半脑)和物种,均由同一实验室按照采样与固定的质控标准进行处理,随后采用相同的分析流程进行分析33(图1和图2)。
该方案中的关键步骤包括那些由于脑大小以及伦理/实际原因而无法完全标准化的变量(例如,在受保护的哺乳动物物种中不允许进行的操作)。最常见的因素是死后间隔时间(PMI)和组织固定,这两者可达到相似(尽管不完全相同)的条件。根据我们的经验,只要将 PMI 控制在 1 小时以内(如绵羊、马)或 15 小时以内(如黑猩猩),并通过浸入法找到合适的固定时间(图 2),即可接受一定程度的变异。在每种情况下,方案是否最优需通过评估组织质量来判断(切片后的整体外观、组织和细胞形态、免...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
感谢Matteo Piumatti和Chiara La Rosa为本研究中报道的皮层未成熟神经元实验方案的制定所做出的贡献。本工作获得都灵储蓄银行基金会(Fondazione CRT - Cassa di Risparmio di Torino,项目号RF=2022.0618)对LB的资助;PRIN2022(项目号2022LB4X3N)对LB的资助;美国国家科学基金会(国家科学基金会,项目号EF-2021785、DRL-2219759)和美国国立卫生研究院(国家卫生研究院,项目号NS092988、AG067419)对CCS的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10% 甲醛 | Sigma-Aldrich | HT501128 | |
| 2-甲基丁烷 | Sigma-Aldrich | 320404 | 异戊烷 |
| 3,3′-四盐酸联苯胺水合物 | Sigma-Aldrich | D5637 | |
| 4% 多聚甲醛 | Sigma-Aldrich | 441244 | |
| 牛血清白蛋白 | Sigma-Aldrich | A9647 | |
| 柠檬酸 | Sigma | C0759 | |
| 组织学用DPX封片剂 | Sigma-Aldrich | 06522 | |
| 乙醇 | Merck | 1.00983 | |
| 乙二醇 | Sigma-Aldrich | 102466 | |
| 甘油 | Sigma-Aldrich | G7893 | |
| 过氧化氢溶液 | Sigma-Aldrich | H1009 | |
| Killik - O.C.T. 包埋剂 | Bio-optica | 05-9801 | |
| Mesquite 软件 | Mesquite Project | Mesquite 版本 3.81 (build 955) | |
| Neo-mount 封片剂 | Sigma-Aldrich | 1.09016 | |
| 磷酸缓冲液 (PB) | na | na | 自行配制 |
| 磷酸盐缓冲生理盐水 (PBS) | na | na | 自行配制 |
| 氢氧化钠 | Riedel-de Haen | 6213 | |
| 磷酸氢二钠二水合物 | Sigma-Aldrich | 71645 | |
| 磷酸二氢钠二水合物 | Sigma-Aldrich | 71500 | |
| 蔗糖 | Sigma-Aldrich | S9378 | |
| 甲苯胺蓝 | Sigma-Aldrich | 89640 | |
| Triton X-100 | Sigma-Aldrich | T8787 | |
| Tween 20 | Sigma-Aldrich | P9416 | |
| VECTASTAIN Elite ABC-HRP 试剂盒 过氧化物酶(标准型) | Vector Laboratories | PK-6100 | |
| 二甲苯 | Sigma-Aldrich | 247642 |
参考文献
- Brenowitz, E. A., Zakon, H. H. Emerging from the bottleneck: benefits of the comparative approach to modern neuroscience. Trends Neurosci. 38 (5), 273-278 (2015).
- Bolker, J. A. Animal models in translational research: rosetta stone or stumbling block. Bioessays. 39 (12), 1-8 (2017).
- Moreno-Jiménez, E. P., Terreros-Roncal, J., Flor-García, M., Rábano, A., Llorens-Martín, M. Evidences for adult hippocampal neurogenesis in humans. J Neurosci. 41 (12), 2541-2553 (2021).
- Sorrells, S. F., et al. Positive controls in adults and children support that very few, if any, new neurons are born in the adult human hippocampus. J Neurosci. 41 (12), 2554-2565 (2021).
- Simard, S., Matosin, N., Mechawar, N. Adult hippocampal neurogenesis in the human brain: updates, challenges, and perspectives. Neuroscientist. 31 (4), 141-158 (2024).
- Bao, H., Song, J. Treating brain disorders by targeting adult neural stem cells. Trends Mol Med. 24 (12), 991-1006 (2018).
- Ghibaudi, M., Zanone, A., Bonfanti, L. Brain structural plasticity in large-brained mammals: not only narrowing roads. Neural Regen Res. 21 (5), 1669-1680 (2026).
- Bonfanti, L., La Rosa, C., Ghibaudi, M., Sherwood, C. C. Adult neurogenesis and "immature" neurons in mammals: an evolutionary tradeoff in plasticity. Brain Struct Funct. 229 (8), 1775-1793 (2024).
- Paredes, M. F., Sorrells, S. F., Garcia-Verdugo, J. M., Alvarez-Buylla, A. Brain size and limits to adult neurogenesis. J Comp Neurol. 524 (3), 646-664 (2016).
- Parolisi, R., Cozzi, B., Bonfanti, L. Humans and dolphins: decline and fall of adult neurogenesis. Front Neurosci. 12, 497(2018).
- Snyder, J. S. Recalibrating the relevance of adult neurogenesis. Trends Neurosci. 42 (3), 164-178 (2019).
- Bonfanti, L., Charvet, C. J. Brain plasticity in humans and model systems: advances, challenges, and future directions. Int J Mol Sci. 22 (17), 9358(2021).
- Duque, A., Arellano, J. I., Rakic, P. An assessment of the existence of adult neurogenesis in humans and value of its rodent models for neuropsychiatric diseases. Mol Psychiatry. 27, 377-382 (2022).
- Gómez-Climent, M. A., et al. A population of prenatally generated cells in the rat paleocortex maintains an immature neuronal phenotype into adulthood. Cereb Cortex. 18 (10), 2229-2240 (2008).
- Rotheneichner, P., et al. Cellular plasticity in the adult murine piriform cortex: continuous maturation of dormant precursors into excitatory neurons. Cereb Cortex. 28 (7), 2610-2621 (2018).
- Sorrells, S. F., et al. Immature excitatory neurons develop during adolescence in the human amygdala. Nat Commun. 10 (1), 2748(2019).
- La Rosa, C., Parolisi, R., Bonfanti, L. structural plasticity: from adult neurogenesis to immature neurons. Front Neurosci. 14, 75(2020).
- Bonfanti, L., Seki, T. The PSA-NCAM-positive "immature" neurons: an old discovery providing new vistas on brain structural plasticity. Cells. 10 (10), 2542(2021).
- Benedetti, B., Couillard-Després, S. Why would the brain need dormant neuronal precursors. Front Neurosci. 16, 877167(2022).
- Luzzati, F., Bonfanti, L., Fasolo, A., Peretto, P. DCX and PSA-NCAM expression identifies a population of neurons preferentially distributed in associative areas of different pallial derivatives and vertebrate species. Cereb Cortex. 19 (5), 1028-1041 (2009).
- Palazzo, O., La Rosa, C., Piumatti, M., Bonfanti, L. Do large brains of long-living mammals prefer non-newly generated, immature neurons. Neural Regen Res. 13 (4), 633-634 (2018).
- La Rosa, C., et al. Phylogenetic variation in cortical layer II immature neuron reservoir of mammals. Elife. 9, e55456(2020).
- Sherwood, C. C., Gómez-Robles, A. Brain plasticity and human evolution. Annu Rev Anthropol. 46, 399-419 (2017).
- Piumatti, M., et al. Non-newly generated, "immature" neurons in the sheep brain are not restricted to cerebral cortex. J Neurosci. 38 (4), 826-842 (2018).
- Pattaro, A., et al. Phylogenetic variation of layer II cortical immature neurons in dog and horse confirms covariance with brain size and neocortical surface. Brain Struct Funct. 230 (6), 115(2025).
- Ghibaudi, M., et al. Consistency and variation in doublecortin and Ki67 antigen detection in the brain tissue of different mammals, including humans. Int J Mol Sci. 24 (3), 2514(2023).
- Ben Abdallah, N. M., Slomianka, L., Vyssotski, A. L., Lipp, H. P. Early age-related changes in adult hippocampal neurogenesis in C57 mice. Neurobiol Aging. 31, 151-161 (2010).
- Ghibaudi, M., et al. Age-related changes in layer II immature neurons of the murine piriform cortex. Front Cell Neurosci. 17, 1205173(2023).
- Workman, A. D., Charvet, C. J., Clancy, B., Darlington, R. B., Finlay, B. L. Modeling transformations of neurodevelopmental sequences across mammalian species. J Neurosci. 33 (17), 7368-7383 (2013).
- Charvet, C. J., de Sousa, A. A., Vassilopoulos, T. Translating time: challenges, progress, and future directions. Brain Res Bull. 221, 111212(2025).
- Bartges, J., et al. AAHA canine life stage guidelines. J Am Anim Hosp Assoc. 48, 1-11 (2012).
- Ghibaudi, M., et al. Multispecies characterization of immature neurons in the mammalian amygdala reveals their expansion in primates. PLoS Biol. 23 (8), e3003322(2025).
- Ghibaudi, M., Boda, E., Bonfanti, L. From mice to humans: a need for comparable results in mammalian neuroplasticity. Neural Regen Res. 20 (2), 464-466 (2025).
- Smulders, T. V. The relevance of brain evolution for the biomedical sciences. Biol Lett. 5, 138-140 (2009).
- Keck, T. Bridging theory and experiment in (statistical) learning. Curr Opin Neurobiol. 94, 103106(2025).
访问受限。请登录或开始试用以查看此内容。
重印与许可
