本文介绍了一种培养蛾类嗅觉受体神经元的方案,可实现神经元的长期存活与分化。该方法通过酶解和机械解离结合悬滴培养技术,为功能研究(如膜片钳记录)提供了替代传统高难度原位记录的可行方案。
本文内容
摘要
摘要
昆虫的许多行为,如交配、取食和社会互动,都高度依赖其嗅觉系统。昆虫进化出了高度敏感的嗅觉感受神经元(ORNs)。尽管通常采用in situ细胞外记录技术来分析这些细胞的反应谱、编码特性及生理特征,但对其信号转导通路的深入研究则需要膜片钳记录技术。为了促进该电生理技术的应用,并能够精确控制细胞内和细胞外ORN溶液的组成,本文介绍了一种培养昆虫嗅觉感受神经元的实验方案。由于昆虫的嗅觉感受神经元被辅助细胞紧密包裹,难以对成体ORN进行急性分离并直接接触其细胞膜,因此本方案采用在ORN分化前对蛾类蛹的触角细胞进行解剖。发育中的触角组织通过酶消化和机械解离后,利用“倒置柱状培养法”在条件化培养基中进行倒置培养,该培养基可支持ORN的分化和存活达数周之久。采用该方法培养的ORN适用于膜片钳记录等各类功能分析实验。
引言
昆虫主要依靠嗅觉来感知环境、寻找食物来源、识别配偶以及躲避捕食者1,2。其嗅觉系统具有极高的效率和精确的调谐能力,能够以高灵敏度和特异性检测多种挥发性化学信号3。气味分子主要由嗅觉感受神经元(ORNs)检测,这些神经元位于触角上的嗅觉感受器(称为感器)中,触角是主要的嗅觉器官;此外,部分嗅觉神经元也分布于下颚须上,后者在蚊子和Drosophila等双翅目昆虫中作为次要的嗅觉结构4。
为了研究嗅觉信号转导的分子机制,直接对单个嗅觉受体神经元(ORNs)进行电生理记录至关重要。膜片钳记录是神经生理学中的金标准技术,可对离子通道、受体及信号通路进行详细的功能表征。原位对昆虫嗅觉受体神经元进行膜片钳记录虽有可能,但由于这些神经元体积微小、被包裹在辅助细胞中且密集排列,同时受到角质层的包被,技术上极具挑战性。这一难题已通过记录巨大 Saturnid 蛾 Antheraea polyphemus5 外翻的外树突,或通过果蝇 Drosophila6,7 的半完整 preparations 或触角切片中的嗅觉受体神经元得以解决。尽管原位记录能够获取正常分化的神经元信号,但这些方法仍存在显著的技术困难,凸显出开发替代性方法以提供更易操作实验条件的必要性。
本文介绍了一种从蛾类触角培养嗅觉感受神经元(ORNs)的可靠方案。该方案似乎适用于多种鳞翅目昆虫,尽管尚未在其他昆虫类群中进行测试。该方法可实现嗅觉感受神经元的维持与生长 体外从而为膜片钳研究直接提供这些细胞的获取途径8,9,10 以及药理学和成像研究。该培养系统为嗅觉转导通路及其相关分子组分的功能分析提供了有价值的平台,克服了与之相关的诸多限制 原位 记录。
方案
涉及昆虫的研究无需伦理审批和合规声明。昆虫嗅觉受体神经元(ORNs)的原代培养已在烟草天蛾 Manduca sexta(鳞翅目,天蛾科)11、西方蜜蜂 Apis mellifera12 以及甘蓝夜蛾 Mamestra brassicae(鳞翅目,夜蛾科)13 上有所报道。所述方案具有一些共性(均从蛹期进行解剖)和差异(培养基、生长表面)。本文所述方案已成功用于多种蛾类物种的ORN培养,且无需修改,包括 M. brassicae, Spodoptera littoralis、Bombyx mori 和 Agrotis ipsilon。所有操作步骤均在超净工作台内进行(第2至第8节需无菌操作)。
1. 昆虫
- 在人工饲料上饲养S. littoralis(鳞翅目:夜蛾科)幼虫,并按照先前所述方法,在22-24 °C、60-70%相对湿度及16:8小时光暗循环条件下进行培养14。
- 在蛹期将雄性和雌性分开。羽化后,将成年雄虫与雌虫分别置于塑料盒中,并提供20%蔗糖溶液供其自由取食。
- 每天收集新形成的蛹,并置于22 °C环境中。在此条件下,蛹期持续14-16天。可使用雄性或雌性个体进行实验。
2. 条件型Grace培养基的制备
注意:用于培养天蛾嗅觉受体神经元(ORNs)的 Grace 培养基需用烟草天蛾(Manduca sexta)细胞系(MRRL-CH115;该细胞系可应要求提供)进行条件化处理。在正常空气条件下,于 20 °C 每 3 周传代一次 MRRL-CH1 细胞(约 80% 汇合度)。切勿使细胞汇合度超过 90%,否则会导致细胞脱落和细胞死亡率升高。每次传代时,执行以下步骤。
- 用 10 mL 移液管轻轻将贴壁不牢的细胞从一个培养瓶底部表面分离下来。
- 将 1.5 mL 细胞悬液分别加入 4 个培养瓶中,每个培养瓶中加入 6.2 mL 添加 10% 胎牛血清(FBS)的 Grace's 培养基。
- 细胞传代两天后,若最近准备的培养瓶中无污染,收集前一次传代剩余 3 个培养瓶中的培养液,经 0.2 µm 滤器过滤后,将条件化 Grace's 培养基保存于 5 °C,可使用长达 6 个月。
3. 木瓜蛋白酶的制备
注意:木瓜蛋白酶必须以浓缩分装形式(100 mL,10 mg/mL)保存于 -80 °C,以尽量减少随时间推移导致的酶活性损失。因此,必须单独配制木瓜蛋白酶溶剂的分装样品。将乙二胺四乙酸(EDTA)和 L-半胱氨酸加入活性木瓜蛋白酶中16。与木瓜蛋白酶混合后,其终浓度为 0.5 mM EDTA、1 mM 半胱氨酸和 1 mg/mL 木瓜蛋白酶(约 10 U/mL)。
- 木瓜蛋白酶分装液:将木瓜蛋白酶(25 mg)溶于2.5 mL含20%甘油的无菌Hanks平衡盐溶液(HBSS)中。分装为100 µL每份,于-80 °C保存。
- 木瓜蛋白酶溶剂分装液:取27 mL甘露醇,用甘露醇调节渗透压至380 mOsmol/L。加入5.6 mg EDTA和5.3 mg L-半胱氨酸。调节pH至6.7。使用0.2 µm低吸附滤器过滤除菌。分装为900 µL每份,于-20 °C保存。
4. 培养基的制备
注意:所有培养基均为无菌。使用 0.2 µm 无菌滤器进行过滤除菌。
- 3+2 培养基:
- 在30 mL离心管中加入3份Leibovitz培养基(16.4 mL)、2份Grace培养基(11 mL)以及2%青霉素-链霉素溶液(0.6 mL)。用1 M NaOH调节pH至6.7,并加入约150 mg甘露醇,使渗透压调整至370 mOsmol/L。
- 从得到的28 mL 3+2培养基中,过滤后取5 mL转移至一个7 mL离心管中。向剩余的23 mL 3+2培养基中加入少量苯硫脲晶体(约1–2 mg),然后灭菌,并将其中1.5 mL转移至一个7 mL离心管(管#1)以及6个后续用于解剖蛹的培养皿中,这些培养皿在下文中简称为“解剖皿”。
注意:苯基硫脲抑制氧化酶活性17,18,19 这将导致触角组织变黑。
- 条件培养基 3+2:
- 向一个 30 mL 管中加入 67 mg 甘露醇和 9 mL Leibovitz 培养基,并通过 0.2 μm 滤膜过滤 µm)。然后加入2份条件化Grace培养基。
- 根据 Leibovitz's 和 Grace's 培养基的渗透压调整甘露醇的用量,使条件化 3+2 培养基的渗透压为 370 ± 15 mOsmol/L(管#2)。
- HBSS 培养基:加入 12 mL HBSS 和 0.25 mL 青霉素-链霉素,调节渗透压至 370 mOsmol/L(约 216 mg 甘露醇),pH 至 6.7(用 1 M HCl),然后灭菌(试管 #3)。
- HBSS-EGTA 培养基:加入 2 mg 乙二醇双(β-氨基乙基醚-N,N,N′,N′-四乙酸(EGTA)和2 mL先前配制的HBSS溶液加入7 mL离心管中。用1 M NaOH调节pH至6.7,并进行灭菌(管#4)。
5. 蛹的解剖(图1)
注意:定期使用70%乙醇和吸水纸清洁镊子,然后快速过火灭菌。在黑色背景下进行解剖有助于观察触角。
- 用自来水冲洗2.5至3日龄的蛹,然后再用蒸馏水冲洗。
- 在超净工作台内,将20-25只蛹放入一个培养皿中。
- 在超净工作台内,将两个烧杯灼烧灭菌,其中一个加入70%乙醇,另一个加入无菌(高压灭菌)蒸馏水。
- 用镊子夹取4只蛹,先在70%乙醇中浸泡约10秒,再转入无菌蒸馏水中浸泡,随后转移至解剖用培养皿的皿盖中。
- 用灼烧过的镊子剪开每根触角周围的表皮组织,并将一对触角转移至盛有3+2培养基的解剖皿中(图1A,B)。
- 在3+2培养基中,去除包裹触角发育管的所有组织,仅保留触角和蛹期表皮(图1C),然后将触角(图1D)转移至另一个盛有3+2培养基的新培养皿中。
注意:图1E-J展示了整个解剖过程的图像。 - 用精细镊子打开触角发育所在的管状结构,并轻柔地取出触角。若能将每根触角完整取出,则后续清洗步骤(步骤7.1-7.9)将更为方便,因为完整的触角更易沉降至管底。
- 使用无菌巴斯德吸管,从培养皿中吸取部分培养基并重新排回培养皿,以润湿吸管内壁。此操作有助于减少触角在吸管内粘附于玻璃壁的现象。随后,用该吸管将解剖好的触角转移至含有1.5 mL 3+2培养基的7 mL离心管中(管#1)。
- 对20只蛹重复步骤5.4至5.8,并在管#1中收集20对触角。
6. 培养皿的准备
注意:触角细胞采用悬滴培养法20进行培养。这需要预先准备培养皿。可提前完成此步骤。
- 从载玻片上切割出大小为 6-7 mm × 6-7 mm 的玻璃片,保存在乙醇中。
- 在通风橱内,将玻璃片灼烧灭菌,立即浸入无菌(经高压灭菌)的凡士林(例如 Vaseline)中,并按 图 2A 所示放置于培养皿中。
7. 细胞的解离与接种
注意:在进行下述培养基更换时,需使用无菌巴斯德吸管尽可能移除培养基,同时避免丢弃任何触角组织。冷光源的臂架有助于更清晰地观察悬浮在培养基中的触角。为了防止通过离心去除木瓜蛋白酶时影响触角细胞,酶解消化与机械吹打应依次进行,而非同时操作。
- 将木瓜蛋白酶分装液及其溶剂分装液置于室温下。
- 用1 mL HBSS(来自管#3)替换管#1中含解剖所得触角的3+2培养基,静置10分钟。
- 用1 mL HBSS-EGTA(来自管#4)替换HBSS培养基,静置5分钟。
- 用1 mL HBSS替换HBSS-EGTA培养基,静置5分钟。
- 用1 mL HBSS替换HBSS培养基,静置5分钟。
- 将木瓜蛋白酶溶剂(900 µL)转移至木瓜蛋白酶分装液(100 µL)中。若所得木瓜蛋白酶稀释液颜色与3+2溶液的黄色不一致,可加入0.2–0.5 µL 1M HCl调节pH。切勿测量pH值,以免污染溶液。
- 用1 mL freshly diluted木瓜蛋白酶溶液替换HBSS培养基,于室温下孵育10–15分钟,进行酶消化。
- 用含50 µL FBS的1 mL HBSS替换木瓜蛋白酶溶液,静置5分钟以灭活木瓜蛋白酶活性。
- 用1 mL HBSS洗涤两次,每次5分钟。
- 用1 mL 3+2培养基替换HBSS培养基。
- 用本生灯将巴斯德移液管尖端进行火焰抛光,使其开口直径减小至50–100 µm(经足够练习后可凭肉眼判断)。
- 用火焰抛光后的巴斯德移液管轻柔吹打培养液,反复吹吸以机械解离触角细胞,直至无可见细胞团块,培养液应呈浑浊状。
- 加入2 mL 3+2培养基,并用巴斯德移液管吹打混匀细胞,确保细胞密度均匀。
- 将细胞悬液分装至20个培养皿中(每皿约150 µL)(图2B)。
- 静置45分钟使细胞沉降。
- 将每皿中的3+2培养基更换为150 µL添加了5% FBS的条件培养基(conditioned 3+2 medium)。
- 放入盖玻片(图2C),并用Parafilm密封培养皿。
- 将培养皿倒置(图2D),置于20 °C培养箱中,夹在两层湿润的吸水纸之间进行培养。
8. 培养基的更换
注意:每4-7天更换一半培养基。
- 检查培养皿是否有潜在污染。污染通常会导致颜色变化(从黄色变为红褐色)。
- 打开培养皿,轻轻取出盖玻片。使用P100移液器移除75 µL培养基,并加入85 µL新鲜的含5% FBS的3+2条件培养基。
- 将盖玻片放回原位,用Parafilm密封培养皿,并将其置于20 °C培养箱中,夹在湿润的吸水纸之间,保持原有培养条件。
结果
本方案可使昆虫嗅觉感受神经元(ORNs)在体外培养中存活3-5周。ORNs可根据其形态特征被轻易识别,其细胞体呈小圆形或杏仁状,具有细长的突起(神经突),在培养1天后即可清晰观察到(图3A),并在随后数天内持续延伸(图3B-D)。根据胞体大小可区分出两类神经元群体:大多数神经元胞体直径为5-7 µm,少数为10-12 µm(图3D)。其中较小的神经元很可能为ORNs,而较大的神经元则可能为机械感受神经元。这些神经元可呈单极或双极形态,单独存在、成小簇分布,或位于未完全解离的触角外植体中。通过使用抗-HRP抗体进行免疫细胞化学染色,确认了这些细胞的神经元身份13(图4),该方法是昆虫神经生物学研究中对神经元标记的金标准技术21。培养2周后,非神经元细胞(极可能为胶质细胞)在培养皿表面形成连续层,ORNs即生长并在此层上延伸其神经突(图5A,B)。
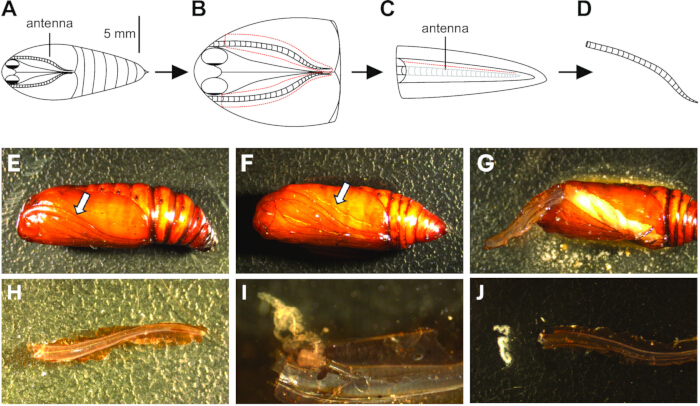
图 1:蛹的解剖过程。(A)蛹的腹面。(B)在两个触角周围切开表皮(红色虚线),注意不要过深切入蛹体内,以免刺破正在发育的成虫组织。轻轻取出每个触角,并转移至盛有3+2培养基的培养皿中。(C)去除仍附着在蛹表皮上的所有非触角组织,将触角转移至另一含有洁净3+2培养基的新培养皿中。小心切开覆盖在发育中触角上的透明膜(红色虚线)。(D)轻轻取出触角。(E)显示与A对应的图像。白色箭头指向触角。(F)显示与B对应的图像。白色箭头指向表皮上的切口。(G)轻轻提起触角(H),然后将其取出。(I)在切开其发育所处的膜后,从触角远端向基部推动(J),随后将其取出。请点击此处查看该图的放大版本。
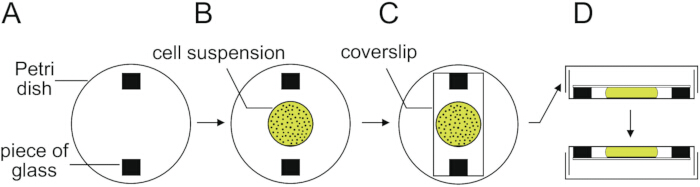
图2:用于培养触角细胞的悬滴培养技术。(A)将两块玻璃片用无菌凡士林粘附在35 mm培养皿底部。(B)将细胞悬液轻轻接种于培养皿中央,静置45分钟使其贴壁。(C)更换培养基后,将无菌盖玻片小心地放置在玻璃片上,覆盖并固定住细胞悬液。(D)最后盖上培养皿盖,并用Parafilm封口膜密封。 请点击此处查看该图的放大版本。
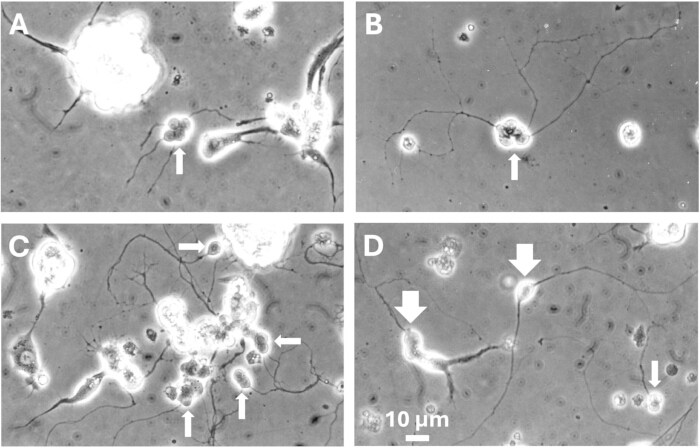
图3:年轻培养物的观察视野 M. brassicae 触角 (A1天后,神经突开始伸长。B2天后,神经突起显得更加伸长。C,D5天后,神经突网络变得更加密集。通过形态学特征可轻松识别嗅觉神经元(白色箭头)。这些细胞可单独存在,也可形成小簇状结构。较大的细胞簇则如图中所示(C),很可能是未解离的触角外植体。这些外植体可能含有神经元,这由其长出的神经突起得到证实。小箭头所示为小型神经元(A-D)以及2个大型神经元用大箭头标出(D)。比例尺(10 µm)在 A 至 D 中相同。 请点击此处以查看此图的放大版本。
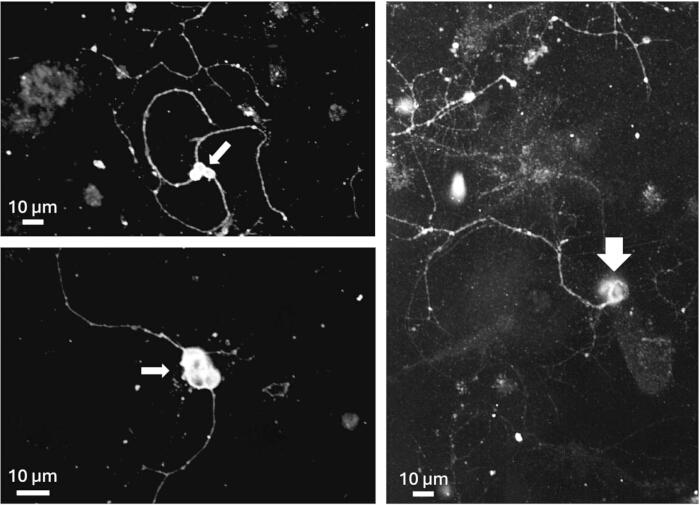
图 4:小神经元(小箭头)和大神经元(大箭头)上的抗 HRP 染色。 实验在培养 5 天的样本上进行。比例尺:10 µm。详细实验方案见13。 请点击此处查看该图的放大版本。
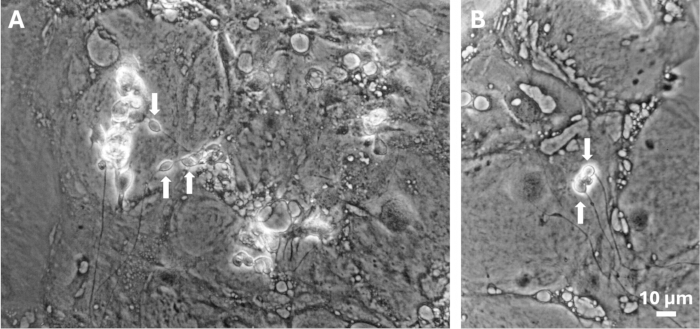
图5:M. brassicae 触角来源的老化培养物观察。(A,B)培养2周后,培养皿表面被一层致密的非神经元细胞覆盖。白色箭头指示嗅觉神经元(ORNs)。A和B中的比例尺相同(10 µm)。请点击此处查看该图的高清版本。
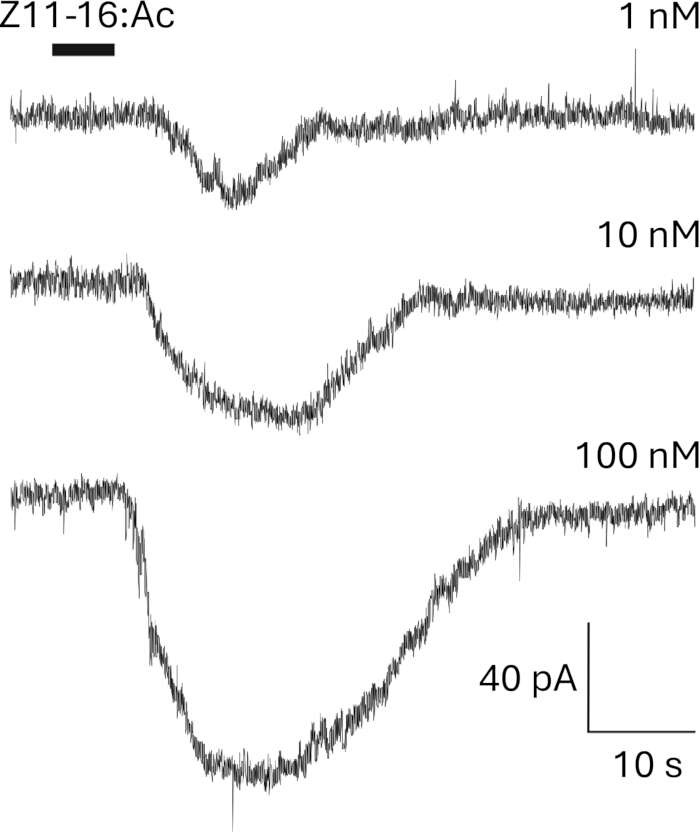
图 6:体外培养至少 2 周的神经元对气味刺激产生响应。 利用膜片钳全细胞记录模式可检测到对 M. brassicae 主要信息素成分 Z11-16:Ac 的响应。Z11-16:Ac 用二甲基亚砜(DMSO)溶解,终浓度不超过 0.1%。请点击此处查看该图的高清版本。
讨论
该实验方案的关键步骤如下:(i)在合适的发育阶段解剖蛹。若蛹的发育阶段过早,触角组织极少,且因组织松散、易快速分散而难以采集;若蛹的发育阶段过晚,触角解剖虽更为容易,但嗅觉受体神经元(ORNs)无法存活 体外在我们建立嗅觉受体神经元原代培养的3种不同物种中,通过实验确定,当蛹在20 °C条件下培养时,解剖蛹的最佳时期仅为半天,即2.5至3天之间。(ii)混合使用Grace′s培养基与Leibovitz's L-15培养基。Grace′s培养基常用于支持昆虫细胞生长,而Leibovitz's L-15培养基则支持神经元生长。(iii)接种细胞时去除胎牛血清(FBS)。如果培养过程需要添加FBS,那么用于接种细胞悬液至培养皿的培养基必须不含FBS,因为其存在会抑制细胞贴壁,从而影响细胞存活。(iv)以高密度培养触角细胞。这对嗅觉受体神经元的存活至关重要。(v)采用悬滴培养法。该方法可促进细胞更好生长,并显著延长培养物的存活时间。
该实验方案中一个可能的故障排除问题是,木瓜蛋白酶的孵育时间(10–15 分钟)必须根据木瓜蛋白酶的不同批次以及自 100 µL 木瓜蛋白酶分装液制备以来所经过的时间进行调整,因为即使在 -80 °C 保存,木瓜蛋白酶的活性也会逐渐降低。由于在木瓜蛋白酶孵育过程中触角的外观不会发生明显变化,因此无法通过肉眼观察来判断孵育时间是否合适。
基本问题涉及ORNs的分化 体外采用所述方案,嗅觉受体神经元(ORNs)可存活3-5周。考虑到触角通常在成虫羽化前约10天采集,且ORNs在羽化前1-2天即已完全具备功能(通过EAG和单感器记录测定,个人观察结果),该存活期理论上足以支持其 体外 分化。研究发现,嗅觉神经元表达多种多样的离子通道。8,9,10,14,22,23,24,25,26。它们以剂量依赖的方式对嗅觉刺激作出反应(图6),表明它们至少部分地遵循了正常的分化过程 体外.
昆虫的嗅觉受体神经元被三种辅助细胞包裹27 界定感觉器腔室并调控感觉器淋巴液离子和蛋白质组成,使嗅觉受体神经元(ORN)的树突浸没于其中。这些辅助细胞尤其能够合成嗅觉结合蛋白(OBPs)。在先前的研究中,我们观察到在3至4周龄的培养物中OBP表达水平较高,提示辅助细胞亦可发生分化。 体外13培养的一个局限性在于,培养的嗅觉神经元(ORNs)的树突并不处于感受器淋巴液中,而这种淋巴液具有较高的K⁺浓度+ 浓度和较低的 Na+ 浓度高于血淋巴28,29,从而在两个区室之间形成跨上皮电位30相反,细胞培养可提供用于电生理学表征的附属细胞,据我们所知,此前尚未有人开展过此类研究。
有趣的是,在S. littoralis上进行的初步测试表明,该方案也适用于培养蛾类喙部细胞。尽管数量较少,但仍观察到形态相似的神经元,这些神经元极有可能是味觉感受神经元。
原代培养可方便地获取昆虫嗅觉受体神经元(ORNs)用于膜片钳记录。其主要缺点有两个:细胞必须以高密度培养,意味着需要解剖大量触角;此外,这是原代培养,因此必须定期制备新的培养物。然而,尽管这些神经元体积微小,只要培养质量良好,对其进行膜片钳操作相对容易,因此这一过程是值得的。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢 Monika Stengl 惠赠 MRRL-CH1 细胞系。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 mL 注射器 | Avantor | N/A | |
| 2.5 mL 注射器 | Avantor | N/A | |
| 21 mm x 26 mm 盖玻片 | Avantor | WVR - 631-1335 | |
| 76 mm x 26 mm 玻片 | Avantor | WVR - 631-9460 | 厚度:1 mm ± 0.05 mm |
| Acrodisc Supor PF,0.8/0.2 μm,25 mm | Avantor | WVR - 514-4102 | 低吸附注射式滤器 |
| 高压灭菌器 | 无特定品牌 | N/A | |
| 本生灯 | 无特定品牌 | N/A | 必须可通过脚踏板操作 |
| Corning Falcon Easy-Grip 组织培养皿 35 mm x 10 mm。Corning 353001 | Avantor | WVR - 734-0005 | 用于细胞培养的无菌培养皿 |
| D-甘露醇 | Sigma-Aldrich | M9546 | 室温保存 |
| Dumont #5 镊子 | N/A | ||
| EGTA | Sigma-Aldrich | E4378 | 室温保存 |
| Falcon:50 mL,25 cm²,带塞密封, 组织 培养处理 | Avantor | WVR - 734-0009 | 细胞培养瓶 |
| 胎牛血清 | ThermoFisher Scientific | A3160801 | 于 -20 °C 保存 |
| 添加乳白蛋白水解物和酵母提取物的 Grace 昆虫培养基(1x)-Gibco | ThermoFisher Scientific | 11605045 | 添加补充物的 Grace 昆虫培养基。于 5 °C 保存 |
| 不含钙和镁的 HBSS-Gibco | ThermoFisher Scientific | 14170138 | Hanks 平衡盐溶液(HBSS)。于 5 °C 保存 |
| 独立包装的血清移液管,Falcon | Avantor | WVR - 734-0352 | 无菌一次性 10 mL 移液管 |
| 独立包装的血清移液管,Falcon | Avantor | WVR - 734-0343 | 无菌一次性 25 mL 移液管 |
| L15 培养基- Gibco | ThermoFisher Scientific | 11415056 | Leibovitz L-15 培养基。于 5 °C 保存 |
| 层流组织培养罩 | 无特定品牌 | N/A | |
| N-苯基硫脲 | Sigma-Aldrich | P7629 | 室温保存 |
| 木瓜蛋白酶 | Sigma-Aldrich | P5306 | 冻干粉末,无菌分装。 分装样品于 -80 °C 保存 |
| Parafilm 封口膜 | Sigma-Aldrich | P7793 | |
| 塞有棉絮的巴斯德移液管 — 150 mm | 无特定品牌 | 直接(带棉塞)高压灭菌,并存放于 超净台内的灭菌盒中 | |
| 青霉素-链霉素 | Sigma-Aldrich | P4333 | 青霉素-链霉素:5000 IU/mL + 5000 µg/mL。 于 -20°C 以 1 mL 无菌分装保存 |
| pH 计 | 无特定品牌 | ||
| 移液控制器 | Avantor | WVR - 612-7179 | 廉价替代方案是使用手动移液 控制器(例如 Pipette Pump 或 Bel-Art 移液泵) |
| 冷藏培养箱 | PHC Europe | 型号 MIR-154-PE | 调节昆虫培养基 pH 值2 浓度调节系统 并非必需 |
| 体视显微镜 | 无特定品牌 | 放大倍数 10x 至 64x,配备 冷光源和柔性导光管 | |
| 用于解剖蛹的无菌培养皿 | Avantor | WVR - 391-0868 | 任何无菌培养皿均可使用 |
| 带螺旋盖的 Sterilin 容器,30 mL | Avantor | WVR - 215-0321 | 30 mL 无菌管 |
| 带螺旋盖的 Sterilin 容器,7 mL | Avantor | WVR - 215-0328 | 7 mL 无菌管 |
| 凡士林 | Sigma-Aldrich | 无菌条件下室温保存;石油 jelly |
参考文献
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).