姜黄素(CUM)通过抑制 AKT/Wnt/β-catenin 轴诱导铜死亡,从而抑制胶质母细胞瘤(GBM)的进展。本实验方案旨在研究 CUM 阻碍 GBM 恶性进展的分子机制,并描述评估 CUM 通过调控该通路诱导铜死亡的方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
姜黄素(CUM)可调控胶质母细胞瘤(GBM)的恶性行为。本研究探讨CUM是否通过AKT/Wnt/β-catenin信号通路诱导铜死亡(cuproptosis),从而抑制GBM的进展。采用MTT法确定姜黄素的最佳浓度。对A172和U251细胞分别给予CUM、AKT抑制剂MK-2206、Wnt抑制剂LGK974以及Elsm-Cu(Elesclomol + CuCl₂)处理。2细胞增殖、迁移、侵袭和凋亡分别通过羧基荧光素琥珀酰亚胺酯染色、划痕实验、Transwell实验和流式细胞术进行评估。线粒体超氧化物(MitoSOX)荧光、Seahorse 代谢分析、免疫荧光和铜2+ 检测和蛋白质印迹法用于评估线粒体氧化应激和铜死亡。采用TCF/LEF1报告基因检测试剂盒和蛋白质印迹法分析AKT/Wnt/β-catenin信号轴。建立胶质母细胞瘤异种移植模型,并通过灌胃给予CUM,持续五周。评估CUM对肿瘤生长、铜死亡及AKT/Wnt/β-catenin通路相关蛋白表达的影响。细胞用10 µM和20 µM的CUM处理。 体外CUM处理抑制了增殖、迁移和侵袭,同时促进氧化应激和铜死亡。CUM还抑制了Wnt/β-catenin信号通路活性。通路抑制使活性氧水平升高(3.7倍)和Cu2+ (3.1倍)水平,并降低二氢硫辛酰胺乙酰转移酶的表达,从而抑制恶性行为。在裸鼠模型中,CUM显著抑制肿瘤生长,促进铜死亡,并抑制AKT/Wnt/β-catenin轴的活化。我们的研究结果表明,CUM可抑制AKT/Wnt/β-catenin信号通路,诱导铜死亡,并干扰胶质母细胞瘤(GBM)的进展。
引言
胶质瘤是中枢神经系统(CNS)中最常见的原发性颅内恶性肿瘤1。4级胶质瘤通常指胶质母细胞瘤(GBM),其预后较差2。GBM是一种高度侵袭性的脑肿瘤,占中枢神经系统恶性肿瘤的近50%,中位生存期不足1年3,以其高恶性程度和高复发率著称4,5。目前,GBM的治疗策略主要依赖手术,并辅以放疗、化疗及其他综合治疗方法6。尽管免疫治疗、生物治疗和纳米医学等新兴治疗策略在临床前研究中已取得显著成果7,8,但总体5年生存率仍仅为4.3%9。目前最常用的化疗方案是著名的Stupp方案;然而,对于MGMT未甲基化的GBM患者,总生存率并未显著延长10。因此,探索新的治疗策略对于延长患者生存期具有重要意义。本研究假设姜黄素(CUM)对GBM的抗癌机制涉及铜死亡(cuproptosis)。
铜代谢异常或铜诱导的细胞损伤可导致一系列疾病11。在常规氧化还原条件下,还原态的 Cu+ 可被氧化为 Cu2+。Tsvetkov 等人发现了一种此前未知的铜诱导细胞死亡机制,称为铜死亡(cuproptosis)。Cu2+ 离子与酰化化合物结合后,导致铁硫簇蛋白(Fe-S cluster proteins)的表达下调,从而引发细胞死亡12,13。大量研究已证实,铜死亡与肿瘤的病理生理过程密切相关14,15。与铜死亡相关的长链非编码 RNA(lncRNA)和基因是胶质母细胞瘤(GBM)预后和治疗的潜在生物标志物16。BCMD 可释放 Cu2+,诱导铜死亡,并触发免疫原性细胞死亡以治疗 GBM17。因此,我们认为铜死亡可作为 GBM 治疗的新靶点。然而,目前大多数已有方案依赖于合成载体(如 Elesclomol-Cu)或直接引入高浓度铜离子。尽管这种外源性剧烈干预能够验证铜死亡的概念,但由于缺乏生理相关性和靶向性,其临床转化前景有限。因此,寻找能够内源性且精准调控 GBM 铜死亡的天然或小分子化合物,并阐明其上游信号机制,已成为这一新型机制与临床治疗之间的重要桥梁。
中药被广泛认为是抗肿瘤药物研究的重要资源。CUM是一种从中药姜黄中提取的多酚类物质。现代药理学已证实其具有抗氧化、抗炎和抗肿瘤功能。CUM具有多种抗肿瘤活性,可通过促进细胞凋亡、干扰多条分子通路等机制降低胶质母细胞瘤(GBM)细胞的活性18。体外实验表明,低剂量CUM联合放疗可协同增强抗GBM增殖作用19。此外,CUM可调控与GBM相关的核心通路,包括MAPK通路20。与传统的替莫唑胺(TMZ)化疗相比,CUM展现出独特的治疗优势。TMZ的疗效常因GBM中强大的DNA修复机制而受限,导致产生耐药性;而CUM通过靶向线粒体代谢诱导铜死亡(cuproptosis)的机制21,22与TMZ无关。CUM不仅能调节与铜死亡相关的代谢过程,还可同时干扰多个与GBM进展相关的关键信号通路,为克服单一疗法的局限性、开发联合治疗策略提供了潜在途径。本研究中使用的CUM浓度范围(10–20 µM)与临床前治疗研究中报道的有效浓度一致23。尽管CUM本身口服生物利用度低以及其穿越血脑屏障的递送效率是实际应用中的关键挑战,但新兴的纳米递送系统和靶向修饰策略已为克服这一瓶颈提供了有前景的解决方案24。
尽管已有大量研究报道了CUM在胶质母细胞瘤(GBM)中促凋亡、抗增殖及抑制迁移的作用25,26,但目前大多数研究主要集中于其对传统凋亡或自噬通路的影响。本研究旨在明确CUM是否通过调控铜死亡(cuproptosis)来抑制GBM的恶性进展。我们探讨了CUM是否可通过抑制AKT/Wnt/β-catenin信号轴,部分诱导铜死亡,从而抑制GBM的发展。基于此,本研究为CUM改善GBM治疗效果以及开发GBM治疗新靶点提供了实验依据。
访问受限。请登录或开始试用以查看此内容。
方案
所有动物实验均遵循机构制定的实验动物人道护理与使用标准,并已获得机构动物伦理委员会的正式批准。在可能的情况下,均采取措施以减少动物的不适与痛苦。
涉及化学化合物、染料和生物样本的操作均遵循既定的生物安全规范,以降低潜在风险。对于可能具有危害性的物质,包括多聚甲醛、含铜试剂和二氢乙锭(DHE),均使用适当个人防护装备进行操作,如手套、口罩和护目镜。所有废弃物,如使用过的试剂和被污染的一次性物品,均分类收集至指定的生物危害容器中,并由授权的危险废物管理服务机构按照机构及环境安全法规进行后续处理。整体实验设计详见图1。
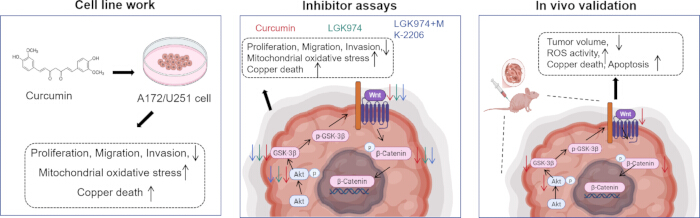
图1:本研究的工作流程。请点击此处查看该图的放大版本。
细胞培养与分组
正常人脑星形胶质细胞(NHA)及胶质母细胞瘤细胞系 A172、U251、LN229 和 SHG-44(见材料表)在含 10% 胎牛血清(FBS)的 DMEM 培养基中培养,并置于 37 °C、5% CO₂ 的培养箱中维持培养。每两天更换一次培养基,当细胞融合度达到约 80% 时进行传代。采用 MTT 法确定 CUM 的合适剂量和作用时间。NHA、A172、U251、LN229 和 SHG-44 细胞分别用不同浓度(0、2.5、5、10、20 和 40 µM)的 CUM 处理 24、48 和 72 h23。随后,每孔加入 20 µL MTT 溶液。孵育结束后,每孔加入 150 µL 二甲基亚砜(DMSO),轻轻混匀。使用酶标仪测定 450 nm 处的光密度(OD)值。未处理的细胞(对照组)在所有实验中作为阴性对照。
将A172和U251细胞接种并根据处理条件分为以下几组:对照组(Control)、CUM低剂量组(1 µM)、CUM高剂量组(2 µM)、AKT抑制剂组(MK-2206)、AKT抑制剂+ Wnt抑制剂组(MK-2206 + LGK974)以及Elsm-Cu组(Elesclomol + CuCl₂)。CUM处理组的细胞分别用1 µM或2 µM的CUM处理4小时;MK-2206组细胞用1 µM MK-2206处理2小时;MK-2206 + LGK974组细胞在MK-2206处理后,再用µM LGK974处理h;Elsm-Cu组细胞则用100 nM Elesclomol和µM CuCl₂共同处理4小时14。
流式细胞术
将各组培养的 A172 和 U251 细胞用含 1 µg/mL 碘化丙啶(PI)染色液的 PBS 孵育 1 分钟,随后用 0.25% 胰蛋白酶处理,并通过离心(20 × g,1 分钟,室温)收集细胞。使用配备 PE 通道(激发波长 488 nm)的流式细胞仪检测 PI 阳性细胞,计算细胞死亡率27。
羧基荧光素琥珀酰亚胺氨基酯(CFSE)检测
A172 和 U251 细胞在避光条件下,与 µmol/L 的 CellTrace CFSE 染料于 3 °C 孵育 1 分钟。随后中和培养基,并在室温下以 20 × g 离心 min。收集细胞后,根据分组进行培养和处理。使用流式细胞术分析 CFSE 荧光强度(激发波长 488 nm)27。
细胞克隆形成实验
将培养的 A172 和 U251 细胞消化、重悬并计数。加入 2 mL 制备好的细胞悬液。轻轻混匀后,细胞孵育约 14 天。随后用 4% 多聚甲醛固定 3 分钟,并弃去固定液。用 0.1% 结晶紫染色后,拍摄克隆图像,并计算克隆形成率14。
细胞划痕实验
将 A172 和 U251 细胞(每孔 1 × 10⁶ 个细胞)培养至融合度达到 90%。使用无菌的 2 µL 枪头在细胞单层上划一条划痕以制造伤口,随后用不同浓度的 CUM 处理 h 和 48 h。使用显微镜采集图像。采用 ImageJ 软件评估划痕愈合率。将图像转换为 8 位格式,设定统一的阈值以区分划痕区域与细胞区域,并利用 Analyze Particles 功能计算 0 h 和 48 h 时的划痕面积。划痕愈合率(%)=(0 h 距离 − 48 h 距离)/ 0 h 距离 × 100%23。
Transwell 实验
将 A172 和 U251 细胞接受指定处理后,经酶消化离心(200 × g,室温,5 分钟)收集细胞,并用无血清培养基重悬。Matrigel 以 1:8 的比例用无血清培养基稀释,充分混匀后取 5 µL 涂布于 Transwell 小室的上室,随后于 37°C 孵育 4 小时。每孔上室加入 5 × 10⁴ 个细胞,下室加入含 20% FBS 的培养基 60 µL。孵育 48 小时后,用多聚甲醛固定细胞,并以结晶紫染色。从每孔的中心和边缘区域各选取五个视野,在显微镜下观察并拍照。使用 ImageJ 软件计算侵袭细胞数量:将图像转换为 8 位格式,设定阈值以区分染色细胞与背景,利用 Analyze Particles 功能统计穿过膜的细胞数23。
线粒体膜电位(MMP)检测
将各组培养的 A172 和 U251 细胞与 JC-1 工作液在避光条件下孵育 30 分钟。用预冷的 JC-1 缓冲液轻轻洗涤细胞,随后使用荧光显微镜观察并拍照。采用 488 nm 激发光,分别通过 590 nm 和 530 nm 发射滤光片收集 JC-1 聚集体和单体的信号。利用 ImageJ 软件分析红/绿荧光比值(JC-1 聚集体与单体的比值),以评估 MMP 的变化28。分别提取红色和绿色通道的图像,并对相同区域的平均荧光强度进行定量分析。
氧消耗率(OCR)检测
将培养的A172和U251细胞接种。将培养板置于预热的分析仪中,在3 °C下适应。适应完成后,加入检测培养基。自动校准后,在3 °C无CO2条件下平衡15-2分钟。测定基础OCR,并设置检测程序以在指定时间间隔记录线粒体OCR。数据导出用于后续分析28。
MitoSOX 荧光探针检测活性氧(ROS)
将 A172 和 U251 细胞调整至密度为 1 × 10⁴ 个/mL,每孔加入 1 mL 接种于共聚焦培养皿中,随后进行药物干预。弃去细胞上清液,加入 1 mL 稀释后的 MitoSOX 探针(1:1,000)。细胞在避光条件下于 3 °C 孵育 1 分钟。使用荧光显微镜(激发/发射波长:510/580 nm)捕获荧光信号,以评估线粒体中活性氧水平29。
免疫荧光
将盖玻片用 DMEM 培养基洗涤一次,随后置于六孔板中用于细胞接种和药物干预。24 小时后,细胞用 4% 多聚甲醛固定,并用 5% 牛血清白蛋白(BSA)封闭 30 分钟。移除封闭液后,加入针对二氢硫辛酰胺乙酰转移酶(DLAT)和 β-连环蛋白(β-catenin)的一抗稀释液,4 °C 下孵育过夜30。随后加入荧光标记的二抗,在 3 °C 孵育 30 分钟。细胞核用 DAPI 复染,载玻片使用抗荧光淬灭封片剂封片。采用荧光显微镜采集荧光图像,并使用 ImageJ 软件对信号强度进行定量分析。图像转换为 8 位格式,并应用统一的阈值以区分目标信号与背景噪声。矩形工具用于选择目标细胞区域,并测量平均荧光强度27。为观察线粒体,细胞用 20 nM MitoTracker Red CMXRos 处理 30 分钟,随后用多聚甲醛固定30。
TCF/LEF1 荧光素酶报告基因检测试剂盒
采用 TCF/LEF1 荧光素酶报告基因检测试剂盒评估 A172 和 U251 细胞中的 Wnt/β-catenin 信号通路激活情况。TCF/LEF 报告基因载体包含 TATA 盒以及 T 细胞因子/淋巴增强因子(TCF/LEF)反应元件,可通过绿色荧光蛋白(GFP)的表达间接检测 β-catenin 的转录活性。将培养的 A172 和 U251 细胞进行反向转染,每孔加入 5 ng TCF/LEF 报告基因载体。转染后 16 小时,使用酶标仪检测荧光强度,激发波长和发射波长分别设置为 488 nm 和 51 nm31。
荷瘤小鼠
将10只雄性BALB/c裸鼠(7周龄,2 ± 2 g)饲养于特定病原体阴性环境中(2 °C,65%湿度),自由摄取标准饲料和水。所有实验程序均经长江大学第一附属医院伦理审查委员会批准(编号:2023092;批准日期:2023年10月18日)。
为建立胶质母细胞瘤异种移植模型,将 A172 细胞(4 × 10⁶ 个细胞/mL)悬浮于无血清培养基中,每只小鼠右侧 flank 皮下注射 0.1 mL。动物被随机分配至对照组或姜黄素(CUM)治疗组(每组 n = 5)。CUM 组通过口服灌胃每日给予 60 mg/kg 姜黄素,对照组则给予等体积生理盐水。每隔 7 天使用游标卡尺测量肿瘤直径,并采用公式 ½ × 长 × 宽2(mm3)计算肿瘤体积。5 周后,通过颈椎脱位法处死小鼠,在无菌条件下取出肿瘤并称重32。
TUNEL 检测
肿瘤组织用 4% 多聚甲醛固定 24 小时,经乙醇脱水后,包埋于石蜡中,并切成 µm 厚度切片。切片经脱蜡和再水化处理,用 PBS 洗涤,以蛋白酶 K 处理 50 分钟进行抗原修复,随后与 3% 过氧化氢孵育。加入 TUNEL 反应混合液,反应 1 小时,然后用抗荧光淬灭封片剂封片。通过显微镜采集荧光图像,并使用 ImageJ 软件定量每视野中 TUNEL 阳性细胞数。
免疫组织化学
将石蜡包埋的肿瘤切片在 6 °C 下烘烤,二甲苯脱蜡,并通过梯度乙醇系列复水。使用加热的 EDTA 缓冲液进行抗原修复,随后淬灭内源性过氧化物酶活性。切片在 °C 下与抗 Ki-67 一抗孵育过夜。在与二抗孵育 20 分钟后,切片用二氨基联苯胺(DAB)染色 5 分钟,并用苏木精复染。经脱水并用中性树脂封片后,在显微镜下观察切片。阳性染色表现为棕黄色沉淀,使用 ImageJ27 对 Ki-67 阳性细胞进行定量分析。
二氢乙啶(DHE)荧光染色
采用DHE荧光染色法检测活性氧(ROS)水平。将冷冻的肿瘤组织切片用PBS冲洗,淬灭背景荧光后,每张切片加入µM浓度的DHE,孵育3分钟。PBS洗涤后,切片避光封片。使用显微镜(激发/发射波长:518/605 nm)观察荧光信号,每组随机采集五张图像。采用ImageJ软件对ROS水平进行定量分析。
Cu2+ 含量检测
采用比色法检测试剂盒检测 GBM 细胞和肿瘤组织中的 Cu2+ 浓度。处理后的 A172 和 U251 细胞经收集后,在 4 °C 条件下以 1,500 × g 离心 10 分钟。细胞沉淀用 0.1 mL 蒸馏水重悬,在冰上超声破碎,再次离心。肿瘤组织在蒸馏水中匀浆后,同样在 4 °C 条件下以 1,500 × g 离心 10 分钟。取上清液 1 µL 加入 96 孔板中,加入 23 µL 显色试剂,密封后孵育 5 分钟。使用酶标仪在 580 nm 波长处测定吸光度(OD),并计算 Cu2+ 水平14。
Western Blot(WB)
从培养的细胞和肿瘤组织中分离蛋白质。在4 °C条件下,以12,000 × g离心15分钟获得上清液,并使用BCA法测定蛋白浓度。经变性处理后,样品通过SDS-PAGE分离,转移至PVDF膜,并用5%脱脂牛奶封闭1小时。将膜用TBST洗涤后,于4 °C与针对FDX1、LIAS、DLAT、DLD、AKT、p-AKT、Wnt3a、GSK-3β、p-GSK-3β、β-catenin、p-β-catenin和β-actin的一抗孵育过夜(参见材料表)14,33。再次用TBST洗涤后,膜与HRP标记的二抗在室温孵育1小时,使用ECL试剂显色,并通过化学发光法检测信号。使用ImageJ软件,结合矩形选择工具和凝胶分析功能对条带信号强度进行定量。相对蛋白表达水平以目的条带灰度值与内参(GAPDH)灰度值的比值计算。采用核蛋白提取试剂盒制备A172和U251细胞的核提取物,并检测β-catenin和Lamin B1的表达水平,其中Lamin B1作为核蛋白上样对照34。
统计学分析
定量结果表示三次独立重复实验的平均值。所有数据均经过正态分布和方差齐性检验。多组间比较采用单因素方差分析(One-way ANOVA),随后进行 Tukey 事后检验。数据以平均值 ± 标准差(SD)表示。P 值小于 0.05 被认为具有统计学显著性。这些方法用于确保数据的稳健性,并支持结论的可靠性。
访问受限。请登录或开始试用以查看此内容。
结果
抑制 GBM 细胞活力并诱导细胞死亡
首先,在 CUM 干预 2 小时、48 小时和 72 小时后,NHA 细胞活力未出现显著变化(图 2A),表明所使用的 CUM 浓度对正常细胞无毒性作用。相比之下,GBM 细胞系(A172、U251、LN229 和 SHG-44)在 CUM 浓度 ≥ 1 µM 时细胞活力显著降低(P < 0.05–0.001)(图 2B–E)。基于这些结果,后续实验选择 1 µM 和 2 µM 的 CUM 浓度,并设置 4 小时的处理时间。经 CUM 处理后,A172、U251、LN229 和 SHG-44 细胞的 IC50 值分别为 21.62、37.99、66.11 和 49.2 µM(图 2F)。因此,选择 A172 和 U251 细胞进行进一步研究。CUM 显著增加了 A172 细胞的死亡率(3...
访问受限。请登录或开始试用以查看此内容。
讨论
胶质母细胞瘤(GBM)的复发率与其恶性生物学特性相关36。CUM通过调节氧化应激、凋亡、自噬、转移、侵袭及关键分子靶点发挥抗GBM作用37。本研究的细胞水平实验表明,CUM显著提高了GBM细胞的死亡率,并抑制了细胞增殖、克隆形成、迁移和侵袭能力,这些发现与既往报道一致20。
铜死亡(cuproptosis)与多种癌症的进展相关,包括胶质母细胞瘤(GBM)30,38。生物信息学分析表明,CUM可能影响肝细胞癌中的铜死亡39,但尚无先前研究报道其在GBM细胞中诱导铜死亡的能力。过量的Cu2+可直接结合DLAT和DLST,导致其发生寡聚化,从而破坏三羧酸(TCA)循环,并引发氧化应激和代谢紊乱。此外,细胞内Cu2+水平升高会诱导铁硫(Fe-...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在利益冲突。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.1% 结晶紫染色液 | Servicebio | G1014 | 细胞标记 |
| 4% 多聚甲醛 | Beyotime | P0099 | 固定细胞或组织 |
| AKT 抑制剂(MK-2206) | Selleck.cn,中国上海 | S1078 | 特异性 AKT 抑制剂 |
| 抗体(一抗和二抗) | ABclonal Technology,中国武汉 / abcam,英国剑桥 / Servicebio,中国武汉 / Beyotime,中国上海 / Cell Signaling,美国马萨诸塞州丹弗斯 | A8814, ab32572, GB25303, ab15580, ab108257, ab246917, A8814, AF6708, AA326, 4060, ab219412, 280376, 9322, ab97051, ab229025 | 检测蛋白表达水平 |
| 细胞凋亡检测试剂盒 | Servicebio,中国武汉 | G1021 | 凋亡检测 |
| Cell Trace CFSE 荧光染料 | Invitrogen,美国加利福尼亚州卡尔斯巴德 | C34570 | 细胞增殖检测 |
| 化学发光成像系统 | Bio-Rad,美国加利福尼亚州赫克力士 | Chemi Doc XRS+ | 蛋白超高灵敏度检测 |
| Cu2+ 比色法检测试剂盒 | Elabscience,中国武汉 | E-BC-K300-M | 检测肿瘤组织和胶质母细胞瘤细胞中的 Cu2+ 含量 |
| CuCl2 | Sigma-Aldrich,德国达姆施塔特 | 751944 | 铜死亡诱导剂 |
| 姜黄素(CUM) | 上海源叶,中国上海 | S19245 | 多酚类化合物 |
| DHE 检测试剂盒 | Beyotime,中国上海 | S0063 | 活性氧(ROS)水平检测 |
| 二甲基亚砜(DMSO) | Servicebio | G4101-2 | MTT 实验溶剂 |
| ECL 显影液 | Servicebio | G2161 | 用于 Western blot |
| 依立斯莫(Elesclomol) | Selleck.cn | S1052 | 铜死亡诱导剂 |
| 流式细胞仪 | BD Biosciences,美国新泽西州 | BD FACSAria III | 用于细胞死亡和 CFSE 检测 |
| 荧光显微镜 | OLYMPUS,日本东京 | IX73 | 用于免疫荧光、ROS、TUNEL、DHE 和线粒体膜电位(MMP)检测 |
| 胶质母细胞瘤细胞系 A172(RRID: CVCL_0131)、U251(RRID: CVCL_0021)、LN229(RRID: CVCL_0393)和 SHG-44(RRID: CVCL_6902) | 普诺赛生物科技有限公司,中国武汉 | CL-0012, CL-0237, CL-0578, CL-0207 | 人源胶质母细胞瘤细胞系 |
| GraphPad Prism 9.0 软件 | GraphPad Software, LLC | 版本 9.0 | 统计分析 |
| ImageJ 1.53k 软件 | 美国国家心理健康研究所 | 版本 1.53k | 统计计算 |
| JC-1 工作液 | Solarbio,中国北京 | M8650 | 线粒体膜电位(MMP)检测 |
| 雄性 BALB/c 裸鼠 | 斯莱克金达实验动物有限公司,中国湖南 | 小鼠实验 | |
| 酶标仪 | Bio-Tek,美国佛蒙特州 | ELX-800 | 用于测定 OD450 nm 值 |
| 显微镜 | OLYMPUS | BX53 | 用于细胞划痕实验、Transwell 实验和免疫组织化学检测 |
| MitoSOX 探针 | Thermo Fisher Scientific,美国马萨诸塞州沃尔瑟姆 | M36008 | 用于活性氧(ROS)检测 |
| Mitotracker Red CMXRos | Thermo Fisher Scientific | M7512 | 活细胞中线粒体的特异性标记 |
| MTT 检测试剂盒 | Servicebio | G4101-1 | 细胞活力检测 |
| 正常人脑星形胶质细胞 NHA 细胞(RRID:CVCL_B0DK) | 华拓生物科技有限公司,中国深圳 | HTX2408 | 对照实验用细胞系 |
| 核蛋白提取试剂盒 | Beyotime | P0027 | 核蛋白提取 |
| Seahorse 细胞能量代谢分析仪 | Agilent, 中国北京 | Seahorse XF | 用于氧消耗率(OCR)检测 |
| TCF/LEF1 荧光素酶报告基因检测试剂盒 | 百奥莱博科技有限公司,中国北京 | 检测 Wnt/β-catenin 信号通路活性 | |
| TUNEL 检测试剂盒 | Beyotime | C1088 | 肿瘤组织中细胞凋亡检测 |
| Wnt 抑制剂(LGK974) | Selleck.cn | S7143 | 特异性 Wnt 抑制剂 |
参考文献
- Weller, M., et al. Glioma. Nat Rev Dis Primers. 10 (1), 33(2024).
- Liang, R., Xiang, Y., Hu, C., Tang, X. Expression and clinical significance of RBBP4 gene in lower-grade glioma: an integrative analysis. Biochem Biophys Rep. 35, 101533(2023).
- Sahoo, O. S., Mitra, R., Nagaiah, N. K. H. The hidden architects of glioblastoma multiforme: glioma stem cells. 3 (1), 66(2024).
- Schaff, L. R., Mellinghoff, I. K. Glioblastoma and other primary brain malignancies in adults: a review. JAMA. 329 (7), 574-587 (2023).
- Singh, D. Nanocage-tethered polymeric hybridome for pDNA delivery: a revolutionary approach for treatment of glioblastoma. J Can Biomol Therap. 2 (1), 133-144 (2025).
- van den Bent, M. J., et al. Primary brain tumours in adults. Lancet. 402 (10412), 1564-1579 (2023).
- Zhou, Y., Shi, F., Zhu, J., Yuan, Y. An update on the clinical trial research of immunotherapy for glioblastoma. Front Immunol. 16, 1582296(2025).
- Ravuluri, J. A. V., et al. Brain-targeted nano-architectures for efficient drug delivery and sensitization in glioblastoma. Curr Pharm Des. 29 (22), 1775-1790 (2023).
- LeBlanc, V. G., et al. Single-cell landscapes of primary glioblastomas and matched explants and cell lines show variable retention of inter- and intratumor heterogeneity. Cancer Cell. 40 (4), 379-392.e9 (2022).
- Zhang, Y., et al. Single-cell RNA sequencing identifies critical transcription factors of tumor cell invasion induced by hypoxia microenvironment in glioblastoma. Theranostics. 13 (11), 3744-3760 (2023).
- Jiang, Y., Huo, Z., Qi, X., Zuo, T., Wu, Z. Copper-induced tumor cell death mechanisms and antitumor theragnostic applications of copper complexes. Nanomedicine (Lond). 17 (5), 303-324 (2022).
- Tsvetkov, P., et al. Copper induces cell death by targeting lipoylated TCA cycle proteins. Science. 375 (6586), 1254-1261 (2022).
- Meena, R., Sahoo, S. S., Sunil, A., Manna, D. Cuproptosis: a copper-mediated programmed cell death. Chem Asian J. 20 (4), e202400934(2025).
- Jin, Y., et al. Baicalein enhances cisplatin sensitivity in cervical cancer cells by promoting cuproptosis through the Akt pathway. Biomed Pharmacother. 179, 117415(2024).
- Ning, S., et al. Type-I AIE photosensitizer loaded biomimetic system boosting cuproptosis to inhibit breast cancer metastasis and rechallenge. ACS Nano. 17 (11), 10206-10217 (2023).
- Chen, Y., Zhang, J., Zheng, W., Xu, H. Cuproptosis-related lncRNAs and genes: potential markers for glioblastoma prognosis and treatment. PLoS One. 20 (2), e0315927(2025).
- Huang, Q. -X., et al. Metal-organic framework nanoagent induces cuproptosis for effective immunotherapy of malignant glioblastoma. Nano Today. 51, 10911(2023).
- Mohamadian, M., Ahmadi, S. S., Bahrami, A., Ferns, G. A. Review on the therapeutic potential of curcumin and its derivatives on glioma biology. Neurochem Res. 47 (10), 2936-2953 (2022).
- Zoi, V., et al. Curcumin and radiotherapy exert synergistic anti-glioma effect in vitro. Biomedicines. 9 (11), 1562(2021).
- Wong, S. C., Kamarudin, M. N. A., Naidu, R. Anticancer mechanism of curcumin on human glioblastoma. Nutrients. 13 (3), 950(2021).
- Sun, X., et al. Protective effect of curcumin on hepatolenticular degeneration through copper excretion and inhibition of ferroptosis. Phytomedicine. 113, 154539(2023).
- Xiang, B., et al. Curcumin ameliorates copper-induced neurotoxicity through inhibiting oxidative stress and mitochondrial apoptosis in SH-SY5Y cells. Neurochem Res. 46 (2), 367-378 (2021).
- Wang, Z., et al. Curcumin suppresses glioblastoma cell proliferation by p-AKT/mTOR pathway and increases the PTEN expression. Arch Biochem Biophys. 689, 108412(2020).
- Jia, F., et al. Matrix metallopeptidase 2-responsive curcumin-loaded nanoparticles-induced signal transducer and activator of transcription 3 inhibition suppresses glioblastoma multiforme growth via enhancing nuclear factor erythroid 2-related factor 2 activity. Int J Biol Macromol. 307 (Pt 2), 141998(2025).
- Su, X., Chen, S., Lu, H., Li, H., Qin, C. Study on the inhibitory effect of curcumin on GBM and its potential mechanism. Drug Des Devel Ther. 15, 2769-2781 (2021).
- Bhagat, N., et al. Self-assembled systems for nose-to-brain delivery of temozolomide in brain tumor therapy. Int J Pharm. 675, 125540(2025).
- Mohajerani, F., et al. CLEC19A overexpression inhibits tumor cell proliferation and migration and promotes apoptosis concomitant suppression of PI3K/AKT/NF-κB signaling pathway in glioblastoma multiforme. BMC Cancer. 24 (1), 19(2024).
- Li, Z., et al. MELK promotes HCC carcinogenesis through modulating cuproptosis-related gene DLAT-mediated mitochondrial function. Cell Death Dis. 14 (11), 733(2023).
- Lin, S., Wu, B., Hu, X., Lu, H. Sirtuin 4 downregulation contributes to chondrocyte senescence and osteoarthritis via mediating mitochondrial dysfunction. Int J Biol Sci. 20 (4), 1256-1278 (2024).
- Wang, W., et al. Ferroptosis inducers enhanced cuproptosis induced by copper ionophores in primary liver cancer. J Exp Clin Cancer Res. 42 (1), 142(2023).
- Wagstaff, M., et al. β-Catenin interacts with canonical RBPs including MSI2 to associate with a Wnt signalling mRNA network in myeloid leukaemia cells. Oncogene. 44 (29), 2490-2503 (2025).
- Liao, C. L., et al. Tetrandrine suppresses human brain glioblastoma GBM 8401/luc2 cell-xenografted subcutaneous tumors in nude mice in vivo. Molecules. 26 (23), 7105(2021).
- Huo, S., et al. ATF3/SPI1/SLC31A1 signaling promotes cuproptosis induced by advanced glycosylation end products in diabetic myocardial injury. Int J Mol Sci. 24 (2), 1667(2023).
- Zhang, Z., et al. Maresin1 suppresses high-glucose-induced ferroptosis in osteoblasts via NRF2 activation in type 2 diabetic osteoporosis. Cells. 11 (16), 2560(2022).
- Wang, H., et al. Targeting Wnt/β-catenin signaling exacerbates ferroptosis and increases the efficacy of melanoma immunotherapy via the regulation of MITF. Cells. 11 (22), 3580(2022).
- Liu, Y., et al. DNA aptamer S11e recognizes fibrosarcoma and acts as a tumor suppressor. Bioact Mater. 12, 278-291 (2022).
- Walker, B. C., Mittal, S. Antitumor activity of curcumin in glioblastoma. Int J Mol Sci. 21 (24), 9435(2020).
- Zhang, B., Xie, L., Liu, J., Liu, A., He, M. Construction and validation of a cuproptosis-related prognostic model for glioblastoma. Front Immunol. 14, 1082974(2023).
- Liu, Z., Ma, H., Lai, Z. The role of ferroptosis and cuproptosis in curcumin against hepatocellular carcinoma. Molecules. 28 (4), 1623(2023).
- Tian, Z., Jiang, S., Zhou, J., Zhang, W. Copper homeostasis and cuproptosis in mitochondria. Life Sci. 334, 122223(2023).
- Prasad Panda, S., Kesharwani, A. Micronutrients/miRs/ATP networking in mitochondria: clinical intervention with ferroptosis, cuproptosis, and calcium burden. Mitochondrion. 71, 1-16 (2023).
- Peng, Y., Wang, Y., Zhou, C., Mei, W., Zeng, C. PI3K/Akt/mTOR pathway and its role in cancer therapeutics: are we making headway. Front Oncol. 12, 819128(2022).
- Precilla, D. S., et al. Wnt/β-catenin antagonists: exploring new avenues to trigger old drugs in alleviating glioblastoma multiforme. Curr Mol Pharmacol. 15 (2), 338-360 (2022).
- Li, C., Yang, J., Wang, W., Li, R. LHPP exerts a tumor-inhibiting role in glioblastoma via the downregulation of Akt and Wnt/β-catenin signaling. J Bioenerg Biomembr. 53 (1), 61-71 (2021).
- Liu, Y. T., et al. Dysregulated Wnt/β-catenin signaling confers resistance to cuproptosis in cancer cells. Cell Death Differ. 31 (11), 1452-1466 (2024).
- Yu, W., et al. Investigation of cuproptosis regulator-mediated modification patterns and SLC30A7 function in GBM. Aging (Albany NY). 16 (4), 3554-3582 (2024).
- Afshari, A. R., et al. Anti-tumor effects of curcuminoids in glioblastoma multiforme: an updated literature review. Curr Med Chem. 28 (39), 8116-8138 (2021).
访问受限。请登录或开始试用以查看此内容。
重印与许可
本文已发表
视频即将推出