我们提出了一种高效且经过优化的实验方案 农杆菌介导的无性繁殖两栖型十字花科物种的转化 Rorippa aquatica, 无需耗费大量资源的无菌组织培养步骤。利用可视化转化标记和芽再生流程,成功获得了近乎无性系的转基因植株,从而推动了植物对水下环境适应性研究的未来发展。
本文内容
摘要
摘要
由稳定遗传转化介导的植物遗传转化 根癌农杆菌 在基础植物生物学研究以及直接影响作物改良的植物生物技术领域,它一直是一种强大的工具。诸如拟南芥花序浸染法这样简单高效的转化流程,已极大地推动了基因功能的大规模分析。然而,这类转化流程无法应用于不进行有性生殖的植物物种。 Rorippa aquatica 是一种新兴的两栖十字花科模式物种,能在陆地或水下环境中表现出异形叶性,即叶片和植株形态发生显著变化。 R. aquatica 仅通过无性方式繁殖。本文介绍的优化流程提供了高效且可靠的 农杆菌介导的 R. aquatica 无需无菌组织培养的转化方法。叶片插条短暂浸入 农杆菌 悬浮于含有表达可视标记物的双元载体的转化缓冲液中, RUBY, 在组成型启动子下。随后,将接种物在湿润的滤纸上置于培养室中培养。然后,再生出的幼苗与 RUBY 红色色素部分被分离并移栽至土壤中。这些最初的T1再生植株(R1-T1)表现出红色斑区。通过切取红色斑区并重复再生步骤,在下一代R2-T1代中产生大量转基因同胞植株,其中部分植株几乎呈均匀红色; 表明 RUBY 表达。这一简单的转化流程可被采用以 R. aquatica 以及可能的其他营养繁殖植物物种,以导入目的基因并研究这些基因在陆地适应过程中的功能 与水生环境。
引言
稳定的遗传转化,即目的基因在特定植物物种中的导入与表达,是基础植物科学和植物生物技术的核心。 Agrobacterium tumefaciens介导的转化是迄今为止植物基因工程中最广泛使用的方法,因其能够可靠地产生稳定的转化植株1. 一种双元载体系统的开发,其中T-DNA克隆载体和无毒化 病毒 辅助质粒被分为两个独立实体,实现了革新 农杆菌介导的转化1,2. 对于模式植物 拟南芥一种简单且成本效益高的花序浸蘸转化方法,可实现功能遗传学和基因组学研究中克隆(半合子)转化植株的高通量制备3,4然而,对于主要或完全通过无性繁殖的植物物种而言,这种方法并不可行。
水陆两生植物具有一种独特的能力,能够在陆地和水下环境中茁壮成长5。Rorippa aquatica 是一种具有异形叶性的十字花科水陆两生植物。在陆地环境中,R. aquatica 发育出圆形叶片,其表皮由铺地细胞和气孔组成;而在水生环境中,其叶片则呈现出高度分裂的针状形态,表皮缺乏具角质层的铺地细胞和气孔,这种结构形态非常 适应水下环境6,7。从系统发育关系来看,R. aquatica 与Arabidopsis thaliana 亲缘关系密切,两者同属于十字花科 Brassicaceae6。结合R. aquatica 与A. thaliana 之间编码基因的全基因组序列数据以及高度保守的序列同源性,R. aquatica 已成为研究植物适应陆地与水生环境分子机制的新兴模式水陆两生植物8。事实上,近期的生理学和基因表达研究表明,光信号和激素信号通路的重编程对R. aquatica 的异形叶性具有关键作用7,8。
为了验证候选基因和通路的分子功能,遗传转化至关重要。R. aquatica 在自然界中通过营养繁殖方式进行扩增8,9。因此,与A. thaliana不同,无法对R. aquatica采用农杆菌介导的花序浸染法进行遗传转化。值得注意的是,R. aquatica 可以从离体叶片自发再生完整小植株,且无需外源添加植物激素10。简而言之,在叶片片段被切除后的数天内,切口近端的维管组织中细胞增殖即被激活;一周内即可同时再生出根和芽,最终形成幼嫩的小植株(莲座状植株)。这些独立的植株可被分离并培养至成熟10。这种自发的小植株再生过程可被直接用于R. aquatica的遗传转化。
此处报道的优化流程可实现高效且可靠的 农杆菌介导的转化 R. aquatica 通过利用其叶片脱落后的自发再生能力,为便于筛选转化子且无需昂贵的无菌培养过程,采用一种非侵入性的可视化筛选标记 RUBY 被采用, 一种含有三个基因的合成载体,可介导甜菜碱的生物合成11通过优化细菌培养条件、接种步骤以及叶片外植体再生过程中的培养条件,可稳定获得转基因植株 R. aquatica 植株生长至成熟。在R1-T1代,几乎所有最初的转化植株均表现出红色扇形区域,表明它们是异质性的遗传嵌合体。通过切除这些 RUBY+ 红叶扇区并重复再生过程,获得完全呈红色的莲座状植株,从而实现近乎克隆的繁殖 R. aquatica 在随后的R2-T1代中获得转化植株是可行的。该转化流程可轻松用于将目标外源基因导入并表达于 R. aquatica从而加速对异形叶性及植物对极端环境适应性的分子遗传学研究。
方案
所用试剂和设备列于材料表中。
1. 植物材料的准备
- 从两个月大的成熟母株上,切取完全裂叶的健康成熟叶片,切成1-2 cm的小片图1A).
- 用两层经高压灭菌的折叠纸巾铺满植物扦插托盘(20 × 30 cm Perma Nest Trays),并将纸巾浸透 无菌水,使表面形成一层薄薄的水层。
- 放置插条 近轴面朝上,每个外植体周围留出空间,以避免重叠(图1A).
- 轻轻喷雾处理插条,并用塑料薄膜紧密覆盖托盘。
- 将培养皿置于25 °C–28 °C、光照强度为50 µmol/m²/s、湿度适宜的培养室中,光照周期设为16小时光照、8小时黑暗2/s.
- 每周检查并维护干净、湿润的繁殖托盘2至3次。
- 加入无菌水,以维持饱和滤纸条上方形成一层薄薄的水膜。
- 更换失去黏性 和/或 出现污染迹象(如可见的水体浑浊)的塑料封口膜。
- 使用显微剪刀或解剖刀,在建立后14至21天,小心地切下已再生的、带有茎和根的健康莲座状植株单株。图1B).
注意:需仔细切除,以获得带有完整茎和根的单个莲座状植株。 蔊菜属 莲座状小植株在叶片外植体与中脉的交界处密集增殖,使得单个莲座状小植株的识别变得困难。莲座状小植株的茎向上生长(近轴方向),而根则在叶片下方生长,导致整个莲座状小植株的观察变得复杂图1B). - 将单个莲座状植株移栽至装有湿润土壤基质(盆栽土:蛭石:珍珠岩按2:1:1比例混合)并添加缓释肥料的花盆中图1B).
- 用自来水配制含0.25 g/L颗粒状NPK肥料的溶液,并用保湿罩或塑料膜覆盖,以维持湿润环境。
- 将培养皿置于生长室中,在先前设定的条件下培养(25 °C–28 °C,16小时光照、8小时黑暗,湿度适宜,光照强度为50 µmol/m²/s)2/秒
注意:必须保持 保持盆栽幼苗下方有一层薄水,以维持潮湿的土壤条件。
2. 农杆菌 用于转化的培养物
- 划线 A. tumefaciens 菌株GV3101,携带含有T-DNA的Ti质粒pMP90(pTiC58DT-DNA) RUBY 在含有利福平(0.03 mg/mL)、庆大霉素(0.025 mg/mL)和链霉素(0.05 mg/mL)的30 mL LB平板上涂布载体,于28°C培养48–72小时,直至出现单菌落。
- 挑选单菌落,接种于5 mL添加了生物素及先前选择性抗生素的MG/L肉汤中(表1并在28 °C、200 rpm条件下于摇床中振荡培养16小时。
- 将接种物转移至含有250 mg/L培养基的锥形瓶中,在28 °C、200 rpm条件下于摇床中振荡培养16 h。
- 确保液体培养物的OD值不低于最低要求600 使用分光光度计测定 OD600 值为 1.2。在 3396 × g 条件下离心收集细菌菌体。 g 室温(约 22 °C)孵育 10 分钟。向接种液中加入 200 µM 乙酰丁香酮(AS)。
注意:滤膜除菌的AS以DMSO配制成100 mM的工作浓度,分装后于-20 °C保存。接种用培养基应现配现用。为减少降解,AS需在离心步骤前直接加入。培养基的成分及配制方法列于 表1. - 避免直接扰动细菌沉淀,弃去上清液,并将沉淀重悬于接种液培养基中。
- 轻轻摇动烧瓶,使溶液的OD600 约0.8。
- 在室温(约 22 °C)下,将接种物置于摇床中以 90 rpm 振荡培养 2.5 小时。
- 记录相关条件(培养及接种液的OD值)600AS浓度和表面活性剂数量、接种时间以及转化效率所需的实验单元数量。
注意:最佳的菌液及重悬培养浓度对于在最小化过度细菌生长的同时最大化转化效率至关重要。离心前,确保菌液的OD600不低于1.2;重悬后接种物的OD600应为0.8。诱导培养基的添加成分已优化,以增强转化效率而不影响再生植株的活力。乙酰丁香酮(AS)的推荐浓度为150–225 µM,表面活性剂的推荐浓度为0.005%。
警告:所有转基因细菌和植物均须弃置于指定的生物危害废物容器中。
3. 水生蔊菜(R. aquatica)叶片插条的转化
- 在接种物重悬培养孵育的同时,选择若干株具有健康叶片且叶缘完整的2个月龄的母本植株。
- 准备一个植物扦插托盘(20 × 30 cm Perma Nest 托盘),铺上两层经高压灭菌的纸巾。将纸巾折叠后用无菌水充分浸润,使其表面形成一层薄薄的水层。
注意:设立一个阴性对照托盘,其中放置未接种的外植体,并保持相同的环境条件。 - 确保实验台配备有100–500 mL 去离子水(ddH2O)、适合预期重悬接种物体积的无菌容器、移液器及枪头。
- 在孵育阶段结束前,迅速从选定的母本植株上切下十片叶片,切割位置为叶柄基部。将外植体置于含有无菌水的培养皿中。
注意:必须使用新鲜切割的组织进行叶片接种,以避免叶片失水干枯。 - 孵育2.5小时后,将50 µL 表面活性剂加入1 L 重悬液中(终浓度为0.005%表面活性剂),轻轻旋转混匀烧瓶(图2A)。确保接种后可立即使用准备好的扦插托盘放置外植体(图2B)。
- 将叶片背面朝上,用解剖刀沿中脉垂直切割成长度约为1 cm 的小段(图2C)。
- 立即将 freshly 切割的叶片放入适合旋转混匀仪使用的50 mL 离心管中,作为接种用外植体。
- 将接种液倒入外植体管中,用量以充分浸润所有材料为宜,随后在室温下置于旋转混匀仪中振荡10分钟,完成接种过程(图2D,E)。
- 用镊子将所有接种后的叶片从溶液中取出,并直接放置于已准备好的扦插托盘中。
- 将浸湿的外植体分开并均匀铺开,使其部分浸没在纸巾上方的薄水层中,但不要完全淹没(图2F)。
警告:保持无菌操作条件,避免与之前用于Agrobacterium操作但尚未消毒的表面或工具发生任何接触。 - 用保鲜膜密封每个托盘,并在常温(22°C)黑暗条件下孵育三天。
- 黑暗孵育结束后,确保托盘仍用透明保鲜膜密封,并补充去离子水(ddH2O)以维持湿度水平。
- 将接种托盘转移至植物生长培养箱中,在营养繁殖条件下继续培养。
警告:将接种液废弃物集中收集至专用废液容器中,用10%次氯酸钠溶液处理,并按照生物安全指南进行处置。
4. 莲座状植株的再生及R1-T1代的建立
- 每周检查接种托盘 2-3 次,以确保环境清洁且湿润。
- 使用挤压瓶添加 ddH2O。如有条件,可在重新密封托盘前使用喷雾瓶对外植体进行喷雾保湿。
- 通过更换失去粘附性或出现污染迹象(如水分浑浊)的保鲜膜,维持高湿度环境。
- 目视检查再生的莲座状幼苗,评估其是否适合移栽。理想的再生植株应具有完整的茎芽、多片叶片,以及长度至少为 2-3 mm 的根系(图 2G)。
注意:转基因莲座状幼苗通常再生较慢,一般在转入培养室后 21-28 天方可达到移栽标准。 - 将完整且存活的转基因莲座状幼苗移栽,其培养条件应与野生型克隆再生植株相同。
- (可选)记录再生转化植株的数量,并关联其转化条件以评估转化效率。
注意:筛选过程中需格外小心。转基因再生植株通常较小,容易被忽略。应使用镊子仔细检查叶片的近轴面和远轴面,以提高回收率并减少损伤。 - 切取莲座状幼苗时,避免触碰任何转基因叶片。立即修剪转基因叶片周围多余的枝叶。每盆移栽一株植物。
- 迅速对每株植物进行施肥、浇水并喷雾保湿,然后置于塑料罩下以保持湿度(图 2G、H)。
- 对每株转基因幼苗进行标记和记录。
- 将缺乏茎芽、根系或体型过小而不适合移栽的含转化体的外植体重新放回增殖托盘,继续筛选。待生长充分后,再进行后续转化体的移栽。
- 移栽后的植株在第一周内每天喷雾和浇水一次。确保托盘中始终有水。
- 清除并妥善处理已衰老或不再表达 RUBY 色素的移栽植株。
警告:所有转基因材料的处置必须遵守所在机构的生物安全规定。
5. 近克隆R2-T1代的后续再生与建立
- 当莲座状植株发育成较大且健康的植株后(约2个月),从单株幼苗上切下表达RUBY的展开叶片(图2H)。
注意:RUBY表达的叶片可能呈现均匀红色,但更常见为嵌合状态。两种表型均适用于繁殖。后续步骤中采用标准的营养繁殖方法。 - 将转化后的叶片片段分割并放置于繁殖托盘中。每个繁殖托盘须清晰标注对应的幼苗供体编号。
警告:不得将来自多个幼苗的叶片混合置于同一托盘中。每株幼苗代表一个独立的转基因事件,必须作为独立世代进行追踪。 - 移栽再生的R2-T1代植株(繁殖后14–28天)。为每株植株分配一个新的编号以反映其第二代身份。继续按照此前所述的标准方法进行移栽后养护(图2I,J)。
结果
为了成功获得表达 RUBY 的转基因 R. aquatica 植株,克服基于不育性的限制并利用其快速的无性再生能力,对A. tumefaciens 转化过程中的各项参数进行了优化(图1 和 图2)。在将叶片外植体接种并经过随后72小时的暗处理后,再生小植株在所述条件下约2周内开始生长。接种后3至5周内可观察到具有足够大嵌合RUBY 区域、可用于移栽的再生小植株(图3),其大小略小于非表达型莲座状小植株。在对照的野生型培养皿中未发现任何表达RUBY的再生植株,证实该现象与R. aquatica 本身的生理特性无关。细菌培养液类型、重悬接种液类型、侵染方法以及接种时间在产生转化植株的能力或速率上均无显著差异(Table 2 和 Table 3)。对转化效率有积极影响的处理因素包括提高乙酰丁香酮(AS)浓度以及在叶片外植体接种前进行生长素处理。而增加表面活性剂浓度则对转化产量产生负面影响,被认为不适宜使用。
使用 R 版本 4.4.212,13,14,15 对莲座状植株计数数据进行泊松广义线性混合模型(Poisson GLMM)分析。然而,在实验 D(表 2D)中,当对 RUBY-表达再生植株在添加 150 µM AS 或 225 µM AS 的 15 分钟接种条件下进行检测时,由于数据存在欠离散现象,模型假设被违反,因此改用负二项广义线性混合模型(Negative Binomial GLMM)进行分析。
不同细菌培养液和培养条件对转化效率的影响得到了仔细研究。在五次实验重复中,使用Miller's LB培养基或转化特异性的MG/L培养基所产生的转化子在几乎完全相同的参数下表达了RUBY,两者效应之间无显著差异(表2A)。由单个叶片外植体(每处理包含15–60个外植体)再生出的表达RUBY的莲座状苗平均数量,在使用LB培养基和非MS基础的培养重悬液(对照诱导培养基,表1)的实验中为1.61 ± 0.71个再生苗,而在采用MG/L培养基和优化诱导培养基的实验中为3.23 ± 1.13个再生苗。尽管统计上无显著差异,但基于主观观察,后续优化实验选择了MG/L培养体系与优化诱导培养基(表1)。
接下来,我们测试了影响细菌载量以及进入植物分生组织能力的因素。在八次重复实验中(表2B),接种外植体在表面活性剂浓度提高至0.01%的情况下,一个月后表现出严重的应激反应,导致再生植株体型微小且大部分无法存活。在这些重复实验中似乎未获得再生的转化子,尽管外植体的应激再生表型呈现出深红褐色、棕色和黄色的色素沉积,提示可能存在潜在的转化子。无论如何,再生植株的不可存活性验证了维持0.005%表面活性剂浓度的必要性。
比较了两种用于将目标DNA导入宿主植物的机械方法——振荡法与真空渗透法。对照组渗透方法中,将外植体浸入50 mL重悬的接种液中,并在试管混合器中旋转,该方法成功实现了 RUBY-在所列处理中表达的再生植株。应用真空渗透产生了 RUBY表达的再生植株同样如此,但与对照方法相比,其转化效率无显著差异(p = 0.478, 表 2D。大约 2-5 RUBY-每繁殖盘观察到的表达再生植株数量,无论是否接种 通过 真空浸润或物理振荡。
细菌接种液中改良后的乙酰丁香酮(AS)浓度对转化效率的影响存在明显差异。将AS浓度从150 µM提高到225 µM,显著增加了表达RUBY的转基因外植体的产量(p = 0.000309,0.000458;表3C,D)。在四项实验中,每种处理均包含一个装有40个经相同处理的接种外植体的托盘。在较高浓度AS下接种的处理组平均每托盘获得近5个表达RUBY的再生植株,而对照AS浓度组每托盘仅获得1个转化体(表3C)。此外,AS的作用似乎独立于接种持续时间。
在接种时间为15分钟、外植体添加225 µM AS的三项实验中,平均每项实验获得7.28 ± 4.13个表达RUBY的再生植株,明显高于150 µM处理组的2.03 ± 1.32个再生植株(表3D)。在150 µM AS的对照处理中,接种时间间隔的影响并不显著(p = 0.676),其中10分钟接种的平均再生率为1.48 ± 0.954,而15分钟接种的平均再生率为1.84 ± 1.230个再生植株(表3B)。类似地,经10分钟、225 µM处理的接种材料每处理组大约再生出5个表达RUBY的莲座状苗,与15分钟接种处理组相比无明显差异,后者每个处理盘中再生植株数为6–7个(表3A)。
此外,还测试了对植物再生具有普遍促进作用的植物激素生长素。与使用ddH2O处理的对照组相比,在接种前对新切取的叶片进行短暂生长素处理,显著提高了RUBY标记的再生效率(p = 0.00969,表2C)。当将外植体置于添加了285 µM吲哚-3-乙酸(IAA)的ddH2O中时,每处理平均获得6.67 ± 1.490个转化体,而无生长素处理组的平均再生率为2.00 ± 0.816。
立即再生的转基因系被指定为R1-T1代(图2),各个再生植株作为独立的株系。所有初始的R1-T1莲座状幼苗均表现出嵌合叶形式的RUBY表达,具有多种嵌合模式。最常见的情况是1-3片幼苗叶片表现出明显的嵌合现象,其中RUBY表达与非表达组织在中脉处分界。大多数一个月大的R1-T1幼苗保持嵌合表达(图3A),但也有少量幼苗表现出完全的RUBY表达。
从R1-T1实生苗叶片切段无性繁殖出的RUBY-色素嵌合扇区(图3B),在切除后2-4周内再生出完全呈RUBY或嵌合型的R1-T1莲座状植株(图3C)。一个月后,大多数R2-T1实生苗表现出主要为RUBY色素的叶片,部分植株显示少量未表达的嵌合区域(图3D,E)。
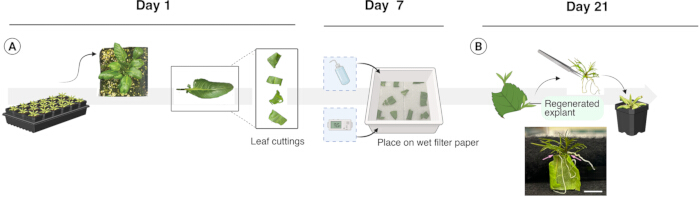
图1:营养繁殖方案及时间线。 代表性图像展示了用于再生无性莲座状植株的生产流程。(A)从成熟的母本植株上切取完整、健康、成熟的裂叶,并将其切成2-3段。(B)将外植体置于繁殖托盘中,并在指定条件下培养。3周后,将莲座状植株从外植体上切下并移栽至土壤培养基中。下方为仍附着于母叶切段(粉红色箭头所示)的再生莲座植株的实际照片。这些植株处于移栽的最佳阶段。比例尺:10 mm。请点击此处查看该图的放大版本。
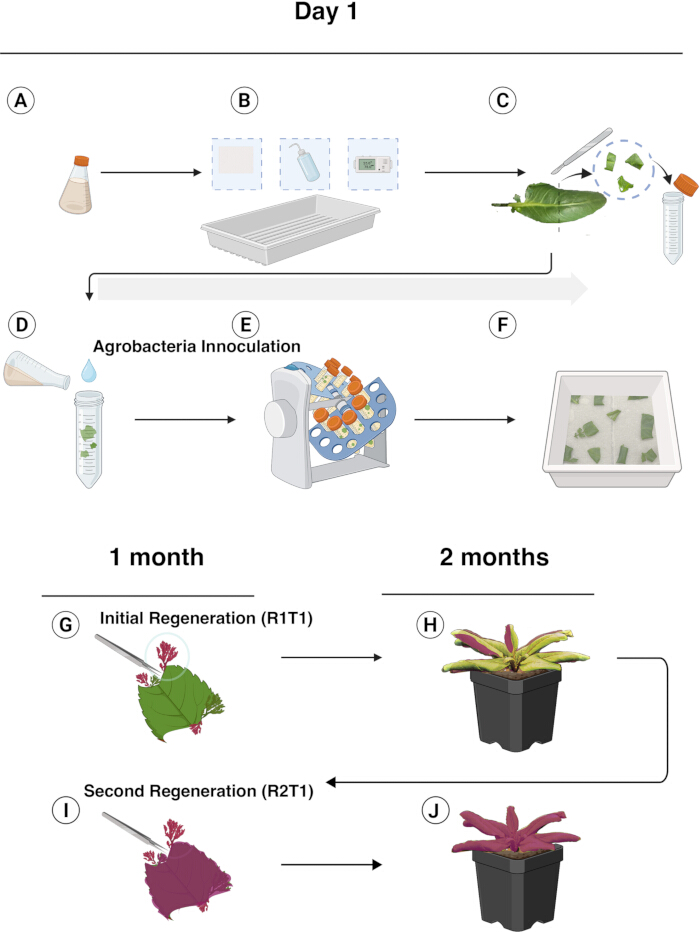
图2转化 R. aquatica 叶片扦插及表达转化子的再生 RUBY 转录本 转化过程及转化再生植株生产的图示概览。A获取细菌接种物。B) 准备一个装有无菌滤纸和水的繁殖托盘。C将叶片切割成外植体小片。D将外植体浸入接种物中。E) 在旋转混合器中以20 r/1 min振荡10分钟。F将饱和的外植体在培养盘中铺开,覆盖塑料罩,于黑暗条件下培养72小时。G,H1个月后,从完整转化再生植株上切除 农杆菌-暴露外植体并进行移植以获得成熟植株。I, J) 重复扩增步骤(G,H以获得近乎克隆的R2-T1代。 请点击此处以查看此图的放大版本。
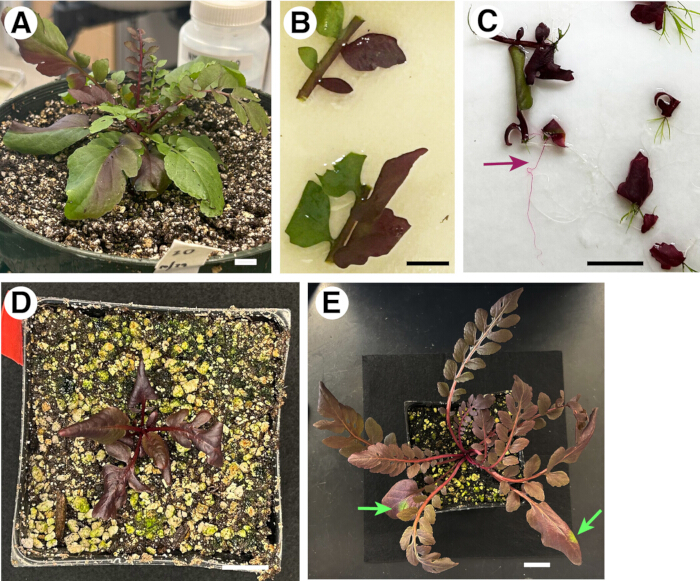
图3:RUBY 转基因株系的无性繁殖世代。(A)成熟的R1-T1幼苗,其叶片呈嵌合状并表达RUBY。比例尺:1 cm。(B)从(A)中所示3个月大的幼苗获取的20个外植体中的两个,刚放入增殖培养皿中。外植体在中脉处表现出分离的RUBY嵌合模式。比例尺:1 cm。(C)切除后一个月、移栽前再生的R2-T1莲座状植株,其RUBY表达程度各异。再生的RUBY阳性根(栗色箭头)。比例尺:2 cm。(D)移栽后一个月的R2-T1幼苗,表现出RUBY表达。比例尺:2 cm。(E)移栽三个月后的成熟R2-T1幼苗,表现出小区域嵌合(绿色箭头)。比例尺:2 cm。 请点击此处查看该图的放大版本。
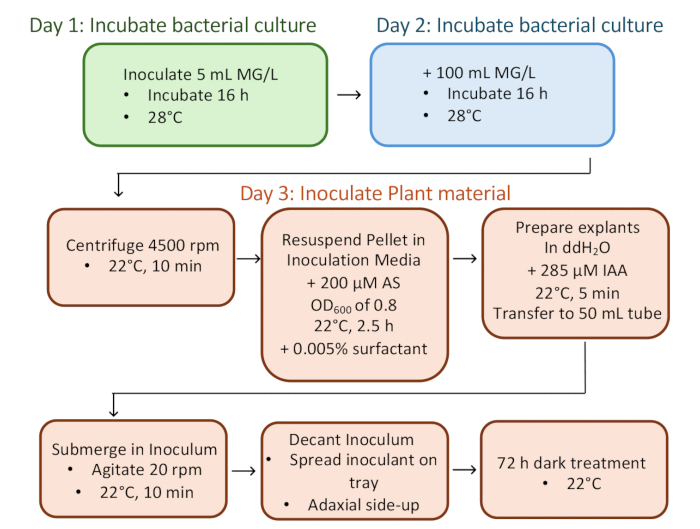
图 4:优化流程的流程图。请点击此处查看此图的放大版本。
表1:培养基配方 请点击此处下载该表格。
表2:四个优化参数对水生杜鹃(R. aquatica)转化效率的影响。 请点击此处下载该表格。
表3:接种物中乙酰丁香酮浓度对水生柔毛龙胆(R. aquatica)转化效率的影响。 请点击此处下载该表格。
讨论
本研究建立了一种简单、直接的基于再生的农杆菌介导的R. aquatica稳定转化方法,R. aquatica是一种十字花科的两栖植物,仅通过无性方式繁殖10,16。目前尚未建立针对无性繁殖两栖植物的完整转化流程,也未利用R. aquatica的实际可转化性结合可视化标记进行研究。值得注意的是,该流程无需繁琐且要求无菌条件的植物组织培养过程,也不需要专用的植物生长培养箱。因此,本实验方案可广泛应用于从科研实验室到课堂教学等多种实验环境。
在测试的不同接种和培养条件下,一些因素显著提高了转化效率。值得注意的是,略高浓度的乙酰丁香酮(AS)以及吲哚-3-乙酸(IAA)浓度对转化效率产生了积极影响(表1 和 表2)。AS 是一种酚类化合物,能够吸引农杆菌(Agrobacterium),已有研究表明其可提高拟南芥的植物转化效率17。植物激素生长素在植物细胞重编程过程中起核心作用。在创伤诱导的再生过程中,已观察到生长素相关基因表达迅速上升10。因此,可以推测在外植体接种过程中外源施加的生长素(IAA)可能提高再生效率。然而,在三次试验中观察到的再生植株数量并无显著差异(对照组为 57 ± 7.55,处理组为 59.67 ± 5.51)。因此,生长素处理可能更倾向于促进转化过程本身,而非直接促进再生。
一种非离子型表面活性剂,烷氧基化三硅烷(称为 Silwet L-77),可显著提高拟南芥的转化效率 通过 花浸法3,因此在植物生物学研究领域被广泛使用。在添加0.005% Silwet L-77(推荐用于花序浸润法的浓度)的外植体中,观察到的植物胁迫极小。当该剂量加倍至0.01%时, R. aquatica 叶片外植体严重受损,导致几乎无法获得转化子(表 2B)。在拟南芥花序浸染过程中,使用表面活性剂可降低接种液的表面张力,从而增强其对花芽的渗透能力。相比之下,作为一种两栖植物物种, R. aquatica 发育出光滑的叶片,无毛状体或厚角质层5表面活性剂增加导致叶片组织受损,表明在非绒毛状叶片组织中,应优先考虑除表面活性剂之外的其他因素以提高转化效率。表面活性剂更适用于具有绒毛表型的组织,因其有助于试剂渗透。在整合所有测试参数后,提供了一个包含最优条件的流程图图4).
利用视觉标记物, RUBY在此转化流程中起着关键作用。 RUBY 是一种合成报告基因,编码三个编码基因(CYP76AD1,DODA,以及合成亮红色色素甜菜红素的糖基转移酶)11。当 RUBY 在R1-T1再生植株中观察到表达,表现为红色扇区,表明它们极有可能是嵌合体(图2 和 图3)。先前的一项研究发现 R. aquatica 再生起源于叶片切段的维管形成层10值得注意的是,R1-T1 再生植株偶尔会在中脉处表现出嵌合边界,叶片一半为红色,另一半为绿色(图3A,B)。从头再生成 RUBY 部分区域偶尔会产生根部呈红色的全株红色植株图3C,深红色箭头),随后生长为均匀红色的 R2-T1 植株(图3D)。未观察到不良反应 RUBY 过表达对 R. aquatica 观察到生长和发育情况(图3)。支持这一结论的是,在R1-T1莲座叶的RUBY嵌合区域中,未观察到叶片大小和形状的明显差异(例如, 图3B有可能任何由强组成型启动子驱动的外源基因都会干扰植物的正常生长和生理反应。
在某些情况下,这些“近克隆型”RUBY 植株出现了绿色扇区(图3E,绿色箭头),提示可能发生回复突变或转基因沉默。这表明,在未来进行分子和机制研究时,拥有如 RUBY 这样的可视标记对于目标基因的异位表达或沉默(例如RNA干扰)至关重要。研究人员可将目标转基因引入 RUBY 载体中,并在红色的 RUBY 扇区中观察其表型。综上所述,通过利用叶片切段诱导的直接重编程以及非侵入性可视标记,本研究优化了一种简单高效的转化流程,适用于以营养繁殖为主的十字花科植物 R. aquatica。尽管本方案未涉及转化后的 R. aquatica 再生确切来源的研究,但未来对该问题的深入理解可能为植物细胞重编程机制提供重要线索。
披露
我们声明不存在利益冲突。
致谢
我们感谢Yunde Zhao教授在改进现有载体设计方面提供的建议 RUBY 质粒;Shuka Ikematsu 博士和 Seisuke Kimura 教授在建议方面提供的帮助 R. aquatica 处理;感谢伊西·高桥博士在图形制作方面的帮助。本工作由约翰逊提供的启动资金和捐赠基金支持 & 德克萨斯大学奥斯汀分校植物细胞生物学约翰逊百年讲席教授,以及霍华德·休斯医学研究所对 K.U.T. 的资助 图1 和 图2 由 P.E.G. 在 BioRender 中创建,并由 K.U.T. 在 Adobe Illustrator 中修改。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1000 µL 低吸附LTS滤芯吸头 | Rainin | 30389213 | |
| 乙酰丁香酮 | Sigma-Aldrich | D134406-1G | |
| 酵母提取物,技术级 | Fisher Scientific | DF0886-17-0 | |
| BD Bacto 琼脂 | Fisher Scientific | 214030 | |
| BD Difco LB 肉汤,Miller | Midland Scientific | DIFCO 244610 | |
| BD Bacto 脱水胰蛋白胨 | Fisher Scientific | DF0123-17-3 | |
| 生物素冻干粉 | Sigma-Aldrich | B4501-100MG | |
| PermaNest 托盘用透明圆顶盖 | 种植者溶液 | GD221 | |
| 透明塑料薄膜 | 托马斯科学公司 | 22-305654 | |
| 粗蛭石 | Bectine | ||
| 无水磷酸氢二钾 | Sigma-Aldrich | 105109 | |
| 一次性培养皿 100 × 15 mm | VWR International | 25384-342 | |
| D-甘露醇 | Sigma-Aldrich | M9546-250G | |
| 乙醇,200 proof | Fisher Scientific | 04-355-720 | |
| Falcon 50 mL 圆锥形离心管 | Fisher Scientific | 14-432-22 | |
| 折叠的纸巾 9.3” × 10.5” | Kimberly-Clark | 2920 | |
| GENESYS 30 可见光分光光度计 | 赛默飞世尔科技 | 840-277000 | |
| 庆大霉素溶液 | Sigma-Aldrich | G1272-100ML | |
| L-谷氨酸单钠盐水合物 | Sigma-Aldrich | G1626-100G | |
| 氯化镁 | Sigma-Aldrich | M8266-100G | |
| 七水硫酸镁 | Sigma-Aldrich | M9546-250G | |
| MaxQ 6000 恒温振荡培养箱 | 赛默飞世尔科技 | SHKE6000 | |
| MES水合物 | Sigma-Aldrich | M8250-100G | |
| Murashige和Skoog基础盐混合物(MS),粉末 | Sigma-Aldrich | M5524-50L | |
| MX-RL-pro:旋转管式旋转混合仪 | Scilogex | 824222019999 | |
| myo-肌醇 | Sigma-Aldrich | I7508-100G | |
| 珀西瓦尔生长箱 | Percival | AR36L3 | |
| 珍珠岩植物种植土添加剂 | PVP Industries | PVP105408 | |
| Perma-Nest 植物培养托盘 8''x12'' | VWR International | 470150-476 | |
| pH计 Seven Compact 5220 | Mettler Toledo | 30019028 | |
| 保护性手术刀 | Fisher Scientific | 02-688-79 | |
| 利福平 | Sigma-Aldrich | R3501-5G | |
| 智能缓释肥料植物营养剂 | Osmocote | B0071CZTBA | |
| 氯化钠 | Fisher Scientific | S271-3 | |
| 盐酸壮观霉素五水合物 | Sigma-Aldrich | S4014-5G | |
| 喷雾瓶配泵式雾化器 | 托马斯科学公司 | 1141V43 | |
| 方格 3.5" GAGE 培养皿 | Growers Nursery Supply Inc. | 03GA-0350S | |
| 蔗糖 | Sigma-Aldrich | S0389-5KG | |
| Sunshine #4 专业栽培混合土 | Sun GRO 园艺 | 1341CFL0028P S | |
| 表面活性剂-Silwet L-77 | Fisher Scientific | NC1791615 | |
| 真空干燥器 | 实验室用品 depot | 55207 | |
| 水溶性通用植物营养液 | Miracle-Gro | 160101 |
参考文献
- Gelvin, S. B. Agrobacterium-mediated plant transformation: the biology behind the "gene-jockeying" tool. Microbiol Mol Biol Rev. 67 (1), 16-37 (2003).
- Hellens, R., Mullineaux, P., Klee, H. Technical Focus: A guide to Agrobacterium binary Ti vectors. Trends Plant Sci. 5 (10), 446-451 (2000).
- Clough, S. J., Bent, A. F. Floral dip: A simplified method for Agrobacterium-mediated transformation of Arabidopsis thaliana. Plant J. 16 (6), 735-743 (1998).
- Zhang, X., Henriques, R., Lin, S. S., Niu, Q. W., Chua, N. H. Agrobacterium-mediated transformation of Arabidopsis thaliana using the floral dip method. Nat Protoc. 1 (2), 641-646 (2006).
- Koga, H., Ikematsu, S., Kimura, S. Diving into the water: Amphibious plants as a model for investigating plant adaptations to aquatic environments. Annu Rev Plant Biol. 75 (1), 579-604 (2024).
- Nakayama, H., et al. Regulation of the KNOX-GA gene module induces heterophyllic alteration in North American lake cress. Plant Cell. 26 (12), 4733-4748 (2014).
- Ikematsu, S., et al. Rewiring of hormones and light response pathways underlies the inhibition of stomatal development in an amphibious plant Rorippa aquatica underwater. Curr Biol. 33 (3), 543-556.e4 (2023).
- Sakamoto, T., et al. A chromosome-level genome assembly for the amphibious plant Rorippa aquatica reveals its allotetraploid origin and mechanisms of heterophylly upon submergence. Commun Biol. 7 (1), 431(2024).
- Flora of North America: Volume 7: Magnoliophyta: Dilleniidae, Part 2. , Oxford University Press Inc. 493-506 (2010).
- Amano, R., et al. Molecular basis for natural vegetative propagation via regeneration in North American Lake Cress, Rorippa aquatica (Brassicaceae). Plant Cell Physiol. 61 (2), 353-369 (2020).
- He, Y., Zhang, T., Sun, H., Zhan, H., Zhao, Y. A reporter for noninvasively monitoring gene expression and plant transformation. Hortic Res. 7 (1), 152(2020).
- Hartig, F. DHARMa: Residual Diagnostics for Hierarchical (Multi-Level / Mixed) Regression Models. R package version 0.4.7. , (2024).
- Lenth, R. emmeans: Estimated Marginal Means, aka Least-Squares. R package version 1.10.7. , (2025).
- McGillycuddy, M., Bolker, B. M., Popovic, G., Warton, D. I. Parsimoniously fitting large multivariate random effects in glmmTMB. J Stat Software. 112 (1), 1-19 (2025).
- Bates, D., Mächler, M., Bolker, B. M., Walker, S. C. Fitting linear mixed-effects models using lme4. J Stat Software. 67 (1), 1-48 (2015).
- Nakayama, H., Sinha, N. R., Kimura, S. How do plants and phytohormones accomplish heterophylly, leaf phenotypic plasticity, in response to environmental cues. Front Plant Sci. 8, 1717(2017).
- Sheikholeslam, S. N., Weeks, D. P. Acetosyringone promotes high efficiency transformation of Arabidopsis thaliana explants by Agrobacterium tumefaciens. Plant Mol Biol. 8 (4), 291-298 (1987).
重印与许可
