我们提出了一种简单、有效且可重复的实验方案 农杆菌介导的转化 Phytophthora palmivora 同样适用于 P. capsici
本文内容
摘要
摘要
疫霉属 是一个卵菌属,包含多种具有破坏性的植物病原体,其中就包括宿主范围广泛的物种 P. palmivora功能基因组学 疫霉属 受限于高效且易于实施的转化方法的匮乏。在现有的各种方法中, 农杆菌介导的转化(AMT)具有显著优势,因其仅需最少的专用设备,且通常可获得带有单拷贝基因插入的稳定转化子。目前大多数用于真菌和卵菌转化的AMT方案均采用基本培养基(MM)盐成分 农杆菌 诱导和共培养培养基。制备这些培养基通常需要配制并混合多种储备液,其中一些储备液含有多种不同浓度的组分。该过程耗时且容易出错,从而导致转化效果不稳定。本文介绍一种简化、简便且可重复的AMT实验方案 P. palmivora 使用市售的Murashige和Skoog(MS)基本培养基来制备 农杆菌 诱导和共培养培养基。该方案也已成功应用于转化 P. capsici 并可应用于其他 疫霉属 spp. 也是如此。
引言
Phytophthora 是卵菌纲(oomycetes)中的一个属,包含世界上许多最具破坏性的植物病原体,造成严重的经济损失1,2。其中,Phytophthora palmivora 是一种宿主范围广泛的病原体,可侵染多种具有重要经济价值的作物,包括可可和木瓜3。它是引起可可黑荚病的最主要病原,而可可是一种热带多年生乔木,其产物是价值数十亿美元的巧克力工业的主要原料4,5,6。深入了解这种破坏性病原体的分子致病机制,对于设计新型且有效的病害防控策略至关重要,而遗传转化是开展此类研究必不可少的工具。
已开发出多种方法用于转化 疫霉属 微粒轰击法,包括 spp.7,聚乙二醇和二氯化钙(PEG/CaCl₂)2)-介导的原生质体转化8,9,10,11,游动孢子电穿孔12,13,14,以及 农杆菌介导的转化(AMT)15,16在这些方法中,AMT 具有关键优势,因其通常可实现单拷贝基因整合15,16 且无需特殊设备,操作相对简便。
先前已建立一种利用农杆菌介导转化法(AMT)高效转化P. palmivora的实验方案16。采用该方法,我们已成功将多个载体构建体转化至P. palmivora中17,18。该方法采用基于最小培养基(MM)盐成分的Agrobacterium诱导及共培养培养基,此类培养基常用于真菌和卵菌的转化实验15,16,19。尽管基于MM的转化方案已被证实可有效获得转化子,但配制多种母液并混合制备培养基的过程可能耗时较长,且容易引入操作误差。
本文介绍了一种通过使用市售的Murashige和Skoog(MS)基础培养基替代Agrobacterium诱导和共培养培养基中基于MM盐的组分,从而显著简化的P. palmivora遗传转化方法16。该方法无需配制多种化学母液,使操作更省时且高度可重复。此外,与先前报道的方法相比16,该方法似乎具有更高的转化效率,并且同样适用于P. capsici。
方案
1. 转化所需储备液、培养基及其他材料的制备
- 抗生素储备液
- 制备卡那霉素(50 mg/mL)、G418(15 mg/mL)和头孢噻肟(100 mg/mL)的储备液:将适量抗生素溶解于水中,过滤除菌,分装为1 mL等份,于-20 °C保存。
- 制备利福平储备液(15 mg/mL):将适量利福平溶解于DMSO中,分装为每份1 mL,用铝箔包裹,于-20 °C保存。
注意:使用由与DMSO兼容的材料(如尼龙或聚四氟乙烯(特氟龙))制成的注射器滤器,对在DMSO中配制的化学溶液进行过滤除菌。
- 用于培养基 农杆菌 生长
- Luria-Bertani (LB) 液体培养基:配制 250 mL 培养基时,将 6.25 g LB 粉末加入 250 mL 水中,溶液经高压灭菌后,于室温(RT)保存。
- LB 琼脂培养基:配制 250 mL 培养基时,将 6.25 g LB 粉末和 3.75 g 琼脂加入 250 mL 水中,溶液经高压灭菌后室温保存。制板前向融化的 LB 琼脂中加入适当的抗生素。含抗生素的平板储存于 4 °C。
- 用于培养基 P. palmivora 生长与转化
- 10% V8 琼脂:配制 500 mL 时,将 50 mL 原味 100% V8 蔬菜汁加入 450 mL 水中,再加入 0.5 g CaCO₃3 向悬浮液中加入并搅拌均匀。将溶液高压灭菌后倒入培养皿中。
注意:必要时添加适当的抗生素。将添加了抗生素的平板置于 4 °C 保存。 - 半强度Murashige和Skoog(½ MS)液体培养基:将2.15 g Murashige和Skoog基本培养基(MS)加入950 mL水中,用1 N KOH调节pH至5.6,加水定容至1 L。直接用于配制½ MS琼脂培养基(步骤1.3.3),剩余的½ MS液体培养基经高压灭菌后室温保存。
- ½MS 琼脂用于 农杆菌- 游动孢子共培养琼脂(AZCA):制备600 mL AZCA时,将步骤1.3.2中的567 mL ½ MS液体与9 g琼脂混合。溶液经高压灭菌后,室温保存。
- 50% 甘油:将 50 mL 甘油与 50 mL 水混合,溶液经高压灭菌后室温保存。
- 1 M MES(pH 5.6):配制200 mL溶液,将39.048 g MES水合物加入160 mL水中,用NaOH溶液调节pH至5.6。然后加水定容至200 mL,过滤除菌,避光室温保存。
注意:随着pH值升高,MES会逐渐溶解。最初使用10 N NaOH将pH调至接近5.6,此时粉末几乎完全溶解。随后,使用1 N NaOH将pH精确调至5.6。 - 20% 葡萄糖:将10 g葡萄糖溶于40 mL水中,加水定容至50 mL,过滤除菌,室温保存。
- 200 mM 乙酰丁香酮(AS):将 40 mg 4'-羟基-3',5'-二甲氧基苯乙酮溶于 1 mL DMSO(见 1.1.2 项下的注释)中,用铝箔包裹溶液。在转化当天新鲜配制。
- 农杆菌 诱导培养基(AIM):在无菌50 mL离心管中,向37.6 mL步骤1.3.2中配制的½ MS液体培养基(pH 5.6)中加入400 µL 50%甘油、400 µL 20%葡萄糖、1.6 mL 1 M MES(pH 5.6)和40 µL 200 mM乙酰丁香酮(AS),定容至40 mL。充分混匀溶液,用铝箔包裹离心管,数小时内新鲜使用。
- 农杆菌-游动孢子共培养琼脂(AZCA):制备600 mL琼脂时,向已灭菌并融化的567 mL ½ MS琼脂(pH 5.6,按步骤1.3.3制备)中加入6 mL 50%甘油、3 mL 20%葡萄糖、24 mL 1 M MES(pH 5.6)和600 µL 200 mM乙酰丁香酮(AS)。将溶液倒入培养皿中,并用黑色布料覆盖以避光。
注意:当 ½ MS 琼脂融化后温度降至 55–60 °C 时,加入化学溶液(步骤 1.3.9)。由于乙酰丁香酮(AS)对光敏感,在步骤 1.3.7–1.3.9 期间应关闭超净工作台的照明。这三个步骤应在转化当天完成。 - Plich 琼脂:配制 1 L 琼脂培养基时,将 0.5 g KH 溶于 950 mL 水中2PO4,0.25 g MgSO₄4·7H2O、1 g L-天冬酰胺、5 g 葡萄糖、0.5 g 酵母提取物、10 µL 硫胺素(100 mg/mL 水溶液,4 °C 保存)、10 mg β-谷固醇(使用前溶于 3 mL 乙醇中)。搅拌溶液至所有成分完全溶解,加水定容至 1 L。将溶液分装为每份 500 mL,每 500 mL 加入 7.5 g 琼脂。高压灭菌后,待温度降至 55 °C 时加入适量抗生素,然后倒入培养皿中。
- Hybond N+ 膜:将带有保护膜的 Hybond N+ 膜剪成 5 cm × 6 cm 的片状,用铝箔纸包裹后进行高压灭菌。将灭菌后的膜置于 AZCA 培养基上时,需使用无菌镊子操作,并丢弃保护膜。
- 10% V8 琼脂:配制 500 mL 时,将 50 mL 原味 100% V8 蔬菜汁加入 450 mL 水中,再加入 0.5 g CaCO₃3 向悬浮液中加入并搅拌均匀。将溶液高压灭菌后倒入培养皿中。
2. 培养棕榈疫霉菌(P. palmivora)
- 转化前7至8天,在新制备的10% V8琼脂平板上接种P. palmivora 番木瓜 分离株P116 ,方法是将先前培养的Phytophthora菌种(或保存菌种)的一个琼脂块置于培养皿中央。
注意:为获得更高浓度的游动孢子,必须使用新配制的未澄清10% V8琼脂。 - 将平板置于25 °C、12小时光照/12小时黑暗的条件下培养7–8天,直至进行转化。
3. 农杆菌(Agrobacterium tumefaciens)的制备
- 转化前三天,划线接种 A. tumefaciens 携带 pCB301TOR-GFP 的菌株 EHA10516 在添加利福平(15 µg/mL)和卡那霉素(50 µg/mL)的LB琼脂平板上培养。于28 °C培养2天。
注意:初始制备的 农杆菌 (步骤3.1)可在转化前一周进行,平板在2天培养后可于4 °C保存。 - 转化前一天,取少量 农杆菌 用无菌的1.5 mL离心管底部平坦处将细胞涂布于新的含抗生素的LB琼脂平板(如步骤3.1所述)。为便于涂布,可在LB琼脂平板中央加入20 µL LB液体培养基,将菌液与LB培养基混合后均匀涂布至整个平板。于28 °C培养过夜,约16–18 h。
- 用1 mL移液枪头刮取过夜培养的细胞,并重悬于1 mL中 农杆菌 诱导培养基(AIM)中,通过移液吹打混匀。将细胞稀释至OD600 = 0.4 的 AIM 加入用锡箔纸包裹的无菌 50 mL 管中。至少制备 5 mL 用于与 P. palmivora 游动孢子(步骤 5.1)。
注意:OD600 范围 从0.1到0.8的OD值可实现成功的转化。600 = 0.4 通常被采用,因为在此浓度下,以最小培养基(MM)盐为基础时可获得最高的转化效率 农杆菌 诱导培养基和共培养基用于转化16. - 在室温避光条件下,将细菌置于平台摇床中轻柔振荡(约70 rpm)孵育1.5–2小时。
注意:建议在步骤 3.3 期间关闭通风橱灯,并在孵育过程中(步骤 3.4)松开 50 mL 管的管盖。
4. 释放游动孢子
- 在 Agrobacterium tumefaciens孵育1小时后(步骤3.4),用10 mL预冷至4°C的水浸没7-8天大的P. palmivora培养皿,用移液器枪头轻轻敲击以去除培养基表面的气泡,将培养皿在4°C下孵育15分钟,随后在室温光照条件下孵育15分钟。
- 用移液器小心地将释放出的游动孢子(约7-8 mL)转移至一个15 mL无菌离心管中,注意不要扰动菌丝和孢子囊。
- 为测定游动孢子浓度,取部分游动孢子悬浮液(例如20 µL)转移至1.5 mL微量离心管中,并加入180 µL水稀释10倍(20 µL游动孢子加180 µL H2O)。涡旋震荡1分钟使游动孢子休眠形成休止孢,便于计数,然后使用血细胞计数板在显微镜下计数游动孢子数量。将计得数值乘以10,得到步骤4.2中制备的游动孢子悬浮液的浓度。
注意:游动孢子浓度用于计算转化效率。我们通常使用的浓度范围为每毫升1.5 × 10⁶至5 × 10⁶个游动孢子,此范围内可获得成功的转化效果。
5. 共同孵育 农杆菌 和游动孢子
- 将5 mL农杆菌(Agrobacterium ,按步骤3.4制备)加入到5 mL游动孢子悬液(按步骤4.2制备)中,置于用铝箔包裹的无菌50 mL离心管内。轻轻混匀后,在室温下避光孵育2小时。孵育期间保持管盖松动,切勿振荡。
- 在共孵育期间(步骤5.1),准备AZCA平板(步骤1.3.9)。待培养基凝固后,将一片已灭菌的Hybond N+膜(按步骤1.3.11制备)放置于每块AZCA平板上,并将平板置于暗处保存。
- 农杆菌(Agrobacterium )与游动孢子共孵育2小时后(步骤5.1),用移液器枪头将300 µL混合液均匀涂布于每张置于AZCA平板表面的Hybond N+膜上(步骤5.2),注意留出液滴边缘,避免液体接触膜的边缘。
- 将培养皿敞口置于生物安全柜中,使混合液自然风干约10分钟。一旦膜表面的液体停止流动,立即盖上皿盖。
注意:在步骤5.1–5.4期间,应关闭安全柜照明灯。若确有必要,仅可在向膜上加样和涂布混合液时(步骤5.3)开启光源。 - 风干完成后,将平板置于25 °C条件下避光孵育2天。
6. G418抗性转化子的筛选
- 共孵育 48 小时后(步骤 5.5),使用灭菌镊子将 Hybond N+ 膜倒置转移至添加了 G418(30 µg/mL)和头孢噻肟(100 µg/mL)的 Plich 琼脂平板上。放置膜时,避免在培养基表面拖动。
注意:不同 P. palmivora 分离株对 G418 的敏感性存在差异,因此必须确定适用于各分离株转化子筛选的 G418 浓度。为此,将直径为 0.5 cm 的菌丝块置于一系列含不同浓度 G418(从 0 开始,以 5 µg/mL 为梯度递增)的 Plich 琼脂平板中央,每种浓度设三个重复。于 25 °C 培养 7 天,观察并确定完全抑制该 Phytophthora 分离株生长的最低 G418 浓度,并用于后续转化子的筛选。 - 使用 1.5 mL 微离心管的平底轻轻按压并滑过膜表面,确保膜与培养基紧密接触。观察平板底部,检查膜与培养基之间是否存在气泡。如有气泡,使用同一微离心管的平底轻轻挤压排出。
- 将平板置于 25 °C、12 小时光照/12 小时黑暗的条件下培养 2–3 天。
- 培养 3 天后,用无菌镊子移除膜,并继续在相同条件下培养平板。若平板上已出现可见菌落,可在 2 天后提前移除膜。
注意:转化子通常在移膜后 1–3 天内出现,但部分菌落可能延迟出现。为获得更多转化子,建议在移除膜后继续观察平板约一周时间。 - 将转化子转移至含相同浓度 G418 或降低 30% 浓度的 10% V8 琼脂平板上。
结果
通过遵循本方案,我们开展了两项独立实验以进行转化 P. palmivora 使用 A. tumefaciens 携带 pCB301TOR-GFP 的 EHA10516。正如预期,将游动孢子与 农杆菌 在添加了30 μg/mL G418的Plich琼脂平板上产生了G418抗性菌落,而在未感染的对照平板上未观察到菌落 农杆菌 (图1A)。每10个G418抗性转化子的数量7 这两个实验产生的游动孢子数量分别为55和50(表1),几乎是此前采用早期方案所获得最高数值(27 ± 5)的两倍16.
通过两种方法验证了真正的转化子:首先,使用荧光显微镜观察GFP荧光;其次,利用Taq 2X Master Mix(NEB)和引物对EGFP-F2(5'- GACGTAAACGGCCACAAGTTC-3')与EGFP-R2(5'-GGGTGCTCAGGTAGTGGTTG-3')对EGFP基因中一段550 bp的片段进行PCR扩增。在实验(Exp)1中,18个G418抗性转化子中有15个,在实验2中,21个转化子中有17个表现出GFP荧光(表1,图1B)。对于两个实验中均未显示荧光的7个G418抗性转化子,其中有3个通过PCR确认为真正的转化子(图1C)。总体而言,真正转化子的比例估计为90%。
此外,我们还成功转化了一个 P. capsici 使用南瓜分离株 PC2024-14sz A. tumefaciens EHA105 菌株携带 pCB301TOR-GFP,按照标准方案进行操作,仅对游动孢子悬浮液的制备步骤进行了微小修改(在培养7天后用冷水浸泡,4 °C孵育时间调整) P. capsici 预冷培养板的孵育时间延长至30分钟。每10个细胞中G418(30 µg/mL)抗性转化子的数量7 单次实验获得的转化子数量为13个。在荧光显微镜下观察到9个转化子,均发出荧光。补充文件 1),表明它们是真正的转化子。
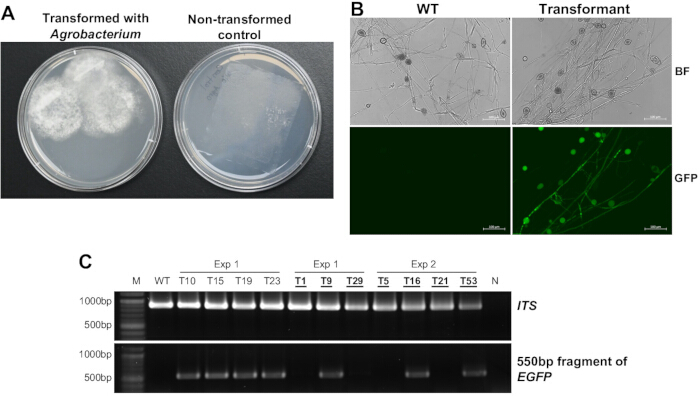
图1:利用携带pCB301TOR-GFP的A. tumefaciens EHA105转化P. palmivora。 (A) 在添加30 µg/mL G418的Plich琼脂培养基上生长的G418抗性P. palmivora转化子的形态。(B) 在荧光显微镜下检测代表性转化子及P. palmivora野生型(WT)菌株中的GFP表达。图像在明场(BF)和GFP荧光通道下拍摄。(C) 对4个具有可检测GFP荧光的转化子和7个无GFP荧光的转化子进行EGFP的PCR扩增。使用通用引物对ITS4/ITS520扩增内转录间隔区(ITS)以检测DNA完整性。无GFP荧光的转化子以粗体加下划线文本标出。缩写:M = NEB 100 bp DNA Marker;WT = 野生型P. palmivora P1菌株;N = 阴性对照PCR,以H2O作为模板。请点击此处查看该图的放大版本。
| 实验 | 农杆菌的OD600 | 游动孢子浓度(/mL) | 游动孢子体积(mL) | G418抗性转化子数量 | 可检测到GFP信号的转化子数量(检测到/观察到) | 每107个游动孢子中的G418抗性转化子数量 |
| 1 | 0.4 | 1.8 x 10⁶ | 4.3 | 43 | 15/18 | 55 |
| 2 | 0.4 | 2.9 x 10⁶ | 4.6 | 67 | 17/21 | 50 |
表1:效率 农杆菌介导的转化 P. palmivora 使用 A. tumefaciens 携带 pCB301TOR-GFP 的 EHA105
补充文件1:野生型(WT)在荧光显微镜下的GFP表达 P. capsici 以及使用代表性转化子生成的 A. tumefaciens 携带 pCB301TOR-GFP 的 EHA105在明场(BF)和GFP荧光通道下采集图像。 请点击此处下载该文件。
讨论
本方案采用半强度的Murashige和Skoog基础培养基(½ MS)替代常用于最小培养基(MM)盐类的组分 农杆菌 卵菌和真菌转化用的诱导与共培养培养基。制备基于MM盐的培养基需要使用多种单独的化学试剂配制多种储备液,然后将这些溶液混合。19½ MS 培养基也含有多种化学成分;然而,由于 MS 培养基可作为预混粉末从商业途径广泛获得,培养基的配制简化为将粉末溶于水中。该改进显著缩短了培养基制备时间,并最大限度减少了人为误差的可能性。此外,该方案提高了转化效率,与先前描述的 AMT 方法相比,可获得更多的转化子。16它也适用于转化 P. capsici 并且可能适用于其他 疫霉属 物种。进一步支持其潜在的广泛适用性,基于MS的培养基此前已被用于共培养 Agrobacterium tumefaciens 表达的菌株 在VIP1(拟南芥 VirE2 相互作用蛋白 1)和 P. infestans 游动孢子,实现高效转化 P. infestans21.
需要注意的是,本实验方案可能会产生较低比例的假阳性结果。在通过GFP荧光观察或PCR检测的39个G418抗性转化子中,有四个既未显示荧光,也未扩增出目标条带。 EGFP (表1, 图1C)。由于T-DNA在整合过程中发生部分插入 农杆菌介导的转化并不罕见22,23,可能只有包含T-DNA的部分 NPTII 来自质粒pCB301TOR-GFP的基因16 被整合到 P. palmivora 基因组。或者,假阳性结果可能源于膜与筛选培养基之间的接触不充分,导致细胞逃逸G418筛选。因此,确保膜与培养基保持完全接触(步骤6.2)至关重要。
该方案可进一步简化。例如,MES在 农杆菌 诱导培养基(AIM)和 农杆菌-zoospore 共培养琼脂(AZCA)可能被省略。MES 常用于生物化学和分子生物学实验中作为缓冲剂以维持稳定的 pH;然而,配制 pH 5.6 的 1 M MES 储存液耗时较长且增加成本。在甜罗勒等植物的 AMT 中24 和木瓜25,类似的基于质谱的 Agobacterium 未使用含MES的诱导和共培养培养基,表明MES可能对……并非必需 P. palmivora 转化。还需进一步实验验证省略 MES 是否会影响转化效率。
总体而言,这一简化的实验方案为P. palmivora、P. capsici以及可能的其他卵菌提供了实用且易于操作的常规遗传操作平台。该方案支持广泛的生物学基础研究,其中部分研究具有转化应用潜力,包括对病原体进行荧光标记以追踪感染动态、对蛋白质进行标记以研究其亚细胞定位,以及通过靶向改变基因表达或蛋白质编码序列进行功能分析。当与基于CRISPR的基因组编辑技术结合时,该方案有望加速解析这些破坏性病原体的致病机制并鉴定关键的毒力因子。由此获得的研究成果将进一步推动基于作用机制的新型病害防控策略的开发。
披露
作者声明无利益冲突。
致谢
本研究由美国国家科学基金会(NSF 资助编号 2418799)和美国国家食品与农业研究所(NIFA 资助编号 2023-67013-42262)提供支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | VWR | 525-1126 | |
| 4'-羟基-3',5'-二甲氧基苯乙酮 | TCI | D2666 | 乙酰丁香酮(AS) |
| 50 mL 管 | Greiner Bio-one | 227261 | |
| 无水乙醇 | Fisher BioReagents | BP28184 | |
| 琼脂 | Fisher BioReagents | BP1423-500 | |
| 铝箔 | |||
| Hybond-N+ 膜(30 cm × 3 m) | Cytiva | RPN303B | |
| 碳酸钙 | Sigma-Aldrich | 239216-500G | CaCO3 |
| 头孢噻肟钠盐 | Thermo Scientific Chemicals | AAJ6269006 | |
| D-(+)-葡萄糖 | Sigma-Aldrich | G8270-1KG | |
| DNeasy PowerLyzer 微生物试剂盒 | Qiagen | 12255-50 | |
| 镊子 | |||
| 荧光显微镜 | Zeiss | 配备滤光片组38 HE的ZEISS Axioscope 5荧光显微镜 | |
| G418硫酸盐 | Thermo Scientific Chemicals | AC329400010 | |
| 甘油 | Sigma-Aldrich | 911046-1L | |
| 血细胞计数板(Bright-Line) | Hausser Scientific | ||
| 硫酸卡那霉素 | Santa Cruz Biotechnology | sc-257635 | |
| L-天冬酰胺(无水) | MP Biomedicals | ICN10079425 | |
| LB肉汤,Miller配方 | Fisher BioReagents | BP1426-2 | |
| 七水合硫酸镁 | Sigma-Aldrich | 63138-250G | MgSO4·7H2O |
| MES水合物 | Sigma-Aldrich | M2933-100G | |
| Murashige和Skoog基础培养基 | Sigma-Aldrich | M5519-50L | |
| 培养皿(100 mm × 15 mm) | VWR | 25384-342 | |
| 磷酸二氢钾 | Sigma-Aldrich | 1370391000 | KH2PO4 |
| 利福平 | Santa Cruz Biotechnology | sc-200910 | |
| Taq 2X预混液 | NEB | M0270L | |
| 盐酸硫胺素 | Sigma-Aldrich | T4625-5G | |
| 紫外-可见分光光度计 | Fisher Scientific | 14-385-355 | |
| V8原味100%蔬菜汁 | Campbell Soup Company | ||
| 涡旋振荡器 | Fisher Scientific | 14-955-163 | |
| 水 | 分子生物学级,使用Milli-Q纯水系统纯化 | ||
| 酵母提取物 | ACROS | 611805000 | 目前可通过Thermo Scientific Chemicals购买 |
| β-谷甾醇 | Sigma-Aldrich | 85451-100G |
参考文献
- Kamoun, S., et al. The top 10 oomycete pathogens in molecular plant pathology. Mol Plant Pathol. 16 (4), 413-434 (2015).
- Jones, J. D., Staskawicz, B. J., Dangl, J. L. The plant immune system: From discovery to deployment. Cell. 187 (9), 2095-2116 (2024).
- Tocafundo, F., et al. Direct and cross-pathogenicity of Phytophthora palmivora against cacao, papaya, and peach palm. Trop Plant Pathol. 46 (6), 664-673 (2021).
- Morales-Cruz, A., et al. Independent whole-genome duplications define the architecture of the genomes of the devastating West African cacao black pod pathogen Phytophthora megakarya and its close relative Phytophthora palmivora. G3 (Bethesda). 10 (7), 2241-2255 (2020).
- Ali, S., et al. PCR-based identification of cacao black pod causal agents and identification of biological factors possibly contributing to Phytophthora megakarya's field dominance in West Africa. Plant Pathol. 65 (7), 1095-1108 (2016).
- Marelli, J. -P., et al. Chocolate under threat from old and new cacao diseases. Phytopathology. 109 (8), 1331-1343 (2019).
- Cvitanich, C., Judelson, H. S. Stable transformation of the oomycete, Phytophthora infestans, using microprojectile bombardment. Curr Genet. 42 (4), 228-235 (2003).
- Judelson, H. S., Tyler, B. M., Michelmore, R. W. Transformation of the oomycete pathogen, Phytophthora infestans. Mol Plant Microbe Interact. 4 (6), 602-607 (1991).
- Wang, W., et al. an oxathiapiprolin-resistance gene, functions as a novel selection marker for Phytophthora transformation and CRISPR/Cas9 mediated genome editing. Front Microbiol. 10, 2402(2019).
- Dai, T., et al. An improved transformation system for Phytophthora cinnamomi using green fluorescent protein. Front Microbiol. 12, 682754(2021).
- Fang, Y., Cui, L., Gu, B., Arredondo, F., Tyler, B. M. Efficient genome editing in the oomycete Phytophthora sojae using CRISPR/Cas9. Curr Protoc Microbiol. 44 (1), 21A.1.1-21A.1.26 (2017).
- Evangelisti, E., Yunusov, T., Shenhav, L., Schornack, S. N-acetyltransferase AAC (3)-i confers gentamicin resistance to Phytophthora palmivora and Phytophthora infestans. BMC Microbiol. 19 (1), 265(2019).
- Dong, L., et al. Establishment of the straightforward electro-transformation system for Phytophthora infestans and its comparison with the improved PEG/CaCl2 transformation. J Microbiol Methods. 112, 83-86 (2015).
- Huitema, E., Smoker, M., Kamoun, S. A straightforward protocol for electro-transformation of Phytophthora capsici zoospores. Methods Mol Biol. 712, 129-135 (2011).
- Vijn, I., Govers, F. Agrobacterium tumefaciens mediated transformation of the oomycete plant pathogen Phytophthora infestans. Mol Plant Pathol. 4 (6), 459-467 (2003).
- Wu, D., Navet, N., Liu, Y., Uchida, J., Tian, M. Establishment of a simple and efficient Agrobacterium-mediated transformation system for Phytophthora palmivora. BMC Microbiol. 16 (1), 204(2016).
- Gumtow, R., Wu, D., Uchida, J., Tian, M. A Phytophthora palmivora extracellular cystatin-like protease inhibitor targets papain to contribute to virulence on papaya. Mol Plant Microbe Interact. 31 (3), 363-373 (2018).
- Pettongkhao, S., Navet, N., Schornack, S., Tian, M., Churngchow, N. A secreted protein of 15 kDa plays an important role in Phytophthora palmivora development and pathogenicity. Sci Rep. 10 (1), 2319(2020).
- Minz, A., Sharon, A. Electroporation and Agrobacterium-mediated spore transformation. Molecular and Cell Biology Methods for Fungi. Sharon, A. , Humana Press. Totowa, NJ. 21-32 (2010).
- Bellemain, E., et al. ITS as an environmental DNA barcode for fungi: An in silico approach reveals potential PCR biases. BMC Microbiol. 10 (1), 189(2010).
- Wang, L., et al. A modified Agrobacterium-mediated transformation for two oomycete pathogens. PLoS Pathog. 19 (4), e1011346(2023).
- Wu, E., et al. Optimized Agrobacterium-mediated sorghum transformation protocol and molecular data of transgenic sorghum plants. In Vitro Cell Dev Biol Plant. 50 (1), 9-18 (2014).
- Sun, L., et al. TDNAscan: A software to identify complete and truncated T-DNA insertions. Front Genet. 10, 685(2019).
- Navet, N., Tian, M. Agrobacterium-mediated transformation of sweet basil (Ocimum basilicum). Bio Protoc. 10 (22), e3828-e3828 (2020).
- Hasley, J., Dinulong, R. -J., Adhikari, A., Christopher, D., Tian, M. Genome editing of papaya using both Cas9 and Cas12a. bioRxiv. , (2025).
重印与许可
