本方案描述了使用集成放大功能的微型 Montal–Mueller 平面脂双层系统进行稳定的单通道记录的方法。通过重组纯化的合成 K2P 通道以验证系统性能,展示了该方法的应用。
本文内容
摘要
摘要
将离子通道功能重构到平面脂双层中,为在单分子水平上研究通道活性提供了一种策略。然而,传统的 Montal–Mueller 脂双层系统通常需要庞大的实验装置、手动组装记录腔室以及相对较大的记录体积,这不仅增加了试剂消耗,还可能因延长的布线和外置前置放大器而引入额外的电噪声。本文介绍了一种微型化、即用型的脂双层平台(BLMchipMM),该平台集成了紧凑型放大器,能够实现稳定的单通道记录,同时减少试剂消耗并简化操作流程。本方案详细描述了利用该系统进行单通道电生理测量的操作方法。通过该系统,我们成功重构了一种合成的 K2P 通道(ancTREK1),并以其作为原理验证的测试蛋白,用于验证通道的重构与单通道记录。单通道记录结果显示,在不含 Mg2+ 的对称 K+ 溶液中,该通道呈现电流–电压关系,其电导值与文献报道的 TREK1 通道一致。成功重构此类 K2P 类通道表明,该系统可用于人工膜中的单通道分析。
引言
将离子通道重建到人工脂双层膜(也称为黑脂膜,BLM)中,是用于在单分子水平上对离子通道进行电生理表征的成熟技术之一1。BLM 的优势源于其结构:确实在一个非极性表面的孔洞内形成平面脂双层(PLB),将两种液体溶液分隔开。因此,通过模拟生物膜,可在高度受控的条件下记录离子通道的活性,包括膜脂组成以及电解质或化学化合物的浓度,同时保持两侧均可接触。这种可及性还允许直接插入离子通道,例如通过胶束溶液或脂质体介导的融合方式2,3。
首个被描述的人工膜系统是通过涂抹技术构建的4,该方法使用画笔将溶解于非挥发性有机溶剂中的脂质液滴涂抹在小孔上。随后在小孔两侧加入水溶液,即可自发形成脂质双层。然而,该方法的一个显著缺点是残留的溶剂痕迹可能影响膜的性质。为了减少脂质双层中残留的有机溶剂含量,研究人员开发了折叠法5,从而能够形成“无溶剂”双层脂膜(BLM)。在此方法中,将挥发性溶剂中的脂质溶液铺展在水面上以形成两个单分子层;通过逐步升高水相液面至超过小孔位置,这些脂质单分子层会折叠覆盖小孔,进而形成双层结构。然而,尽管所获得的BLM被称为无溶剂,成功形成双层膜仍需预先用一层薄薄的非挥发性溶剂处理小孔。这些实验所需的核心组件是一个记录室,其由两个水相隔室(通常称为顺式和反式)构成,中间通过带有小孔(直径为50–250 µm)的亲脂性隔膜分隔开来(图1)。银/氯化银(Ag/AgCl)电极插入每个隔室中。当浸入电解质溶液时,这些电极可在脂质双层与记录装置之间建立电化学连接。后者包含一个电压钳放大器,可用于精确控制跨膜电位,并同时测量穿过嵌入的成孔蛋白的离子电流。
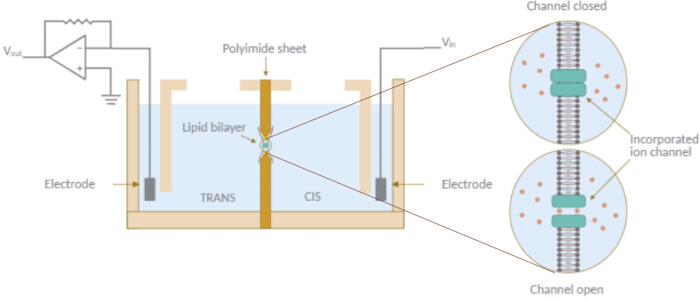
图 1:平面脂双层(PLB)膜片钳实验装置示意图。 该图展示了进行平面脂双层实验所需的关键组件。记录室由两个水相隔室(顺式和反式)组成,二者被含有小孔的疏水性隔膜分隔,脂双层即形成于该小孔处。氯化银(Ag/AgCl)电极浸入各隔室的电解质溶液中。其中一个电极施加电压刺激(如正弦波、方波或三角波),另一个电极接地,并连接至电流-电压转换器,将离子电流转换为成比例的电压信号。该信号经放大、可选滤波、数字化后被记录,用于实时监测与分析。 请点击此处查看此图的放大版本。
此外,还建立了其他形成双层脂膜(BLM)的方法。其中一种常用方法是在膜片钳移液管尖端形成悬浮的脂质双层膜。相应地,尖端浸入法6可通过将移液管尖端反复穿过空气-水界面处的脂质单层,从而在直径约为4 µm的玻璃微移液管孔口处形成无溶剂的悬浮脂质双层膜,每次穿过时捕获一个单层。膜片钳技术也已用于脂质双层膜中的单通道测量。例如,在穿出法7中,使用直径为10至80 µm的玻璃移液管,对原本涂覆在记录室孔口上的大面积膜进行封接。另一种方法是脂质体-膜片法,该方法利用预先形成的纳米至微米级囊泡作为无溶剂的双层脂膜(BLM)8,9。特别是,巨大单层囊泡已被广泛应用于通过不同膜片钳构型(包括细胞附着式和游离膜片式)进行单通道记录10,11。
近年来,也出现了多种可并行且自动化形成多个双层膜的平台。其中一种方法是液滴界面双层膜(droplet interface bilayer, DIB)技术12,该技术将水相液滴置于脂质-溶剂混合物中。在此方法中,脂质单层膜会自发地在液滴周围组装,当两个液滴相互接触时即形成双层膜。在某些实验装置中,可在水凝胶上形成DIB,以提高膜的稳定性13。另一种基于玻璃移液管尖端形成DIB的方法是接触气泡双层膜(contact bubble bilayer, CBB)法14,该方法使用两根微移液管将水相气泡引入油相中。与DIB方法类似,当两个包覆脂质的气泡接触时,脂质双层膜会自发形成。另一种平台是阵列化BLM系统,其由定义明确的微米至纳米级孔洞按网格状排列组成。在这些系统中,悬浮脂质双层膜可通过手动方式形成——例如涂抹法或折叠法,或通过脂质体囊泡破裂法15,16,17;也可通过与微流控通道结构耦合后,依次注入脂质溶液和缓冲液实现自动成膜18,19。
尽管已有多种方法可用于形成无溶剂双层脂膜(BLM),但本研究聚焦于在微型化和集成化平台上实现的折叠法,以研究嵌入人工脂双层中的膜蛋白的单通道行为。实验采用Elements装置进行,该装置由两部分组成:Elements纳米孔读取器(eNPR放大器)和BLMchipMM(图2A 和 图2B)。前者是一种紧凑型低噪声电压钳放大器,通过构成完整且独立的单元简化了实验操作空间,无需额外的外部设备。BLMchipMM是为Montal–Mueller技术设计的预组装微型系统,作为实验接口使用。其结构包括一个透明的聚甲基丙烯酸甲酯(PMMA)记录室,与一块印制电路板(PCB)集成在一起,PCB上设有两个插槽,用于固定Ag/AgCl导线作为电极,可直接连接至放大器。记录室的核心结构由一片聚酰亚胺隔膜密封于两个透明PMMA部件之间构成。隔膜厚度为50 µm,仅在中央一小区域(3.78 mm2)减薄至25 µm,以促进双层膜的形成。在此较薄区域的中心,通过激光钻孔形成一个锥形孔道,有助于提高脂双层的机械稳定性20,21。提供四种孔径规格(50、75、100和140 µm),可调节膜电容(表1)。每个PMMA部件均设有一个C形腔室,容积为110 µL,在聚酰亚胺隔膜两侧形成两个流体腔室,用于容纳电解质溶液。每个PMMA块的相对两侧分别钻有倾斜的流体通道:一个通道用于插入Ag/AgCl电极,另一个则可通过移液手动调节储液池中的缓冲液液位。
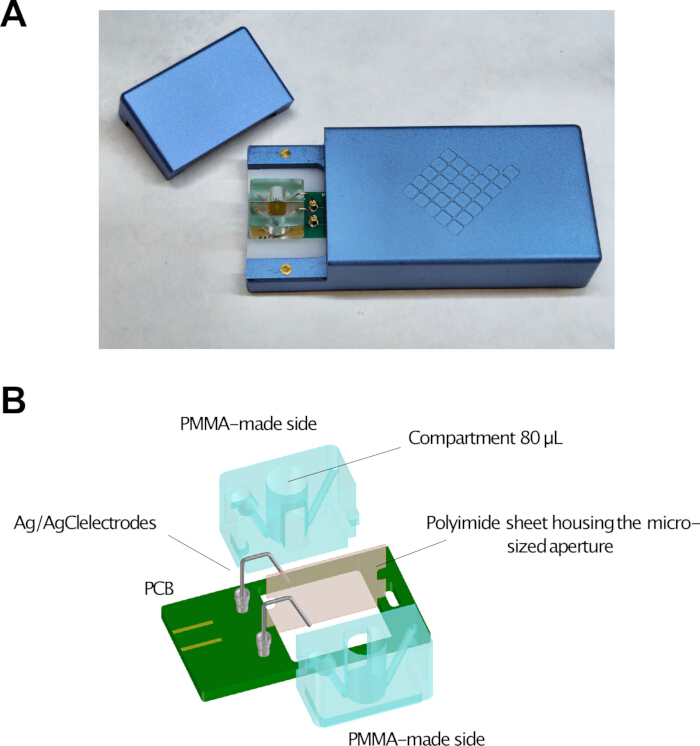
图 2:Integrated Elements Nanopore Reader 与 BLMchipMM 系统。(A)BLMchipMM 插入专用的 Elements Nanopore Reader(eNPR)放大器插槽中的实物照片。(B)BLMchipMM 组件的示意图,包括聚甲基丙烯酸甲酯(PMMA)记录室、含有微尺寸孔径的聚酰亚胺隔膜,以及带有 Ag/AgCl 电极插座和用于室对准插槽的印刷电路板(PCB)。请点击此处查看此图的放大版本。
| 孔径 (µm) | 50 | 75 | 100 | 140 |
| 孔厚度 (µm) | 25 | 25 | 25 | 25 |
| 典型膜电容 (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
表1:现有BLMchipMM光阑规格的特性。 具有50、75、100和140 µm光阑的BLMchipMM装置的孔径直径、光阑区域隔膜厚度以及典型的膜电容值。膜电容值针对由1,2-二植烷酰-sn-甘油-3-磷脂酰胆碱脂质形成的双层膜给出。
通常,实验室中使用的记录室为自制装置或市售设备。对于前者,构建系统需要组装多个组件,并开发一种可靠的方法在隔膜上制备开口,这可能会限制许多实验室的使用。即使使用商业设备,也通常需要在每次实验前手动整合多个组件。相比之下,BLMchipMM 已预先组装完成,在常规清洗过程中无需在实验间拆卸。只要所用溶剂与设备材料相容,同一装置即可清洗后重复用于多次实验,且不影响膜形成质量。这减少了由操作者引起的变异性,并最大限度降低了因手动密封元件导致的泄漏风险。使用外部可更换且可再生的银丝电极进一步延长了系统的使用寿命,特别是在加速电极消耗的实验条件下。
此外,自制装置通常具有较大的腔室体积,从而增加了实验所需的生物和化学组分的用量。相比之下,BLMchipMM 的微型化设计可显著减小实验体系的体积,进而大幅降低试剂、蛋白质及其他化合物的消耗。当研究难以表达或产量较低的膜蛋白,或待测化合物合成成本较高而显著增加实验总成本时,这一优势尤为突出。重要的是,BLMchipMM 能够形成溶剂用量最少的双层膜,并支持不对称膜结构的构建,即膜的每一侧脂质单层可由不同种类的脂质分子组成。5,22,有助于在受控条件下研究膜蛋白功能。
传统上,电流测量使用专为膜片钳实验设计的放大器进行,这些放大器通常需要连接独立的数字化仪,以通过图形界面实现数据采集和控制。这些系统不仅体积庞大且价格昂贵,而且对于非专业用户而言,其设置过程往往不够直观。此外,由于记录腔室的尺寸以及标准放大器的设计——通常缺乏内置屏蔽以保护前置放大器输入端免受静电干扰——通常需要使用外部法拉第笼。此类法拉第笼的质量及其接地状况会显著影响系统的噪声水平。BLMchipMM 与紧凑型集成放大器配合使用时,通过减少对外部组件的需求简化了该配置。信号的数字化在设备内部完成,系统外壳提供屏蔽,降低了对环境电磁干扰的敏感性。
为展示该平台的适用性,我们选取了ancTREK1,这是一种通过计算方法推导出的TREK亚家族的祖先型K2P样通道(补充图1),用作测试蛋白以验证成功重构及单通道记录。K2P 通道形成二聚体钾漏通道,可调节静息膜电位和细胞兴奋性,其中TREK通道是一个特征明确的亚家族。
方案
本研究未涉及人类参与者、人类来源材料或动物实验对象,因此根据机构和国家指南,无需获得伦理批准。
1. 准备电生理实验装置
- 仪器校准
尽管系统在出厂时已配置完成,无需正式校准,但在形成膜之前应验证系统功能是否正常。- 在开路条件下(即未插入 BLMchipMM)测量输入电阻。测得的电阻应 ≥1 TΩ,以确认放大器输入端的完整性。
- 使用含有 1 GΩ 电阻的模型细胞验证系统响应。测得的电阻应在 ±30% 范围内为 1 GΩ,与集成电阻的容差一致。
- 在恒定电压(0 mV)下,于开路条件下测量基线噪声。在 10 kHz 采样率和 5 kHz 带宽下,均方根(RMS)噪声应 ≤300 fA,以确认系统的低噪声性能。
- 制备 Ag/AgCl 电极
- 首次使用时,用乙醇和重蒸水冲洗银丝。
- 对于已使用过的银丝,使用极细砂纸去除导线表面的旧 Ag/AgCl 层,直至表面呈现均匀明亮的银白色金属光泽,且无可见残留物,然后用乙醇和重蒸水冲洗。
- 通过将银丝末端浸入 1%–5% 次氯酸钠(NaOCl)溶液中进行氯化处理(图 3A),直至变为浅灰色,通常需要 15–30 分钟。在使用过程中应持续监测氯化后的银丝是否发生降解,表现为颜色变化、基线电流漂移或两者同时出现。
注:可使用常见的家用漂白剂(含 1%–5% NaOCl)进行氯化。
警告:切勿对整根银丝进行氯化处理。应保留插入 PCB 插座部分的末端不进行氯化,以确保良好的电连接。
警告:PCB 上的插座专为直径 0.5 mm 的银丝设计。其他直径的导线可能无法正确插入或导致连接不稳定。
- 组装 BLMchipMM
- 将两根银丝未氯化的末端插入 PCB 插座中。必要时可使用镊子辅助定位(图 3B)。
- 将氯化处理后的银丝末端放入 PMMA 组件上钻出的流体通道中(图 3C)。
- 轻轻旋转 BLMchipMM,并将其安装到 PCB 上,使 PMMA 记录室底部的齿状结构嵌入专用插槽中(图 3D)。
- 检查导线位置,确保其到达流体通道末端。如有需要,可轻轻推动导线,直至其末端出现在各腔室底部(图 3E)。
警告:应将导线尽可能靠近 PMMA 组件放置。过度弯曲可能导致导线接触放大器盖,造成短路和信号饱和。
- 制备脂质和记录溶液
- 配制 100 µL 含 1%(v/v)十六烷的 100% 正己烷溶液,用于预处理隔膜孔。该溶液可在 −20°C 下保存最多一周。
- 将 1,2-二植烷酰基-sn-甘油-3-磷酰胆碱(DPhPC)脂质溶于 100% 正戊烷中,终浓度为 15 mg/mL。该溶液可在 −20°C 下保存最多 24 小时。
- 在室温(RT;20°C–25°C)下配制电解质记录溶液:将 3 mL 1 M KCl 储备液与 150 µL 1 M 4-(2-羟乙基)-1-哌嗪乙磺酸(HEPES)储备液(用 pH 计调节至 pH 7.4,使用 KOH 调节)混合,再加入重蒸水定容至 15 mL。该溶液可在 4°C 下保存最多一周(表 2)。
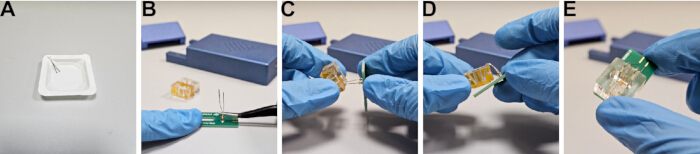
图3:BLMchipMM 装置的组装。(A)通过漂白剂浸泡对银丝进行氯化处理。(B)将银丝插入印刷电路板(PCB)插座中。(C)将银丝定位至微流控通道内。(D)将记录室放置到印刷电路板上。(E)验证电极在流体通道内的正确位置。请点击此处查看该图的放大版本。
| 试剂 | 终浓度 | 体积 |
| 双蒸水 | — | 加至 15 mL |
| 氯化钾 (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7.4 (KOH) (1 M) | 10 mM | 150 µL |
表2:电解质记录液。用于PLB记录的电解质溶液组成,包括试剂浓度和配制体积。用双蒸水将终体积调至15 mL。使用前必须用0.2 µm针头滤器过滤该记录液。
注意:使用前用 0.2 µm 注射器滤器过滤记录液。DPhPC 脂质可能以干燥粉末或氯仿溶液形式提供。将两种形式均储存于 −20°C 的密封玻璃小瓶中,并置于惰性气体环境下以防止氧化。打开干燥粉末前,需先使其平衡至室温。使用干燥粉末新鲜配制溶液,并在 24 小时内使用完毕。若使用氯仿储存液,应在重新悬浮前用氮气完全蒸发溶剂,因为残留的氯仿可能导致膜不稳定。
2. 采用 Montal-Mueller 法制备 PLB
以下步骤描述了使用折叠法(也称为 Montal–Mueller 技术5)(图4)制备人工膜的过程。该方法包括:先用含1%(v/v)十六烷的正己烷溶液在隔膜孔处预处理形成薄层,然后滴加脂质溶液在气–水界面形成单层膜,再通过逐步升高腔室各区中电解质溶液的液面,将单层膜折叠覆盖至孔上。
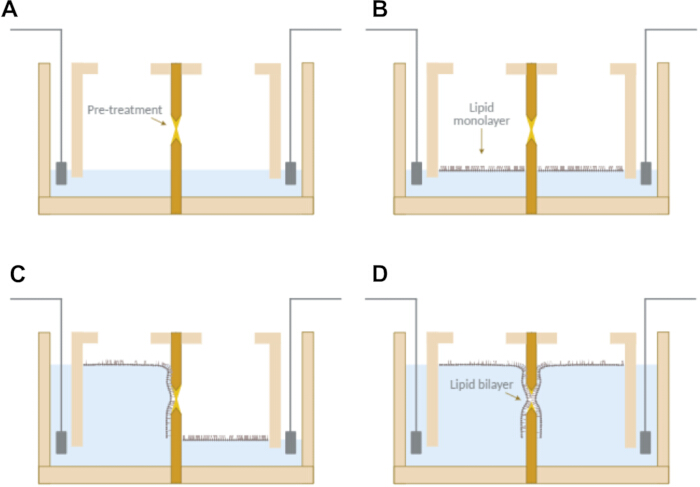
图4:采用 Montal–Mueller 方法形成平面脂双层(PLB)。(A)用正己烷中含1%十六烷的溶液预处理孔径,并将各腔室填充至孔径水平。(B)在气-水界面形成脂质单层。(C 和 D)逐步升高各腔室中的缓冲液液面,导致单层折叠并在孔径上形成无溶剂的脂双层。请点击此处查看该图的放大版本。
- 形成膜
- 使用移液枪头将1%(v/v)正己烷中的十六烷溶液预处理隔膜孔,每侧约加2 µL(图4A)。
- 在23°C–25°C、相对湿度45%–50%条件下静置5分钟,使溶剂挥发。
- 将组装好的BLMchipMM插入放大器中。
- 通过USB线缆将放大器连接至计算机,并打开数据采集软件。
- 将电流量程设为2 nA,并启动RC估算工具以监测膜电容和电阻。
注意:RC估算参数默认已配置,必要时可进行调整。 - 向每个腔室加入30 ± 2 µL记录液,液面升至孔的下边缘为止(图4A)。
警告:切勿让记录液润湿孔周围的区域。 - 将2.5 ± 0.1 µL脂质溶液逐滴加至各腔室水相表面(图4B)。
- 静置2分钟,使溶剂挥发。
- 将移液枪头以约90°角置于一个腔室底部,加入80 ± 2 µL记录液;对第二个腔室重复此操作(图4C和图4D)。
注意:溶剂挥发时间适用于23°C–25°C、静止空气、相对湿度45%–50%的条件。 - 关闭法拉第笼盖子,监测电流信号。当膜电阻值高于200 GΩ时,表明双层膜成功形成且膜完整性良好。
注意:成功成膜的特征是出现围绕零值波动的方波电流信号,其振幅与膜电容成正比(图5A)。
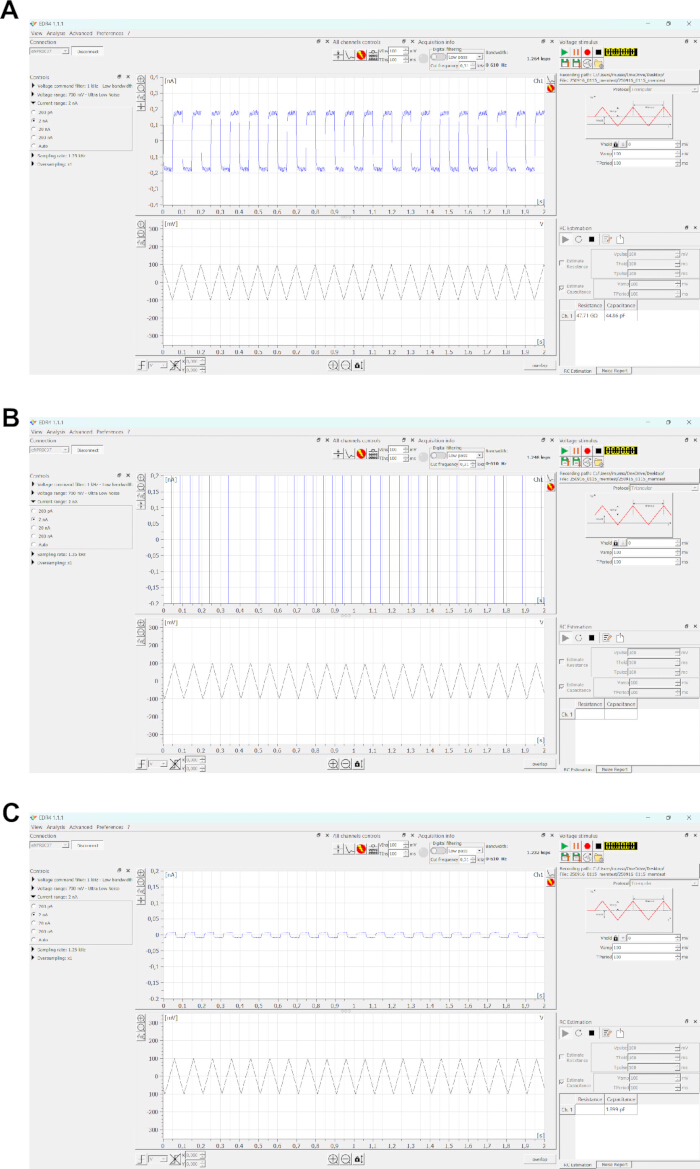
图 5:使用采集软件界面监测膜的形成。(A)代表性曲线显示膜成功形成。三角波电压(100 mV 峰峰值,10 Hz)产生与膜电容成正比的方波电容电流(约 45 pF)。(B)代表性曲线显示未形成膜,表现为电流信号饱和。(C)当双层膜未形成时(例如孔径暴露时),对应的杂散电容产生的电容信号。请点击此处查看此图的放大版本。
注意:电流范围限值之间发生信号切换表明膜已失效(图5B)。
注意:RMS 噪声随膜电容增加而增加,因此也随孔径增大而增加。在恒定电压条件(0 mV)、5 kHz 采样率和 2.5 kHz 带宽下测得的典型噪声范围为:0.48–2.00 pA(50 µm);0.74–2.62 pA(75 µm);1.00–3.52 pA(100 µm);以及 1.59–5.27 pA(140 µm)。
注意:如果初次尝试失败,通过降低和升高一个隔室中的缓冲液液面可促进膜的形成。
注意:如有需要,使用移液器吸头在孔洞上方施加气泡约 5 秒,以促进双层膜的形成。
注意:当缓冲液液面低于孔径或引入气泡时,可能会产生对应于杂散电容的信号(图5C)。如果输出信号类似于图5B,则表明预处理可能未奏效。请重新施加预处理溶液和脂质,或清洗装置后重复该步骤。
注意:仅在无膜情况下进行电压偏移补偿。如果存在膜,请先使用 ZAP 功能击穿膜,然后再进行补偿。
注意:实验可在标准实验台上进行;但如有需要,也可使用防震台。
3. 清洁 BLMchipMM
- 从PCB上取下记录室。
- 用100%异丙醇(IPA)清洗两个腔室和流体通道。
警告:接触异丙醇的时间不得超过1分钟。
警告:请勿使用丙酮或100%乙醇,这些溶剂可能会损坏腔室的密封材料。
注意:使用任何其他溶剂前,请先确认其与PMMA的兼容性。 - 用双蒸水彻底冲洗。
- 使用温和的压缩空气气流将记录室完全吹干,直至无可见水滴残留。
注意:在带光源的放大镜下检查腔室,确保无残留油膜。如有必要,重复清洗和干燥步骤。
注意:在开始新实验前,确保腔室完全清洁且干燥。
4. 表达并纯化合成离子通道(ancTREK1)
- 准备表达载体
以下步骤描述了克隆策略、在Freestyle-293F细胞中的异源表达以及ancTREK1蛋白的纯化。
使用PCR扩增、限制性内切酶消化、连接和转化至化学感受态大肠杆菌(Escherichia coli)细胞的方法构建表达载体23,24。使用含有C端GFP标签和His₈标签的哺乳动物表达载体表达ancTREK1序列(补充图1),以实现基于荧光的检测25,26,并利用镍-次氮基三乙酸(Ni2⁺-NTA树脂)27,28,29进行第一步亲和纯化,随后使用抗GFP纳米抗体树脂进行第二步纯化30,31,32。 - 通过PCR扩增ancTREK1 DNA
- 使用无菌双蒸水将PCR引物和DNA模板稀释至终浓度分别为10 µM和约20 ng/µL。
- 将所有试剂在冰上解冻。
- 配制50 µL PCR反应体系,包含10 µL 5×缓冲液、每种10 µM引物各2.5 µL、2 µL DNA模板、1 µL 10 mM dNTPs、0.5 µL高保真DNA聚合酶,并用无菌双蒸水补足体积(表3)。轻轻混匀后短暂离心。
- 按以下条件进行PCR扩增:98°C预变性3分钟;30个循环(98°C变性30秒,68°C退火30秒,72°C延伸30秒);72°C终延伸3分钟(表4)。
- 将PCR产物在1%(w/v)琼脂糖凝胶中以1× TAE缓冲液、60 V电泳90分钟,切下目标条带。
注意:使用凝胶回收方法纯化PCR产物,在260 nm处测定DNA浓度,如需长期保存,将纯化后的PCR产物储存于−20°C。
- 进行限制性酶切
- 分别在两个离心管中配制酶切反应体系,每管含2 µg PCR产物或2 µg质粒DNA。加入5 µL 10×缓冲液、0.5 µL EcoRI和0.5 µL NotI限制性内切酶,并用双蒸水定容至50 µL(表5)。
- 轻轻混匀后于37°C孵育3小时。
- 在65°C加热20分钟以灭活酶活性。
- 向载体酶切产物中加入1 µL碱性磷酸酶,37°C孵育1小时。
- 将酶切产物在1%琼脂糖凝胶上电泳,切下目标条带。
注意:使用适当的纯化方法纯化DNA片段,如需长期保存,将纯化后的DNA储存于−20°C。
- 进行连接与转化
- 配制20 µL连接反应体系,包含载体与插入片段(摩尔比3:1)、2 µL 10×连接酶缓冲液和1 µL连接酶(表6)。
- 室温孵育1小时。
- 将化学感受态E. coli细胞在冰上解冻。
- 取5 µL连接产物加入50 µL细胞中,冰上孵育20分钟。
- 42°C热激1分钟,然后立即放回冰上2分钟。
- 加入450 µL LB培养基,37°C摇床孵育1小时。
- 3,000 × g离心1分钟,弃上清,将沉淀重悬于50 µL中。
- 涂布于选择性琼脂平板,37°C过夜培养。
注意:通过测序验证克隆是否成功。
- 转染HEK293F细胞
- 在无血清悬浮培养基中接种250 mL 293F细胞,密度为0.5 × 10⁶ 个细胞/mL,37°C、6% CO₂条件下培养。
- 将250 µg DNA溶于终体积为3 mL的低血清培养基中。
- 将750 µg聚乙烯亚胺(PEI)溶于水中配成1 mg/mL溶液,用NaOH调节pH至6.9–7.1,经无菌滤膜过滤后,用低血清培养基定容至3 mL。
- 将DNA与PEI溶液混合,轻轻混匀,室温孵育10分钟。
- 将混合物逐滴加入细胞中。
- 转染4小时后加入丁酸钠至终浓度10 mM。
- 48小时后以500 × g离心15分钟收集细胞。
- 将细胞沉淀储存于−80°C。
- 溶解膜蛋白
- 在冰上解冻来自100 mL HEK293细胞培养的细胞沉淀。
- 按1:10(w/v)比例将细胞沉淀重悬于裂解缓冲液中(表7)。
加入去垢剂至终浓度为1% n-十二烷基-β-D-麦芽糖苷(DDM)和0.1% 胆固醇半琥珀酸酯(CHS)。 - 4°C旋转孵育2小时。
- 4°C、100,000 × g离心1小时。
- 收集上清液。
警告:所有操作步骤均需在4°C下使用预冷缓冲液进行。
- 进行IMAC纯化
- 将500 µL Ni2⁺-NTA树脂装入重力柱中。
- 用两倍柱体积(CVs)的平衡缓冲液平衡树脂(表8)。
- 上样,并在4°C、10 rpm轻柔搅拌条件下孵育3小时。
- 将层析柱垂直放置,依靠重力收集穿流液。
- 用含30 mM咪唑的洗涤缓冲液洗涤树脂10个柱体积。
- 用含300 mM咪唑的洗脱缓冲液洗脱蛋白,收集10个柱体积的洗脱液。
注意:通过SDS-PAGE分析各组分(图6)。保留穿流液和洗涤组分用于后续分析。如需短期保存,可将蛋白于4°C存放过夜。
- 进行抗GFP纯化
- 将1 mL抗GFP树脂装入重力柱中。
- 用2个柱体积的缓冲液1平衡树脂(表9)。将IMAC洗脱液上样,并在4°C、10 rpm轻柔搅拌条件下孵育3小时。
- 将层析柱垂直放置,依靠重力收集穿流液。
- 依次用10个柱体积的缓冲液1、10个柱体积的缓冲液2和10个柱体积的缓冲液1洗涤树脂。
- 将HRV-3C蛋白酶按蛋白酶:目标蛋白1:50的比例溶于2 mL缓冲液1中。
- 将含HRV-3C蛋白酶的缓冲液1加入树脂中,轻轻混匀,4°C垂直静置过夜孵育。
- 收集酶切后释放的蛋白于洗脱组分中。
- 使用截留分子量为50 kDa的离心浓缩管,在3,000 × g、4°C条件下浓缩样品,直至终体积约为500 µL。
注意:通过SDS-PAGE分析各组分(图7)。浓缩过程中应定期重悬蛋白,防止聚集。纯化后的蛋白经快速冷冻后储存于−80°C。每100 mL培养物可获得约60 µg蛋白。
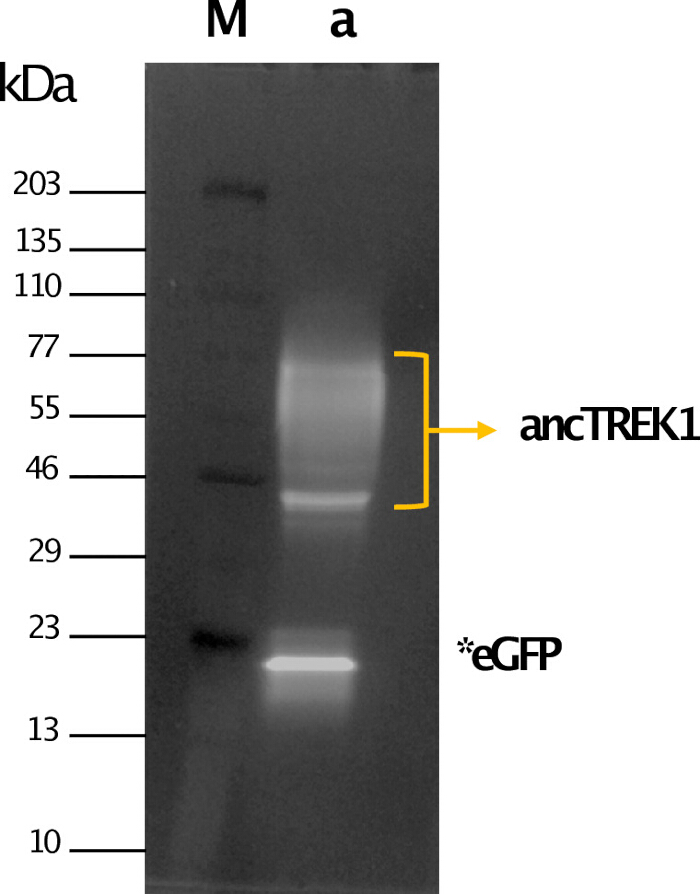
图6:通过固定化金属离子亲和层析(IMAC)纯化的ancTREK1。采用荧光检测法对IMAC洗脱组分进行十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分析。泳道M:分子量标记物。泳道a:显示绿色荧光蛋白(GFP)标记的ancTREK1(黄色箭头)的IMAC洗脱组分。由自切割产生的游离GFP用(*eGFP)表示。请点击此处查看该图的放大版本。
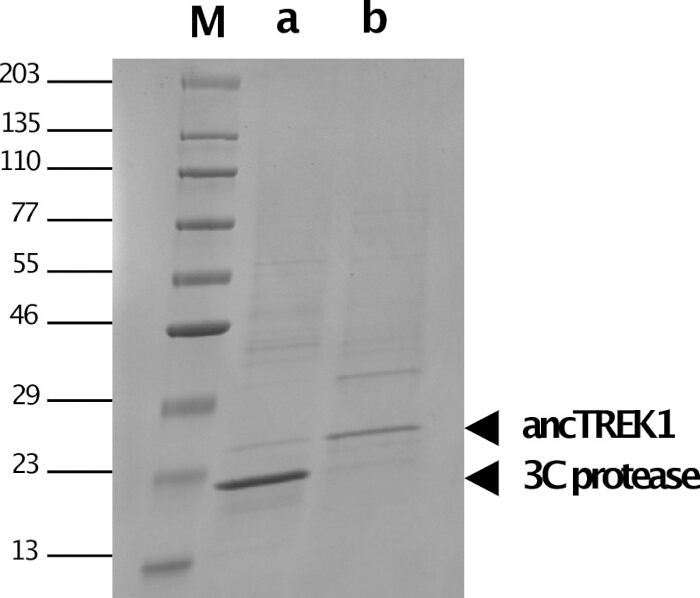
图7:通过抗GFP纳米抗体亲和层析纯化ancTREK1。考马斯亮蓝染色后对洗脱组分进行SDS-PAGE分析。泳道M:分子量标记物。泳道a:抗GFP洗脱组分,显示存在3C蛋白酶。泳道b:浓缩后的纯化ancTREK1。请点击此处查看该图的放大版本。
| 试剂 | 50 µL 反应体系中的体积 | 终浓度 |
| 双蒸水 | 加至 50 µL | — |
| 5× PhusionTM GC 缓冲液 | 10 µL | 1× |
| dNTPs(各 10 mM) | 1 µL | 各 200 µM |
| 正向引物(10 µM) | 2.5 µL | 0.5 µM |
| 反向引物(10 µM) | 2.5 µL | 0.5 µM |
| 模板 DNA(20 ng/µL) | 2 µL | 0.8 ng/µL |
| PhusionTM 高保真 DNA 聚合酶 | 0.5 µL | 0.02 U/µL |
表3:ancTREK1扩增的聚合酶链式反应(PCR)反应体系设置。 使用高保真DNA聚合酶系统对ancTREK1 DNA序列进行PCR扩增时所用的试剂组成、体积及终浓度。
| 步骤 | 温度 | 时间 | 循环次数 |
| 初始变性 | 98°C | 3 min | 1 |
| 变性 | 98°C | 30 s | 30 |
| 退火 | 68°C | 30 s | 30 |
| 延伸 | 72°C | 30 s | 30 |
| 最终延伸 | 72°C | 3 min | 1 |
| 保存 | 12°C | Hold | — |
表4:ancTREK1扩增的PCR循环条件。 用于扩增ancTREK1 DNA序列的热循环参数,包括变性、退火、延伸和最终延伸步骤。
| 组分 | 插入片段消化(50 µL) | 载体消化与去磷酸化(50 µL) |
| ddH₂O | 加至 50 µL | 加至 50 µL |
| 10× ANZA Red Buffer | 5 µL | 5 µL |
| DNA | ancTREK1 PCR 产物(2 µg) | pEG BacMam C-term 3C eGFP His8 载体 DNA(2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ Alkaline Phosphatase | — | 1 µL |
表5:ancTREK1克隆中插入片段和载体的限制性酶切。 使用EcoRI和NotI酶对ancTREK1 PCR产物和表达载体进行限制性酶切的反应条件。载体酶切包括额外的去磷酸化步骤,使用碱性磷酸酶以防止自连。
| 组分 | 用量(20 µL 反应体系) |
| ddH₂O | 加至 20 µL |
| 10× T4 DNA 连接酶缓冲液 | 2 µL |
| ancTREK1 插入 DNA(843 bp) | 10 ng |
| pEG BacMam C端 3C eGFP His8 载体 DNA(7673 bp) | 30 ng |
| T4 DNA 连接酶 | 1 µL |
表6:ancTREK1克隆的载体-插入片段连接反应条件。 使用T4 DNA连接酶将ancTREK1插入片段以1:3的摩尔比连接至pEG BacMam表达载体的反应体系。
| 组分 | 终浓度 | 体积(定容至 5 mL) |
| ddH₂O | — | 定容至 5 mL |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| PMSF 蛋白酶抑制剂 (100 mM) | 1 mM | 50 µL |
| 亮抑蛋白酶肽(Leupeptin)蛋白酶抑制剂 (1 mg/mL) | 1 µg/mL | 5 µL |
| 抑肽酶(Aprotinin)蛋白酶抑制剂 (1 mg/mL) | 1 µg/mL | 5 µL |
| Pepstatin A 蛋白酶抑制剂 (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-十二烷基-β-D-麦芽糖苷(DDM, 10%) | 1% | 500 µL |
| 胆固醇半琥珀酸酯(CHS, 2%) | 0.10% | 250 µL |
表7:用于膜蛋白提取的裂解缓冲液成分。 用于溶解膜蛋白的裂解缓冲液配方,包括盐类、缓冲剂、蛋白酶抑制剂、核酸酶和去垢剂。注意:缓冲液应在使用前新鲜配制。
| 平衡缓冲液(总体积 10 mL) | ||
| 组分 | 终浓度 | 用量 |
| ddH₂O | — | 加至 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| 洗涤缓冲液(总体积 10 mL) | ||
| 组分 | 终浓度 | 用量 |
| ddH₂O | — | 加至 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 30 mM | 60 µL |
| 洗脱缓冲液(总体积 10 mL) | ||
| 组分 | 终浓度 | 用量 |
| ddH₂O | — | 加至 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 300 mM | 600 µL |
表8:ancTREK1纯化用IMAC缓冲液组成。 用于ancTREK1固定化金属离子亲和层析纯化的平衡、洗涤和洗脱缓冲液配方。注意:溶液可在4°C下保存长达六个月。
| 缓冲液 1(总体积 10 mL) | ||
| 组分 | 终浓度 | 用量 |
| ddH₂O | — | 加至 10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| 缓冲液 2(总体积 10 mL) | ||
| 组分 | 终浓度 | 用量 |
| ddH₂O | — | 加至 10 mL |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
表9:抗GFP纳米抗体亲和层析的缓冲液组成。 使用抗GFP纳米抗体亲和层析纯化ancTREK1所用缓冲液的配方。注意:溶液可在4°C下保存长达六个月。
5. 记录离子通道活性
- 评估膜的质量
- 关闭法拉第笼盖子。
- 施加三角波电压(100 mV,10 Hz)以评估膜电容。
- 施加电压阶跃(±20 mV 递增,最高至 ±200 mV)以评估膜电阻。
- 监测电流和噪声值。
注意:除非另有要求,使用 5 kHz 采样率和 2.5 kHz 低通滤波。
- 记录 ancTREK1 活性
- 将 ancTREK1 蛋白在记录溶液中稀释至约 2 µg/mL。
注意:稀释过程中,根据需要先用缓冲液 1 进行中间稀释,以保持去垢剂浓度高于其临界胶束浓度(CMC),最后再稀释至记录溶液中。 - 将 1 µL 稀释后的蛋白溶液加入靠近隔膜孔的顺式腔室(cis chamber)。
注意:膜电位定义为 Vcis − Vtrans。本研究中未直接确定通道的方向性;因此,记录结果依据所施加电压的极性描述,而非指定膜的内外侧。 - 施加 ±20 mV 递增的电压阶跃,最高至 ±120 mV。
- 监测通道插入事件。
注意:通道插入表现为在关闭态与开放态之间出现离散的电流跃迁。若未发生插入,可添加更多蛋白或重新形成膜。若多个通道插入,则破坏膜并降低蛋白浓度。
- 将 ancTREK1 蛋白在记录溶液中稀释至约 2 µg/mL。
结果
PLB 膜的电流-电压(I–V)特性
双层膜的固有疏水性质使其对带电物质具有不可渗透性。然而,施加外部电场可诱导形成纳米级的瞬时孔隙,从而影响膜的通透性和电导率33。为了评估由1,2-二植烷酰-sn-甘油-3-磷脂酰胆碱脂质形成的人工双层膜的质量,在未插入蛋白质的情况下测定了膜的电容、电阻以及电流-电压(I–V)特性。施加一系列从±20至±200 mV(以±20 mV为增量)的电压阶跃,并记录相应的跨膜电流。数据以5 kHz采样,经2.5 kHz低通滤波处理。
膜电容(Cm)和膜电阻(Rm)是评估双层膜质量的关键参数。平面脂双层(PLB)可用一个等效的电阻-电容(RC)电路来描述,其中膜表现为一个与电阻并联的电容34。电容成分反映了膜储存电荷的能力,而电阻成分则反映了离子通透性。施加三角波电压会生成方形的电容性电流响应,该响应与膜电容成正比,关系如下:
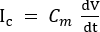 (1)
其中,Cm 为膜电容,V 为施加电压,t 为时间。膜形成后,由于双层膜逐渐变薄,电容值可能随时间增加35。将膜视为平行板电容器时,电容与膜面积和厚度的关系如下:
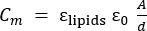 (2)
其中,εlipids 为脂质核心的介电常数(约等于 2),ε0 为真空介电常数,A 为膜面积,d 为膜厚度36,37。
利用欧姆定律测定膜电阻33:
 (3)
其中,V 为施加的电压,Rm 为膜电阻。在无离子通道的情况下,膜电流保持在接近 0 pA 的水平,对应的电阻值处于千兆欧姆(GΩ)范围33。
在75和100 µm孔径的BLMchipMM器件中,电流-电压(I–V)关系在0至±200 mV范围内表现出线性(欧姆)特性。图8A中的圆形数据点显示,75 µm孔径器件的膜电阻经线性拟合后为847 ± 16 GΩ(n = 6);图8A中的方形数据点显示,100 µm孔径器件的膜电阻为980 ± 32 GΩ(n = 7)。电流轨迹中连续3秒时间段内的均方根(RMS)噪声值,100 µm孔径为3.1 ± 2 pA(n = 7),75 µm孔径为2.6 ± 0.1 pA(n = 6)。通过在约2分钟间隔下持续测量1小时的电阻变化来评估膜的稳定性(图8B)。形成的良好脂双层膜通常可稳定维持超过1小时,足以满足大多数电生理实验的需求。这些膜在施加±200 mV以内的电位时通常保持稳定,未见不稳定迹象;而膜击穿则发生在±220至±300 mV之间,具体数值取决于各个脂双层的特性。当75 µm孔径的电容值在40至60 pF之间、100 µm孔径的电容值在60至90 pF之间,且在100 mV下的电流值≤0.5 pA时,认为该膜适合用于蛋白质插入实验。
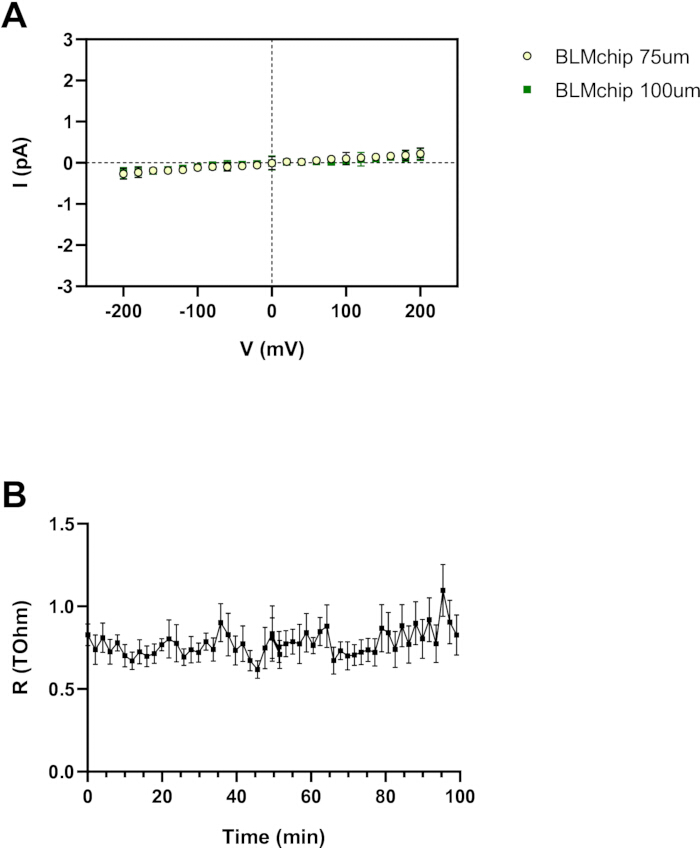
图8:PLB的电学表征。(A)在75 µm和100 µm孔径上形成的双层膜的电流-电压(I–V)关系,显示在±200 mV范围内呈线性(欧姆)行为。线性回归得到的膜电阻值分别为847 ± 16 GΩ(n = 6)和980 ± 32 GΩ(n = 7)。(B)通过每2分钟监测一次电阻,持续1小时,评估膜的稳定性。膜在±200 mV以内保持稳定,在±220至±300 mV之间的电压下发生破裂。数据以均值±均值标准误(SEM)表示。请点击此处查看该图的放大版本。
ancTREK1单通道行为的初步表征
合成的ancTREK1被纯化并重组到PLB中,使用电压阶跃程序在−120至120 mV范围内(以20 mV为增量)监测单通道活性。单通道记录(图9A 和 图9B)显示出K2P通道特有的闪烁行为38。在80 mV时,平均电流幅度为13.02 ± 0.78 pA(n = 5),而在−80 mV时电流幅度增加至−18.72 ± 0.25 pA(n = 5)(图9C)。所得的I–V关系曲线表明,在无Mg2+、对称200 mM钾条件下,正负电位均能检测到单通道电流(图9D)。由于电流幅度是根据以5 kHz采样、2.5 kHz低通滤波的记录所生成的全点直方图估算得出,因此该I–V关系主要用于描述性原理验证,而非详尽的生物物理表征。
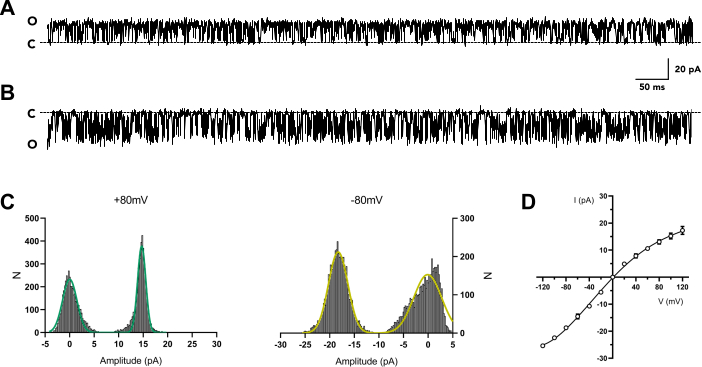
图9:合成ancTREK1的单通道活性。(A 和 B)分别在80 mV和−80 mV下记录的代表性单通道电流轨迹。虚线表示通道关闭水平。(C)正电位(左)和负电位(右)下的全点振幅直方图。(D)在对称200 mM钾离子(K+)条件下且无二价阳离子时ancTREK1的I–V关系曲线。曲线采用四阶多项式拟合,电导值由±80 mV处的斜率得出。请点击此处查看该图的放大版本。
尽管ancTREK1与哺乳动物TREK1通道相比缺乏延伸的N端和C端区域,但在重组后仍保持功能活性。与表现出高电导和低电导模式的哺乳动物TREK1相反(132 ± 5 pS 和 41 ± 5 pS(在正电位下)39,ancTREK1 仅表现出大电导模式。在正电位下单通道电导为 112.8 ± 10.8 pS(80 mV,n = 5),与文献报道的TREK通道值一致(对称钾条件下为85–130 pS)38,39,40,41在负电位下,电导增加至205.6 ± 2.05 pS(−80 mV,n = 5),与先前报道的TREK1特性一致39值得注意的是,ancTREK1 的标准化开放概率(NPo)高于使用切除膜片构型测得的 TREK1 的标准化开放概率42. NPo–电压关系显示,在正电位下通道活性增加,达到0.78 ± 0.02(n = 5)(在80 mV时)。相比之下,在负电位下NPo值降低,分别为0.53 ± -80 mV 时为 0.04,0.28 ± -120 mV 时为 0.03(图10).
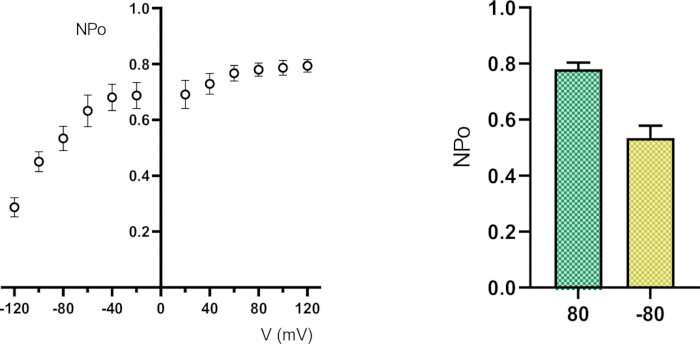
图10:ancTREK1 单通道活性的电压依赖性分析。 开放概率的归一化值(NPo)随膜电位的变化关系(左图),以及在 +80 mV 与 −80 mV 时 NPo 的比较(右图),显示在正电位下通道开放增加。请点击此处查看该图的放大版本。
补充图1. 合成的祖先双孔域钾离子(K2P)通道(ancTREK1)的氨基酸序列。 用于膜片钳电生理记录的ancTREK1全长氨基酸序列。该序列通过祖先序列重建方法推断获得,所用数据集为经过人工筛选的TREK/TRAAK家族成员序列,包括从UniProt和NCBI数据库收集的直系同源序列,经保守孔区基序筛选、序列比对,并采用最大似然法构建系统发育树进行分析。请点击此处下载该文件。
讨论
在本研究中,我们采用 PLB 技术在单分子水平上评估一种合成的 K2P 通道的电生理特性。在科学文献所描述的多种平面脂质模型中,我们重点关注双层脂膜(BLM)的形成,即在垂直非极性表面的孔洞上涂抹脂质,该孔洞直径介于 50 至 140 µm 之间,并分隔两个水相隔室。该构型可模拟细胞膜环境,同时能够控制实验参数,包括脂质膜的制备和电解质组成(如离子强度和 pH)3。我们采用 Montal–Mueller(折叠)法5重建双层脂膜,该方法通过升高水位,使先前铺展在两个水溶液气-水界面的脂质单层在孔洞上方自发融合,从而实现膜的自组装。
本文介绍的膜制备方案非常直观;然而,若干关键步骤会显著影响实验的成功。为确保 BLMchipMM 与放大器之间形成良好的电连接,必须避免插入 PCB 插座的 Ag/AgCl 导线端部发生氯化。在 BLMchipMM 组装过程中,若导线位置不当,可能导致其与放大器外壳接触,从而引起短路和信号饱和。孔径预处理步骤是另一个关键因素:施加预处理溶液时用力过大可能损坏聚酰亚胺隔膜,而对电解质溶液操作不当——特别是浸泡孔径区域——可能阻碍膜的形成。此外,仔细清洁 BLMchipMM 记录室对实验可重复性至关重要。使用 100% 异丙醇清洗,随后充分冲洗并彻底干燥,可确保残留物不会干扰后续实验。
该方案可进行多种修改。虽然通过浸泡漂白剂进行氯化是一种实用且广泛使用的方法,但也可采用其他方法,如电镀法43。同样,预处理和脂质制备步骤也可进行调整。标准的预处理溶液通常由长链烷烃溶解于挥发性烃类溶剂中组成36;尽管常用的是正己烷中1%的十六烷溶液,但其他溶剂也可能适用。脂质组成也可根据实验需求进行调整。虽然DPhPC脂质可提供最佳的膜稳定性,但也可使用其他脂质混合物,包括天然或合成的脂质组成36。通过折叠法形成的垂直脂双层的一个关键优势是能够构建不对称膜,即每层脂质单层由不同的脂质种类组成5,22,这一特性已知会影响膜蛋白的功能。
膜形成问题的排查通常涉及对水相液位的调整。如果初始时未能形成膜,可反复降低和升高一个隔室中的缓冲液液位,以促进双层膜的组装。若此方法无效,可在孔洞上方施加一个气泡,以促进脂质重新分布并诱导膜的形成。若仍持续无法成膜,通常表明存在预处理不当或污染问题,此时建议清洗记录室并重新开始实验。
该装置的核心组件包括 eNPR 100 kHz 紧凑型放大器和 BLMchipMM。该放大器是一种紧凑型低噪声电压钳系统,无需额外的外部设备(包括外部法拉第笼),因为放大器外壳本身即可提供有效的电磁屏蔽。BLMchipMM 是一种预组装的微型记录室,集成了印刷电路板(PCB),可直接与放大器连接。它由两个 C 形隔室组成,中间由聚酰亚胺隔膜分隔,隔膜上设有锥形激光钻孔孔径,用于形成人工膜。系统尺寸减小,隔室容积约为 110 µL,显著降低了试剂消耗,并减少了固有电容,从而提高了信号质量。此外,在遵循适当的清洗程序时,该装置可在不拆卸的情况下多次重复使用,减少了实验变异性,提高了实验可重复性。
尽管具有这些优势,但仍需考虑一些局限性。当前的装置未包含温度、压力或灌注控制的集成模块。已有研究报道,细胞膜的本征张力会影响机械敏感性通道(如TREK144,45,46);然而,本实验装置未实现对膜张力的可控调节,因此本文未得出任何关于机制的结论。总体而言,该平台为在人工膜中记录离子通道活性提供了一个稳定且易于实现的系统。在本研究中,我们探究了一种合成的K2P通道ancTREK1,它是通过计算方法推导出的TREK亚家族的祖先通道。记录的数据表明,将纯化的ancTREK1重组到平面脂双层(PLBs)中后,其表现出与已报道的TREK1样电导特性一致的单通道行为。在无Mg2+、对称的200 mM钾离子条件下,该通道呈现出可测量的电流-电压(I–V)关系,在+80 mV时电流幅值约为13 pA,在−80 mV时为−19 pA。此外,ancTREK1表现出TREK1通道特有的高电导模式,在负电位下的电导较高(约205.6 pS),而在正电位下的电导较低(约112.8 pS)。值得注意的是,ancTREK1在正电位下表现出更高的NPo值(80 mV时为0.78),而在负电位下NPo值降低(−80 mV时为0.53,−120 mV时为0.28),这与在切除膜片构型中的观察结果不同42。这些结果支持将该系统用于重组膜蛋白单通道记录的概念验证研究。
披露
F.T. 和 A.P. 分别是 Elements S.r.l. 的首席执行官和员工。其余所有作者均声明不存在竞争利益。
致谢
感谢Sofia Diletta Guzzeloni在细胞转染实验操作中的协助。感谢Elements公司的员工Leon Juarez博士和Michelangelo Paci博士。本研究工作得到了意大利帕维亚大学分子医学系在“卓越部门计划”(2023–2027年)框架下的支持,以及Cariplo基金会(项目编号#2019-1809)和PNRR研究计划CN00000013“国家高性能计算、大数据与量子计算中心”对M.L.的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1,2-二植烷酰-sn-甘油-3-磷酰胆碱 (DPhPC) | Avanti Polar Lipids | 850356P | 人工脂双层的形成 |
| 2-丙醇 (≥99.5%) | Honeywell | 24137-5L | BLMchipMM 装置的清洗 |
| 琼脂糖 | Fisher BioReagents | BP160-500 | 琼脂糖凝胶的制备 |
| 琼脂糖凝胶水平电泳系统 | BTLabSystems | BT102 | DNA 片段的分离 |
| 氨苄青霉素 | Fisher BioReagents | BP1760-25 | 转化细菌的筛选 |
| 抗-GFP 纳米抗体 Sepharose 树脂(自制) | — | — | GFP 标签蛋白的亲和纯化 |
| Anza 碱性磷酸酶 | Invitrogen | IVGN2208 | 载体去磷酸化 |
| Anza EcoRI | Invitrogen | IVGN0116 | 限制性酶切 |
| Anza NotI | Invitrogen | IVGN0014 | 限制性酶切 |
| Anza Red Buffer (10×) | Invitrogen | IVGN2008 | 限制性酶切缓冲液 |
| 抑肽酶蛋白酶抑制剂 | Fisher Scientific | 15996008 | 防止蛋白质降解 |
| 台式离心机 | Eppendorf | EP5420000164 | 细胞沉淀和样品制备 |
| BLMchipMM | Elements s.r.l. | — | 平面脂双层的形成 |
| 胆固醇半琥珀酸酯 (CHS) | Anatrace | CH210 | 膜蛋白的稳定 |
| 考马斯亮蓝 | Sigma-Aldrich | 1125530025 | 蛋白质染色 |
| 家用漂白剂 | — | — | 银丝的氯化处理 |
| DNase I | Sigma-Aldrich | 11284932001 | 降低裂解液黏度 |
| 双蒸水 | — | — | 缓冲液和溶液的配制 |
| 乙醇(纯,99.9%) | Girelli Alcool s.r.l. | — | Ag/AgCl 电极丝的清洗 |
| 溴化乙锭 | Sigma-Aldrich | 1116080030 | DNA 染色 |
| 超细砂纸 | — | — | 去除电极丝上的 Ag/AgCl 涂层 |
| eNPR 100 kHz 放大器 | Elements s.r.l. | — | 电生理记录 |
| 从琼脂糖中提取 DNA 的 Gel-Out 试剂盒 | A&A Biotechnology | 023-250 | DNA 纯化 |
| GeneRuler 1 kb DNA 标准分子量标记 | Thermo Fisher Scientific | SM0311 | DNA 片段大小参照 |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | ancTREK1 蛋白的表达 |
| HEPES (≥99.5%) | Sigma-Aldrich | H3375-500G | 缓冲剂 |
| 十六烷 (≥99%) | Sigma-Aldrich | H6703-100ML | 孔洞预处理 |
| 正己烷 (≥99%) | Sigma-Aldrich | 139386-100ML | 脂类溶剂 |
| 自制 5× DNA 上样染料 | — | — | DNA 样品制备 |
| 自制 6× Laemmli SDS 缓冲液(还原型) | — | — | 蛋白质样品制备 |
| 自制脱色液 | — | — | SDS-PAGE 凝胶脱色 |
| 自制 HRV-3C 蛋白酶 | — | — | 融合蛋白的切割 |
| 自制 SDS-PAGE 电泳缓冲液 (10×) | — | — | SDS-PAGE 电泳缓冲液 |
| 咪唑 | Alfa Aesar | A10221 | His 标签蛋白的洗脱 |
| 批次式纯化柱 | — | — | 蛋白质纯化流程 |
| Innova44 摇床培养箱 | New Brunswick Innova | M1282 | 细胞培养生长 |
| KCl | Honeywell | 31248-1KG | 电解质和缓冲液配制 |
| LB 培养基(Lennox) | Condalab | 1231 | 细菌培养 |
| 亮抑蛋白酶肽蛋白酶抑制剂 | Thermo Scientific | 78435 | 防止蛋白质降解 |
| 六水合氯化镁 | Acros Organics | 447700010 | 缓冲液组分 |
| Nanodrop 分光光度计 | DeNovix | DS-11 | DNA 和蛋白质定量 |
| n-十二烷基-β-D-麦芽糖苷 (DDM) | NeoBiotech | NB-19-0056-25G | 膜蛋白增溶 |
| Ni Sepharose 高性能树脂 | Cytiva | 17526801 | IMAC 纯化 |
| 笔记本电脑 | — | — | 仪器控制和数据采集 |
| Optima LE-80K 超速离心机 | Beckman | 365668 | 膜组分分离 |
| 戊烷 (≥99%) | Sigma-Aldrich | 236705-100ML | 脂类溶剂 |
| 胃蛋白酶抑制剂 A (Pepstatin A) | Thermo Scientific | 78436 | 防止蛋白质降解 |
| Phusion GC 缓冲液 (5×) | Thermo Fisher Scientific | F519 | PCR 缓冲液 |
| Phusion 高保真 DNA 聚合酶 | Thermo Fisher Scientific | F530S | PCR 扩增 |
| PMSF 蛋白酶抑制剂 | Thermo Scientific | 36978 | 裂解过程中蛋白质保护 |
| 聚乙烯亚胺 (PEI) | Clinisciences | 24765-100 | 转染试剂 |
| ProteinEle 预制 Tris-甘氨酸凝胶 (4–20%) | TransGen Biotech | DG101-01-V2 | 蛋白质分离 |
| SDS-PAGE 凝胶电泳系统 | Bio-Rad | 1658002FC | 蛋白质电泳 |
| 丁酸钠 | Fisher Scientific | A11079 | 蛋白表达增强剂 |
| T4 DNA 连接酶 | Thermo Fisher Scientific | EL0011 | DNA 连接 |
| T4 DNA 连接酶缓冲液 (10×) | Thermo Fisher Scientific | B69 | 连接反应缓冲液 |
| PCR 仪(Mastercycler Nexus) | Eppendorf | 6331000025 | PCR 扩增 |
| Tris 碱 | Sigma-Aldrich | T1503-1KG | 缓冲液配制 |
| 含卵磷脂和吐温 80 的胰蛋白胨大豆琼脂 | HiMedia | M449-5KG | 细菌涂布 |
| 两根银丝 | Elements s.r.l. | — | 电生理实验电极 |
| 超滤离心浓缩管(截留分子量 50 kDa) | Merck Amicon | UFC8050 | 蛋白质浓缩 |
| pEG BacMam 表达载体 | Addgene | 160687 | 蛋白质表达 |
| USB 数据线 | — | — | 放大器与计算机之间的连接 |
参考文献
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
重印与许可
本文已发表
视频即将推出