本文介绍了一种将活体成像与自动化分析工具相结合的实验方案,用于分析果蝇(Drosophila)卵母细胞中的微管动态。该工作流程能够高效且可重复地测量微管的行为,包括生长、取向、速度和空间组织,并可在优化后适用于其他细胞类型。
方法文章
无中心体微管网络的活体成像与定量分析工作流程 果蝇 卵母细胞
* These authors contributed equally
本文内容
摘要
摘要
微管(MT)细胞骨架对于多种细胞功能至关重要,包括细胞形态、极性、迁移和分裂。在分裂的动物细胞中,中心体作为主要的微管组织中心(MTOC),而许多分化细胞(包括Drosophila卵母细胞)则依赖无中心体途径来组装微管网络。与增殖细胞中微管组织的广泛研究相比,目前对无中心体条件下微管网络如何组装仍知之甚少。Drosophila卵母细胞为研究无中心体微管的组织与动态提供了有力的模型。然而,其致密的微管网络给传统成像带来了挑战。活体成像可实现实时观察微管的生长与取向,但目前仍缺乏标准化的分析方法。本文介绍了一种基于活体成像的实验方案,利用末端结合蛋白1(EB1)-绿色荧光蛋白(GFP)——一种可标记活跃微管聚合位点的正端追踪蛋白——来分析Drosophila卵母细胞中的微管生长动态。高分辨率Airyscan共聚焦显微镜可用于检测EB1彗星状信号,结合定制的Fiji宏和Python脚本,可高效、可重复地量化彗星密度、速度、长度和取向。我们通过将对照组卵母细胞与经低温诱导微管去聚合的样本进行比较,并以Patronin突变体(人类中的CAMSAP)作为阳性对照——该蛋白是一种保守的微管负端稳定因子,也是非中心体微管组织中心(ncMTOC)的核心组分——验证了该方法的有效性。我们的分析揭示了区域特异性的微管动态特征,包括EB1彗星在前部区域的富集以及特征性的取向偏倚,并证实该工作流程能够灵敏地检测微管生长中的细微扰动。该方法为研究卵母细胞中微管行为提供了可靠且易于使用的框架。该分步操作方案可用于在此背景下探究微管调控因子,并在适当优化后可能适用于其他分化细胞类型(如神经元和上皮细胞)。更广泛而言,该方法支持开展机制性研究及遗传筛选,以探究不同微管结构如何支撑特定的细胞功能。
引言
微管(MT)细胞骨架是真核细胞的基本组成部分,在建立和维持细胞形态、极性和分裂过程中发挥着关键作用。微管聚合物的动态行为以生长和缩短为特征,对许多基于微管的过程至关重要1,2。不同类型微管阵列的组装依赖于微管组织中心(MTOCs)的协同作用,微管由此被成核,以及多种微管调控蛋白的活性,这些蛋白控制微管的稳定性、取向和动态性1,2,3。研究最为深入的MTOC是中心体,它可形成辐射状微管阵列,对间期细胞形态和极性的调控以及有丝分裂期纺锤体的组装具有重要意义4,5。然而,在退出有丝分裂或发生分化时(如神经元和上皮细胞),中心体MTOC活性通常会减弱,而在某些极端情况下(如卵母细胞),该活性甚至可能完全消失6,7。这种情况常伴随着细胞类型特异性的微管细胞骨架重塑,MTOC功能被分配到其他细胞位点2,3,8,通常称为非中心体微管组织中心(ncMTOCs)。尽管在阐明有丝分裂细胞中微管组织方面已取得显著进展,但关于动物细胞在退出有丝分裂或进行分化过程中微管如何被成核、稳定及空间排布,目前所知仍相对有限2。值得注意的是,在生物体内,大多数细胞处于非分裂状态,即已退出细胞周期和/或完成分化。因此,理解在这些情况下微管细胞骨架如何组装和调控至关重要。这一知识对于揭示不同微管结构如何建立以支持特定细胞功能具有重要意义。
Drosophila melanogaster 卵母细胞为研究无中心粒的微管(MT)组织与功能提供了一个强有力的体系。在卵子发生中期,中心粒的活性被削弱9,微管由定位于卵母细胞前侧皮层的非中心体微管组织中心(ncMTOCs)生成(图1B)。该微管网络对于母源mRNA、蛋白质和细胞器的定位至关重要,而这些定位过程又对将来胚胎轴线的建立和发育具有关键作用10,11。先前的研究表明,卵母细胞的ncMTOCs由微管负端结合蛋白Patronin组成,该蛋白与定位于皮层肌动蛋白细胞骨架的spectraplakin家族蛋白Shot形成复合物。有研究提出,微管可能从由Katanin等剪切酶产生的短微管片段上生长,这些片段可作为进一步微管聚合的“种子”12。类似机制也在其他中心粒活性降低的分化细胞(如神经元)中被提出13。然而,剪切过程如何生成复杂的微管网络(如卵母细胞中的网络)仍不清楚。目前尚不明确在这些情况下,微管主要是通过基于剪切的重排形成,还是通过剪切与从头微管成核共同作用形成。Drosophila 卵母细胞微管网络的复杂性使其成为研究非经典中心体背景下微管生成与组织机制的理想系统。值得注意的是,这也给成像与分析带来了挑战:卵母细胞内密集的微管网络使得利用传统的免疫染色或静态成像方法难以分辨单个微管2,14。
活体成像极大地提升了研究微管(MT)网络的能力,因为它能够实时可视化微管聚合事件,从而为微管生长的动态行为和方向性提供关键见解。 先前的研究已成功利用对微管正端标记物的活体成像来分析卵母细胞中的微管生长动态14,15,16。然而,在许多情况下,用于量化微管动态的图像分析流程仅被简要描述,依赖于自定义或实验室特有的实现方式,或未公开提供,从而限制了其可重复性和广泛应用。我们的方法在这些已有研究的基础上,提供了一套完全文档化、开放获取且用户友好的分析流程,能够对不同数据集和实验条件下微管生长参数进行标准化量化。在本实验方案中,微管动态的成像发生在卵子发生中期,此时微管细胞骨架由无中心粒的微管网络组织。通过EB1-GFP(一种微管正端追踪蛋白)17,18来可视化生长中的微管,并采用配备阵列探测器的激光扫描共聚焦显微镜以高速模式进行图像采集。本方法的创新之处在于其图像分析部分:一套完全文档化、操作简便、分步指导的分析流程,用户仅需选择感兴趣区域即可。图像处理与量化通过定制的Fiji宏和Python脚本实现,可高效、可重复地检测EB1彗星轨迹,并提取包括生长方向、速度和空间分布在内的各项参数。该框架为在不同实验条件下比较微管动态提供了标准化且易于使用的工具。
在本文中,我们应用该方法比较对照卵母细胞与经低温处理去聚合的卵母细胞中微管的生长情况。这既可用于验证该实验方案,也可为未来研究候选蛋白在微管调控中的作用提供支持。
方案
1. 果蝇遗传学
注意:为了在卵母细胞中可视化微管(MTs),本方案使用了一种公开可用的转基因品系(材料表),该品系表达与绿色荧光蛋白(GFP, Green Fluorescent Protein)标签融合的微管正端追踪蛋白 EB119。EB1-GFP 特异性结合正在生长的微管正端,在显微图像中呈现为沿聚合方向移动的荧光“"彗星"”状信号17,18。这使得能够对微管的生长动态进行可视化和定量分析,包括生长方向、速度以及在卵母细胞内的空间分布14,20。
- 在25 °C条件下,使用标准玉米粉-琼脂培养基维持所有果蝇品系 果蝇 饲养技术。
- 将8–12只携带靶向目的蛋白表达的UAS-RNAi转基因的 virgin 雌蝇与5只基因型为 matα4-Gal4-VP16; EB1-GFP 的雄蝇杂交。
注意:为了简化遗传杂交,可通过将 V32-Gal4 品系(插入第二染色体)与 EB1-GFP 品系(插入第三染色体)杂交来构建果蝇品系。由于 EB1-GFP 受 UASp 启动子调控,V32-Gal4 驱动子可诱导 EB1-GFP 的表达;此外,在后续杂交中如有需要,也可同时诱导任何引入的 UAS-RNAi 转基因的表达。 - F1 代(子代)孵化后,选取 10–15 只所需基因型的雌蝇(不足一周龄)。
- 将雌蝇与2–3只雄蝇一起转移到一个新鲜的培养管中,培养基表面放置少量酵母糊。酵母糊可刺激卵子发生,并促进卵室发育进程。雄蝇的存在可确保交配,从而进一步促进卵母细胞成熟和产卵。将果蝇在25 °C条件下饲养2天。
注意:为了研究特定基因在微管动力学中的作用,可利用UAS/GAL4系统实现蛋白质敲低21,使用公开可获得的母体驱动子 matα4-Gal4-VP16(也称为 V32-Gal4; 材料表),可在卵子发生第3-4阶段启动生殖系中的Gal4表达。如上所述,该驱动系统可诱导EB1-GFP以及UAS-RNAi构建体的表达,从而仅在生殖囊之后的阶段实现目标蛋白的耗竭。该策略规避了靶向蛋白在早期有丝分裂及卵细胞特化过程中可能发挥的功能。进行此类实验时,果蝇样品应按前述方法制备。
2. 卵巢解剖
- 使用CO₂麻醉F1代雌性果蝇 在标准果蝇操作板上固定一只雌蝇用于解剖。
- 将选定的雌蝇直接转移至35 mm玻璃底培养皿(玻璃厚度为0.13–0.15 mm)中,并在果蝇上方滴加一滴成像油。
- 将果蝇腹面朝上(翅膀朝下)放置。用一对镊子轻轻夹住胸部下部,另一对镊子从腹部末端夹取少量腹部角质层。
- 通过开口小心地将生殖道轻轻拉出。
- 用镊子轻轻在油中滑动卵巢,分离出卵巢并随后分离单个卵管。操作卵巢时,应始终夹住较老的卵室(13–14期),以避免损伤更脆弱的中期卵室(6–9期),后者是成像关注的重点。图1A,B).
- 抓住卵巢的前端,此处为生殖腺和早期卵室所在位置(图1A,B)。施加缓慢而稳定的张力以分离单个卵管。在牵拉过程中,处于不同发育阶段的卵室将逐渐显现。每枚卵巢可重复此操作多次,以分离更多的卵管。22 (演示请见视频)。
注意:对于经低温处理以解聚微管(MT)的卵母细胞,解剖操作按前述方法进行,但使用 BRB-80 缓冲液代替成像油。解剖后的卵巢随后转移至含有 BRB-80 缓冲液的微量离心管中,置于冰上孵育 15 分钟23孵育后,将卵巢转移至含成像油的玻璃底培养皿中,并从步骤3.1继续进行实验方案。
3. 活体成像
- 使用合适的载物片夹将玻璃底培养皿放置在显微镜载物台上。
- 选择第7或第8阶段的卵室进行成像。
注意:可根据卵母细胞大小和细胞核位置识别处于这些阶段的卵室。此时卵母细胞明显大于单个滋养细胞,占据卵室约三分之一(第7阶段)至二分之一(第8阶段)。卵母细胞核位于卵母细胞的前皮层区域,紧邻滋养细胞24。 - 避免对卵室外层滤泡细胞层出现不连续或其他损伤迹象的样本进行成像,这些可能提示镊子操作造成的机械性破坏。为获得最佳图像质量,应使用具有高信噪比(SNR)的快速共聚焦成像系统,并配备63倍物镜(1.40 NA,油镜)。确保满足奈奎斯特-香农采样准则。
- 调整焦距并确定合适的曝光参数,具体参数可能因所使用的EB1构建体(例如不同启动子或荧光标签)及显微镜系统而异。信号应足够明亮以追踪彗星状结构的动力学行为,但不应出现饱和或被背景荧光掩盖的情况。
- 设置488 nm激光激发GFP荧光基团(激光功率10%;探测器增益=750 V),并选择适当的发射波长范围500–550 nm,或适用于GFP荧光基团的等效滤光片组。
- 以500 ms的帧间隔(每秒2帧)采集至少持续4分钟的时间序列图像,以获得足够的数据用于追踪单个微管正端动态。(补充视频1 展示了一段典型的时间序列图像采集过程,适用于后续微管追踪分析)。
- 使用显微镜采集软件中的阵列探测器处理功能,并采用默认滤波强度对采集的图像进行处理。
注意:卵巢组织浸入成像油后,可在最多90分钟内保持活性。在此期间,卵室成像不会表现出明显退化迹象。超过该时间后,应重新解剖一只雌性果蝇,并制备新鲜卵室用于成像20。
4. 图像处理
执行以下工作流程,以生成图表和统计数据,量化与微管(MT)动力学相关的各种参数。可通过宏/脚本自动执行每一步骤,或按照协议手动操作(图2)。本工作流程中使用的所有Fiji宏、追踪脚本和Python分析代码均作为补充代码文件1–7提供。
- 图像预处理 - 第1步
以下步骤通过对原始延时图像进行光漂白校正和背景噪声抑制,确保信号稳定性以实现准确追踪。首先,使用高斯差分(Difference of Gaussians, DoG)滤波器增强EB1的可见性,该滤波器作为空间带通滤波器发挥作用。通过从轻微模糊的图像中减去严重模糊的图像,此过程可抑制低频的细胞质雾状背景和高频的像素噪声,同时保留EB1彗星的衍射极限信号。其次,应用时间梯度滤波器以特异性增强正在生长的微管(MT)尖端。将图像堆栈重新切片,使时间维度映射到空间Y轴。随后使用[-1 0 1]核进行一维卷积,计算每个像素的时间导数,突出显示移动彗星的前缘(即强度增长最快的区域)。然后将堆栈重新切片回原始维度,合并为复合图像,并导出用于分析。
注意:可通过将宏文件 File1.Step1_MTs_macro.ijm(补充编码文件1)拖入Fiji并运行该宏,批量执行此步骤中的所有文件。- 插件安装前提(一次性设置)
- 启动Fiji。在菜单栏中选择 插件 > 安装。
- 在文件浏览器中,选择本方案提供的 File_7_Kalman_Stack_Filter_Compiled.jar(补充编码文件7)文件。
- 当提示保存插件时,确保目标路径为Fiji安装目录下的默认插件文件夹,然后点击 保存。
- 重启Fiji 以完成安装。
注意:该插件的编译版本与Fiji内置版本相同,但无需单独安装Java开发工具包(JDK),从而简化了设置流程。
- 光漂白校正与去噪:
- 打开Fiji,然后使用Bio-Formats导入插件打开每个文件。
- 运行“光漂白校正”插件,采用简单比率法(Simple-Ratio)进行荧光衰减的时间补偿(背景 = 0)。
- 运行Kalman Stack Filter Compiled(采集噪声 = 0.1;偏差 = 0.7),在保留真实信号动态的同时抑制随机光子噪声。
- 如有需要,裁剪结果图像的时间维度以减少处理时间。
注意:这些步骤生成一幅去噪图像,该图像将在第1步结束时(4.1.5节)作为 通道1 出现(图3A)。建议排除前5至10帧(时间点),因为Kalman滤波器的滑动窗口对这些初始帧的滤波效果不完整。
- 特征增强:高斯差分(DoG):
- 将4.1.2.4节中的图像复制两次(右键单击图像并选择“复制”)。
- 对其中一份副本应用高斯模糊插件,使用低σ值(σ = 1)。
- 对另一份副本应用高斯模糊插件,使用高σ值(σ = 8)。
- 打开图像计算器插件,将高σ图像从低σ图像中减去(= 低 – 高),以分离精细结构。
- 如有需要,使用Fiji的“数学”>“减去”功能并选择一个数值(DoG阈值 = 100),以仅保留真实信号并去除背景。
注意:这些步骤生成一幅高斯差分图像,该图像将在第1步结束时(4.1.5节)作为通道2出现(图3B)。
- EB1-GFP信号增强:
- 选择4.1.2.4节中的图像,使用Reslice插件并设置为:顶部,无插值。
- 使用Convolve 2D插件,核为[–1 0 1],以增强微管尖端。
- 再次使用相同的设置运行Reslice插件,恢复原始图像尺寸。
- 注意:这些步骤将生成一幅EB1-GFP信号增强的图像。该图像将在第1步结束时(4.1.5节)作为通道3出现(图3C)。
- 合并通道并导出图像:
- 使用“合并通道”插件,将MT EB1-GFP图像(4.1.2.4)、高斯差分图像(4.1.3.5)和EB1-GFP信号增强图像(4.1.4.3)合并。确保在合并过程中,用于后续分析的图像位于通道3。
- 将结果文件保存为.tif格式,命名格式为:“filename”_processed.tif。确保用于下游分析的图像以 _processed.tif 结尾。
- 插件安装前提(一次性设置)
- 感兴趣区域(ROI)- 第2步
在此步骤中,沿卵母细胞的前后轴定义三个感兴趣区域:前部(ROI1)、中部(ROI2)和后部(ROI3)。执行此空间分割,以便分析卵母细胞不同区域的微管动态。
注意:可通过将宏文件 File_2_Step2_MTs_macro.ijm(补充编码文件2)拖入Fiji并点击“运行”,对每个“filename”_processed.tif执行第2步。宏将提示用户手动在卵母细胞中绘制一个矩形。距离多边形起点(第一次点击)最近的区域对应第一个ROI。所选矩形区域将自动划分为相等的矩形ROI。若未保存任何ROI,则后续步骤将在整幅图像上运行。- 定义ROI:
- 通过 插件 → Bio-Formats → Bio-Formats Importer 打开目标文件。
- 使用多边形工具绘制覆盖目标区域的感兴趣区域。
- 将选定区域添加到ROI管理器(按T键)。
- 根据所需ROI数量重复步骤4.2.1。
- 测量并导出面积:
- 选择第一个ROI。
- 运行 分析 → 测量,并将面积值保存为名为:“filename”_processed_RoiArea.csv 的文件。
注意:文件名必须与原始图像名称一致,且以 _processed_RoiArea.csv 结尾。 - 使用ROI管理器保存ROI。单个ROI使用相同文件名加.roi扩展名,多个ROI则使用.zip扩展名。
- 定义ROI:
- 检测与追踪EB1-GFP彗星 - 第3步
使用TrackMate插件25检测EB1-GFP彗星并追踪其随时间的运动。
注意:可通过将宏文件 File_3_Step3_MTs_macro_tracking.py(补充编码文件3)拖入Fiji并点击“运行”,将第3步应用于每个“filename”_processed.tif。然后选择要处理的文件夹。ROI将自动加载,分析将对每个文件执行,生成相应的斑点和轨迹输出。在批量处理前,建议先分析2–3幅代表性图像,以视觉验证默认检测器和追踪器设置是否适用于彗星的大小和动态。若设置合适,用户可调整相关参数以准确追踪EB1尖端,从而最小化假阴性和假阳性。- 通过 插件 → Bio-Formats → Bio-Formats Importer 打开目标文件。
- 打开TrackMate插件。若提示交换T和Z轴,请选择“是”。
- 选择LoG检测器。将粒子直径设置为0.5 µm(可根据需要调整)。
- 将质量阈值设为30(可根据需要调整)。启用亚像素定位和中值滤波预处理。
- 移除任何额外的斑点过滤。选择Kalman追踪方法。
- 设置初始搜索半径为0.5,搜索半径为0.7,最大帧间隙为2(可根据需要调整——初始搜索半径用于初始化追踪器,搜索半径控制斑点在帧间可移动的最大距离,最大帧间隙允许轨迹中短暂消失)。
- 跳过将出现的轨迹过滤步骤。完成追踪后,进入 斑点 → 导出为CSV,并将文件命名为:“filename”_ROI01_spots.csv。
- 注意:文件命名应反映分析的ROI数量。若使用多个ROI,每个输出文件应使用相应的标识符命名,如_ROI01、_ROI02等。
- 数据可视化与定量分析 - 第4步
使用Python脚本处理追踪数据并计算关键参数,包括彗星数量、速度、寿命、角度一致性和方向性。这些脚本生成汇总表格(CSV文件)、图表和统计分析,以支持对微管动态的定量分析(图4)。- 软件环境设置:
- 安装Python(3.12)发行版。确保安装以下外部Python库(通过 pip install pandas numpy scipy matplotlib seaborn ipython statsmodels notebook):Pandas 和 NumPy(用于数据结构处理和数值计算),SciPy 和 Statsmodels(特别是scipy.stats,用于圆形统计和假设检验),Matplotlib 和 Seaborn(用于生成玫瑰图和统计条形图),IPython(用于笔记本中的显示工具),Jupyter Notebook(用于使用笔记本)。
- 将自定义分析模块(File_5_MTModule1.py 和 File_6_MTModule2.py — 补充编码文件5和6)放置在与分析笔记本(File 4_Step4_MTs_results.ipynb — 补充编码文件4)相同的根目录下。
- 在Python终端中运行“jupyter notebook”命令以启动Jupyter笔记本,并加载 File 4_Step4_MTs_results.ipynb — 补充编码文件4 笔记本。
- 输入数据与参数定义:
- 填写数据库,将生物学重复样本与其实验元数据对应。
- 为每个实验提供以下信息:基础名称:文件名中出现的唯一标识符字符串,条件:实验组(例如,"对照","处理"),校正角度:将ROI与生物轴对齐所需的角度(例如,前部 = 0°)。
- 调整参数:导出图像格式和dpi、绘图颜色、角度计算的默认分箱大小。
- 设置数据过滤参数以排除短轨迹:最小轨迹长度:短于该持续时间的轨迹将被丢弃。
- 分析流程执行:
- 读取并执行所有代码单元以处理原始追踪数据。脚本遍历数据库列表,执行以下程序步骤:
- 识别与每个基础名称关联的所有特定ROI的CSV文件。
- 基于最小长度过滤轨迹(仅保留持续超过3帧的轨迹),计算瞬时速度,计算总位移,并对所有轨迹应用参考角度校正。
- 通过ROI面积(从元数据加载)对彗星计数进行归一化,以计算彗星密度。
- 将处理后的数据聚合到主数据集(df_all)中,并为每个ROI计算总体汇总统计量(平均速度、轨迹持续时间和角度一致性向量长度)。
- 执行 make_combined_rose_panel 函数以生成组合玫瑰图。该函数创建每个实验条件下所有ROI角度分布的并排面板比较图。执行 create_comprehensive_analysis_plots_enhanced 以生成标量指标的条形图。
- 执行 run_angle_analysis_pipeline 函数以进行特定方向性分析:
- 使用两种策略将轨迹分类到方向分箱中: cardinal分箱(4个90°宽的分箱:北/前部、东/右侧、南/后部、西/左侧)和前后分箱(2个180°分箱:前部 vs. 后部)。
- 计算每个卵母细胞中朝各定义方向运动的轨迹百分比。
- 读取并执行所有代码单元以处理原始追踪数据。脚本遍历数据库列表,执行以下程序步骤:
- 统计分析与输出生成:
- 遍历定义的标量指标:每单位面积每帧平均彗星数、平均彗星轨迹持续时间、平均彗星速度。对每个指标执行:
- 在不同实验条件下进行独立比较时,执行Kruskal-Wallis或Mann-Whitney U检验。
- 执行Friedman或Wilcoxon检验以评估各ROI间的一致性。
- 执行Friedman和Wilcoxon符号秩检验(使用Pratt方法)以评估每个ROI内方向偏好(例如,北 vs. 南)。
- 将以下结果导出到Results目录:汇总CSV文件(metrics_table.csv, track_table.csv, roi_metrics.csv),统计报告(例如,Mean comet velocity_mwu.csv),以及图表(高分辨率PNG文件)。
注意: 第4步只能在Python中执行。打开 File_4_Step4_MTs_results.ipynb 并逐个读取和执行所有单元。每个单元均包含执行说明及预期结果。
- 遍历定义的标量指标:每单位面积每帧平均彗星数、平均彗星轨迹持续时间、平均彗星速度。对每个指标执行:
- 软件环境设置:
5. 统计分析:
注意:由于追踪数据不符合高斯分布,所有比较均采用非参数统计检验。
- 使用 Mann-Whitney U 检验(适用于两组)或 Kruskal-Wallis 检验后接事后成对 Mann-Whitney 比较(适用于 >2 组)来评估实验条件之间的独立差异(例如,对照组 vs. 处理组)。
- 使用 Friedman 检验(整体差异)后接 Wilcoxon 符号秩检验(成对比较),评估同一感兴趣区域(ROI)内的取向偏好性差异。
- 使用 Pratt 方法处理差值为零的结(ties)。
- 以未校正的 p 值报告成对比较结果,以保留统计效能。使用提供的脚本同时报告原始 p 值和校正后的 p 值,显著性阈值设为 0.05。除非另有说明,所有汇总统计量均以均值 ± 均值标准误(SEM)表示。
结果
本方案已成功用于分析卵子发生中期黑腹果蝇(Drosophila melanogaster)卵母细胞中微管(MT)的生长动态和极性,实验中使用了EB1-GFP这一标记活跃微管聚合位点的正端追踪蛋白17,18。通过激光扫描共聚焦显微镜成像时,EB1-GFP表现为明亮、点状的“彗星”结构,其移动方向与微管生长方向一致17,18(图3A;补充视频1)。对这些彗星结构进行追踪和定量分析,可精确评估卵母细胞内微管的成核、延伸及组织方式。利用本工作流程,我们在对照组卵母细胞以及微管网络受到实验性干扰的卵母细胞中评估了微管动态。具体而言,EB1彗星行为在三种条件下进行了比较:未经处理的对照组卵母细胞、经低温处理的对照组卵母细胞,以及经低温处理的杂合patronin突变型卵母细胞12,26。低温处理可诱导微管去聚合,从而便于评估恢复过程中的微管重新聚合情况。杂合patronin突变型(+/patr05252)卵母细胞被用作微管动态受损的阳性对照。Patronin是一种保守的微管负端稳定蛋白27,也是卵母细胞12及其他组织2中非中心体微管组织中心(ncMTOC)的核心组分。先前研究表明,在经历微管去聚合后,patronin突变体会在微管重新聚合阶段出现EB1彗星数量显著减少的现象12。因此,引入杂合patronin突变体可将本方法与已知的微管再聚合缺陷背景进行比对验证。实验选取第7–8期卵母细胞进行成像,此时中心粒已退化,微管通过无中心粒途径生成。
与先前的观察结果一致,卵母细胞的前部区域检测到最高密度的EB1彗星结构,向后部区域逐渐减少14,15 (图5B;表1;补充表1和2)。为了区分真实的微管聚合事件与静止信号或离焦平面信号,本方案通过区分检测到的EB1-GFP荧光斑点总数与其中可动斑点的子集来进行判别。不可动组分可能代表静止的彗星状结构,或主要在轴向平面内运动的彗星状结构。图5A,B)。微管轨迹长度和生长速度的分析仅针对可移动的 EB1-GFP 斑点进行,以避免纳入静止信号或轴向移动,这些因素可能干扰轨迹长度和速度的估算。总 EB1-GFP 斑点数与可移动组分在不同的图中分别呈现,以便对整体检测结果与动态行为进行直接比较(图 5A,B在对照组卵母细胞中,该方案测得 EB1 运动彗星为 0.189 ± 0.02 SEM/µm2 (18.9 个EB1彗星/100 µm)2在前部区域,EB1运动性彗星数量分别为0.064 ± 0.02 SEM和0.043 ± 0.01 SEM /µm2 分别在中段和后段区域(6.4 和 4.3 条 EB1 彗星/100 µm)2) (图5B;表1;补充表1和表2。 先前的一项研究28 在相同发育阶段检测到每100µm有48.54个EB1彗星2,这高于本研究中检测到的运动性 EB1-GFP 斑点的数值。然而,若考虑检测到的 EB1-GFP 斑点总数,则测量值具有一致性图5A;表1;补充表1和2)。该研究的材料与方法部分未明确说明用于卵母细胞成像的z轴层扫数量,因此分析中可能包含了多个z轴层扫图像,这可能导致检测到的EB1-GFP彗星数量偏高。另一个可能影响报告数值的因素是用于彗星定量的卵母细胞区域选择。如果所选感兴趣区域更靠近EB1彗星密度最高的最前端极区,则可能导致平均彗星密度高于本研究中的测量值。尽管如此,本研究所获得的结果与先前报道的数值处于同一数量级,并且一致反映出EB1彗星密度向后端区域递减的趋势。14,15.
冷诱导微管再生后,对照组卵母细胞的EB1彗星数量与未处理对照组相当,表明微管恢复良好。相比之下,与先前报道一致12,patronin突变体在前部区域(ROI1)的运动性EB1彗星数量相较于两个对照组均显著减少(图5B;表1;补充表1和表2)。尽管在中部和后部区域(ROI 2和ROI 3)的彗星数量也呈下降趋势,但这些差异无统计学意义(图5B)。此处观察到的减少程度较基于诺考达唑的实验中所报道的更为轻微12。这可能反映了本研究使用的是杂合型patronin突变体,仅有一个等位基因发生突变。此外,冷诱导去聚合方案可能未能完全解聚所有微管,且从冰上取出至成像之间的5–15分钟间隔很可能允许部分微管在数据采集前重新成核并再生长。相比之下,基于诺考达唑的实验是在秋水仙胺失活后立即通过显微镜紫外激光进行的12。尽管如此,这些结果表明,本方案能够检测到具有生物学意义的、区域特异性的微管组织改变。结果也与非中心体微管组织中心(ncMTOC)及其核心组分Patronin在卵母细胞前部富集的现象相一致。中部和后部区域彗星数量减少程度较弱,也可能反映了在这些发育阶段ncMTOC和Patronin被排除在后皮层之外12。
对照卵母细胞中EB1轨迹长度的分析显示,卵母细胞前部区域的彗星状轨迹较长(0.613 µm ± 0.04 SEM),而中部和后部区域的彗星状轨迹较短(分别为0.463 µm ± 0.04 SEM和0.488 µm ± 0.05 SEM)(图5C;表1;补充表1和表2)。该结果与先前的研究数据一致,表明微管(MTs)在后极的持续时间短于前极,提示后极的微管较短14。在经低温处理的杂合patronin突变体卵母细胞中,前部和后部区域的EB1彗星长度相较于低温处理的对照组显著缩短。在中部区域也观察到类似的非统计学显著趋势(图5C;表1;补充表1和表2),提示微管稳定性部分降低。综上所述,这些结果支持Patronin作为微管负端稳定因子的已知功能,并与先前在Drosophila培养细胞中的观察结果一致,即Patronin缺失会导致微管纺锤体变短12,27。这些发现还凸显了本实验方案在检测微管动态中细微但具有生物学意义的扰动方面的敏感性。
在测量对照组卵母细胞中EB1彗星的运动速度时,分析结果显示,前部、中部和后部区域的平均速度分别为0.208 ± 0.01 µm/sec、0.207 ± 0.01 µm/sec和0.202 ± 0.01 µm/sec(图5D;表1;补充表1和表2),该结果与先前的研究一致14,15。对照组卵母细胞中微管生长速度从前部到后部呈现轻微下降趋势。这可能反映了非中心体微管组织中心(ncMTOCs)以及可能存在的其他尚未明确的微管相关蛋白(MAPs)在前外侧区域的富集,这些因子促进微管的生长和延伸,从而导致后部区域观察到的速度降低。在低温处理的卵母细胞中,patronin杂合突变体相较于对照组表现出微管生长速度轻微降低的趋势,但该差异未达到统计学显著性(图5D;表1;补充表1和表2)。该发现与先前在表达patronin突变体的黑腹果蝇神经干细胞中的观察结果一致29。
ncMTOC 定位于卵母细胞的前外侧区域,同时被排除在后部区域之外,导致大多数微管(MT)的负端锚定于前外侧皮层并由此生长。因此,在卵母细胞内形成了从前到后的微管梯度,并表现出适度的方向偏向:60% 的微管向后部生长,40% 向前部生长14。我们的实验方案成功检测到对照组卵母细胞在各个区域均存在这种方向偏向(图5E)。与先前报道一致14,微管方向偏向在后部区域更为显著。值得注意的是,在对照组及杂合型 patronin 突变体卵母细胞经冷处理后,后部区域的方向偏向富集现象消失(图5E、F)。在冷处理的对照组卵母细胞中,所有区域的微管生长方向均转向以朝向前部为主。该趋势在前部和中部区域表现为非显著性变化,而在后部区域达到统计学显著性(图5F)。对于后部方向偏向的丧失,一种可能的解释是:在冷处理条件下,新聚合的微管可能需要更长时间才能与微管相关蛋白(MAPs),如马达蛋白等结合,从而促进微管的稳定化和/或交联。这些因子招募的延迟可能阻碍了朝向后部微管的强化。综上所述,本实验方案可实现对卵母细胞内微管生长、长度、速度和方向的敏感且定量的分析。该方法能够可靠地检测与先前研究一致的、具有生物学意义的区域特异性微管动态变化,并展现出分辨微管行为细微差异的敏感性,这一点在杂合型 patronin 突变体中的观察结果中得到了印证。
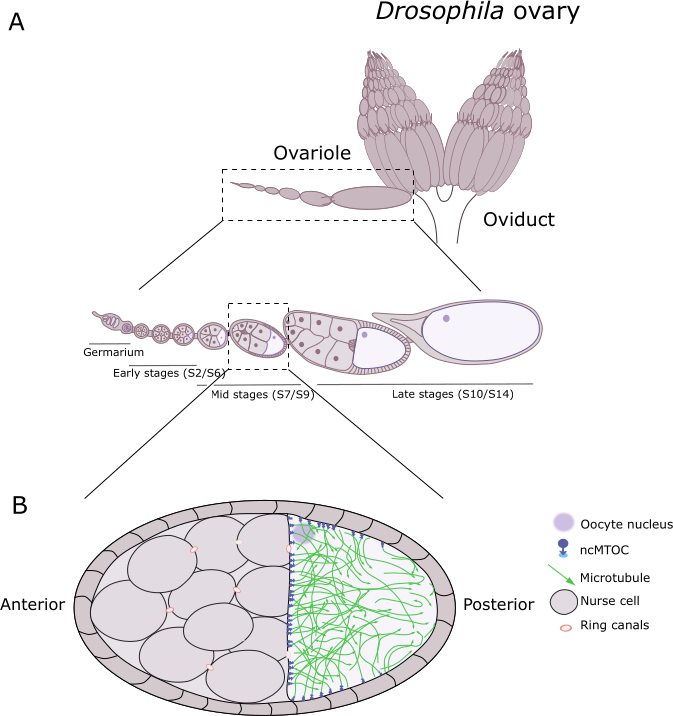
图1: 果蝇 黑腹果蝇卵子发生 (A卵子发生过程概述 黑腹果蝇 卵巢 每个卵巢包含12–16条卵巢管,其功能类似于卵子生产线。卵子发生始于生殖囊,其中2–3个生殖系干细胞进行不对称分裂,产生一个干细胞和一个开始分化的子细胞。这些细胞经历4次有丝分裂,形成由环状通道连接的16细胞囊。在这16个细胞中,其中一个将发育为卵细胞,其余则作为滋养细胞,支持卵细胞的生长与发育,直至在卵巢后端形成14期卵细胞。 (B9期示意图 果蝇 卵室。微管由定位于卵母细胞前侧皮层的核周微管组织中心(ncMTOCs)生成,这些中心被排除在卵母细胞后侧区域之外。12. 请点击此处以查看此图的放大版本。
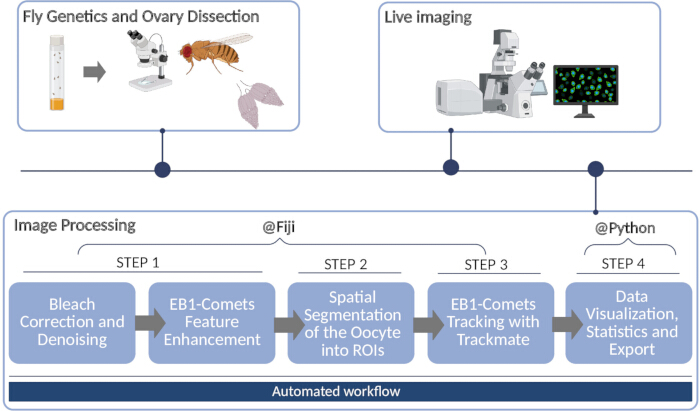
图2:实验方案工作流程图。从卵巢解剖和活体成像到彗星轨迹追踪及定量分析的主要步骤概览。请点击此处查看该图的放大版本。
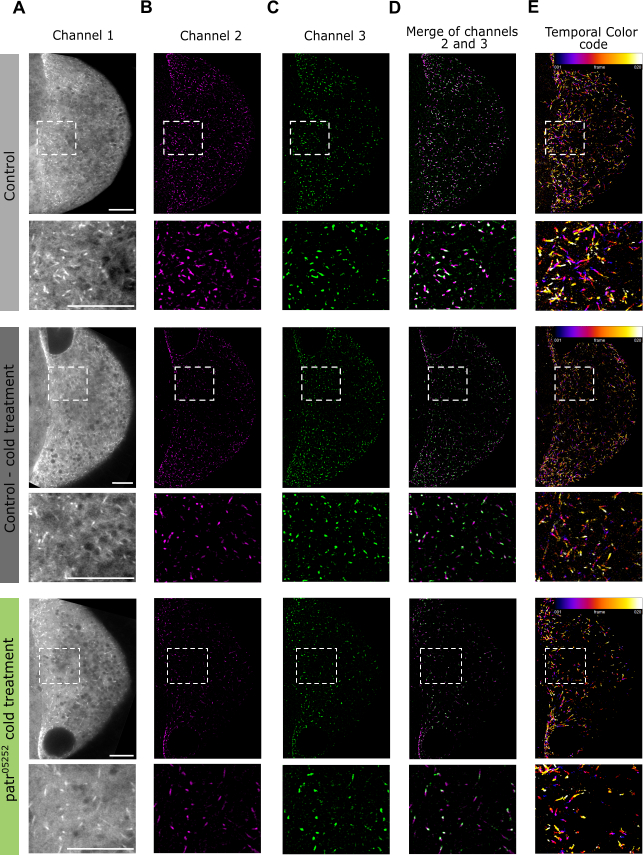
图3:通过7–8期卵母细胞处理获得的代表性图像。 (A-E代表性图像,展示应用于对照组、对照组冷处理及杂合子7–8期卵母细胞的步骤1图像处理流程 patronin05252 经低温处理的卵母细胞。图中通道显示的是从每帧0.5秒、共150帧的时间序列录像中选取的2帧所生成的最大投影的代表性图像。 (A通道1,对应于从相应成像的卵母细胞生成去噪图像。B通道2,对应生成高斯差分图像。C通道3,用于生成EB1-GFP彗星信号增强的图像,以显示彗星的尖端。D通道2和通道3的合并,有助于可视化通道2处理后生成的彗星尖端。E使用FIJI中的Temporal Color Code插件对延时成像C生成EB1-GFP彗星轨迹,以展示微管动力学。颜色编码表示20帧的时间投影(帧间间隔0.50秒)。比例尺=10 µm。 请点击此处以查看此图的放大版本。
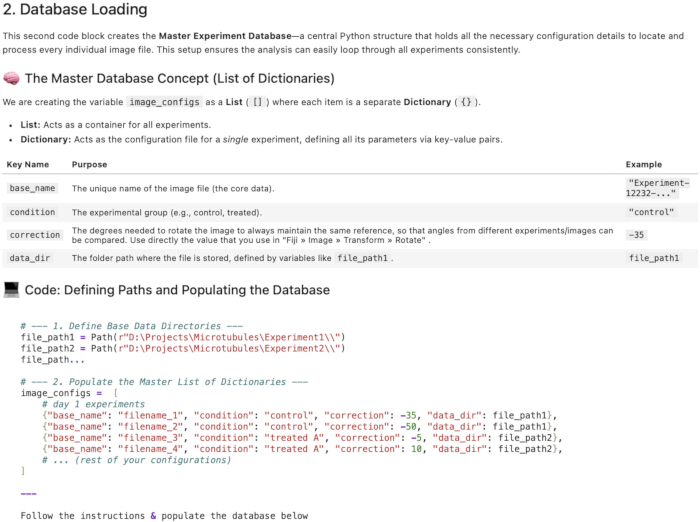
图 4:STEP 4 中 Jupyter Notebook 某一部分的截图。 该 Notebook 由 Markdown 单元格构成,提供自解释的操作说明,后接输出实时结果和日志的代码单元格。请点击此处查看此图的放大版本。
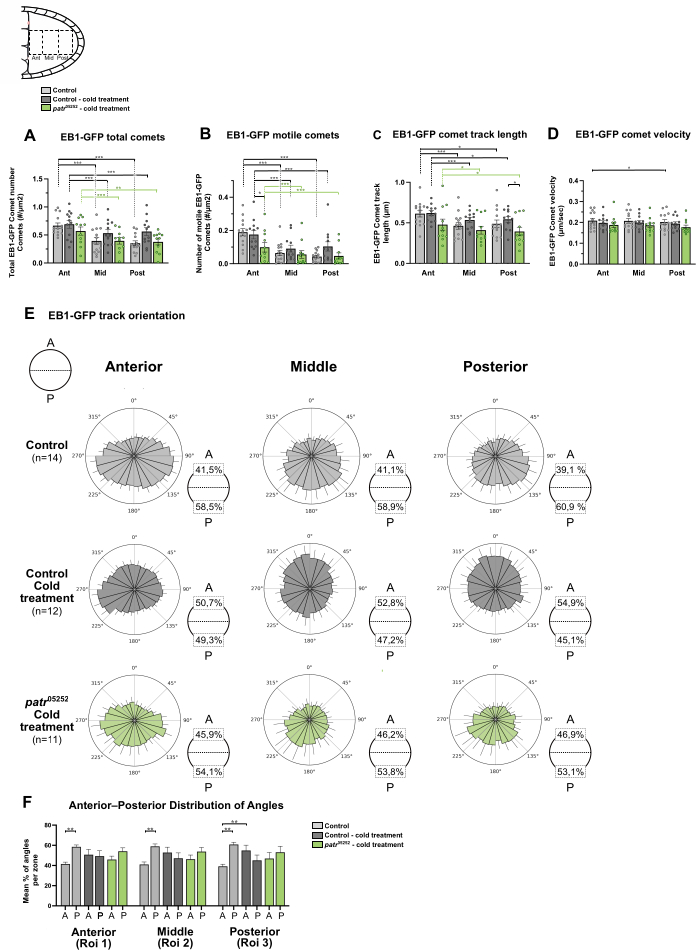
图 5:对照组与低温处理的 7–8 期卵母细胞中 EB1-GFP 彗星动态的分析。 数据表示每个 ROI(ROI1–ROI3)的平均值 ± 标准误(SEM),包括对照组、对照组低温处理以及 patronin05252 突变型低温处理的卵母细胞。EB1-GFP 彗星数据来自在 FIJI 中处理的时间序列图像;除非另有说明,所有分析均基于通道 3 处理后的图像进行。总 EB1-GFP 彗星数量的分析来自通道 2 图像(DoG 图像)。统计学显著性采用 Kruskal–Wallis 检验后接 Mann–Whitney 事后比较,或根据情况使用 Friedman 检验后接 Wilcoxon 配对样本检验(p < 0.05;p < 0.001;p < 0.0001)。(A) 散点图显示总 EB1-GFP 彗星数量的平均值。( B) 散点图显示可动 EB1-GFP 彗星数量的平均值。( C) 散点图显示 EB1-GFP 彗星轨迹长度的平均值。( D) 散点图显示 EB1-GFP 彗星速度的平均值。( E) 玫瑰图显示对照组(n = 14)、对照组低温处理(n = 12)和 patronin05252 突变型低温处理(n = 11)卵母细胞中 ROI1–ROI3 内 EB1-GFP 轨迹的方向分布。每种条件下各 ROI 中朝向卵母细胞前极(A)或后极(P)的轨迹平均百分比已标出。( F) 柱状图显示 EB1-GFP 彗星轨迹角度朝向卵母细胞前极和后极的平均百分比。百分比按每个卵母细胞计算,代表各 ROI 内彗星方向的相对分布。请点击此处查看该图的放大版本。
| 指标 | ROI | 对照组 (n=14) | 冷处理对照组 (n=12) | patronin05252 冷处理组 (n=11) |
| EB1-GFP 星状体总数 (#/µm²) | ROI 1 (前部) | 0.667 ± 0.18 | 0.691 ± 0.20 | 0.570 ± 0.17 |
| ROI 2 (中部) | 0.394 ± 0.11 | 0.532 ± 0.15 | 0.400 ± 0.12 | |
| ROI 3 (后部) | 0.353 ± 0.09 | 0.561 ± 0.16 | 0.378 ± 0.11 | |
| 运动性 EB1-GFP 星状体数量 (#/µm²) | ROI 1 (前部) | 0.189 ± 0.02 | 0.175 ± 0.03 | 0.099 ± 0.03 |
| ROI 2 (中部) | 0.064 ± 0.02 | 0.091 ± 0.02 | 0.056 ± 0.02 | |
| ROI 3 (后部) | 0.043 ± 0.01 | 0.104 ± 0.03 | 0.047 ± 0.02 | |
| EB1-GFP 星状体轨迹长度 (µm) | ROI 1 (前部) | 0.613 ± 0.04 | 0.621 ± 0.03 | 0.478 ± 0.07 |
| ROI 2 (中部) | 0.463 ± 0.04 | 0.535 ± 0.03 | 0.410 ± 0.05 | |
| ROI 3 (后部) | 0.488 ± 0.05 | 0.543 ± 0.04 | 0.393 ± 0.05 | |
| EB1-GFP 星状体运动速度 (µm/sec) | ROI 1 (前部) | 0.208 ± 0.01 | 0.198 ± 0.01 | 0.188 ± 0.01 |
| ROI 2 (中部) | 0.207 ± 0.01 | 0.199 ± 0.01 | 0.186 ± 0.01 | |
| ROI 3 (后部) | 0.202 ± 0.01 | 0.194 ± 0.01 | 0.177 ± 0.01 |
表1. 分析的卵母细胞中前后区域EB1-GFP彗星轨迹测量结果汇总。测量数据来自对照组、对照组冷处理以及杂合patronin05252冷处理的卵母细胞。感兴趣区域定义为ROI1(前部)、ROI2(中部)和ROI3(后部)。
补充表1. 不同实验条件下EB1-GFP彗星轨迹测量值的统计分析。 P值表示对照组、对照组冷处理以及杂合patronin05252冷处理卵母细胞在各ROI区域(ROI1-ROI3)之间的差异。三组条件间的总体比较采用Kruskal-Wallis检验,随后进行成对Mann-Whitney事后比较。请点击此处下载该文件
补充表 2. 每种实验条件下各 ROI 内 EB1-GFP 斑点测量值的统计学比较。 P 值表示对照组、对照组冷处理以及杂合 patronin05252 冷处理卵母细胞中 ROI1(前部)、ROI2(中部)和 ROI3(后部)之间的差异。每种条件下 ROI 间的总体差异采用 Friedman 检验进行评估。随后使用 Wilcoxon 匹配对符号秩检验进行 ROI 间的两两比较。请点击此处下载该文件
补充视频 1。 对照组 7–8 期卵母细胞中末端追踪蛋白 EB1-GFP 的延时成像,展示了一个适用于后续微管追踪分析的代表性图像采集结果(参见图 3)。请点击此处下载该文件
补充代码文件 1:File_1_Step1_MTs_macro.ijm。一个用于图像预处理的 Fiji/ImageJ 宏。该宏可自动完成光漂白校正、卡尔曼滤波以及使用高斯差分(DoG)滤波器进行背景扣除。此外,它还应用时间梯度增强(重新切片和一维卷积)以锐化微管尖端的前沿,从而提高追踪的准确性。请点击此处下载该文件
补充代码文件 2: File_2_Step2_MTs_macro.ijm。一个用于半自动定义感兴趣区域(ROI)的 Fiji/ImageJ 宏。该宏会提示用户定义卵母细胞边界,并自动将选定区域分割为等距的区域(在本示例中为 3 个区域:前部、中部和后部),以实现分析的区域分层。请点击此处下载该文件
补充代码文件 3:File_3_Step3_MTs_macro_tracking.py。一个在 Fiji/ImageJ 中运行的 Python 脚本,用于使用 TrackMate 对 EB1 星号进行自动追踪。该脚本可批量处理预处理后的图像,利用设定的质量参数检测星号,将其连接成轨迹,并将原始坐标数据导出为 CSV 文件。请点击此处下载该文件
补充代码文件 4:File_4_Step4_MTs_results.ipynb。这是一个 Jupyter Notebook 文件,作为定量分析的主要操作界面。它加载原始追踪数据,执行分析流程,并生成所有最终结果,包括玫瑰图、统计汇总表格,以及彗星密度、速度和寿命的比较图表。请点击此处下载该文件
补充代码文件 5:File_5_MTModule1.py。一个自定义的 Python 模块,包含用于数据提取和基本几何计算的基础实用函数。该模块包括查找 ROI 文件、计算瞬时速度以及计算基本角位移的函数。请点击此处下载该文件
补充代码文件 6:File_6_MTModule2.py。一个自定义的 Python 模块,包含高级分析和可视化功能。该模块包含取向分析流程(按基本方向与轴向分组)的算法、稳健的统计检验方法(采用 Pratt 方法的 Friedman/Wilcoxon 检验),以及生成适合发表的极坐标(玫瑰)图的功能。请点击此处下载该文件
补充代码文件 7:File_7_KalmanStackFilterCompiled.jar。在预处理宏的降噪步骤中,需要使用一个为 Fiji/ImageJ 编译的 Java 卡尔曼滤波插件。该独立版本无需另行安装 Java 开发工具包(JDK),从而简化了用户的软件配置。请点击此处下载该文件
讨论
卵母细胞中微管(MT)动态的活体成像面临独特挑战,因为需要高质量的数据集和定量分析才能提取有意义的信息。尽管先前的研究已报道了活体成像方法14,15,16,但图像分析步骤通常高度定制化,且现有方案缺乏足够的细节以实现可重复性。因此,缺乏深入成像或计算经验的研究人员在重复这些分析时可能面临障碍。为应对这些挑战,本研究开发了一种简化的流程,将高分辨率Airyscan活体成像与用户友好、自动化的宏和脚本相结合。该流程可高效检测并追踪EB1彗星,进而对微管的方向性、运动速度和空间组织进行定量分析。通过最大限度减少人工干预,并提供清晰、逐步的操作说明,该工作流程提高了卵母细胞中微管动态分析的可及性和可重复性。
卵巢解剖与样品制备是至关重要的初始步骤。必须小心解剖卵母细胞,以避免机械损伤,且成像时间应限制在90分钟以内以维持细胞活性20。卵母细胞发育阶段的选择非常重要:在卵子发生中期之后,卵母细胞体积增大,并在细胞质中积累卵黄,这使得EB1信号的可视化在第9阶段之后变得愈发困难。因此,不建议对第9阶段之后的样品进行成像20。此外,为了获得可重复的定量结果,应尽可能选用大小相近的卵母细胞,以确保在不同样品之间,所定义的兴趣区域对应于等效的前后位置。
温度控制对于实验可重复性至关重要。果蝇品系应维持在标准培养条件(25 °C)下,以保证正常发育以及EB1-GFP表达的一致性,尤其是在使用对温度波动敏感的GAL4/UAS系统时。成像过程中的温度稳定性同样重要,因为温度变化可能影响微管动力学。尽管无需使用温控培养室,但仍建议在数据采集期间避免温度波动。
在图像采集过程中,选择阵列探测器共聚焦成像,因其具有高灵敏度和改善的信噪比,从而最大限度减少采集后去噪的需求。应使用高数值孔径物镜(尽可能高)并结合适当的折射率匹配,以最大化横向和轴向分辨率,这对于分辨密集网络中的单个彗星结构至关重要。此外,应遵循奈奎斯特-香农采样准则30,在XYZ空间和时间维度上进行采样,以避免彗星追踪过程中精度损失。同样重要的是沿z轴方向仔细选择成像平面:成像过深会因光散射导致荧光信号损失,而仅限于皮层表面的采集则无法捕捉EB1彗星的完整动态行为。最具信息量的数据通常来自中间z位置。应避免选择细胞核位于所选成像平面内的卵母细胞,因为核区会占据大量细胞质空间且缺乏EB1轨迹,从而减少可检测到的彗星数量。
尽管本分析流程已针对基于阵列探测器的共聚焦成像进行了优化,但其与硬件无关,也可兼容其他成像模式,例如转盘共聚焦显微镜。然而,用户应注意,数值孔径(NA)或信噪比(SNR)较低的系统可能需要调整宏程序的预处理参数(例如噪声容忍度/DoG sigma值),并可能导致彗星检测密度低于本研究中报告的数值。尽管如此,尽管不同系统间的绝对数值可能存在差异,但实验条件与感兴趣区域(ROI)之间的相对变化趋势预期仍具有良好的稳健性。
由于卵母细胞具有较大的三维结构,二维成像仅能捕获微管网络的一个光学切片。因此,沿z轴方向陡峭移动的彗星状结构可能很快移出焦平面,从而可能导致对轨迹寿命和绝对速度的低估(因为仅能测量速度矢量的xy分量)。然而,对整个卵母细胞进行高速三维体成像需要更小的视场(FOV)、更短的曝光时间以及更快的探测器响应时间,这会降低信噪比(SNR),并将采集时间分配到多个z层面上,从而损害追踪快速EB1彗星所需的高时间分辨率。为了消除静止不动的彗星信号及离焦伪影,应用了卷积滤波器和最小轨迹持续时间滤波器(排除少于<3帧的轨迹),以去除短暂穿过焦平面的斑点信号。此外,由于这种几何限制在所有实验条件下均一致存在,所观察到的彗星密度、速度和取向的相对差异仍然具有可靠性。尽管像光场显微镜这样的新兴技术理论上可同时捕获完整的三维结构,但目前尚未广泛普及。尽管如此,本研究测得的所有微管动力学参数值均与先前报道一致,表明该方案适用于在不同实验设置下研究微管动力学。
在使用本方案中的宏之前,建议先手动处理前几幅图像,以确保软件参数已正确优化。成像分辨率、放大倍数、信噪比、帧率以及数据是单平面图像还是z轴层扫图像等因素均会影响追踪的准确性。需在调整参数的同时目视检查生成的轨迹,通过迭代优化以尽量减少假阳性和假阴性结果。参数优化后,应在所有数据集中保持一致地应用,以确保实验的可重复性。
最后,需要注意一些与生物学解释相关的局限性。EB1-GFP 仅标记微管(MT)的生长正端,因此只能报告活跃微管聚合的位点,而不能反映整个微管群体的情况。在成像期间存在的稳定、非聚合状态的微管无法被该方法检测到。尽管在卵子发生中期的卵母细胞中这一局限性影响较小(因为此时大多数微管具有高度动态性),但在将该方案应用于其他含有大量稳定微管群体的细胞类型(如神经元)时,应充分考虑这一限制31。
综上所述,该工作流程可实现对果蝇(Drosophila)卵母细胞中微管(MT)动态的高分辨率、定量分析。通过整合优化的解剖技术、阵列探测器共聚焦活体成像以及自动化分析工具,该方法为在无中心体环境中研究微管调控因子提供了一种严谨且易于实施的技术路径。尽管该方法主要在卵母细胞中进行了验证,但其基本原理经过适当优化后可适用于其他细胞类型,包括神经元和上皮细胞等非分裂细胞,从而为微管组织的遗传筛选和机制研究提供一个可扩展的平台。
披露
作者声明无利益冲突。
致谢
我们非常感谢法国雅克·莫诺研究所(Institute Jacques Monod)的Antoine Guichet慷慨提供了UASp-EB1-GFP果蝇品系。我们还感谢NOVA医学院显微镜平台的技术支持与协助,该平台由PPBI(POCI-01-0145-FEDER-022122)资助;同时感谢NOVA医学院果蝇平台的支持,该平台由CONGENTO(LISBOA-01-0145-FEDER-022170)资助。本研究工作获得了授予A.P.M.的经费支持(2024/158225/PEX)、研究单位UID/04462/2025:iNOVA4Health——转化医学项目,以及联合实验室LS4FUTURE(LA/P/0087/2020)的支持,上述项目均由科学技术基金会(Fundação Para a Ciência e Tecnologia, FCT)/教育部、科学与创新部提供资金支持。A.P.M.由FCT CEECInd计划下的研究员合同(CEECIND/02842/2020)支持,J.C.由FCT博士奖学金(2023/03665/BD)支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 杜蒙特 #5 镊子 | 精细科学工具公司 | 11252-20 | |
| EB1::GFP | 来自法国国家科学研究中心雅克·莫诺研究所 Antoine Guichet 博士 | 基因型:w; +/CyO; UASp-EB1::GFP/TM3 | |
| 玻璃底培养皿 | MatTek 公司 | P35G-1.0-14-C | |
| Matα4-Gal4-VP16 | 布卢明顿果蝇品系中心 | 7062 | 基因型:w[*]; P{w[+mC]=matalpha4-GAL-VP16}V2H |
| Voltalef 10S 油 | VWR 化学品公司 | 24627.188 | |
| Patronin 突变体 | 布卢明顿果蝇品系中心 | 16647 | 基因型:y[1] w[67c23]; P{y[+mDint2] w[+mC]=EPgy2}Patronin[EY05252]/CyO |
| w1118 | 布卢明顿果蝇品系中心 | 3605 | |
| 配备 Airyscan 2 的蔡司 LSM 980 显微镜 | 蔡司公司 |
参考文献
- Goodson, H. V., Jonasson, E. M. Microtubules and microtubule-associated proteins. Cold Spring Harbor Perspectives in Biology. 10 (6), a022608(2018).
- Akhmanova, A., Kapitein, L. C. Mechanisms of microtubule organization in differentiated animal cells. Nature Reviews Molecular Cell Biology. 23 (8), 541-558 (2022).
- Sanchez, A. D., Feldman, J. L. Microtubule-organizing centers: from the centrosome to non-centrosomal sites. Current Opinion in Cell Biology. 44, 93-101 (2017).
- Loncarek, J., Bettencourt-Dias, M. Building the right centriole for each cell type. The Journal of Cell Biology. 217 (3), 823-835 (2018).
- Lattao, R., Kovács, L., Glover, D. M. The Centrioles, Centrosomes, Basal Bodies, and Cilia of Drosophila melanogaster. Genetics. 206 (1), 33-53 (2017).
- Manandhar, G., Schatten, H., Sutovsky, P. Centrosome reduction during gametogenesis and its significance. Biology of reproduction. 72 (1), 2-13 (2005).
- Kalbfuss, N., Gönczy, P. Towards understanding centriole elimination. Open biology. 13 (11), (2023).
- Muroyama, A., Lechler, T. Microtubule organization, dynamics and functions in differentiated cells. Development. 144 (17), 3012-3021 (2017).
- Pimenta-Marques, A., Bento, I., Lopes, C. A. M., Duarte, P., Jana, S. C., Bettencourt-Dias, M. A mechanism for the elimination of the female gamete centrosome in Drosophila melanogaster. Science. 353 (6294), aaf4866-aaf4866 (2016).
- Lasko, P. mRNA localization and translational control in Drosophila oogenesis. Cold Spring Harbor Perspectives in Biology. 4 (10), (2012).
- Lee, J., Lee, S., Chen, C., Shim, H., Kim-Ha, J. Shot regulates the microtubule reorganization required for localization of axis-determining mRNAs during oogenesis. FEBS Letters. 590 (4), 431-444 (2016).
- Nashchekin, D., Fernandes, A. R., St Johnston, D. Patronin/Shot Cortical Foci Assemble the Noncentrosomal Microtubule Array that Specifies the Drosophila Anterior-Posterior Axis. Developmental Cell. 38 (1), 61-72 (2016).
- Kuo, Y. W., Howard, J. Cutting, Amplifying, and Aligning Microtubules with Severing Enzymes. Trends in cell biology. 31 (1), 50-61 (2021).
- Parton, R. M., et al. A PAR-1–dependent orientation gradient of dynamic microtubules directs posterior cargo transport in the Drosophila oocyte. Journal of Cell Biology. 194 (1), 121-135 (2011).
- Nieuwburg, R., et al. Localised dynactin protects growing microtubules to deliver oskar mRNA to the posterior cortex of the Drosophila oocyte. eLife. 6, (2017).
- Lu, W., Lakonishok, M., Gelfand, V. I. The dynamic duo of microtubule polymerase Mini spindles/XMAP215 and cytoplasmic dynein is essential for maintaining Drosophila oocyte fate. Proceedings of the National Academy of Sciences. 120 (39), e2303376120(2023).
- Komarova, Y., et al. Mammalian end binding proteins control persistent microtubule growth. The Journal of cell biology. 184 (5), 691-706 (2009).
- Rogers, S. L., Rogers, G. C., Sharp, D. J., Vale, R. D. Drosophila EB1 is important for proper assembly, dynamics, and positioning of the mitotic spindle. The Journal of cell biology. 158 (5), 873-884 (2002).
- Rebollo, E., Sampaio, P., Januschke, J., Llamazares, S., Varmark, H., González, C. Functionally Unequal Centrosomes Drive Spindle Orientation in Asymmetrically Dividing Drosophila Neural Stem Cells. Developmental Cell. 12 (3), 467-474 (2007).
- Legent, K., Tissot, N., Guichet, A. Visualizing microtubule networks during Drosophila oogenesis using fixed and live imaging. Drosophila Oogenesis: Methods and Protocols. , 99-112 (2015).
- Phelps, C. B., Brand, A. H. Ectopic gene expression in Drosophila using GAL4 system. Methods: A Companion to Methods in Enzymology. 14 (4), 367-379 (1998).
- Weil, T. T., Parton, R. M., Davis, I. Preparing individual Drosophila egg chambers for live imaging. JoVE. (60), (2012).
- Januschke, J., Gervais, L., Gillet, L., Keryer, G., Bornens, M., Guichet, A. The centrosome-nucleus complex and microtubule organization in the Drosophila oocyte. Development. 133 (1), 129-139 (2006).
- Jia, D., Xu, Q., Xie, Q., Mio, W., Deng, W. M. Automatic stage identification of Drosophila egg chamber based on DAPI images. Scientific Reports. 6 (1), 18850(2016).
- Ershov, D., et al. TrackMate 7: integrating state-of-the-art segmentation algorithms into tracking pipelines. Nature methods. 19 (7), 829-832 (2022).
- Bellen, H. J., et al. The BDGP gene disruption project: Single transposon insertions associated with 40% of Drosophila genes. Genetics. 167 (2), 761-781 (2004).
- Goodwin, S. S., Vale, R. D. Patronin regulates the microtubule network by protecting microtubule minus ends. Cell. 143 (2), 263-274 (2010).
- Berisha, A. M., et al. Spatial activation of Kinesin-1 by Ensconsin shapes microtubule networks via ncMTOCs recruitment. bioRxiv. , Pre-print (2025).
- Gujar, M. R., et al. Patronin/CAMSAP promotes reactivation and regeneration of Drosophila quiescent neural stem cells. EMBO Reports. 24 (3), e56624(2023).
- Shannon, C. E. Communication in the Presence of Noise. Proceedings of the IRE. 37 (1), 10-21 (1949).
- van de Willige, D., Hoogenraad, C. C., Akhmanova, A., Hoogenraad choogenraad, C. C., Akhmanova aakhmanova, A. Microtubule plus-end tracking proteins in neuronal development. Cellular and Molecular Life Sciences. 73 (10), 2053-2077 (2016).
重印与许可
本文已发表
视频即将推出