利用延时成像技术,完整观察再生过程 水螅 可以对类球体进行追踪。本方案描述了类球体的生成方法。 水螅 类器官,讨论了多种固定策略,并详细说明了如何利用转盘共聚焦显微镜以及光片荧光显微镜进行长期活体成像。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
水螅 以其卓越的再生能力而闻名。值得注意的是,微小的再生片段能够 水螅 组织,称为 水螅 类球体可建立一个组织中心 从头合成一旦建立,该组织中心会引导周围组织分化为相应的口腔结构。数天内,球状体便可发育成一个虽小但结构完整的水螅体。这一过程相对较短的时间尺度使得对整个再生过程进行连续的延时成像成为可能,为研究再生的时空动态提供了独特的机会。本文中,我们展示了一套详细的操作流程,并呈现了再生过程中延时成像数据集的代表性结果 水螅 类球体。本方案包含类球体生成的详细步骤,以及用于成像的最优样品选择指南。我们讨论了适用于活体样品长期成像的固定策略,并展示了使用转盘共聚焦显微镜和光片显微镜的成像方法。此处所述原理可广泛应用于其他可通过长期成像研究动态形态发生过程的模型系统。
引言
水螅 是一种小型淡水水螅,以其卓越的再生能力而闻名。从其身体中部切下的组织片段会折叠成一个中空的球形结构,该结构由 水螅的两个上皮层,即外胚层和内胚层。在再生过程中,这些 水螅 类球体建立一个组织中心 从头合成1大约3天内,身体轴逐渐伸长,头部和足部末端的细胞发生分化。由于这一过程时间较短,整个再生过程可通过活体成像完整记录。时间序列成像数据在揭示其特征性的膨胀与收缩循环方面发挥了重要作用。 水螅 类球体在再生过程中经历的变化2由这些渗透驱动的机械振荡所产生的组织拉伸有助于原肠胚形成组织者(organizer)的定位3.
成功的长期活体成像需要快速的图像采集以避免运动伪影,同时需尽量减少光照以防止对样本造成光损伤。传统的单点扫描共聚焦显微镜无法满足这些要求。然而,目前已开发出先进的成像技术。在本实验方案中,我们将重点介绍两种广泛应用的成像模式:转盘共聚焦显微镜(spinning disk confocal microscopy, SDCM)和光片荧光显微镜(light-sheet fluorescence microscopy, LSFM)。SDCM利用一个带有针孔阵列的高速旋转圆盘4,该设计可在保持共焦特性的同时,实现样本中多个点的同步激发与检测。这种并行采集方式显著加快了成像速度,从而能够无运动干扰地捕获动态样本。此外,更短的曝光时间也显著降低了光毒性。然而,由于成像深度有限,对较大结构进行活体成像仍具挑战性。
光片显微镜(LSFM)因其使用一束薄层光来激发仅处于该平面内的荧光分子而得名5。与通过限制检测到的发射光来实现轴向分辨率的针孔不同,光片显微镜通过限制被激发的体积来建立轴向分辨率。检测物镜与光片垂直放置,以90°角收集荧光信号。这种方法使得相机可在单次曝光中采集整个被照明平面上的荧光信号,从而提高成像速度并最小化光毒性。常见的LSFM构型基于一个或两个水平放置的检测物镜,其额外优势在于可从多个角度对同一样本进行成像。若显微镜配备两个检测物镜,则可同时从两侧对样本成像6。或者,也可通过旋转样本以从多个角度获取图像。
近年来,用于研究活体Hydra的成像技术取得了显著进展,使得研究人员能够观察到与再生相关的形态变化,甚至可追踪到神经元活动的动力学过程7,8,9,10。本文在先前已发表的实验方案6,11基础上进行拓展,重点展示对再生中Hydra球状体进行活体成像的多种方法。我们描述了从小片段组织生成Hydra球状体的方法,并提供了识别正确折叠样本的指导原则。文中详细列出了三种常用于活体成像的样品固定策略的操作步骤。对于倒置显微镜(SDCM 常用的配置)成像,通常将球状体固定在琼脂糖微孔中,使其可在保持在视野范围内的同时自由移动和旋转。氟乙烯丙烯(FEP)常用于样品固定,因其折射率(1.34)接近水(1.33)。FEP 薄膜可通过热成型加工成定制的成像腔室,以满足特定实验需求。类似地,将球状体包埋于玻璃毛细管内的琼脂糖中,是光片荧光显微镜(LSFM)的标准方法。尽管该技术限制了每根毛细管中可容纳的样品数量,但有利于实现多视角检测所需的样品旋转。最后,我们演示了如何使用 SDCM 和 LSFM 进行活体成像,并讨论了根据实验目标选择合适成像技术的关键考虑因素。尽管本实验方案针对Hydra优化设计,但其基本原理广泛适用于其他依赖长期成像来研究动态形态发生过程的模式系统。
访问受限。请登录或开始试用以查看此内容。
方案
所述所有操作均按照瑞士动物研究的国家伦理准则进行。实验开始前,Hydra 应正常喂养,每周 3 次,持续至少 2 周。用于实验的 Hydra 应健康12,无性器官且不处于出芽状态。最近出芽的 Hydra(因其长度较群体中其他 Hydra 更短而可被识别)也应避免使用。
1. 水螅(Hydra)球状体的制备(图1)
- 首先准备含有解离培养基(DM;配方见下文)的培养板 表1)。实验时,DM 应置于室温下。
- 准备其余工作区域:将一个10 cm细胞培养皿的皿盖置于体视显微镜下,并加入一层液体 水螅 培养基(HM;配方见 表1)。细胞培养皿本身可用于收集残留的 水螅 组织。最后,收集 水螅 并将它们放入培养皿中,置于体视显微镜附近。
- 使用玻璃巴斯德移液管转移 水螅 将盖子置于体视显微镜下。建议将巴斯德吸管尖端弄钝,可通过快速将管尖置于火焰中实现。
- 经常地 水螅 将漂浮在培养基表面;重新吹打混匀 水螅 直到其沉入盖子底部。
- 二切 水螅 通过在体节B2和B3之间进行一次单一的直线切割(图1A,B在切割类球体时,应保持取材部位的一致性,因为这会显著影响类球体的行为。
注意:若无需在特定身体部位进行切割,可使用身体轴线中段的球状体。对于表型显著的动物(例如长有许多异位头部的动物),应选择最接近身体轴线中段的区域。 - 等待直到 水螅 切割后完全放松。如有必要,用移液器重新吹打漂浮的组织部分,使其再次下沉。
- 一旦组织切片松弛后,切端将保持肿胀状态。在肿胀结束处进行第二次切割,以获得一段环形组织(图1C)。可从每段组织环中切割出组织环 水螅 半部分。
- 从盖子上移除残留的头部和尾部末端。这些残留的身体部分可保留用于再生。一旦 水螅 在正确再生并喂养至少2周后,可将其重新用于其他实验。
- 将组织环切开,再将打开的组织环切成多个组织小块(图1D)。组织块宜切成约100–150 µm × 300–500 µm的矩形。
注意:每个环能切割成的片数是可变的。例如, 水螅 来自105菌株的菌丝通常比 水螅 来自AEP菌株。如果组织环过小而无法制备两个合适的组织样本,则修剪打开的组织环以获得一个大小合适的组织样本,并丢弃另一较小的部分。 - 将组织块转移至室温的DM中,尽量减少随组织块带入的HM量。
- 让类球体在DM中折叠3-4小时。评估类球体是否已成功折叠。成功折叠的类球体应呈圆形,并完全被外胚层覆盖(图 2A-D).
注意:如果超过一半的类球体尚未成功折叠,则将类球体在DM中继续孵育30分钟。 - 选择直径为250-350 µm的折叠状球形体(图2E- H)。避免使用含有塑料纤维等外源性物质污染的类球体。在固定前,将选定的类球体转移至HM中。
注意:如果实验将在添加补充成分的培养基(例如,药物处理)中进行,请立即将类球体转移至该培养基中。需注意,一旦类球体被转移至HM培养基中,它们将开始出现振荡现象。
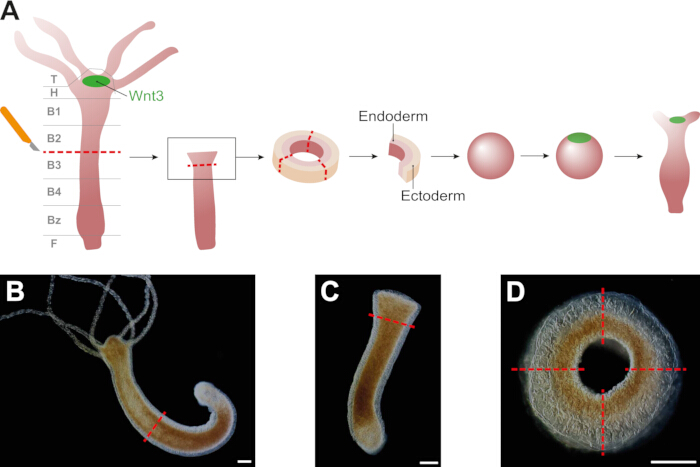
图1:Hydra 类球体的制备。(A)展示Hydra类球体制备过程的示意图。类球体通过重建Wnt3+组织中心来打破对称性,从而驱动体轴形成、伸长和分化。(B)第一次切割位于身体中段,即B2与B3区域之间的边界处,如(A)所示。(C)将所得的每一半在膨大部分下方再进行一次切割。(D)将产生的组织环切开,并根据环的大小分成2-4个组织片段。比例尺:250 µm。请点击此处查看该图的放大版本。
| 培养基 | 成分 | 储存温度 | ||
| 解离液(DM) | 3.6 mM KCl、6 mM CaCl₂、1.2 mM MgSO₄、6 mM 柠檬酸钠、6 mM 丙酮酸钠、4 mM 葡萄糖和 12.5 mM TES(pH 6.9) | 4 °C | ||
| 水螅 培养基(HM) | 1 mM CaCl₂, 0.2 mM NaHCO₃, 0.02 mM KCl, 0.02 mM MgCl₂ 和 0.2 mM Tris-HCl (pH 7.4) | 室温 | ||
表1:培养基成分与保存条件。
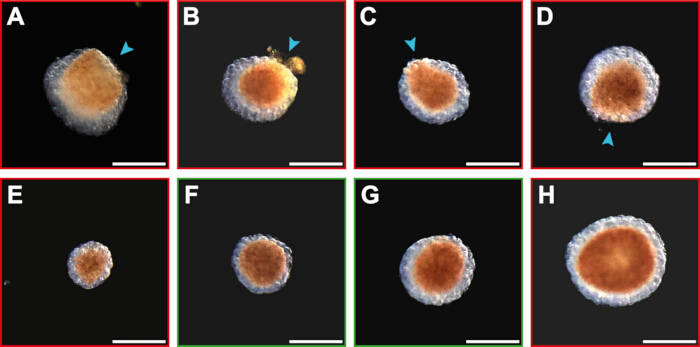
图2:展开与折叠类球体的总体概述。 (A-D)展开类球体按折叠程度从最低到几乎完全折叠排列。展开类球体的特征是外胚层未覆盖内胚层的区域(蓝色箭头所示)。 (E)过小类球体的示例。 (F-G)大小适中的折叠类球体(250–350 µm)。 (H)过大型球体的示例。 图像使用Echo公司的Revolve混合显微镜(RVL2-K),在倒置模式下,采用4.0倍物镜和透射光相机(彩色),在4孔玻璃底成像板中采集。比例尺:250 µm。 请点击此处查看该图的放大版本。
2. 装载策略
注意:显微镜的布局与实验设计共同决定了实验中最合适的装片策略。本文介绍了多种可用于不同应用的装片技术。
- 在琼脂糖孔中固定样本(图3A)
- 将1%琼脂糖溶于HM培养基中,加热至琼脂糖完全溶解。
注意:可预先配制1%琼脂糖储备液,密封保存于玻璃瓶中,最多可保存1个月。建议琼脂糖溶液加热回溶不超过5次。然而,琼脂糖孔应在实验当天制备。 - 在琼脂糖仍为液态时,用2 mm厚的琼脂糖层完全覆盖4孔玻璃底成像板的底部。
注意:其他类型的成像板也可使用,具体取决于成像系统和待测条件的数量。若实验中需添加处理试剂,应考虑琼脂糖所占体积进行浓度补偿。耐热性化学物质可直接混入琼脂糖中:先配制2%琼脂糖溶液,煮沸后与2倍浓度的目标化学物质溶液混合,再如常以1倍浓度溶液覆盖琼脂糖层。若化学物质不耐热,则根据成像板中琼脂糖体积调整其浓度,并用该溶液覆盖琼脂糖。 - 让琼脂糖充分凝固,然后在琼脂糖中制作孔洞。每个孔之间应至少保留10 mm的琼脂糖,以确保结构完整性。
- 按住移液器推杆的同时,将P1000移液器枪头垂直插入琼脂糖,直至接触成像板底部。
注意:琼脂糖孔的大小可调整,例如通过使用不同尺寸的枪头或打孔工具实现。需确保样本有足够的活动空间。 - 保持移液器垂直,并紧贴成像板底部,轻轻晃动并旋转枪头以切割琼脂糖。
- 松开移液器推杆,同时将移液器垂直缓慢向上提起,从琼脂糖中取出枪头。
- 按住移液器推杆的同时,将P1000移液器枪头垂直插入琼脂糖,直至接触成像板底部。
- 重复打孔操作,直至制备出足够数量的孔。若移液器拔出过快,或琼脂糖未完全切断即被取出,则部分琼脂糖可能残留在孔底。避免使用此类孔,因其会影响成像质量。
- 用一层薄HM培养基覆盖琼脂糖。为防止培养基蒸发,应使用带盖的成像板。
- 用P20移液器枪头轻触琼脂糖孔中的气泡,以消除可能形成的气泡。
- 将Hydra类球体逐个转移至成像板中。若类球体未立即落入孔中,可用移液器轻轻推动,引导其进入孔内。
注意:两个类球体可能落入同一孔中。此时应通过吸液方式移除两个类球体并重新固定。需注意,重复吸液可能导致类球体或琼脂糖孔受损。若发生此情况,应改用其他孔和新的类球体继续实验。 - 在倒置显微镜下对样本进行成像(图4A)。
- 将1%琼脂糖溶于HM培养基中,加热至琼脂糖完全溶解。
- 在FEP孔中固定样本(图3B)
- 制备定制玻璃移液器,用于去除FEP孔中的气泡(补充图1)。
- 将玻璃巴斯德移液器在火焰中加热,加热位置应便于手持枪头末端。持续旋转移液器以确保均匀受热。
- 当玻璃开始软化时,迅速拉伸移液器尖端,并将其移离火焰。
- 在拉细区域折断,形成直径约为0.4–0.5 mm的新枪头。迅速将枪头轻触火焰使其钝化,注意避免封堵枪头开口。
- 在移液器变宽处再次加热玻璃巴斯德移液器。无需旋转,当枪头开始下垂时立即将其移出火焰。水平持握移液器,直至其硬化成L形。
- 通过真空热成型法,将FEP膜覆盖于定制铝制模具上,形成FEP腔室6。模具尺寸可根据不同样本大小或显微镜腔室进行调整。对于Hydra类球体,直径为0.5 mm的孔最为合适。
- 将FEP膜裁剪为15 cm × 15 cm的片状。将FEP膜夹入热成型机中,加热8分钟。
- 将铝制模具置于膜下方,在真空条件下使膜贴合模具成型30秒。
- 手动从热成型的FEP膜上裁下腔室。
- 使用压缩空气清除FEP腔室中的灰尘。向FEP腔室中加入HM培养基。
注意:通常FEP腔室无盖,因此成像过程中部分培养基会蒸发。若蒸发可能造成问题,应设计可封闭的腔室。 - 使用先前制备的玻璃移液器去除孔中的气泡。用刮取动作将气泡从孔中推出。
- 当所有孔均无气泡后,将Hydra类球体逐个转移至FEP腔室中。若类球体未落入孔中,可用移液器轻推使其进入。
注意:若两个类球体落入同一孔中,应通过移液吸出并重新固定。FEP孔的设计决定了成像时应使用的显微镜类型。通常,配备一个或多个水平放置检测物镜的显微镜较为合适(图4B)。
- 制备定制玻璃移液器,用于去除FEP孔中的气泡(补充图1)。
- 在玻璃毛细管中进行琼脂糖包埋固定(图3C)
- 将1%低熔点琼脂糖溶于HM培养基中,加热至完全溶解。取1 mL液态琼脂糖转移至微量离心管中。
注意:可预先配制1%低熔点琼脂糖储备液,密封保存于玻璃瓶中,最多可保存1个月。必要时可通过维持在37 °C保持液态。但一旦加入样本,切勿再主动加热琼脂糖。此步骤可考虑在琼脂糖中添加处理试剂(参见步骤2.1.2)或荧光微珠,后者可用于多视角重建。 - 将2–4个类球体转移至琼脂糖中。将活塞杆完全插入玻璃毛细管中,确保其紧密贴合。
- 将毛细管末端插入琼脂糖中,缓慢向上拉动活塞杆,将琼脂糖吸入毛细管。先吸入少量不含类球体的琼脂糖,然后不停顿地将包埋有类球体的琼脂糖吸入毛细管。
注意:为获得最佳成像效果,各单个类球体应彼此分离,并位于琼脂糖柱底部(图3C)。
- 将1%低熔点琼脂糖溶于HM培养基中,加热至完全溶解。取1 mL液态琼脂糖转移至微量离心管中。
- 将毛细管从琼脂糖中取出,用纸巾擦拭外壁。水平持握毛细管并旋转,直至琼脂糖完全凝固;此操作有助于使类球体保持在琼脂糖柱中央。
- 将装有琼脂糖的毛细管置于HM培养基中,以保持样本湿润。使用玻璃毛细管固定的样本应采用配备一个或多个水平检测物镜的显微镜进行成像(图4C)。
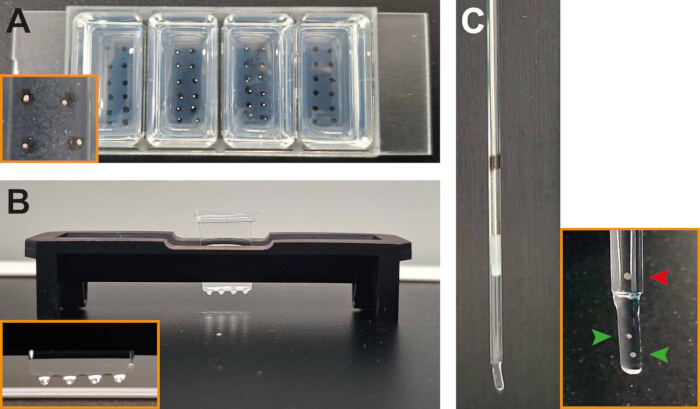
图3:Hydra 类球体活体成像的固定方法。(A)含(中间两个腔室)和不含(外侧腔室)类球体的琼脂糖孔。(B)在氟化乙烯丙烯共聚物(FEP)孔中固定的类球体。(C)包埋于琼脂糖中并固定在玻璃毛细管内的类球体。成像时,将琼脂糖柱略微推出玻璃毛细管,因此类球体应靠近琼脂糖柱底部(绿色箭头),同时保持良好分离。距离底部过远的类球体(红色箭头)无法有效成像。请点击此处查看该图的放大版本。
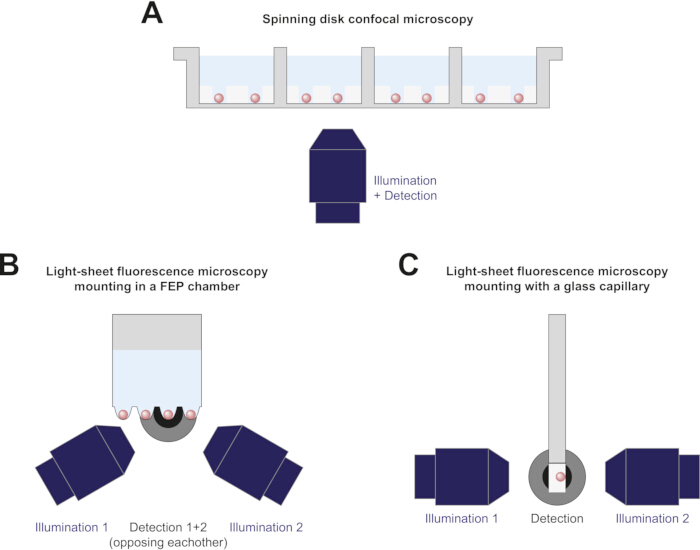
图 4:适用于所述样品固定策略的成像装置示意图。 (A)类球体固定于琼脂糖微孔中,并在倒置式旋转盘共聚焦显微镜上进行成像。(B)类球体固定于氟化乙烯丙烯共聚物(FEP)腔室中,并使用适合多孔成像的光片荧光显微镜进行成像6。为清晰起见,位于检测物镜1对面的第二个检测物镜未显示。(C)类球体包埋于琼脂糖中,并装载至玻璃毛细管内,用于采用与(B)不同配置的显微镜进行光片荧光显微成像。请点击此处查看此图的放大版本。
3. 转盘共聚焦显微镜
- 使用配备旋转盘单元的倒置显微镜对样品进行成像。将显微镜腔室的温度设置为18–21 °C。如果显微镜无法冷却,则应降低房间温度。
- 选择一个视场能够覆盖整个样品的物镜。对于置于琼脂糖孔中的样品,理想情况下视场应完全覆盖整个孔。
注意:优先使用干镜,尤其是在对多个样品进行延时成像时。 - 将样品架放入显微镜载物台上。打开透射光并设置曝光时间。
- 根据样品中存在的荧光染料,选择相应的激光波长、激光功率和曝光时间。选择尽可能低的激光功率和曝光时间组合,以降低光毒性的风险,同时确保足够高的信噪比。
注意:活体样品在成像过程中可能发生显著移动。在条件允许的情况下,应使用两个相机同步采集荧光和透射光图像,或进行双激光荧光采集。若需成像超过两个通道,应优先对需要精确重叠的通道进行同步采集。 - 定位所有样品,并将其设置为多个成像位置。对每个样品,创建一个z轴层扫,起始于最靠近物镜的焦平面,终止于首个失焦平面。Hydra 类球状体建议使用2 µm的步长。
注意:创建z轴层扫并非总是必要。例如,在观察再生中Hydra类球状体的振荡行为时,仅需对准样品赤道平面的单一层即可。当Hydra样品已完全沉降至琼脂糖孔底部,并选择了合适的物镜时,该平面应在物镜的工作距离范围内。 - 设置延时成像参数。以每10分钟成像一次,持续60–70小时,适用于完整记录Hydra类球状体的再生过程。开始成像。
4. 光片荧光显微镜
- 使用配备水平放置检测物镜的光片显微镜对样品进行成像。
- 开始前,校准由照明物镜产生的光片。将显微镜腔室温度设置为 18–21 °C。若显微镜无法冷却,则应降低室温。
- 选择一个能够在其视场内完整容纳样品的检测物镜。当样品具有活动空间时,应选择可容纳该活动范围的物镜。
- 将样品 holder 放入显微镜中。若样品固定在玻璃毛细管内,请下推活塞,直至样品完全脱离玻璃部分,以便仅通过琼脂糖进行成像(图 3C)。
- 按照第 3 节(转盘共聚焦显微镜)所述,设置透射光、荧光、多位置及延时成像的显微镜参数。
- 若显微镜未配备多个检测物镜,则应设置多视角检测模式,从多个角度采集样品信号。当单个 z 层扫描可覆盖样品超过一半区域时,两个相隔 180° 的视角已足够;也可选择使用三至五个视角。
- 设置合适的 z 层扫描步长,对于 Hydra 类球状体,建议使用 2 µm 的步长。z 层扫描范围应完全覆盖样品。当对在 FEP 微孔中自由移动的样品进行成像时,应创建覆盖整个微孔的 z 层扫描。开始成像。
访问受限。请登录或开始试用以查看此内容。
结果
我们成功生成了再生过程的长期延时数据集 水螅 使用旋转盘共聚焦显微镜(SDCM)和光片荧光显微镜(LSFM)对类球体进行成像。在两种成像系统中,类球体的再生过程均正常进行:在3天内打破对称性、伸长,并发育出触手和基足。图 5A, 图6A, 补充视频1和补充视频2)。经过长时间成像后,再生的动物变得过于活跃,开始移出焦平面,甚至完全移出视野范围(图 5A).
利用荧光标记,我们观察了Hydra再生过程中至关重要的动态细胞过程。例如,Hydra球形体能够快速重组其肌动蛋白纤维8。尽管大部分肌动蛋白结构是继承而来的,但在组织片段不同末端折叠在一起的区域,这种结构组织必须重新建立。通过共聚焦显微镜(SDCM),我们捕捉到一个具有无序肌动蛋白区域的球形体,该区域随后发生了重排与重组...
访问受限。请登录或开始试用以查看此内容。
讨论
SDCM 和 LSFM 均适用于生成再生水螅球状体的长期延时成像数据集。Hydra 样品的成像基于各自不同的光学原理,因此每种技术都具有独特的优点和局限性(表2)。当无需获得样品完整且高分辨率的图像时,优先选择 SDCM。该方法可在单次实验中同时对多个样品进行成像,因此特别适用于测试不同条件(如药物处理)的实验。此外,SDCM 数据集的处理与分析较为简便,是两种技术中更快捷且更易操作的一种。然而,当需要全面的空间信息时,LSFM 是更优的选择。LSFM 在成像对光敏感性较高的样品时也具有优势。尽管与单点扫描共聚焦显微镜相比,SDCM 已显著降低了光毒性,但仍会使整个样品反复暴露于光照之下。而 LSFM 仅激发一个极薄的光学切面,从而最大限度地减少了光照暴露和光损伤13,14。然而,LSFM 的学习曲线较陡峭。采集后的数据处理,包括多视角图像配准与融合,可能较为复杂且对计算资源要求较高。尽管在建立标准化分析流程后可显著提升工作效率,但 LSFM 通常因视场更宽、z 轴堆栈...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在利益冲突。
致谢
我们感谢FMI先进成像与显微技术平台的Laure Plantard提供的宝贵建议。本工作由诺华研究基金会资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 20×/0.8 Plan-Apochromat物镜 | Zeiss | 440640-9903-000 | 用于转盘共聚焦显微镜 |
| 20x/1.0 W Plan-Apochromat水浸物镜 | Zeiss | 421452-9700-000 | 在Zeiss Lightsheet 7中用作检测物镜 |
| FEP腔室安装用3D打印支架 | 定制 | ||
| 4孔玻璃底成像板(#1.5H) | Ibidi | 80427 | |
| 琼脂糖 | Carl Roth | 3810.4 | |
| FEP腔室用铝制模具 | 定制 | ||
| 氯化钙 | Sigma-Aldrich | C4901 | |
| 压缩空气罐 | Durable | POWERCLEAN STANDARD 400 | |
| 细胞培养皿(6 cm) | Thermo Fisher Scientific | 150288 | |
| D-(+)-葡萄糖 | Sigma-Aldrich | G8769 | |
| FEP薄膜(127 μm厚度) | Adtech Polymer Engineering | ||
| 羧基修饰FluoSpheres荧光微球(0.2 μm,深红色) | Thermo Fisher Scientific | F8807 | |
| 玻璃毛细管 | Brand | 701904 | |
| 玻璃巴斯德吸管(150 mm) | VWR | 612-1701 | |
| Hydra vulgaris | |||
| 成像软件 | Visitron | VisiView | 用于转盘共聚焦显微镜 |
| 倒置光学显微镜 | Zeiss | Axio observer 7 | 用于转盘共聚焦显微镜 |
| 光片显微镜 | Leica | Viventis Deep LS2 | |
| 光片显微镜 | Zeiss | Lightsheet 7 | |
| 低熔点琼脂糖 | Thermo Fisher Scientific | R0801 | |
| 氯化镁 | Sigma-Aldrich | M8266 | |
| 硫酸镁 | Sigma-Aldrich | M2643 | |
| 微型手术刀 | pfm medical | 200300745 | |
| 移液球 | |||
| 活塞式移液器 | Brand | 701932 | |
| 氯化钾 | Sigma-Aldrich | P9333 | |
| 安全本生灯 | INTEGRA Biosciences | FIREBOY plus | |
| sCMOS相机 | Photometrics | Prime 95B | 用于转盘共聚焦显微镜 |
| 碳酸氢钠 | Fluka Analytical, Sigma-Aldrich | 71630 | |
| 二水合柠檬酸钠 | Sigma-Aldrich | W302600 | |
| 丙酮酸钠 | Sigma-Aldrich | P2256 | |
| 转盘共聚焦扫描单元(50 μm针孔) | Yokogawa | CSU-W1 | 用于转盘共聚焦显微镜 |
| 体视显微镜 | Leica | M80 | |
| TES | Sigma-Aldrich | T1375 | |
| 热塑成型机 | 余姚金泰机械厂 | Jintai JT-18 | |
| 组织培养皿(10 cm) | VWR | 734-2321 | |
| Tris-HCl缓冲液 | Roche Diagnostics | 10812846001 |
参考文献
- Bode, P. M., Bode, H. R. Formation of pattern in regenerating tissue pieces of hydra attenuata: I. Head-body proportion regulation. Dev Biol. 78 (2), 484-496 (1980).
- Fütterer, C., Colombo, C., Jülicher, F., Ott, A. Morphogenetic oscillations during symmetry breaking of regenerating hydra vulgaris cells. Europhys Lett. 64 (1), 137(2003).
- Weevers, S. L., et al. Mechanochemical patterning localizes the organizer of a luminal epithelium. Sci Adv. 11 (26), eadu2286(2025).
- Oreopoulos, J., Berman, R., Browne, M. Chapter 9 - Spinning-disk confocal microscopy: present technology and future trends. Meth Cell Biol. 123, 153-175 (2014).
- Stelzer, E. H. K., et al. Light sheet fluorescence microscopy. Nat Rev Meth Primers. 1 (1), 73(2021).
- Moos, F., et al. Open-top multisample dual-view light-sheet microscope for live imaging of large multicellular systems. Nat Meth. 21 (5), 798-803 (2024).
- Soriano, J., Colombo, C., Ott, A. Hydra molecular network reaches criticality at the symmetry-breaking axis-defining moment. Phys Rev Lett. 97 (25), 258102(2006).
- Livshits, A., Shani-Zerbib, L., Maroudas-Sacks, Y., Braun, E., Keren, K. Structural inheritance of the actin cytoskeletal organization determines the body axis in regenerating hydra. Cell Rep. 18 (6), 1410-1421 (2017).
- Hanson, A., et al. Automatic monitoring of neural activity with single-cell resolution in behaving hydra. Sc Rep. 14 (1), 5083(2024).
- Escobar, A., et al. Terminal differentiation precedes functional circuit integration in the peduncle neurons in regenerating hydra vulgaris. Neural Dev. 19 (1), 18(2024).
- Ferenc, J., Tsiairis, C. D. Studying Mechanical Oscillations During Whole-Body Regeneration in Hydra. Whole-Body Regenerat. 2450, 619-633 (2022).
- Bossert, P., Galliot, B. How to use hydra as a model system to teach biology in the classroom. Int J Dev Biol. 56 (6-8), 637-652 (2012).
- Jemielita, M., Taormina, M. J., Delaurier, A., Kimmel, C. B., Parthasarathy, R. Comparing phototoxicity during the development of a zebrafish craniofacial bone using confocal and light sheet fluorescence microscopy techniques. J Biophotonics. 6 (11-12), 920-928 (2013).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 1700003(2017).
- Ravichandran, Y., Vogg, M., Kruse, K., Pearce, D. J. G., Roux, A. Topology changes of hydra define actin orientation defects as organizers of morphogenesis. Sci Adv. 11 (3), eadr9855(2025).
- Maroudas-Sacks, Y., Garion, L., Suganthan, S., Popović, M., Keren, K. Confinement modulates axial patterning in regenerating hydra. PRX Life. 2 (4), 043007(2024).
- Bailles, A., et al. Anisotropic stretch biases the self-organization of actin fibers in multicellular hydra aggregates. Proc Natl Acad Sci. 122 (32), e2423437122(2025).
- Luu, P., Fraser, S. E., Schneider, F. More than double the fun with two-photon excitation microscopy. Comm Biol. 7 (1), 364(2024).
访问受限。请登录或开始试用以查看此内容。
重印与许可
