本方案通过组织解离、连续过滤、预贴壁及特定培养条件,提供了一种从成年和新生小鼠骨骼肌中分离和富集原代成肌细胞的标准化方法,可用于建立和维持由卫星细胞衍生的成肌细胞培养体系,以支持后续实验应用。
本文内容
摘要
摘要
骨骼肌的再生与生长依赖于卫星细胞,即肌肉组织中的常驻干细胞。目前,这些细胞作为 体外 最能准确代表天然成肌过程的模型。然而,卫星细胞的分离在技术上具有挑战性,因为它们在骨骼肌中数量稀少,且分离得到的细胞群体通常具有异质性。本研究中,我们描述了一种标准化的方法,用于从成年和新生小鼠的骨骼肌中分离和富集原代成肌细胞。该方案包括肌肉解剖、酶解离、连续过滤、预贴壁步骤以减少非成肌细胞,以及明确的培养条件,用于建立由卫星细胞衍生的成肌细胞培养体系。本方案对建立成功培养所需的时间安排、操作处理及关键步骤提供了实用指导。采用此方案获得的原代成肌细胞可用于多种下游应用,包括成肌过程研究、功能分析、遗传操作、活细胞成像或药物测试。这些细胞能够可靠地融合并成熟,非常适合用于研究成肌细胞融合、肌肉发育及再生机制 恢复骨骼肌功能及其代谢。
引言
骨骼肌在受到任何损伤后其再生能力从根本上依赖于一类特殊的成肌前体细胞群体,即位于肌纤维周围的卫星细胞(SCs),因其沿肌纤维呈卫星状分布而得名。这些细胞定位于肌纤维基底膜下方,并附着于多核肌纤维上1,2,3。SCs的特征是表达配对盒蛋白Pax7,该蛋白在多个物种中高度保守,包括人类、小鼠、猴子和猪。Pax7是首次被鉴定出可在静息态和激活态下均被检测到的SC标志物,对SC的发育和存活至关重要4。在正常情况下,SCs处于静息状态(细胞周期的G0期),表现为代谢活性低且转录不活跃5,6。当肌肉受到损伤或机械应力刺激时,SCs被激活,重新进入细胞周期,数量扩增,并分化以形成新的肌纤维或修复受损肌纤维7,8,9。在此过程中,部分SCs必须通过自我更新回到静息状态(Pax7⁺),以维持干细胞库的长期完整性。自我更新可通过不对称分裂实现,其中一个子细胞保留干细胞样特性,而另一个子细胞则成为定向成肌祖细胞;也可通过对称分裂实现,此时两个子细胞要么均保持干细胞样身份,要么均发生分化,具体取决于生理状态和微环境信号10,11,12。
SCs 在肌肉再生中发挥着至关重要的作用,使其成为骨骼肌生物学、再生医学及肌营养不良症研究的关键焦点。深入了解这些细胞的行为与功能,不仅有助于阐明肌肉修复的基本机制,也为开发治疗肌肉萎缩性疾病和促进再生的疗法奠定了基础。
从肌肉组织中分离SCs是至关重要的一步 体外 研究,从而能够探究其分子特征、增殖潜能、分化路径以及对各种刺激的响应。然而,由于肌肉组织结构复杂、卫星细胞相对于其他细胞类型的丰度较低,以及在分离过程中需要维持其活力和干性,该过程存在多项技术挑战。
目前,分离SCs主要有三种技术:预贴壁法、荧光激活细胞分选(FACS)和磁激活细胞分选(MACS)。这些方法在纯度、得率、细胞活力以及SCs的保存方面各有优缺点。
预铺板法利用了肌肉来源细胞之间黏附特性的差异,其中卫星细胞(SCs)的黏附性最低。在对骨骼肌进行酶消化后,将获得的异质性细胞悬液接种至通常包被有I型胶原的培养板中。在37°C孵育1–24小时(根据具体方案而定)后,收集未贴壁的细胞,并转移至Matrigel包被的培养板中进行进一步培养13,14,15,16。所得细胞群体通常包含卫星细胞和成纤维细胞,以及少量脂肪细胞和内皮细胞17,18。对于从小鼠成年个体分离的卫星细胞,每24–48 小时重复一次预铺板过程,持续一周;对于新生小鼠,则可持续两周,可提高细胞群体的纯度。尽管该方法成本较低且技术简单,但劳动强度大,且常导致培养物组成不均一。预铺板法适用于不具备流式细胞分选(FACS)或磁珠分选(MACS)设备的实验室,提供了一种简单富集卫星细胞的方法,同时保持细胞活力和干细胞样特性。因此,通常建议将该方法与其他纯化技术联合使用,以提高细胞群体的整体纯度。在本方案中,我们通过使用胶原蛋白包被的培养板并根据实验模型调整孵育时间,优化了预铺板步骤。这种差异性黏附可加速去除成纤维细胞,缩短预铺板周期,减少生长因子的使用,并降低分离过程中的操作时间和细胞应激。
FACS 是一种基于特定表面标志物(α7-整合素、CD34、CD29、β1-整合素、CXCR4)表达来分离卫星细胞的常用方法,能够实现高纯度和高特异性19,20。然而,该方法常因技术复杂、抗体成本高以及需要专用设备而具有挑战性。此外,分选过程中施加的机械和生化应力可能影响细胞活力。制备单细胞悬液的步骤可能导致显著的细胞损失,而依赖特定荧光标记物可能无法完整反映卫星细胞的异质性。同时,用于细胞解离的酶消化过程可能降解关键的表面抗原,从而影响卫星细胞的准确识别与分离,并可能损害成肌细胞的功能21,22。FACS 适用于在短时间内获得高纯度细胞群体,尤其在需要精确表型分辨时具有优势。然而,由于分选过程中的机械和生化应力,该方法在需要维持细胞完整性和活性的情况下不太适用,也不适合缺乏专用设备的实验室。
另一方面,MACS 是一种通过将磁珠与针对成纤维细胞和普通免疫细胞特定表面标志物的抗体偶联,结合到细胞表面,然后利用磁场将其与不需要的细胞群体分离,从而分离卫星细胞的技术。从固定相中洗脱的阴性筛选组分即为感兴趣的卫星细胞群体。MACS 能够以相对较高的纯度和可扩展性有效富集卫星细胞,且与 FACS 相比,对专用设备和技术专长的要求较低。此外,其温和的磁性分离过程可保持细胞完整性,适用于细胞培养、基因表达分析和移植研究等下游应用。然而,MACS 在需要多种标志物时存在纯度较低、可能发生非特异性结合或磁珠残留,以及缺乏标志物表达的定量数据等局限性23,24,25。
尽管已有骨骼肌细胞分离的实验方案,但获得可重复且成分均一的原代培养细胞仍然具有挑战性,尤其是由于发育阶段和组织特异性的差异所致。相比于成年肌肉,从新生肌肉中分离肌卫星细胞(SCs)的研究较少,已发表的方案相对有限,且其中许多方案需根据具体的技术条件和实验目的进一步优化26,27,28调整参数(包括酶浓度、消化时间以及培养条件)通常对于不同发育阶段(尤其是新生儿阶段)的卫星细胞分离至关重要,以实现最大产量、存活率和纯度。本文展示了一种优化的方案,用于从成年及新生小鼠(出生后第6至14天,P6–P14)骨骼肌中分离卫星细胞,该方案结合了预贴壁法与磁珠分选法(MACS),并对预贴壁的时间和培养基成分进行了优化调整。该方案提供 在不同发育阶段均能获得可重复的细胞群体,分离得到的细胞具有高纯度和高活性。免疫染色结果显示Pax7阳性细胞的比例+ 细胞纯度通常超过97%。此外,这些成肌细胞具有较强的分化潜能,在将生长培养基更换为分化培养基后,可高效形成多核的肌管。可通过相差显微镜观察已分化的肌管,或通过肌球蛋白重链(MHC)免疫染色进行验证,MHC是成熟肌纤维的标志性分子。
方案
本研究使用了 C57BL/6J × STOCK Tyrcch Bmp5se+/+ Myo6sv/J 基因型的成年雄性小鼠(3 月龄),以及 C57BL/6J x flox/MK5/flox 基因型的新生雄性和雌性小鼠(出生后第 6–14 天,P6–P14)。小鼠饲养和繁殖于波兰实验生物学奈恩基研究所(PAS)动物实验中心的无病原体环境中。实验期间,小鼠均给予常规啮齿类动物饮食。动物护理和安乐死操作均遵循在波兰实施的欧洲共同体理事会指令(2015 年 1 月 15 日关于实验动物使用的法案)。由于本研究仅使用动物组织且未对动物造成痛苦,因此无需伦理委员会批准。所有操作均在实验生物学奈恩基研究所负责人的监督与授权下进行。获得的内部批准编号为:410P/2021/IBD 和 487W/2022/IBD。实验中,成年小鼠分析其后肢肌肉:腓肠肌、比目鱼肌、趾长伸肌和胫骨前肌;新生小鼠则检测其整个后肢以及前肢的三头肌。
从小鼠后肢肌肉中分离和纯化原代成肌细胞的操作流程示意图见图1。
本研究中所用试剂和设备的信息见材料表。
1. 肌肉解剖
- 根据本机构批准的IACUC指南实施小鼠安乐死。
- 在生物安全柜外解剖后肢肌肉。用70%乙醇喷洒后肢,并将小鼠置于仰卧位。
注意:此步骤无需无菌操作,但须使用经高压灭菌的解剖器械,并用70%乙醇进行表面去污。 - 肌肉采集
- 使用高压灭菌的剪刀小心去除双侧后肢的皮肤,以暴露下方的肌肉组织。使用无菌剪刀和镊子在背部皮肤做切口,轻轻剥离皮肤,充分暴露后肢肌肉。去除所有可见的脂肪组织和肌腱,确保组织清洁。
- 小心剥离包裹肌肉 belly 的筋膜,以获得更均一的分离效果并减少污染。继续分离组织,采集一侧后肢的肌肉。立即将肌肉转移至含有1×磷酸盐缓冲液(含1%青霉素-链霉素,PBS + P/S)的培养皿中。对另一侧后肢重复上述解剖操作,并将肌肉放入第二个含有PBS + P/S的培养皿中。
注意:新生小鼠的最佳年龄范围为出生后第6天(P6)至出生后第14天(P14)。P6之前,肌肉分离不够精确,可能因周围组织污染而降低培养均一性。从P6开始,从起点到止点肌腱的肌肉 belly 分离更为干净,从而提高外植体的整体质量。对于新生小鼠,可将多只动物的肌肉合并至一个培养皿中。自此之后,所有操作均须在生物安全柜内无菌条件下进行,除非另有说明,均在室温(RT)下操作。
- 将培养皿外壁用70%乙醇喷洒后,转移至无菌生物安全柜中。使用另一对高压灭菌的镊子,将肌肉从培养皿转移至6孔板的第一孔(含PBS + P/S),然后加入2–3滴碘伏(100 mg/mL)对组织进行去污。轻轻震荡不超过10秒后,迅速将肌肉依次转移至第二和第三孔(均含新鲜PBS + P/S),彻底冲洗掉碘伏,并清除残留毛发、结缔组织或其他碎屑。
注意:肌肉不应长时间暴露于碘伏中,因其对细胞具有毒性。
2. 肌肉消化
- 使用另一把已灭菌的镊子,将清洗后的肌肉转移至两个1.5 mL离心管中(每条后肢肌肉群对应一管)。用已灭菌的剪刀将组织充分剪碎,直至肌肉成为大小均匀、约1–2 mm的小碎片,以确保后续酶消化过程中组织暴露均匀。
- 胶原酶消化
- 将剪碎的肌肉转移至组织解离管中,每管加入含0.2%胶原酶的杜氏改良伊格尔培养基(DMEM),该溶液需经0.2 µm孔径滤器过滤。每条后肢肌肉群使用一个解离管,维持每3 mL胶原酶溶液对应500 mg组织的比例。
注意:胶原酶是一种蛋白水解酶,若吸入其粉末可能引起皮肤和眼睛刺激以及呼吸道致敏。操作时应在化学通风橱中进行,并佩戴适当的个人防护装备。
此阶段对肌肉组织进行充分剪碎对于获得最佳成肌细胞产量至关重要。然而,若总组织质量超过500 mg,应按比例增加胶原酶用量,因为过量组织可能会影响下述酶浓度下的消化效率。 - 将样品在37 °C孵育30分钟,以启动酶消化过程。
- 将剪碎的肌肉转移至组织解离管中,每管加入含0.2%胶原酶的杜氏改良伊格尔培养基(DMEM),该溶液需经0.2 µm孔径滤器过滤。每条后肢肌肉群使用一个解离管,维持每3 mL胶原酶溶液对应500 mg组织的比例。
- 使用机械组织解离仪,并选择m_muscle_01程序(指解离仪上特定的、预设且优化的程序,通过可控的机械振荡促进酶消化),以在保持细胞活力的同时促进组织解离。重复运行该程序两次,以增强组织的机械性破碎。
- 若无组织解离仪,可将剪碎的肌肉反复通过20 G针头数次,直至获得无大块组织碎片的均一悬液。
或者,可将剪碎的肌肉转移至15 mL锥形管中,并加入含0.2%胶原酶的溶液。
- 若无组织解离仪,可将剪碎的肌肉反复通过20 G针头数次,直至获得无大块组织碎片的均一悬液。
- 再次将样品在37 °C孵育额外30分钟,以完成消化过程。
- 重复步骤2.3一次,以确保残余组织得到充分的机械解离。
注意:在此阶段应仔细观察肌肉消化情况。组织应几乎完全解离,仅剩极少量可见碎片,消化液应呈现浑浊状态。过度孵育会损伤细胞。
3. 细胞过滤
- 将一个 100 µm 细胞滤网放置在 50 mL 锥形管上方。用 1 mL 预热至 37 °C 的中和培养基(NM)润湿滤网,该培养基为含高糖 DMEM、10% 胎牛血清(FBS)和 1% 青霉素/链霉素(P/S)的溶液。
- 将消化后的肌肉悬液倒入已润湿的 100 µm 滤网上。再用额外 1 mL NM 冲洗滤网,以去除残留的组织碎片。
- 在另一个新的 50 mL 锥形管上放置一个 70 µm 细胞滤网,并用 1 mL NM 培养基润湿。将来自 100 µm 滤网的滤液通过已润湿的 70 µm 滤网,以进一步去除较大的浸润细胞(包括巨噬细胞)。用 1 mL NM 冲洗 70 µm 滤网,以回收残留细胞。
- 在另一个新的 50 mL 锥形管上放置一个 40 µm 细胞滤网,并将细胞混合液通过已润湿的 40 µm 滤网。用 1 mL NM 冲洗 40 µm 滤网,以回收任何残留的细胞。
- 在 15 mL 锥形管上安装一个 30 µm 细胞滤网,并用 1 mL NM 预先润湿。将来自 40 µm 滤网的滤液通过已润湿的 30 µm 滤网,以进一步纯化细胞悬液。用 1 mL NM 清洗 30 µm 滤网,以最大程度回收细胞。
- 将收集的细胞悬液在室温下以 300 × g 离心 15 分钟。确认管底可见白色细胞沉淀。在无菌生物安全柜中操作,小心移除并弃去上清液(消化液)。
注意:离心后,可将细胞沉淀重悬于成肌细胞增殖培养基(MPM)中,随后直接进入第 5 节进行成肌细胞富集;也可选择性地进行磁珠激活细胞分选(MACS,见下文),以进一步提高成肌细胞群体的纯度。
4. (可选)磁珠激活细胞分选
- 将步骤 3.6 中获得的细胞沉淀重悬于新鲜配制的MACS分选缓冲液中,该缓冲液由1× PBS(pH 7.2)、0.5% FBS和2 mM EDTA组成。每克原始组织使用80 µL缓冲液。
注意:整个操作过程中应将MACS分选缓冲液保持在2–8 °C。 - 每至多1 g组织加入20 µL用于卫星细胞分离的磁性标记试剂。
注意:对于小于1 g的样品,仍使用与1 g组织相对应的试剂体积;对于大于1 g的样品,所有试剂体积按比例增加(例如,对于2 g组织,使用2倍试剂体积)。 - 轻轻混匀样品以确保标记均匀,并在冰上于2–8 °C孵育15分钟。
- 孵育结束后,对于来自不超过5 g组织的样品,用MACS分选缓冲液调节总体积至500 µL。对于更大质量的组织,将悬液等分至多个离心管中,以保持最佳分离效率。
- 磁性分离与卫星细胞收集
注意:使用磁性细胞分离系统进行磁性分离,具体操作按照制造商说明书进行。- 将分离柱置于磁性分离器的磁场中,用3 mL分选缓冲液冲洗分离柱,以在加样前平衡柱子。
- 将标记后的细胞悬液加至柱上,并收集流出液,其中含有富集的卫星细胞群体。
- 用两份连续的1 mL分选缓冲液洗涤柱子。每次加入新的缓冲液前需等待柱内液体完全流尽。收集穿柱的细胞,并与步骤 4.5.3 的流出液合并。
- 将合并后的细胞悬液在室温下以300 × g 离心10分钟,使分离得到的卫星细胞在MPM中形成沉淀。
5. 成肌细胞纯化(预铺板步骤)
- 准备胶原蛋白包被的培养板。
- 将 I 型大鼠胶原蛋白用 20 mM 乙酸(溶于无菌蒸馏水)稀释至 50 的工作浓度 µg/mL,并加入培养容器中。在室温下孵育1 h。
注意:约 5 mL 的 50 µg/mL 胶原蛋白用于包被表面积为 100 mm 的培养皿 ≈80 cm2. - 小心吸去培养板中的溶液。
- 用无菌的 1× PBS 以等体积彻底冲洗培养板 3 次,以清除残留的酸。
注意:培养板可立即使用,或在2-8℃下风干并储存 °C,直至需要时使用。
- 将 I 型大鼠胶原蛋白用 20 mM 乙酸(溶于无菌蒸馏水)稀释至 50 的工作浓度 µg/mL,并加入培养容器中。在室温下孵育1 h。
- 重悬第2步中获得的细胞沉淀 3.6 或步骤 4.5.4 在 37℃ 预热的 10 mL 成肌细胞增殖培养基(MPM)中 °C.
- 制备用于成年小鼠成肌细胞的 MPM 培养基,包含高糖 DMEM、20% FBS、10% 马血清(HS)、0.5% 鸡胚提取物(CEE)和 20 ng/mL 溶解于无菌蒸馏水中的碱性成纤维细胞生长因子(bFGF)2O₂,以及含F10培养基的新生小鼠成肌细胞培养体系中添加1% P/S或MPM(F10培养基有利于新生小鼠细胞的可控和选择性生长,因其成纤维细胞比例较高),20% FBS,10% HS,0.5% CEE,20 ng/mL bFGF,和1% P/S。
注意:将 bFGF 直接加入培养基中,使其终浓度为 20 ng/mL。bFGF 对于维持成肌细胞的未分化状态及其增殖至关重要。29.
CEE 还可促进成肌细胞的迁移和增殖,并在维持成肌细胞健康培养中发挥重要作用,防止成肌细胞自发融合。14,30,31. - 当培养物达到更高的成肌纯度(通常经过三次传代后),可将新生小鼠成肌细胞的培养基更换为MPM,即高糖DMEM与F10按1:1比例混合的培养基,随后再过渡至用于成年小鼠成肌细胞的标准MPM配方。
注意:必须提前验证初始纯度,因为培养基的更换将消除成肌细胞相对于成纤维细胞的选择性生长优势。 - 预铺板细胞。
- 第一次预培养
- 成年肌母细胞:将细胞接种于胶原蛋白包被的培养板中。将培养板置于37℃培养箱中。 °C, CO2 孵箱中孵育 24 h.
- 新生肌母细胞:将细胞接种于胶原蛋白包被的培养皿中,置于37°C、5% CO2培养箱中培养24小时。使用补充F10培养基的MPM培养基维持培养(见第X节)。 5.4),除非另有说明。
注意:此阶段显微镜下可见肌肉碎片与细胞的混合物(图2A).
与成年成纤维细胞相比,新生小鼠成纤维细胞表现出更高的增殖能力、增强的细胞骨架可塑性(以较不僵硬的肌动蛋白-肌球蛋白网络和更动态的黏着斑周转为特征),并具有独特的整合素表达谱32,33这些特性使得细胞即使在无外源性细胞外基质(如胶原蛋白)包被的情况下,也能高效黏附于培养表面。因此,对于新生小鼠肌成肌细胞,可使用胶原蛋白包被的培养板替代标准的未包被组织培养塑料皿,但可能需要增加预培养板的次数。
- 第二次预铺板
- 成年肌母细胞:使用 10 mL 血清移液管,将仍悬浮于 MPM 中的细胞轻柔转移至预热至 37°C 的胶原包被培养皿中 °C. 用 1–2 mL 温热的 MPM 冲洗原始培养板,以回收任何残留的未贴壁细胞。将培养板置于 37 °C,CO2 在培养箱中孵育 6-8 小时。
注意:必须通过相差显微镜仔细监测该过程,以确保收集并转移所有非贴壁细胞,这些细胞代表了成肌细胞的完整谱系至新的培养皿中。 - 新生小鼠成肌细胞:在胶原蛋白包被的培养皿上再次进行第二次预铺板,持续16小时,并用1–2 mL温热的MPM F10冲洗原始培养皿,以回收任何残留的未贴壁细胞。
注意:较大的细胞(主要为成纤维细胞)将保持附着在胶原蛋白包被的培养板底部图 2B 以及 图3).
- 成年肌母细胞:使用 10 mL 血清移液管,将仍悬浮于 MPM 中的细胞轻柔转移至预热至 37°C 的胶原包被培养皿中 °C. 用 1–2 mL 温热的 MPM 冲洗原始培养板,以回收任何残留的未贴壁细胞。将培养板置于 37 °C,CO2 在培养箱中孵育 6-8 小时。
- 第一次预培养
- 在Matrigel包被的培养板中接种细胞
- 通过将 Matrigel 用冷 DMEM 稀释,制备 10% Matrigel 溶液。使用分液器吸头均匀涂布培养板表面,直至完全覆盖。于 37 °C 孵育,使 Matrigel 聚合 °15 分钟,C
注意:Matrigel 包被应在冰上进行,因为它在室温下会迅速聚合。 - 将未贴壁的细胞从胶原蛋白包被的培养板转移至Matrigel包被的培养板中。用1–2 mL温热的MPM冲洗胶原蛋白包被的培养板,以回收残留的细胞。将培养板置于CO2 37℃培养箱 °37°C 下 72 小时
- 对于成年肌母细胞,在培养72小时后确认培养物中主要含有贴壁的、体积小且呈圆形的肌母细胞(图2C可能会存在少量大型的三角形成纤维细胞,但丰度非常低。如果在Matrigel上接种后仍有大量成纤维细胞存在,可根据成纤维细胞的数量重复2-6小时的预铺板步骤。
- 对于新生小鼠成肌细胞,需进行额外的传代培养,并结合预铺板步骤以去除成纤维细胞,从而从初始的异质性培养物中逐步富集成肌细胞群体。
- 通过将 Matrigel 用冷 DMEM 稀释,制备 10% Matrigel 溶液。使用分液器吸头均匀涂布培养板表面,直至完全覆盖。于 37 °C 孵育,使 Matrigel 聚合 °15 分钟,C
6. 成肌细胞的维持与扩增
- 将纯化的成肌细胞在MPM培养基中培养,每隔一天更换一次培养基。
注意:避免细胞融合度过高(超过60–70%),因为密度过高可能引发成肌细胞的自发融合并启动分化过程。 - 如有需要,可将细胞传代至多个涂有10% Matrigel的培养板中以扩增培养。
注意:成年小鼠成肌细胞通常建议传代2–3次,因为进一步传代会增加细胞拉长和自发融合的风险;而新生小鼠成肌细胞通常可传代5–6次而不会出现明显的自发融合现象。- 为扩增成肌细胞群体,从第3代开始,当成纤维细胞污染已显著减少时,使用高糖DMEM与F10按1:1混合的MPM培养基。至第4代时,培养物通常已基本为纯化的成肌细胞群体;此时对新生小鼠成肌细胞切换回MPM培养基。
7. 成肌细胞分化
- 在显微镜下观察细胞,确认细胞形态相对均一、体积较小、呈圆形或纺锤形,处于活跃增殖状态且未过度拥挤。此状态表明细胞培养已适合进行分化。
- 根据第 5.6.1 节所述方法,使用 10% Matrigel 包被适合实验设计的组织培养表面。
注:尽管玻璃表面的成像质量更优,但成肌细胞在玻璃培养腔室中的贴附性和存活率较低,可能由于 Matrigel 在玻璃上的蛋白吸附能力低于组织培养级塑料34。 - 加入 2 mL 0.25% 胰蛋白酶-EDTA 溶液消化细胞,并在 37 °C 的 CO₂ 培养箱中孵育 2–5 分钟。
- 在显微镜下检查培养物,确认所有细胞均已脱壁。一旦细胞完全脱落,立即加入 2 mL 中和培养基(见第 3.1 节)。
- 将细胞悬液在室温下以 300 × g 离心 10 分钟,以收集细胞沉淀。
- 重悬细胞,并将原代成肌细胞接种至 Matrigel 包被的培养板中,在 CO₂ 培养箱中 37 °C 培养 24 h。
- 次日,将成肌细胞增殖培养基(MPM)更换为成肌细胞分化培养基(MDM),其中包含高糖 DMEM、5% 马血清(HS)和 1% 青霉素-链霉素(P/S)。
注:为获得高质量的肌管形成,需确保成肌细胞在更换为分化培养基前达到 80–90% 的汇合度。若次日尚未达到理想汇合度,应继续培养至达到最佳密度。
8. 成肌细胞和肌管的免疫染色
- 用 1× PBS 洗涤细胞 2 次,以去除残留的培养基。
- 在室温下用含 4% 多聚甲醛(PFA)的 1× PBS 固定细胞 15 分钟。除非另有说明,后续步骤均在室温下进行。
注意:PFA 具有毒性。操作 PFA 溶液时务必在化学通风橱中进行,并佩戴手套、实验服和护目镜。避免与皮肤或眼睛直接接触。含 PFA 的废弃物应按照机构的化学品和生物危害物管理规定进行处置。 - 将固定后的细胞在含 50 mM 氯化铵(NH₄Cl)的溶液中孵育 30 分钟(建议置于摇床上,50–100 rpm),以淬灭游离醛基,减少后续染色步骤中的非特异性结合。
- 用 1× PBS 在室温下洗涤细胞 3 次,每次 5 分钟(置于摇床上,50–100 rpm)。
- 用含 0.2% Triton X-100 的 1× PBS 对细胞进行通透处理,持续 10 分钟(置于摇床上)。
- 用 1× PBS 洗涤细胞 2–3 次,每次 5 分钟(置于摇床上)。
- 在封闭液(含 0.02% Triton X-100 的 1× PBS 中加入 2% 马血清)中孵育细胞 1.5 小时(置于摇床上,50–100 rpm),以阻断非特异性抗体结合位点。
- 在 4 °C 下,将细胞与用封闭液稀释的一抗溶液(Pax7 - 1:100;MHC - 1:50)共同孵育过夜(置于摇床上,50–100 rpm)。
- 用含 0.02% Triton X-100 的 1× PBS 洗涤细胞 3 次,每次 10–15 分钟(置于摇床上,50–100 rpm)。
- 在室温下,将细胞与用封闭液按 1:250 稀释的合适二抗孵育 1–1.5 小时(置于摇床上,并避光)。
- 用含 0.02% Triton X-100 的 1× PBS 洗涤细胞 3 次,每次 10–15 分钟(置于摇床上,50–100 rpm)。
- 根据实验设计,使用适当的封片剂和盖玻片对样本进行封片。
- 如需长期保存,将封片后的样本置于 4 °C 避光保存。
结果
成功执行本方案可获得高活力、形态特征明显的原代成肌细胞培养物,这些细胞来源于成年和新生小鼠的后肢肌肉。通过结合使用孔径依次减小的细胞筛进行连续过滤,并可选择性地辅以磁珠激活细胞分选(MACS),本方案能够分离出高度纯化的成肌细胞群体。为进一步提高分离所得Pax7+细胞的纯度,本方案引入了优化的预贴壁步骤。经过该步骤(方案第5节)后,大多数成纤维细胞及其他非成肌源性细胞仍贴附于初始的胶原包被表面(图3),而成肌细胞则保留在悬浮状态,并随后贴附至Matrigel包被的培养板上(图2B)。本方案在先前已证实有效的成肌细胞增殖培养基(MPM)组分基础上进行了优化,包括高浓度血清、添加bFGF和鸡胚提取物(CEE),以及使用Matrigel包被;该配方经我们优化后,显著增强了成肌细胞相对于非成肌源性细胞的增殖优势14,30,31,35。因此,在MPM中培养72小时内,应以核质比高、形态呈小圆形至纺锤形的成肌细胞为主(图2C)。可能仍有少量大而扁平的成纤维样细胞残留,但通常占培养细胞总数的比例低于3%。
采用本方案在分离后72小时的细胞产量取决于供体动物的年龄。从一只成年小鼠双侧后肢的四块肌肉(腓肠肌、比目鱼肌、胫骨前肌和趾长伸肌)分离得到的成肌细胞,每只动物典型的细胞产量约为2-4 × 10⁶个细胞。从成年(**p < 0.01)和新生小鼠(***p < 0.0001)分离的细胞中,超过97%为成肌前体细胞,由Pax7+表达水平确定(图4A、B),表明成肌前体细胞得到了高度富集。基于Pax7的纯度评估是在完成全部富集流程后进行的,包括预贴壁、磁珠分选(MACS)和/或扩增步骤之后,而非在早期贴壁的预贴板组分中进行。
无论是否使用MACS,新生小鼠成肌细胞均能达到高纯度(图4A、B),表明该方案适用于技术水平不同的实验室。然而,若省略MACS步骤,则需要增加预贴壁步骤以获得相当的纯度。
对于成年肌母细胞,未对磁珠分选(MACS)分选后的细胞群与未分选细胞群进行直接的统计学比较。然而,鉴于其增殖能力较低且更倾向于分化,预期MACS分选相较于仅使用预贴壁法能更有效地提高细胞富集效果。
当成肌细胞在达到80-90%融合度后转入分化培养基(MDM),可在48-72小时内高效融合,形成细长的多核肌管。这些肌管可通过相差显微镜清晰观察(图2D),并可通过肌球蛋白重链(MHC)免疫染色进一步确认(图5A,B)。分化后肌管中存在有序排列的肌节结构(图5B),表明在该培养条件下,细胞发生了符合成肌分化的结构成熟。
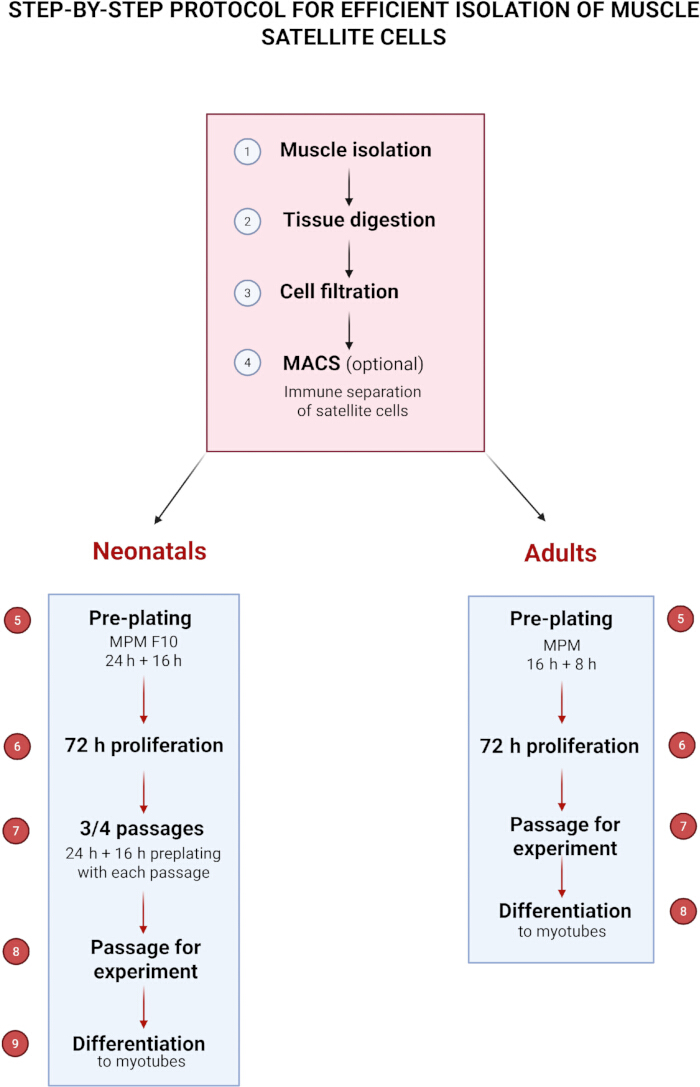
图1:高效分离肌肉卫星细胞的逐步操作方案。 请点击此处查看此图的放大版本。
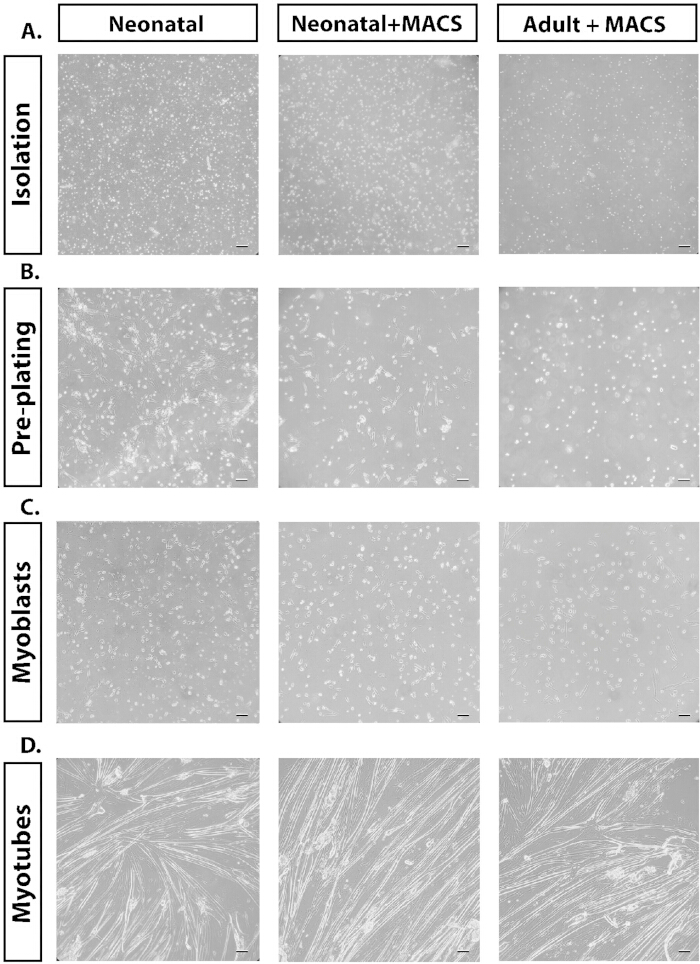
图2:文中讨论的不同方法的代表性相差显微镜图像。(A)消化后细胞分离的相差显微镜图像(20倍)。(B)培养物预铺板时贴壁的成纤维细胞与未贴壁的成肌细胞的相差显微镜图像(20倍)。(C)贴壁后增殖中的成肌细胞的相差显微镜图像(20倍)。(D)已分化的肌管细胞的相差显微镜图像(20倍)。比例尺 = 50 µm。请点击此处查看该图的放大版本。
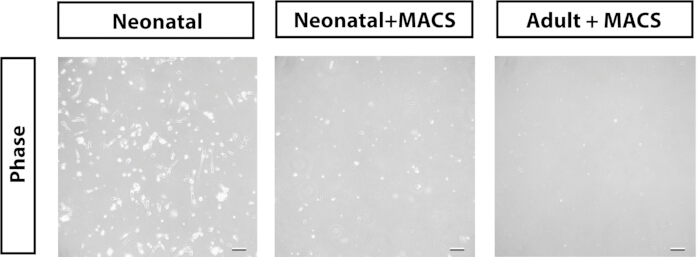
图3:首次预铺板步骤后仍贴壁细胞的代表性相差显微镜图像(20×)。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
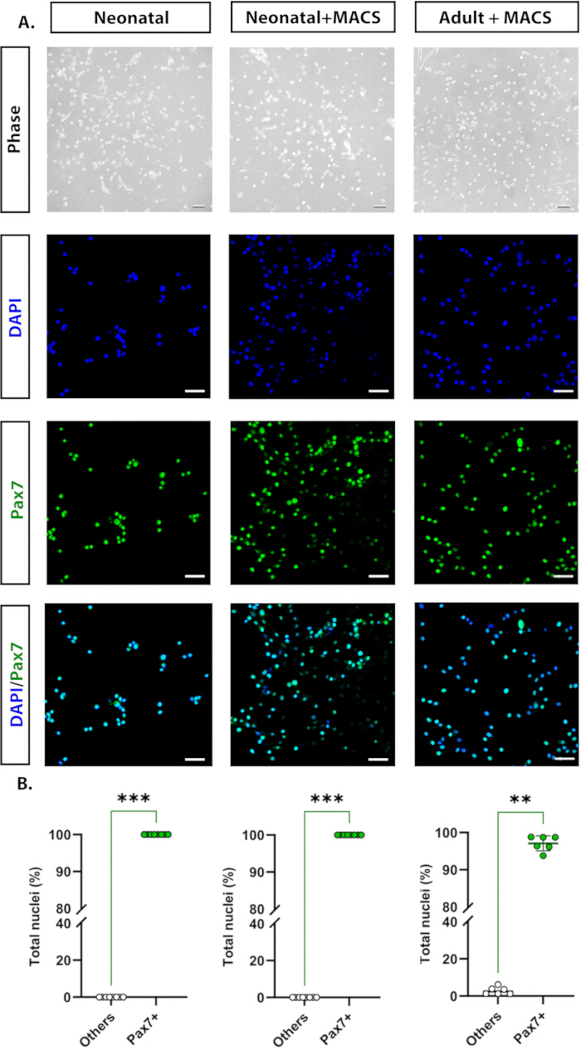
图 4:相差显微镜(20倍)和免疫细胞化学(40倍)下拍摄的代表性图像。(A)Pax7+(绿色)和用 DAPI 染色的细胞核(浅蓝色),以及合并通道中的共定位情况。(B)成肌细胞培养纯度分析,量化每视野中 Pax7+ 细胞占细胞核总数的百分比(每孔一个视野,至少六孔)。免疫染色实验至少重复三次,每次实验设两到三个技术重复。**p < 0.01,***p < 0.0001(统计学显著性采用 Mann Whitney U 检验分析)。比例尺 = 50 µm。请点击此处查看该图的放大版本。
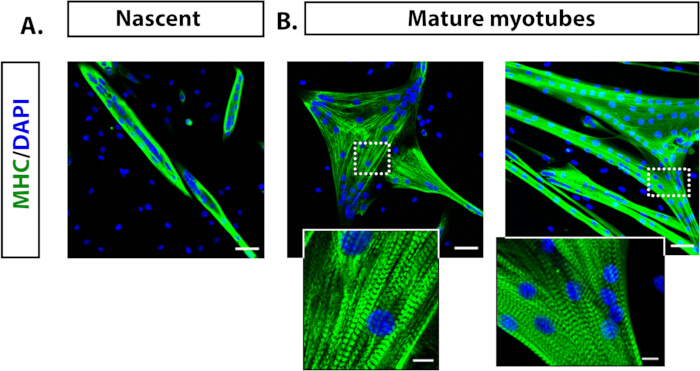
图5:代表性免疫荧光图像,显示由成年小鼠成肌细胞分化而来的肌管。(A)新生肌管(培养3天),以20倍镜观察MHC(绿色)及经DAPI染色的细胞核(浅蓝色)。(B)成熟肌管(培养6天),以20倍镜成像,并展示由肌球蛋白染色定义的肌节结构细节。免疫染色实验至少重复三次,每次实验设两至三个技术重复。比例尺 = 50 µm;放大区域比例尺 = 10 µm。 请点击此处查看该图的放大版本。
讨论
卫星细胞(SCs)是负责骨骼肌生长、修复和再生的主要成肌干细胞和前体细胞群体36,37它们能够重新进入细胞周期并分化为成熟的肌纤维,这使其在骨骼肌生物学研究中不可或缺。在特定条件下分离并培养时 体外 在特定条件下,干细胞增殖为成肌细胞,可被诱导分化并融合形成多核肌管,重现成肌过程中观察到的关键特征 体内.
本方法通过精确调整关键参数(包括酶浓度、消化时间及培养条件),可高效分离出高活力、高均一性的细胞群体,尤其适用于新生儿组织。该方法结合了酶消化与机械解离,并通过多步过滤以及可选的磁珠激活细胞分选(MACS)和预贴壁步骤,确保获得高产量和高纯度的细胞。重要的是,本实验方案能够获得通常超过97% Pax7+ 成肌前体细胞的培养物,适用于后续的分化检测和分子生物学研究。
预铺板技术依赖于成纤维细胞与SCs不同的黏附特性16,38,39。该步骤对于确定培养纯度尤为关键,时间或洗涤操作上的微小偏差均可能导致成纤维细胞污染或成肌细胞回收率降低。采用精确控制时间的预铺板步骤具有显著优势,因其可高效地将成肌细胞与成纤维细胞及其他非成肌细胞群体分离。该方法可在缺乏磁性分选设备的情况下使用,或作为进一步提高成肌细胞培养纯度的补充手段。在本方案中,我们通过使用胶原包被的培养板以及精确控制预铺板时间优化了该步骤,从而高效地将成肌细胞与成纤维细胞及其他非成肌细胞群体分离。
本方案的另一项方法学改进是使用了一种明确成分的成肌细胞增殖培养基(MPM),该培养基针对成体和新生个体的细胞均进行了优化。高浓度血清、鸡胚提取物(CEE)和碱性成纤维细胞生长因子(bFGF)的组合可支持细胞持续增殖,并维持未分化表型。其中,CEE 提供促进生长的因子,可增强成肌细胞的存活能力并延缓其自发融合;而 bFGF 则通过激活经典信号通路来维持干细胞(SCs)的身份特征29,31。使用 Matrigel 包被的培养表面可进一步提高细胞黏附性和增殖效率,从而在分离后 72 小时内实现高存活率和形态上的均一性。
当转入分化培养基后,纯化的成肌细胞 readily 融合形成多核、可收缩的肌管,表达肌球蛋白重链(MHC),表明其成肌潜能和结构成熟性得以保持。所获得的细胞培养物非常适合用于骨骼肌再生、细胞信号转导、转录调控以及疾病建模的研究。融合度是关键因素,融合度过低的培养物将无法正常进展,而融合度过高则会诱导成肌细胞融合与分化。无论融合度如何,成肌细胞在同一个培养皿中培养不应超过5天,因为长时间孵育也可能促进其分化。
尽管具有这些优势,某些步骤仍然对失败敏感。酶消化必须精确控制,以平衡组织解离与细胞活力。预铺板时间、分化前的细胞密度以及解离过程中的轻柔操作均会显著影响细胞得率、纯度及融合潜能。常见的问题,如持续的成纤维细胞污染、得率低、过早分化、贴壁不良或肌管形成能力弱,通常可通过调整预铺板时间、培养基补充成分或铺板技术等微小优化加以解决。
故障排除与实际注意事项:
分离纯度和酶消化过程需要特别注意,酶的种类、浓度、孵育时间或组织剪切程度的差异会显著影响细胞得率和培养纯度。消化不足可能导致组织部分残留,减少干细胞(SCs)的释放,并在下一步中堵塞滤网;而过度消化可能在外观上类似于生物膜,且会降低细胞活力。因此,仔细优化这些条件对于获得可重复的实验结果至关重要。
过滤和滤网的使用也至关重要,因为不完全或低效的过滤可能使细胞悬液中残留组织碎片或细胞团块,从而干扰细胞贴壁并降低培养纯度。使用合适孔径的滤网、轻柔地将悬液通过滤网以及预先润湿滤膜,均可在最大限度减少细胞机械损伤的同时提高碎片去除效果。如果较大的组织碎片堵塞滤网,应更换新的滤网,而不应强行通过悬液,否则细胞可能被困在滤膜表面,导致回收率下降。必要时使用新的滤膜重复过滤,可进一步提高活化肌母细胞的回收率。
当细胞培养密度过高时,可能会发生过早或失败的分化,因为这可能触发自发性分化或过早融合,从而影响实验的时间控制。因此,在诱导分化前监测细胞密度,并调整接种密度或培养基体积至关重要。如果出现过度汇合的情况,可通过部分传代或轻柔重铺细胞来维持细胞增殖,同时避免意外的肌管形成。相反,若在开始分化前未达到理想的汇合度,则应继续培养,直至达到最佳密度,以确保有效分化。无论初始汇合度如何,将成肌细胞培养超过推荐时间(>5天)都会增加自发分化的风险,并降低其增殖能力。定期评估细胞形态、严格遵守培养时间线以及及时更换培养基,对于维持细胞活力和分化潜能至关重要。
通过细致的组织处理可最大限度减少持续性成纤维细胞污染,包括在肌肉解剖过程中仔细去除结缔组织和脂肪组织。优化预铺板步骤尤为重要,因为快速贴壁的成纤维细胞会附着于未包被的表面,而干细胞(SCs)则保持悬浮状态。使用胶原包被的培养板,结合添加了碱性成纤维细胞生长因子(bFGF)的特定成肌细胞增殖培养基,可促进成肌细胞的选择性扩增,同时抑制成纤维细胞的生长。还可通过阴性筛选策略(如磁珠分选法,MACS)进一步纯化细胞,以去除成纤维细胞群体。定期进行显微镜监测对于及早发现成纤维细胞过度生长并及时干预至关重要。
综上所述,本实验方案通过整合连续纯化步骤、优化的培养条件以及可灵活选择的纯化方式,提高了原代成肌细胞分离的可重复性和效率。重要的是,该方法能够稳定地获得高度富集的Pax7+细胞,可用于对卫星细胞生物学、成肌决定及分化动态进行可控性研究。
与旨在延长连续扩增的方案不同,后者可能改变细胞行为并降低成肌潜能和融合能力,我们的方法特意设计用于维持具有强大成肌特性及高融合能力的细胞。这一特点对于需要生理相关性、高效成肌分化以及保留干细胞关键特征的应用具有优势,特别是在以研究成肌分化与再生为核心的实验中。
披露
作者声明无利益冲突。
致谢
共聚焦成像在实验生物学奈恩科夫研究所的组织结构与功能成像实验室完成,该实验室是波兰欧洲生物成像节点基础设施的一部分。
本研究得到波兰国家科学中心(Lilya Lehka 获得 Sonata 项目资助 2022/47/D/NZ3/02737,Grzegorz Sumara 获得 Sonata bis 项目资助 2020/38/E/NZ4/00314)以及波兰科学与高等教育部向奈恩科夫研究所提供的法定经费支持。本研究还得到波兰教育与科学部长基于合同编号 2022/WK/05 资助的项目支持(波兰欧洲生物成像节点 "Advanced Light Microscopy Node Poland")。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.25% 胰蛋白酶-EDTA | Gibco | 25200-056 | |
| 100 µm 细胞滤筛 | VWR | 732-2759 | |
| 30 µm 滤筛 | Miltenyi Biotec | 130-041-407 | |
| 40 µm 细胞滤筛 | VWR | 732-2757 | |
| 70 µm 细胞滤筛 | VWR | 130-095-823 | |
| 乙酸 | POCH | 568760114 | 溶于 dH2O 至终浓度为 20 mM,并通过 0.2 µm 滤膜除菌 |
| Alexa Fluor 488,驴抗兔 | Invitrogen | A21206 | 以 1:250 稀释比例溶于封闭液(见第 8.7 节) |
| Alexa Fluor 488,山羊抗小鼠 | Abcam | ab150113 | 以 1:250 稀释比例溶于封闭液(见第 8.7 节) |
| 氯化铵 (NH4Cl) | BioShop | AMC303.500 | 溶于水至终浓度为 50 mM |
| 抗荧光淬灭封片剂 | Vectashield | H-2000-10 | |
| 抗 PAX7 抗体 | Abcam | ab187339 | 以 1:100 稀释比例溶于封闭液(见第 8.7 节) |
| 碱性成纤维细胞生长因子 | Corning | 354060 | 溶于无菌 dH2O 至储存浓度为 10 µg/mL |
| 聚维酮碘,100 mg/mL | EGIS Pharmaceuticals | ||
| 细胞培养板,6 孔,Cell+ | SARSTEDT | 83.3902.300 | |
| 鸡胚提取物 | MP Biomedicals | 2850145 | |
| 胶原蛋白 I,大鼠尾部来源 | Gibco | A10483-01 | 溶于 20 mM 乙酸 |
| 胶原酶 I 型 | Sigma | C0130-500MG | 溶于 DMEM 并通过 0.2 µm 滤膜除菌 |
| 解离管(gentleMACS C 管) | Miltenyi Biotec | 130-093-237 | |
| 杜氏改良伊格尔培养基,高糖 | Gibco | 31966-021 | |
| EDTA | Invitrogen | AM9260G | |
| Falcon 圆锥形离心管,15 mL | Corning | 352096 | |
| Falcon 圆锥形离心管,50 mL | Corning | 352070 | |
| 胎牛血清 | Gibco | 10082147 | |
| 马血清 | Gibco | 26050088 | |
| 磁性标记试剂(卫星细胞分离试剂盒) | Miltenyi Biotec | 130-104-268 | |
| 磁性分离器(MidiMACS 分离器) | Miltenyi Biotec | 130-042-302 | |
| Matrigel | Corning | CLS356234 | 溶于 DMEM 至 10% 浓度 |
| 4% 多聚甲醛 PBS 溶液 | Thermo Fisher Scientific | J61899.AK | |
| 青霉素-链霉素 | Gibco | 15140122 | |
| 磷酸盐缓冲液 | VWR | 392-0334 | |
| 分离柱(LS 柱) | Miltenyi Biotec | 130-042-401 | |
| 骨骼肌肌球蛋白抗体,MHC | Santa Cruz | sc-32732 | 以 1:50 稀释比例溶于封闭液(见第 8.7 节) |
| 组织培养皿,100 x 20 mm | SARSTEDT | 83.3902 | |
| 组织解离仪(GentleMACS 解离仪) | Miltenyi Biotec | 130-093-235 | |
| Triton X-100 | Sigma-Aldrich | X100-1L |
参考文献
- Yeh, C. -J., Sattler, K. M., Lepper, C. Molecular regulation of satellite cells via intercellular signaling. Gene. 858, 147172(2023).
- Gonzalez, M. L., Busse, N. I., Waits, C. M., Johnson, S. E. Satellite cells and their regulation in livestock. J Anim Sci. 98 (5), skaa081(2020).
- Mauro, A. Satellite cell of skeletal muscle fibers. J Biophys Biochem Cytol. 9 (2), 493-495 (1961).
- Yin, H., Price, F., Rudnicki, M. A. Satellite cells and the muscle stem cell niche. Physiol Rev. 93, 23-67 (2013).
- Kahn, R. E., Dayanidhi, S., Lacham-Kaplan, O., Hawley, J. A. Molecular clocks, satellite cells, and skeletal muscle regeneration. Am J Physiol Cell Physiol. 324 (1), C1332-C1340 (2023).
- Abreu, P., Mendes, S. V. D., Ceccatto, V. M., Hirabara, S. M. Satellite cell activation induced by aerobic muscle adaptation in response to endurance exercise. Life Sci. 170, 33-40 (2017).
- Dueweke, J. J., Awan, T. M., Mendias, C. L. Regeneration of skeletal muscle after eccentric injury. J Sport Rehabil. 26 (2), 171-179 (2017).
- Michele, D. E. Mechanisms of skeletal muscle repair and regeneration in health and disease. FEBS J. 289 (21), 6460-6462 (2022).
- Domingues-Faria, C., Vasson, M. -P., Goncalves-Mendes, N., Boirie, Y., Walrand, S. Skeletal muscle regeneration and impact of aging and nutrition. Ageing Res Rev. 26, 22-36 (2016).
- Tierney, M. T., Sacco, A. Satellite cell heterogeneity in skeletal muscle homeostasis. Trends Cell Biol. 26 (6), 434-444 (2016).
- Troy, A., et al. Coordination of satellite cell activation and self-renewal by Par-complex-dependent asymmetric activation of p38α/β MAPK. Cell Stem Cell. 11 (4), 541-553 (2012).
- Dumont, N. A., Wang, Y. X., Rudnicki, M. A. Intrinsic and extrinsic mechanisms regulating satellite cell function. Development. 142 (9), 1572-1581 (2015).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal muscle satellite cells: background and methods for isolation and analysis. Myogenesis. DiMario, J. X. 798, Humana Press. 21-52 (2012).
- Gharaibeh, B., et al. Isolation of a slowly adhering cell fraction containing stem cells from murine skeletal muscle by the preplate technique. Nat Protoc. 3 (9), 1501-1509 (2008).
- Benedetti, A., et al. A novel approach for the isolation and long-term expansion of pure satellite cells based on ice-cold treatment. Skelet Muscle. 11 (1), 7(2021).
- Yoshioka, K., et al. A modified preplating method for high-yield and high-purity muscle stem cell isolation. Front Cell Dev Biol. 8, 793(2020).
- Uezumi, A., Fukada, S., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat formation. Nat Cell Biol. 12 (2), 143-152 (2010).
- Christov, C., et al. Muscle satellite cells and endothelial cells: close neighbors and privileged partners. Mol Biol Cell. 18 (4), 1397-1409 (2007).
- Elizalde, G., Munoz, A. Z., Almada, A. E. Protocol for the isolation of mouse muscle stem cells using fluorescence-activated cell sorting. STAR Protoc. 4 (4), 102656(2023).
- Pasut, A., Oleynik, P., Rudnicki, M. A. Isolation of muscle stem cells by fluorescence-activated cell sorting. Myogenesis. DiMario, X. 798, Humana Press. 53-64 (2012).
- Lee, J. D., Sinha, B. C., Larkin, L. M., Vandenburgh, H. H. Isolation and purification of satellite cells for skeletal muscle tissue engineering. J Regen Med. 3 (2), (2015).
- Llufrio, E. M., Wang, L., Naser, F. J., Patti, G. J. Sorting cells alters their redox state and cellular metabolome. Redox Biol. 16, 381-387 (2018).
- Cusmano, A. A., et al. Efficient isolation and ex vivo differentiation of murine satellite cells. Stem Cell. Turksen, K. 2939, Springer. 37-54 (2025).
- Park, Y. G., Moon, J. H., Kim, J. A. Comparative study of magnetic-activated cell sorting and preplating for myoblast purification. Yonsei Med J. 47 (2), 179-186 (2006).
- Park, Y. G., Baek, A., Kim, S. Myoblast purifying by magnetic-activated cell sorting. Methods Cell Biol. 112, Elsevier. 439-447 (2012).
- Lee, H., Han, N. R., Kim, S. J., Yun, J. I., Lee, S. T. Development of a high-yield isolation protocol for active muscle satellite cells. Int J Stem Cells. 15 (3), 283-290 (2022).
- Cui, Y., et al. An easy and practical method for isolation, culture and identification of mouse skeletal muscle satellite cells. Int J Clin Exp Med. 9, 19424-19431 (2016).
- Ding, S., et al. Characterization and isolation of highly purified porcine satellite cells. Cell Death Discov. 3, 17003(2017).
- Pawlikowski, B., Vogler, T. O., Gadek, K., Olwin, B. B. Regulation of skeletal muscle stem cells by fibroblast growth factors. Dev Dyn. 246 (5), 359-367 (2017).
- Shahini, A., et al. Efficient and high-yield isolation of myoblasts from skeletal muscle. Stem Cell Res. 30, 122-129 (2018).
- Lee, D. H., Kwak, K. B., Park, Y. C., Chung, C. H., Ha, D. B. Purification and characterization of myoblast fusion inhibitor. Mol Cells. 1, 177-182 (1991).
- Moulin, V., et al. Fetal and adult human skin fibroblasts display intrinsic differences in contractile capacity. J Cell Physiol. 188 (2), 211-222 (2001).
- Wilson, C. G., et al. Age-dependent expression of collagen receptors in rat cardiac fibroblasts. Microsc Microanal. 17 (4), 555-562 (2011).
- Kohen, N. T., Little, L. E., Healy, K. E. Characterization of Matrigel interfaces during defined hESC culture. Biointerphases. 4 (4), 69-79 (2009).
- Wang, Z., et al. In vitro culture system supporting robust expansion of myogenic progenitors. BioRes Open Access. 3 (3), 79-87 (2014).
- Péault, B., et al. Stem and progenitor cells in skeletal muscle development and therapy. Mol Ther. 15 (5), 867-877 (2007).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Curr Opin Cell Biol. 19 (6), 628-633 (2007).
- Rando, T. A., Blau, H. M. Primary mouse myoblast purification and transplantation. J Cell Biol. 125 (6), 1275-1287 (1994).
- Hindi, L., McMillan, J., Afroze, D., Hindi, S., Kumar, A. Isolation, culturing, and differentiation of primary myoblasts. Bio Protoc. 7 (9), (2017).
重印与许可
