自组装人源心脏类器官(hCOs)是一种新兴的人类心脏发育和疾病建模系统。本文提供了一种生成人源心脏类器官并利用缺氧-复氧方法对其进行损伤的实验方法,以及损伤后预期的组织学和功能学结果的详细描述。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
若不及时恢复血流,缺血性心脏病将导致心肌细胞不可逆地丧失、瘢痕形成以及心脏功能下降。目前尚缺乏能够在人体组织中模拟缺氧-复氧损伤并评估潜在治疗干预手段的有效方法。人源心脏类器官(hCOs)是一种新兴的模型系统,但由于其体积微小、需要悬浮培养,以及分化效率存在差异,初学者在开展hCOs相关研究时可能面临挑战。本实验方案提供了一套用户友好的操作指南,用于生成和维持由人诱导多能干细胞(iPSC)衍生的自组装hCOs,以及对hCOs进行处理和组织学分析的方法;同时介绍了一种通过缺氧-复氧诱导hCOs损伤的策略,以模拟人类缺血/再灌注损伤中出现的纤维化和细胞凋亡现象。本方案为将hCOs作为缺血-再灌注损伤动物模型的补充工具提供了指导,也可用于识别和验证可能促进人类心肌功能恢复的因素。
引言
缺血性心脏病是全球范围内导致发病和死亡的主要原因,仅在美国就影响至少2050万人1,2,3。若缺乏充分的灌注,持续的缺氧将导致心肌细胞(CM)死亡和心肌功能障碍。心肌缺血主要通过经皮介入、溶栓治疗或冠状动脉旁路移植术进行血运重建治疗。然而,血运重建是一把双刃剑,可能因活性氧物质的释放而造成额外损伤4,5。尽管再灌注策略已取得巨大成功,但在缺血损伤期间或再灌注后限制心肌细胞丢失的方法仍难以实现。尽管许多挽救梗死组织的尝试在缺血-再灌注动物模型中证明有效,但这些疗法在人类临床试验中大多未能显示出显著益处,因此迫切需要建立人类模型以评估保护或补充心肌细胞的治疗方法6,7,8,9,10,11,12。
用于模拟心脏损伤的人类研究平台包括原代组织和人诱导多能干细胞(hiPSC)来源的系统13,14。由于原代组织受限于样本可获得性,hiPSC系统已成为心脏疾病建模的主要人类平台,具有遗传可操作性和可扩展性的显著优势15,16,17,18,19。传统的二维hiPSC来源心肌细胞(hiPSC-CM)培养体系受限于所得心肌细胞的不成熟性、缺乏复杂的组织结构以及无法重现人类心脏中完整的细胞多样性15,20。为克服这些局限,工程化三维心脏组织(EHT)的应用日益广泛20,21,22,23,24,25,26。EHT技术包括将预先分化的 cardiac 细胞混合形成类球体24,或将已分化的 cardiac 细胞接种至支架或模具中21,22,27。尽管EHT能更有效地模拟异质性细胞相互作用,且相较于二维培养具有相对更高的成熟度,但其构建和维持过程对定制支架或生物反应器的需求目前限制了其可扩展性21,27,28。
自组装心脏类器官(hCOs),或称心形类器官(cardioids),是一种新型且强大的 体外 人类模型系统20,25,26,29人源心脏类器官(hCOs)具有多项优势。首先,它们可包含多种细胞类型,如内皮细胞、成纤维细胞和心外膜细胞,而无需采用多种专门的定向分化方案。26,29,30其次,它们的大部分分化过程发生在三维悬浮培养中,无需使用特殊的模具或组织基质25,26,29,30最后,hCOs具有典型的球形形态和中央腔,便于进行形态学分析。因此,hCOs在保留部分EHTs组织复杂性的同时,具备与二维培养系统相似的可扩展性。hCOs已被用于药物毒性测试、患者特异性疾病建模以及心脏发育过程的模拟研究20,26,30,31,32,33,34,35,36,37,38,39尽管前景广阔,类器官相比工程化心脏组织(EHTs)仍存在若干局限性,例如无法直接测量其收缩力输出。此外,目前所描述的类器官模型中缺乏内源性免疫细胞群体,尽管已有研究成功将巨噬细胞引入类器官。然而,类器官作为一种新兴的人源模型系统,正迅速发展和完善20,26,30,31,32,33,34,35,36,37,38,39.
迄今为止,利用人源心脏类器官(hCOs)构建心脏损伤模型的研究仍较为有限。已有研究报道了冷冻损伤模型,但其损伤程度变异度高,且需对每个hCO进行单独损伤处理,限制了模型的可扩展性29。本文描述了一种用户友好的实验方案,用于生成并通过对缺氧-复氧(H/R)损伤诱导自组装hCOs。与其他hCOs生成方案相比,本方案采用简化的分化培养基,并整合了Hofbauer等29提出的2D-3D中胚层分化策略。H/R损伤操作可在hCOs开始搏动后的任意时间进行,通常发生在分化第8天(D8)至第11天(D11)之间。H/R处理时间可在6小时至24小时之间梯度调整,以实现从轻微到近乎完全心肌细胞丢失的不同损伤程度。此外,hCOs在H/R损伤后通常会形成富含波形蛋白(Vimentin+)细胞的胶原核心结构,其严重程度亦随H/R持续时间延长而增加。该高通量、可扩展的H/R损伤hCO模型,有望满足开发和测试促进损伤后心肌细胞恢复或再生新疗法所需的人源模型需求。
访问受限。请登录或开始试用以查看此内容。
方案
所有涉及人源细胞系的操作均应遵循当地的生物安全规程。所有实验均使用DU11诱导多能干细胞系进行,该细胞系由杜克大学诱导多能干细胞核心实验室利用健康新生男性的成纤维细胞制备而成。
1. 人脑类器官的生成
注意:本节描述了从诱导多能干细胞(iPSCs)生成人脑类器官(hCOs)的标准实验方案(图1)。本方案中详述的所有步骤均应在超净工作台中进行,以确保无菌条件。分化培养基的配方请参见表1。
| 天数 | 储存浓度 | 工作浓度 | 稀释倍数 | 基础培养基 |
| D0 | 10 mM CHIR99021 | 10 µM CHIR99021 | 1:1000 | RPMI-1640, 2% B27 Minus Insulin |
| 100 mg/mL Ascorbic Acid | 50 µg/mL Ascorbic Acid | 1:2000 | ||
| 10 mg/mL Activin A | 60 ng/mL Activin A | 1:167 | ||
| D1 | 5 mM IWP2 | 5 µM IWP2 | 1:1000 | RPMI-1640, 2% B27 Minus Insulin |
| 100 mg/mL Ascorbic Acid | 50 µg/mL Ascorbic Acid | 1:2000 | ||
| D2 | 5 mM IWP2 | 5 µM IWP2 | 1:1000 | RPMI-1640, 2% B27 Minus Insulin |
| 100 mg/mL Ascorbic Acid | 50 µg/mL Ascorbic Acid | 1:2000 | ||
| 10 mM Thiazovivin | 2 µM Thiazovivin | 1:5000 | ||
| D3 | 5 mM IWP2 | 5 µM IWP2 | 1:1000 | RPMI-1640, 2% B27 Minus Insulin |
| 100 mg/mL Ascorbic Acid | 50 µg/mL Ascorbic Acid | 1:2000 | ||
| D4 | 5mM IWP2 | 5 µM IWP2 | 1:1000 | RPMI-1640, 2% B27 Minus Insulin |
| D6+ | N/A | N/A | RPMI-1640, 2% B27 Plus Insulin |
表1:分化培养基配制表。 分化第0至第6天各分化因子的储存浓度、工作浓度及稀释倍数。所有工作液均需在换液时新鲜配制。
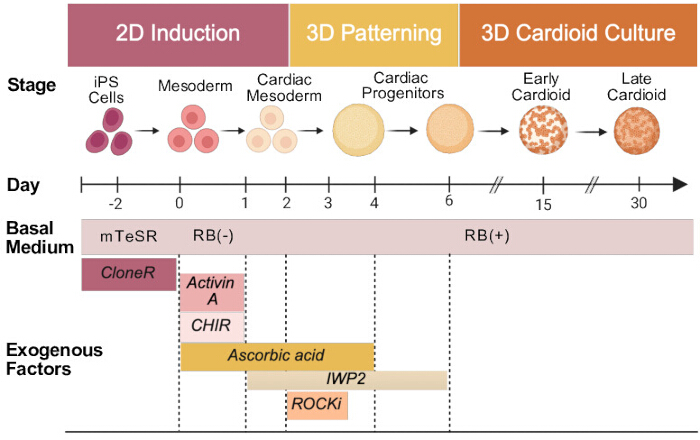
图1:人源心脏类器官(hCO)分化的示意图。 请点击此处查看此图的放大版本。
- iPSC 维持培养
- 用基底膜基质以 1:100 的比例稀释于冷 DMEM/F12 培养基中,完全覆盖 12 孔板每个孔的底部。将处理后的培养板在 37 °C 下孵育 1 小时,以促进基质聚合。若不立即使用,可用封口膜密封后于 4 °C 保存最多 2 周,使用前需在 37 °C 孵育至少 60 分钟。
- 分化第 -3 天(D-3):铺板 iPSC 以进行后续分化
- 按照步骤 1.1.1 所述方法准备包被基底膜基质的培养板。
- 吸除 iPSC 培养物中的维持培养基,加入足量的细胞解离溶液以完全覆盖细胞(12 孔板每孔约 500 μL,6 孔板每孔约 1 mL)。在 37 °C 下孵育 5 分钟。
- 向每孔加入等体积的 iPSC 维持培养基,轻轻敲击培养板以帮助细胞脱落。将培养板向自己方向倾斜,用移液器在孔底轻柔吹打 3 次以内,进一步解离贴壁细胞。用移液器将细胞悬液转移至 15 mL 圆底离心管中。
- 在摆动桶离心机中,室温下以 300 x g 离心 3 分钟使细胞沉淀。吸除上清液,轻柔地将细胞重悬于 1 mL iPSC 维持培养基中。
- 取 10 μL 细胞悬液转移至新的 1.5 mL 微量离心管中,加入 10 μL 台盼蓝,吹打混匀。取 10 µL iPSC/台盼蓝混合液加入血细胞计数板,计数活细胞。
- 用含 ROCK 抑制剂(ROCKi)的 iPSC 维持培养基将细胞悬液稀释至终浓度为 100,000–200,000 个细胞/mL。将 1 mL/孔的细胞悬液加入已包被基底膜基质的 12 孔板各孔中。
注:分化前的铺板密度取决于特定细胞系的生长速率,不同 iPSC 系可能需要调整铺板密度。ROCKi 的浓度可能需根据所用品牌或配方进行滴定优化。
- 分化第 -2 天(D-2):更换培养基以去除 ROCKi
- 更换为 1 mL 新鲜的不含 ROCKi 的 iPSC 维持培养基。细胞应开始形成小的克隆集落,集落应呈扁平状(图 2A)。若细胞呈现鹅卵石样、细长或纺锤形,提示发生自发分化,可能影响分化效率。
- 分化第 -1 天(D-1):继续在无处理条件下孵育细胞。
- 分化第 0 天(D0):启动分化及中胚层诱导
- 使用显微镜检查细胞密度,确保在开始分化时达到 70%–90% 汇合度(图 2B)。若未达到汇合,用 iPSC 维持培养基补充培养并等待 24 小时;若细胞过于汇合,则按步骤 1.2 进行传代。
- 每块 12 孔板准备 12 mL D0 中胚层诱导培养基(含 10 µM CHIR99021、50 µg/mL 抗坏血酸、60 ng/mL Activin A 的 RPMI-1640 培养基,添加 2% B27 补充剂(不含胰岛素)(RB-))。
- 移除原有培养基,每孔加入 1 mL D0 中胚层诱导培养基。记录换液时间。
- 分化第 1 天(D1):心肌中胚层特化
- 在加入 D0 中胚层诱导培养基后恰好 24 小时,更换为 D1 心肌中胚层特化培养基(含 5 µM IWP2、50 µg/mL 抗坏血酸的 RB 培养基)。
- 分化第 2 天(D2):人源心脏类器官(hCO)形成
- 加入足量的细胞解离试剂以覆盖细胞,在 37 °C 下孵育 5 分钟(图 2C)。向每孔加入等体积的 D2 心肌中胚层培养基,轻柔吹打以释放贴壁细胞。将细胞悬液转移至 15 mL 圆底离心管中。
- 在室温下以 300 x g 离心 3 分钟使细胞沉淀。将细胞重悬于 1 mL D2 心肌中胚层特化培养基(含 5 µM IWP2、50 µg/mL 抗坏血酸的 RB- 培养基)中。
- 取 10 µL 细胞悬液,加入 10 µL 台盼蓝,混匀后使用任意合适方法计数细胞。用含 2 µM thiazovivin 的 D2 心肌中胚层特化培养基将细胞稀释至 100,000 个细胞/mL。每块 96 孔超低吸附培养板使用 10 mL 细胞悬液。
- 将细胞悬液转移至适当大小的试剂储液槽中,使用多通道移液器向每块超低吸附 96 孔板的每个孔加入 100 µL,最终浓度为 10,000 个细胞/孔。
- 为诱导悬浮培养中 hCO 的形成,将培养板在室温下以 500 x g 离心 5 分钟。离心后将出现较大的细胞团块(图 2D);若团块边界不清,需重复离心。
注:并非所有细胞都会整合进 hCO,成功形成的 hCO 表现为边界清晰的细胞团块,在明场显微镜下可见单个细胞。hCO 周围培养板中存在少量单细胞碎片属正常现象。
- 分化第 3 天(D3):添加培养基以稀释 ROCKi
- 每块培养板准备 10 mL D3 培养基(含 5 µM IWP2、50 µg/mL 抗坏血酸的 RB- 培养基)。使用多通道移液器向每孔加入 100 µL D3 培养基,无需移除原有培养基。
注:此阶段 hCO 已凝聚成深色、边界清晰的球状体,单个细胞不可见(图 2E)。
- 每块培养板准备 10 mL D3 培养基(含 5 µM IWP2、50 µg/mL 抗坏血酸的 RB- 培养基)。使用多通道移液器向每孔加入 100 µL D3 培养基,无需移除原有培养基。
- 分化第 4 天(D4):更换为 D4 培养基
- 移除 100 µL D3 培养基,替换为 100 µL D4 培养基(含 5 µM IWP2 的 RB- 培养基)。为降低吸除过程中误吸 hCO 的风险,将培养板向自己方向倾斜约 45° 角,手持多通道移液器与培养板侧壁呈约 90° 角。将移液器枪头紧贴孔壁,缓慢吸除 100 µL 培养基,并间歇检查枪头是否吸入 hCO。
注:hCO 处于悬浮培养状态,换液时易被误吸。为降低风险,将培养板向自己方向倾斜约 45° 角,手持多通道移液器与培养板侧壁呈约 90° 角,将枪头紧贴孔壁,缓慢吸除 100 μL 培养基,并间歇检查枪头是否吸入 hCO。 - 每孔加入 100 µL D4 培养基。
- 移除 100 µL D3 培养基,替换为 100 µL D4 培养基(含 5 µM IWP2 的 RB- 培养基)。为降低吸除过程中误吸 hCO 的风险,将培养板向自己方向倾斜约 45° 角,手持多通道移液器与培养板侧壁呈约 90° 角。将移液器枪头紧贴孔壁,缓慢吸除 100 µL 培养基,并间歇检查枪头是否吸入 hCO。
- 分化第 6 天(D6):hCO 维持培养基
- 移除 100 µL D4 培养基,替换为 100 µL D6+ 培养基(含 2% B27 补充剂的 RPMI-1640 培养基(RB+))。
- 分化第 8 天(D8)
- 此后每 2 天更换一次培养基,每次移除 100 µL 并加入 100 µL 新鲜 D6+ 培养基。若分化成功,hCO 应逐渐增大,边缘光滑,并在 D6–11 天左右开始搏动(图 2F)。hCO 仍表现为深色、边界清晰的球状体,单个细胞不可见。
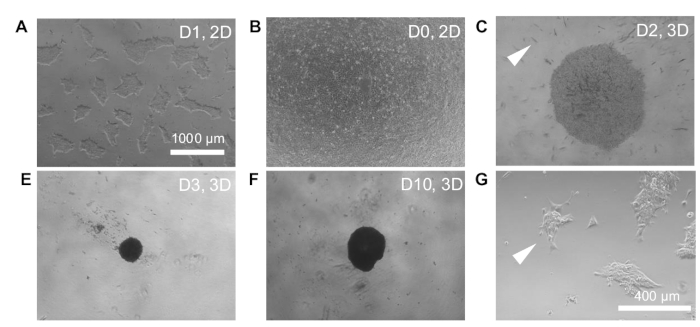
图 2:人脑类器官(hCO)分化时间线。类器官分化时间线。(A)分化启动前 1 天(D-1)的诱导多能干细胞(iPSC)克隆。注意克隆边界清晰,呈扁平状。(B)分化启动当天(D0)的 iPSC,汇合度约为 90%。(C)分化第 2 天(D2)在 96 孔超低吸附培养板中刚完成类器官形成的类器官。箭头指示针状 IWP2 晶体的一个示例。(D)分化第 3 天(D3)的类器官。注意由于细胞间连接的形成,类器官明显发生收缩;此阶段存在少量未整合的细胞碎片属正常现象。(E)分化第 10 天(D10)的类器官。(F)箭头指示一个含有细长、纺锤形细胞且呈鹅卵石样外观的 iPSC 克隆,提示可能发生自发分化。A–E 图比例尺 = 1000 µm,F 图比例尺 = 400 µm。请点击此处查看该图的放大版本。
2. 收集和固定人脑类器官用于免疫染色
- 使用剪去尖端的1000 µL移液器,将hCOs转移至1.7 mL微量离心管中。待所有hCOs转移完毕后,静置使其沉降至管底,然后小心吸除多余培养基。用PBS洗涤hCOs一次,静置数秒待其沉降至管底,随后小心吸除多余PBS。
- 在室温下用4%多聚甲醛(PFA)固定hCOs 30分钟。
注意:某些抗体可能需要丙酮或甲醇固定以获得最佳效果。请参考生产商提供的使用说明。
3. 整体免疫染色
- 将所需数量的固定人脑类器官(hCOs)转移至1.7 mL微量离心管中。去除固定液,并用含0.1% Tween-20的磷酸盐缓冲液(PBS-T)洗涤。
- 洗涤hCOs时,尽可能吸除多余的固定液,注意不要扰动管底的hCOs。加入约1 mL PBS-T,等待数秒使hCOs沉降至管底,再进行下一步操作。
- 将一抗用染色液(含10%新生牛血清、1% DMSO的0.1% PBS-T)稀释至所需浓度,每管加入50–100 µL一抗溶液(或加入足量液体以完全覆盖每管中的所有hCOs)。
- 在4 °C条件下于摇床中孵育24小时。去除多余的一抗后,在室温下用PBS-T洗涤三次,每次1小时。最后在4 °C条件下用PBS-T过夜洗涤,以确保彻底去除残留的一抗。
- 将二抗用染色液稀释至所需浓度,每管加入50–100 µL二抗溶液(或加入足量液体以完全覆盖每管中的所有hCOs)。
- 将hCOs在4 °C条件下于振荡平台上与二抗孵育24小时。去除多余的二抗后,在室温下用PBS-T洗涤三次,每次1小时。最后在4 °C条件下用PBS-T过夜洗涤,以确保彻底去除所有残留的二抗。
- 进行整体封片成像时,使用剪去尖端的1000 µL移液器吸头将hCOs转移至带正电荷的玻片上。吸除多余的PBS-T,滴加数滴封片剂以覆盖hCOs,然后小心地加盖盖玻片以展平hCOs。
注意:为保持hCOs的三维结构,可在玻片边缘使用橡胶垫圈或双面胶带,以抬高盖玻片的高度。使用透明封片剂有助于改善对hCOs内部的成像效果,尤其是在hCOs未被压平时更为有效。
4. 切片与包埋
- 固定后,将 hCOs 置于 4 °C 条件下,用 30% 蔗糖溶液孵育过夜,以进行冷冻保护。使用剪去尖端的 1000 µL 移液枪头,将所需数量的 hCOs 转移至 12 mm × 12 mm 的塑料模具中。小心吸除多余的蔗糖溶液,注意避免吸走 hCOs。
注意:在转移前,先用移液枪头反复吹打 30% 蔗糖溶液数次,有助于防止 hCOs 黏附在枪头内壁。 - 加入少量 OCT 包埋剂,用量以刚好覆盖 hCOs 为宜。使用精细镊子或移液枪头轻轻调整 hCOs 在 OCT 中的位置,确保 hCOs 之间不聚集,并远离模具边缘。尽量使所有 hCOs 靠近模具底部,以期在单张冷冻切片中获得尽可能多的 hCOs。
- 将模具置于底部铺有干冰的泡沫塑料盒中,使 OCT 初始层迅速冷冻。等待数分钟直至 OCT 完全凝固,然后将模具移至实验台面。继续添加 OCT 至填满模具。待第一层 OCT 完全融化后,再将模具放回干冰上继续冷冻。
- 将冷冻包埋好的 hCOs 样本储存于 -80 °C 环境中,直至进行冷冻切片。
- 准备切片时,尽可能对准 hCOs 包埋块的方向并开始修块。定期将切下的组织片转移至带电荷的载玻片上,肉眼检查每张切片中是否存在 hCOs。一旦观察到 hCOs,即切换为 6 µm 厚度进行切片。
注意:hCOs 在包埋和切片过程中的损耗率至少为 10%。请据此合理规划样本数量。
5. TUNEL 与免疫组织化学染色组织切片
- 使用疏水笔在需要染色的组织切片周围画出疏水边界。用含0.1% Tween的磷酸盐缓冲液(PBS-T)洗涤载玻片一次,以溶解OCT包埋剂。
- 加入封闭液(含10%新生小牛血清和1% DMSO的PBS-T),室温孵育1小时。
- 配制一抗溶液。初始浓度可参考生产商推荐用于免疫荧光的浓度,但可能需要根据实验结果进行滴定优化。
注意:也可在此步骤按照生产商说明书进行TUNEL染色。 - 从载玻片上移除封闭液,加入足量的一抗溶液覆盖类脑器官(hCO)切片。4 °C过夜孵育或37 °C孵育3小时。在盛有PBS-T的染色缸中于室温下洗涤载玻片3次,每次5分钟。
- 在封闭液中配制含二抗的染色液,并加入DAPI或其他全核标记物。加入足量的二抗染色液覆盖类脑器官(hCO)切片。避光室温孵育1小时。
- 在盛有PBS-T的染色缸中于室温下洗涤载玻片3次,每次5分钟。用合适的封片介质加盖盖玻片封片。
6. 使用 CardioCount 定量分析核共定位
注意:CardioCount 是一种基于深度学习的方法,用于对显微镜图像中的心肌细胞核进行评分40。该方法最初用于评估心肌细胞的细胞周期活动,对多种细胞核染色(包括 TUNEL 染色)均表现出良好的适用性40。
- 要使用 CardioCount,请从 GitHub 下载 CardioCount 软件包,或将其导入 Google Colab(https://github.com/karraresearchgroup/CardioCount.git,https://drive.google.com/file/d/13iwp9JoHPhs2ONSFkZTGxbEXCGwBFVYx/,https://drive.google.com/drive/folders/1-f9h7MvCBsiCngJnV8-f_lplAJpUeeE3)。CardioCount 第 1 版本在 Python 3 环境中运行。
- 将用于定量分析的图像导出为单个 512 × 512 像素的 .tif 文件,其中红、蓝、绿三通道已合并,红色通道为心肌细胞核标记物,蓝色通道为通用核标记物,绿色通道为细胞周期核标记物(例如 Ki67)或凋亡标记物(例如 TUNEL)。在 Google 云端硬盘中为此实验创建一个主文件夹,并将合并后的 tiff 图像上传为子文件夹。
注意:CardioCount 的训练基于填满细胞核的核染色图像。对于更呈点状的细胞周期标记物(如 Aurora B 或 PH3),可能不适用于 CardioCount。 - 在 Google Colab 中打开 CardioCount 笔记本。运行单元格 1.1 以检查图形处理器(GPU)访问权限。运行单元格 1.2 以将 Colab 笔记本连接至 Google 云端硬盘。
- 运行单元格 1.3 以在 Google Colab 中加载 CardioCount 及其依赖项。编辑 kfile,使其指向下载时“PRODUCTION_LVADMLPaper_Colab_Libraries”文件夹保存的路径。
- 在单元格 2.0 中,编辑 base_folder,使其指向包含待分析图像子文件夹的主文件夹路径。运行单元格 2.0 以将该文件夹链接至 Colab。
- 在单元格 2.1.1 中,编辑 orig_image_folder,使其与包含待分析图像的文件夹名称一致。将 channel_to_remove 设置为 green,并编辑 new_image_folder,指定在 base_folder 下保存去除绿色通道后图像(红/蓝)的子文件夹名称。重复此步骤以去除红色通道,确保编辑 new_image_folder 以区分包含去除红色通道后图像(绿/蓝)的子文件夹。
- 在单元格 2.1.2 中,将红/蓝图像裁剪为 512 × 512 像素图像。确保 uncropped_image_folder 与第 6.6 步中为红/蓝图像创建的 new_image_folder 名称一致。命名 destination_image_folder,以指定保存裁剪后红/蓝图像的子文件夹。重复此步骤以裁剪绿/蓝图像。最后,重复此步骤以裁剪存储在 base_folder 中的原始三通道合并 tiff 图像。
- 运行单元格 2.2 以生成概率图。将 data_specific_folder 命名为在单元格 2.1.2 的 destination_image_folder 中生成的红/蓝和绿/蓝图像的文件夹名称。对于 model_dir,输入包含分割模型的文件夹路径。为分割红色核,使用模型 erg_rb_opt,并将 epoch 设为 200。重命名 probmap_directory_name,以指定保存红/蓝概率图的文件夹。对绿/蓝图像重复此步骤。为分割绿色核,使用模型 edu_mouse_bg_opt,并将 epoch 设为 100。
- 在单元格 2.3.1 中,将基于第 6.8 步生成的概率图创建对象图。input_folder 应命名为单元格 2.1.2 中 destination_image_folder 的名称,该文件夹包含在单元格 2.1.2 中生成的红/蓝概率图图像。命名 output_folder 以指定保存阈值化红/蓝图像的文件夹。设置核分割置信度的阈值(范围为 0.0–1.0)。运行单元格 2.3.1。对绿/蓝图像重复此步骤。
注意:核置信度的阈值取决于数据集。建议从 0.9 开始,若过于宽松则调高,若过于严格则调低,依据为对概率图的随机检查结果。 - 在单元格 2.3.2 中,将统计第 6.10 步生成的对象图中的细胞数量,并导出为 .csv 文件。count_folder 应命名为单元格 2.3.1 中保存阈值化红/蓝图像的 output_folder。若要排除接触图像边界的对象,请确保 ignore_border_cells 设置为 True。重命名 csv_path 为存储所有子文件夹的 base_folder 路径。编辑 csv 文件名以反映红/蓝对象的计数。对蓝/绿图像重复此步骤。
- 在单元格 2.4 中,将统计红/绿双阳性核的数量。将 img_folder 重命名为第 6.8 步生成的包含裁剪后三通道图像的子文件夹名称。将 childcell_folder 重命名为单元格 2.3.1 中保存阈值化红/蓝图像的 output_folder。将 parentcell_folder 重命名为单元格 2.3.1 中保存阈值化绿/蓝图像的 output_folder。将 dest_folder 重命名为保存双阳性对象图的文件夹。将 csv_path 重命名为存储所有子文件夹的 base_folder 路径及文件名,并编辑 csv 文件名以反映双阳性对象的计数。
- 通过将每张图像生成的红、绿及双阳性计数与原始图像进行比较,验证分割的准确性。
- 若 CardioCount 对核数量的估计持续高于盲法评审者的计数,则重复第 6.9 步并使用更高的置信度阈值,然后重复第 6.10–6.11 步。若 CardioCount 对核数量的估计持续低于盲法评审者的计数,则重复第 6.9 步并使用更低的置信度阈值,然后重复第 6.10–6.11 步。
- 对每个 hCO 的红核、绿核和双阳性核的计数进行汇总。对每个类器官,计算细胞周期核百分比为:(双阳性核数 / 红色心肌细胞核总数)× 100%。
7. 缺氧-复氧损伤
- 配制缺氧培养基(119 mM NaCl、12 mM KCl、1.2 mM NaH2PO4、1.3 mM MgSO4、0.5 mM MgCl2、0.9 mM CaCl2、20 mM 乳酸钠和 5 mM HEPES,pH = 6.4)5。
- 向细胞培养瓶中加入每块96孔hCO板5 mL缺氧培养基。将细胞培养瓶放入缺氧舱内,通入无氧气体(5% CO2、95% N2)3分钟。在启动缺氧处理前,于37 °C孵育至少1小时。
- 移除hCO中的全部培养基。首先使用多通道移液器从所有孔中移除约150 µL培养基。然后使用200 µL移液器小心地逐孔移除剩余培养基,避免扰动hCO。
注意:完全移除所有孔中的培养基对于实现可重复的损伤至关重要。 - 向每个孔中加入50 µL缺氧培养基。将hCO板放入缺氧舱内,通入无氧气体(5% CO2、95% N2)3分钟。将缺氧舱置于37 °C培养箱中孵育6小时。
- 为启动复氧,将hCO从缺氧舱中取出,并加入150 µL预热的RB+培养基。在进行后续检测前,于37 °C下复氧至少3小时。
8. 乳酸脱氢酶释放实验
- 在再灌注开始后选定的时间点,从受损和未受损的hCO培养孔中各收集20 µL培养基。将样品用180 µL LDH储存缓冲液(200 mM Tris-HCl (pH 7.3)、10%甘油、1% BSA)按1:10比例稀释。于-20 °C保存,直至进行检测。收集前需反复吹打数次以充分混匀培养基
- 解冻冻存的培养基样品。为每个待检测的样品,在黑色壁透明底的96孔板中加入45 µL LDH储存缓冲液。向每孔加入5 µL已按1:10稀释的样品,最终稀释倍数为1:100。按每份样品50 µL LDH检测酶混合液和0.25 µL还原酶底物的比例配制LDH检测试剂。
- 向每孔含1:100稀释样品的孔中加入50 µL LDH检测试剂。室温避光孵育60分钟。使用兼容的酶标仪检测生物发光信号。
9. 钙成像
- 使用不含酚红的RPMI-1640培养基、0.04% Pluronic和5 µM Cal520-AM配制钙离子染料染色液。样品需避光处理。
- 从每个用于钙成像的孔中移除100 µL培养基,加入100 µL钙离子染料染色液,在37 °C避光条件下孵育30分钟。
- 从含有钙离子染料的各孔中移除100 µL染色液,替换为100 µL不含酚红的RPMI-1640培养基,在37 °C孵育30分钟至1小时,以完成染料洗脱。
- 使用具备连续成像或实时流式成像功能的显微镜,将96孔超低吸附板置于工作位置。采用10倍物镜,定位类脑器官(hCO)的基底部,并观察Cal520荧光瞬变信号。
- 在室温下采集持续30秒的钙瞬变记录。若使用共聚焦显微镜,则无法对整个类脑器官(hCO)进行成像。应选择类脑器官基底部附近的一个焦平面,该区域在钙瞬变期间可清晰观察到细胞轮廓。
10. 钙瞬变分析(图3)
- 可以使用多种峰分析软件进行钙瞬变分析。以下是使用 Spiky ImageJ 插件41(https://pccv.univ-tours.fr/ImageJ/Spiky/)进行分析的操作说明。
- 在每个 hCO 的可见细胞中,向 ROI 管理器添加五个 2 × 2 像素的兴趣区域(ROIs)。注意避免将 ROIs 与细胞核或细胞边界重叠,因为 hCO 的运动可能影响瞬变分析结果。
- 在“分析”>“设置测量值”中,选择平均灰度强度。在 ROI 管理器中,选择多点测量,以获取记录中所有帧和所有 ROIs 的平均灰度强度。
- 保存包含所有 ROIs 平均灰度强度的 .csv 文件。同时保存每幅图像中所有 ROIs 的位置,以供后续参考。
- 在新的电子表格中添加一列“时间(s)”。通过将 30 秒除以总帧数,再乘以当前帧编号,计算每一帧对应的时间。将此数据保存为已编辑的 .csv 文件。
- 在 Fiji 中打开已编辑的 .csv 文件,并启动 Spiky 插件。在“分析选项”中选择所需的分析参数。
- 将时间(s)作为 X 轴,ROI #1 的平均灰度强度作为 Y 轴作图。点击分析峰,确认基线、峰起始/结束点以及峰幅值的标注是否正确。若识别出的峰数量错误,可调整“分析选项”中的参数,包括从基线起的最小峰幅值和起始峰阈值,直至成功识别所有峰。
- 保存所有中间文件。每分钟搏动次数(bpm)可通过将 60 除以每个 ROI 的峰间期(秒)的平均值得出。
- 对每个 hCO 的所有 ROIs 重复上述分析过程。
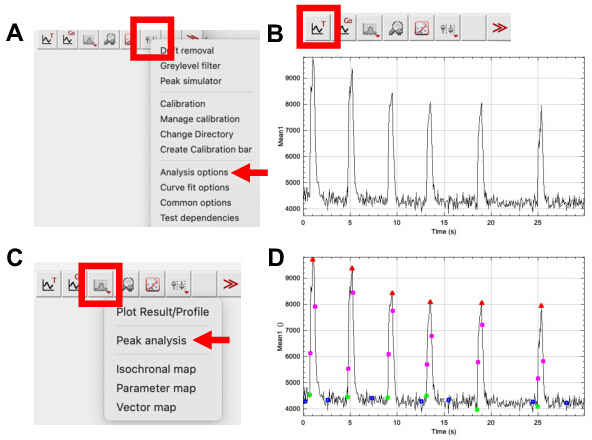
图3:钙瞬变分析。 (A)红色框标示用于打开下拉菜单以选择分析参数的按钮。(B)红色框标示用于绘制代表性未损伤人脑类器官(hCO)中感兴趣区域(ROI)的时间(s)与平均灰度强度关系图的按钮。(C)红色框标示用于选择峰分析的按钮。(D)来自未损伤人脑类器官(hCO)的代表性钙瞬变轨迹及峰分析结果。红色三角形表示峰的最大值,粉色方块表示上升支和下降支的最大斜率,绿色框表示峰的起始点,蓝色框表示基线。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
按照上述方案,应可获得结构良好的人源心脏类器官(hCOs),其通常在分化第7至12天(D7-12)开始出现搏动。当hCOs发育超过第25天后,可能需要电刺激起搏才能观察到自发性收缩。缺氧/复氧(H/R)损伤可在hCOs开始搏动后的任意时间进行——我们通常在15天龄(D15)或更晚阶段的hCOs上实施损伤实验。
损伤确认
与人类心肌梗死类似,hCOs 的缺氧/复氧(H/R)损伤会导致细胞死亡。临床上,可通过检测细胞死亡后释放到循环中的蛋白质(如乳酸脱氢酶(LDH)、心肌肌钙蛋白、肌红蛋白或肌酸激酶)来评估心肌损伤程度。同样,在 hCOs 发生 H/R 损伤后,可轻松检测其培养基中 LDH 的释放情况。图 4A 展示了使用商业化的基于微孔板的生物发光法检测 D21-D28 hCOs 在 H/R 损伤后 24 小时 LDH 释放的代表性结果。与未受损的 hCOs 相比,在经历 6 小时缺氧和 24 小时复灌注后,细胞外 LDH 活性显著升高(1518 ± 454.9 RLU 对比 854...
访问受限。请登录或开始试用以查看此内容。
讨论
本文介绍了一种逐步生成并利用缺氧/复氧(H/R)方法损伤自组装人源心脏类器官(hCOs)的实验方案。缺血性心脏病的特征是发生病理生理学重塑,包括心肌细胞死亡、纤维化重塑、电功能障碍以及功能衰退。这些病理改变在hCO模型系统中均能被观察到,表现为TUNEL+心肌细胞数量增加、乳酸脱氢酶(LDH)释放增多、Vimentin+组织区域扩大,以及钙处理异常导致的功能同步性丧失。值得注意的是,尽管hCOs本身仍处于相对未成熟状态,但并未表现出组织再生的证据。因此,该H/R模型不仅可用于在无需漫长成熟培养流程的前提下测试促进再生的干预措施,还可作为筛选心脏保护类治疗药物的实用平台。
目前已有多种生成人脑类器官(hCOs)的方案,本方案基于Hofbauer等人首次描述的2D-3D分化法建立 2021年20,29先前使用自组装人脑类器官(hCOs)的损伤模型采用的是冷冻损伤法,该方法需要手动使用细小探针对单个hCOs进行损伤
访问受限。请登录或开始试用以查看此内容。
致谢
本研究由 R01 HL157277(RK)、AHA 24PRE1186062(LP)、F30 HL175908-01(LP)以及杜克大学医学科学家培训项目 T32 5T32GM145449-03(LP)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Accutase 溶液 | Sigma-Aldrich | A6964-500ML | |
| 抗心肌肌钙蛋白T抗体 | Abcam | EPR20266 | |
| B-27添加剂(50倍浓缩,无血清) | Gibco | 17504044 | |
| B-27 补充剂,不含胰岛素 | Gibco | A1895602 | |
| BioTek Synergy Neo2 酶标仪 | BioTek | ||
| Cal-520, AM | AAT Bioquest | 21131 | |
| CardioCount V1 | Karra 实验室 | PMID: 38984052 | |
| 细胞系智人,雄性)- DU11 iPSC 系 | 杜克大学干细胞中心 | ||
| 带电显微镜载玻片,白色玻璃 | VWR | 89500-496 | |
| CHIR 99021 | Tocris | 4423 | |
| CloneR | STEMCELL Technologies | 5888 | |
| Corning 96孔透明超低吸附微孔板 | Fisher | 7007 | |
| 一次性移液储液槽 | VWR | 89094-678 | |
| DMEM/F-12,HEPES | Gibco | 11330057 | |
| EVOS 荧光显微镜 | EVOS | ||
| Geltrex 低生长因子基底膜基质,无LDEV,干细胞认证 | Gibco | A1413302 | |
| 人激活素A重组蛋白 | PEPROTECH 公司/Life Technologies | 120-14E-50UG | |
| IWP-2 | STEMCELL Technologies | 72124 | |
| L-抗坏血酸(结晶型/符合美国化学会标准) | Fisher Scientific | A61-100 | |
| 小鼠抗波形蛋白 | DSHB | AMF-17b | |
| mTeSR Plus | STEMCELL Technologies | 100-0276 | |
| 多孔细胞培养板 – 12孔板 | VWR | 10062-894 | |
| Pluronic F-127 | Sigma-Aldrich | P2443 | |
| ReLeSR | STEMCELL Technologies | 100-0483 | |
| RPMI 1640培养基 | Gibco | 11875119 | |
| RPMI 1640 培养基,无酚红 | Gibco | 11835-030 | |
| Thiazovivin | STEMCELL Technologies | 72254 | |
| Tissue-Tek O.C.T. 化合物 | SAKURA FINETEK USA INC (VWR) | 25608-930 | |
| 蔡司转盘共聚焦显微镜 | Zeiss |
参考文献
- Bozkurt, B., et al. Heart failure epidemiology and outcomes statistics: A report of the Heart Failure Society of America. J Card Fail. 29 (10), 1412-1451 (2023).
- Groenewegen, A., Rutten, F. H., Mosterd, A., Hoes, A. W. Epidemiology of heart failure. Eur J Heart Fail. 22 (8), 1342-1356 (2020).
- Ss, M., et al. 2025 heart disease and stroke statistics: A report of us and global data from the american heart association. Circulation. 151 (8), e41-e660 (2025).
- Sebastião, M. J., et al. Bioreactor-based 3d human myocardial ischemia/reperfusion in vitro model: A novel tool to unveil key paracrine factors upon acute myocardial infarction. Transl Res. 215, 57-74 (2020).
- Chen, T., Vunjak-Novakovic, G. Human tissue-engineered model of myocardial ischemia-reperfusion injury. Tissue Eng Part A. 25 (9-10), 711-724 (2019).
- Frangogiannis, N. G. Why animal model studies are lost in translation. J Cardiovasc Aging. 2 (2), 22(2022).
- Forrest, M. J., et al. Torcetrapib-induced blood pressure elevation is independent of cetp inhibition and is accompanied by increased circulating levels of aldosterone. Br J Pharmacol. 154 (7), 1465-1473 (2008).
- Barter, P. J., et al. Effects of torcetrapib in patients at high risk for coronary events. New Engl J Med. 357 (21), 2109-2122 (2007).
- Wilensky, R. L., et al. Inhibition of lipoprotein-associated phospholipase a2 reduces complex coronary atherosclerotic plaque development. Nat Med. 14 (10), 1059-1066 (2008).
- Investigators, T. S. Darapladib for preventing ischemic events in stable coronary heart disease. New Engl J Med. 370 (18), 1702-1711 (2014).
- Debenedittis, P., et al. Coupled myovascular expansion directs cardiac growth and regeneration. Development. 149 (18), dev200654(2022).
- Hojo, Y., et al. Expression of vascular endothelial growth factor in patients with acute myocardial infarction. J Am College Cardiol. 35 (4), 968-973 (2000).
- Lodrini, A. M., et al. Modeling cardiac injury using human cardiac slices to test therapeutic approaches for cardiac regeneration and repair. Eur Heart J. 44 (Supplement_2), ehad655.730(2023).
- Arstall, M. A., et al. Human ventricular myocytes in vitro exhibit both early and delayed preconditioning responses to simulated ischemia. J Mol Cell Cardiol. 30 (5), 1019-1025 (1998).
- Chen, I. Y., Matsa, E., Wu, J. C. Induced pluripotent stem cells: At the heart of cardiovascular precision medicine. Nat Rev. Cardiol. 13 (6), 333-349 (2016).
- Narsinh, N., Narsinh, K. H., Wu, J. C. Derivation of human induced pluripotent stem cells for cardiovascular disease modeling. Circ Res. 108 (9), 1146-1156 (2011).
- Lundy, S. D., Zhu, W. Z., Regnier, M., Laflamme, M. A. Structural and functional maturation of cardiomyocytes derived from human pluripotent stem cells. Stem Cells Dev. 22 (14), 1991-2002 (2013).
- Lyra-Leite, D. M., Fonoudi, H., Gharib, M., Burridge, P. W. An updated protocol for the cost-effective and weekend-free culture of human induced pluripotent stem cells. STAR Protoc. 2 (1), 100213(2021).
- Lyra-Leite, D. M., et al. A review of protocols for human ipsc culture, cardiac differentiation, subtype-specification, maturation, and direct reprogramming. STAR Protoc. 3 (3), 101560(2022).
- Hofbauer, P., Jahnel, S. M., Mendjan, S. In vitro models of the human heart. Development. 148 (16), dev199672(2021).
- Shadrin, I. Y., et al. Cardiopatch platform enables maturation and scale-up of human pluripotent stem cell-derived engineered heart tissues. Nat Commun. 8 (1), 1825(2017).
- Baar, K., et al. Self-organization of rat cardiac cells into contractile 3-d cardiac tissue. Faseb J. 19 (2), 275-277 (2005).
- Ronaldson-Bouchard, K., et al. Advanced maturation of human cardiac tissue grown from pluripotent stem cells. Nature. 556 (7700), 239-243 (2018).
- Kahn-Krell, A., et al. A three-dimensional culture system for generating cardiac spheroids composed of cardiomyocytes, endothelial cells, smooth-muscle cells, and cardiac fibroblasts derived from human induced-pluripotent stem cells. Front Bioeng Biotechnol. 10, 908848(2022).
- Lewis-Israeli, Y. R., Volmert, B. D., Gabalski, M. A., Huang, A. R., Aguirre, A. Generating self-assembling human heart organoids derived from pluripotent stem cells. J Vis Exp. (175), e63097(2021).
- Lewis-Israeli, Y. R., et al. Self-assembling human heart organoids for the modeling of cardiac development and congenital heart disease. Nat Commun. 12 (1), 5142(2021).
- Jackman, C. P., et al. Engineered cardiac tissue patch maintains structural and electrical properties after epicardial implantation. Biomaterials. 159, 48-58 (2018).
- Deluca, S., et al. Engineered cardiac tissues as a platform for crispr-based mitogen discovery. Adv Healthc Mater. 14 (1), e2402201(2025).
- Hofbauer, P., et al. Cardioids reveal self-organizing principles of human cardiogenesis. Cell. 184 (12), 3299-3317.e22 (2021).
- Schmidt, C., et al. Multi-chamber cardioids unravel human heart development and cardiac defects. Biorxiv. , (2022).
- Hoang, P., et al. Engineering spatial-organized cardiac organoids for developmental toxicity testing. Stem Cell Rep. 16 (5), 1228-1244 (2021).
- Richards, D. J., et al. Human cardiac organoids for the modelling of myocardial infarction and drug cardiotoxicity. Nat Biomed Eng. 4 (4), 446-462 (2020).
- Abdallah, H., Toomey, K., O'riordan, A. C., Davidson, A., Marks, L. A. Familial occurrence of discrete subaortic membrane. Pediatr Cardiol. 15 (4), 198-200 (1994).
- Lin, H., McBride, K. L., Garg, V., Zhao, M. T. Decoding genetics of congenital heart disease using patient-derived induced pluripotent stem cells (iPSCs). Front Cell Dev Biol. 9, 630069(2021).
- Keung, W., et al. Human cardiac ventricular-like organoid chambers and tissue strips from pluripotent stem cells as a two-tiered assay for inotropic responses. Clin Pharmacol Ther. 106 (2), 402-414 (2019).
- Kupfer, M. E., et al. In situ expansion, differentiation, and electromechanical coupling of human cardiac muscle in a 3d bioprinted, chambered organoid. Circ Res. 127 (2), 207-224 (2020).
- Marini, V., et al. Long-term culture of patient-derived cardiac organoids recapitulated duchenne muscular dystrophy cardiomyopathy and disease progression. Front Cell Dev Biol. 10, 878311(2022).
- Mills, R. J., et al. Drug screening in human psc-cardiac organoids identifies pro-proliferative compounds acting via the mevalonate pathway. Cell Stem Cell. 24 (6), 895-907.e6 (2019).
- Mills, R. J., et al. Functional screening in human cardiac organoids reveals a metabolic mechanism for cardiomyocyte cell cycle arrest. Proc Natl Acad Sci U S A. 114 (40), E8372-E8381 (2017).
- Karpurapu, A., et al. Deep learning resolves myocardial dynamics in the failing human heart. JACC Basic Transl Sci. 9 (5), 674-686 (2024).
- Pasqualin, C., et al. Spiky: An imagej plugin for data analysis of functional cardiac and cardiomyocyte studies. J Imaging. 8 (4), 95(2022).
- Kuppe, C., et al. Spatial multi-omic map of human myocardial infarction. Nature. 608, 7924(2022).
- Karra, R., et al. Vegfaa instructs cardiac muscle hyperplasia in adult zebrafish. Proc Natl Acad Sci U S A. 115 (35), 8805-8810 (2018).
- Ab, A., et al. Macrophages are required for neonatal heart regeneration. J CliniInvest. 124 (3), 1382-1392 (2014).
- Lai, S. L., et al. Reciprocal analyses in zebrafish and medaka reveal that harnessing the immune response promotes cardiac regeneration. Elife. 6, e25605(2017).
访问受限。请登录或开始试用以查看此内容。
重印与许可
