在青春期前大脑中表达病毒载体的能力对于研究脑发育的细胞和环路机制至关重要。本文介绍了一种在出生后第11至12天(P11-P12)的幼鼠中进行立体定位病毒注射手术的方案,并提供了术后护理的指导建议。
本文内容
摘要
摘要
理解出生后阶段的发育、细胞和神经环路过程,对于阐明大脑发育的复杂性及其对行为与社会成熟的影响至关重要。从婴儿期到成年期的过渡伴随着显著的神经生物学变化,包括突触修剪和髓鞘化,这些过程对认知能力、情绪调节和社会互动具有基础性作用。通过研究青春期前小鼠的大脑发育,研究人员能够识别支持大脑健康生长的关键时期,并为神经发育障碍建立及时的干预策略。为了精确解析脑功能,立体定位手术已成为神经科学研究中的关键技术,能够以前所未有的精度靶向特定脑区,并实现病毒载体的递送。尽管立体定位手术在成年小鼠中已被神经生物学实验室广泛采用,但针对青春期前小鼠的立体定位手术操作指南极为有限,尤其缺乏确保幼鼠术后成功回归母鼠和同窝幼崽的关键护理措施。本文介绍了一种针对幼龄小鼠(P11-P12)的立体定位手术及病毒注射方案,重点阐述麻醉与镇痛给药、术后护理注意事项,以及与成年小鼠手术操作的差异。通过更新目标脑区的坐标参数,该方案可应用于任意感兴趣的脑区,并可调整用于出生后发育更晚阶段(如幼年期,P15-P30)的脑区靶向研究。总体而言,本方案为研究出生后大脑发育与功能提供了一个可行的起点。
引言
婴儿期和青春期是大脑发育的关键产后阶段,其特征是髓鞘形成、突触生成和突触修剪,这些过程有助于神经环路的精细化1,2。社会行为(包括求偶、攻击性和社交游戏)的出现发生在围青春期(P28–40)3,并受到循环类固醇激素的严格调控4,5。尽管在解析成年个体社会行为细胞基础的工具方面已取得显著进展,但关于社会行为在产后发育过程中出现背后的神经机制仍知之甚少。导致对发育中社会环路理解不足的原因包括:1)在幼鼠中实施手术存在挑战,例如立体定位装置未针对更小龄小鼠进行优化;2)手术期间镇痛与麻醉的安全性和有效性难以平衡6;以及3)母鼠在术后对幼鼠的接受程度。此外,目前用于在早期产后时间点递送遗传载体的方法,例如胚胎内电穿孔7、新生小鼠脑内脑室病毒注射(P0–P10)8,或重组酶驱动系与响应系的遗传杂交9,均不够理想,因其缺乏精确靶向性,且主要聚焦于胚胎期或P0阶段的靶向操作。
本文提供了一种针对幼年小鼠(P11-P12)的立体定位手术简易方案及术后护理措施,以支持其术后顺利与母鼠及同窝幼鼠重新融合。本方案基于现有的成年小鼠立体定位手术流程10,仅需对立体定位装置进行微小调整。我们还详细介绍了幼年小鼠的术后护理、麻醉与镇痛操作的具体指导。选择P11-P12作为手术时间点,是因为病毒表达需要约两周的孵育期,因此可在P24开始进行in vivo检测,早于围青春期(P28-P40)3。然而,该方案同样适用于更晚时间点的立体定位手术。本研究聚焦于发育中的内侧杏仁核(MeA),这是杏仁核的一个亚区,以其在多种社会行为中的作用为特征11,12。我们特别关注表达Foxp2的MeA神经元亚群(MeAFoxp2)13,Foxp2是一种叉头框转录因子。我们先前的研究发现,在雄性小鼠出生后发育过程中,这些细胞在in vivo水平上对雄性感觉信号的处理具有独特的神经连接特性14。此外,MeAFoxp2神经元亚群在双向调控雄性领地攻击行为中起必需作用14。总体而言,本方案使神经科学家能够在脑发育的关键出生后阶段,将病毒载体精确递送至目标脑区,从而研究青春期及成年期社会行为与亲和行为的细胞与神经环路基础。
方案
本实验程序已获得国家环境卫生科学研究所动物护理和使用委员会的批准,并符合美国国立卫生研究院关于动物使用与护理的指南。在手术过程中以及接触动物时,全程穿戴适当的人体防护装备,包括手套、口罩、一次性防护服、发网和鞋套。
1. 小鼠立体定位仪的准备与调整(图1)
- 使用适用于幼鼠的立体定位仪及其配件,包括一对无创耳杆、改良的气体麻醉头固定器,以及适用于P12幼鼠的腭杆。
- 用玻璃珠灭菌器对所有手术器械进行消毒(250 °C,小型器械30秒,大型器械1分钟)。灭菌后将无菌器械放置在无菌手术单上。整个手术过程中,无菌器械应始终保持在无菌区域内。
- 在立体定位仪上,将另一张无菌手术单覆盖于温度约为37 oC的加热垫上,以在整个手术过程中维持幼鼠的体温恒定。手术过程中应持续监测加热垫的温度。
2. 小鼠手术准备、立体定位放置、调平及开颅术
- 测量小鼠体重,以提供适当的镇痛剂量。
- 将小鼠放入含有3%异氟烷、氧气流速为0.9 L/min的诱导室中。检查小鼠呼吸频率是否降至约每秒1次,并通过测试足底回缩反射确认无反应。将异氟烷/氧气气流切换至立体定位仪,并将异氟烷浓度降至2%。
注意:在整个手术过程中,必须每隔5分钟通过足底回缩反射无反应来确认麻醉充分。在整个手术期间密切观察小鼠的呼吸模式。根据需要调整异氟烷浓度,使用最低有效浓度维持深度麻醉,避免麻醉过量。 - 将小鼠固定在改良的立体定位装置上,使用适用于幼鼠的立体定位配件。将无穿刺耳杆置于小鼠头部两侧,并调整耳杆标尺,使其相对于立体定位仪标尺两侧距离相等。对于P11幼鼠,将立体定位仪标尺设置为5 mm。
注意:P11幼鼠通常尚未睁眼,因此无需使用眼部润滑剂。到P12时,部分幼鼠已睁眼。若幼鼠眼睛已睁开,应在手术期间按需涂抹并重复涂抹眼用软膏。 - 使用1 mL注射器和27 G针头,经皮下(s.c.)肩胛间途径注射5 mg/kg美洛昔康。
- 将0.5%布比卡因(5 mg/mL)用生理盐水稀释至0.5 mg/mL(1:10),并在头部皮肤下进行皮下注射(例如,对于5 g幼鼠注射0.05 mL)。
注意:步骤2.6至3.15应佩戴无菌手套操作。 - 使用小剪刀沿头部中线做1.5 cm切口。
- 使用无菌棉签蘸取聚维酮碘,小心清除颅骨表面的软组织。
- 将拉制的玻璃毛细管(长约0.8 mm)插入玻璃移液器 holder 中,并将 holder 安装在立体定位仪的垂直臂上。
注意:步骤2.9至3.10应在解剖显微镜下进行。 - 调平颅骨表面的前后角度:
- 将毛细管移至背侧静脉窦吻合部(RCS)点(图2),参照Chan等15所述方法。
- 在2倍放大倍率的显微镜下,当毛细管轻微接触RCS点处颅骨时,通过立体定位仪的数字显示控制台将X(内侧-外侧)、Y(前-后)和Z(背-腹)坐标归零。
- 将毛细管移至λ点(Y = -7.30 mm),并降低毛细管使其轻微接触颅骨(图2)。
- 检查Z坐标的数值,并调节立体定位装置的前后倾斜角度以调整头部倾斜角。重复步骤2.9.1至2.9.3,直至RCS与λ点之间的Z坐标差值<0.02 mm。
- 调平颅骨表面的内侧-外侧角度:
- 将毛细管移至RCS点。
- 当毛细管轻微接触RCS点处颅骨时,将X(内侧-外侧)和Y(前-后)坐标归零。
- 为利用后背内侧杏仁核(MeApd)坐标调平头部,将毛细管移至X = +2.50 mm,Y = -4.20 mm,并在毛细管轻微接触颅骨时将Z(背-腹)坐标归零。
- 将毛细管移至对侧半球的X = -2.50 mm,Y = -4.20 mm,并降低毛细管使其轻微接触颅骨。
- 检查Z坐标数值,并调节立体定位装置的内侧-外侧轴以改变头部倾斜角度。重复步骤2.10.1至2.10.4,直至左右半球间Z坐标差值<0.03 mm。
- 取下毛细管 holder,并将装有#75钻头的微型钻头安装至立体定位臂上的钻头 holder 中。
- 将钻头尖端置于RCS点上方,将X(内侧-外侧)和Y(前-后)坐标归零。移动至X = ±2.03 mm,Y = -4.20 mm,以定位P11幼鼠的MeApd区域。
- 在颅骨上钻出直径为0.5 mm的颅骨开窗。
- 使用精细擦拭纸和棉签,以无菌生理盐水小心清洁颅骨表面。
注意:应定期使用无菌生理盐水保持颅骨表面湿润。
3. 病毒注射
- 使用微填充柔性针将矿物油注入一支新的毛细管中。
- 将毛细管连接至纳升注射器并拧紧固定。
- 取下微型钻头,并将纳升注射器安装到垂直立体定位臂上。
- 以 10 nL/s 的速度回抽至少两倍于手术所需量的病毒(此处为 400 nL)。
注意:在获得机构批准后,可使用任何感兴趣的 AAV 病毒进行病毒注射。本方案中使用的是 AAV2-DIO-mCherry(BSL-1,2.5 E+13 vg/mL,3 µl/管,-80 °C 保存,手术前转移至冰上)。 - 将毛细管移至 RCS 点,并将 X 和 Y 坐标归零。
- 将毛细管移至目标脑区(此处为 MeApd,坐标:X = ±2.03 mm,Y = -4.20 mm,Z = -5.08 mm,相对于 RCS)。
- 将毛细管下降至颅骨表面,然后将 Z 坐标归零。
- 通过将毛细管下降至目标深度后再将其从脑组织中缓慢撤出,以建立注射通路。
- 注射约 8 nL 病毒,以确认毛细管在重新插入脑组织前未发生堵塞。若发生堵塞,可在擦拭纸上滴加无菌生理盐水,轻轻擦拭毛细管侧面和底部以清除阻塞物。
- 再次将毛细管下降至目标深度,并以 20 nL/min 的速度注入所需剂量的病毒(本例中为 150 nL)。
- 注射完成后,等待 5 分钟后再缓慢撤出毛细管。
- 如有需要,重复步骤 3.4–3.11,对对侧半球进行病毒注射。
- 从纳升注射器上取下毛细管。将使用过的毛细管和病毒管丢弃至含有 10% 漂白液的 50 mL 离心管中。
注意:各实验室应严格遵守所在机构生物与生物安全部门制定的所有废弃物处理、泄漏处置及生物安全合规指南。 - 使用不可吸收的 7-0 缝线缝合皮肤。缝合时可轻轻提起毛发,使缝线隐藏于毛发下方。
注意:通常 3–4 针即可满足需求。根据我们的经验,使用 7-0 缝线可有效防止幼鼠放回饲养笼后因母鼠舔舐导致缝线撕裂。 - 用无菌棉签先以 3% 过氧化氢擦拭缝合区域,再用生理盐水擦拭。
注意:手术通常持续 1 至 2 小时,具体时间取决于注射病毒的数量。病毒通常需要至少 2 周时间以实现充分表达。
4. 术后护理
- 将幼鼠从立体定位仪中取出,放入置于加热垫上的清洁笼具中。为防止脱水,建议注射无菌生理盐水溶液。
- 持续监测幼鼠直至其能够自主活动。
- 当幼鼠能够在笼内自由移动后,将母鼠转移至另一个清洁笼具中约 2 分钟。
- 将幼鼠放回其原始的家笼中,与同窝幼鼠放在一起。用其家笼中的巢材和垫料仔细擦拭所有幼鼠,然后将其放回巢中。随后将母鼠重新放回笼中。
- 密切观察母鼠和幼鼠,确认母鼠返回巢穴并舔舐手术幼鼠,但未撕扯缝线。
- 若术后 1 小时内母鼠仍未接受手术幼鼠,则使用代乳母鼠。若某母鼠此前已表现出对幼鼠的接受性,则建议在后续繁殖中继续使用该母鼠(此前观察显示,首次接受幼鼠的母鼠对后续幼鼠的接受率为 100%)。
- 术后 24 小时,检查切口部位,并皮下注射美洛昔康(5 mg/kg)。
- 术后护理成功后,将手术小鼠与母鼠及同窝幼鼠共同饲养至出生后 21 天(P21)断奶。术后 10–14 天内拆除所有可见缝线。
注意:手术小鼠在食物摄入量、体重或运动行为方面,预期不会与同窝对照小鼠出现显著差异。
术后至少连续 2 天每日监测幼鼠,之后每周至少监测 2 次。人道终点标准:若幼鼠术后 2 小时仍无法自主活动,则实施人道安乐死;若幼鼠术后出现体重下降和/或运动能力减弱,亦应实施人道安乐死。
结果
异氟烷、布比卡因和美洛昔康联合用药在幼鼠手术中的安全性
在幼鼠中使用麻醉和镇痛药物的安全性仍不明确6。因此,我们测试了在幼鼠中联合使用麻醉和镇痛药物的方案,以评估其存活率。P11阶段的幼鼠(体重 = 6.09 ± 0.90 g,最低体重为3.9 g;n=13)被放入诱导室,接受3%异氟烷(氧气流速0.9 L/min)进行初始麻醉。当幼鼠失去意识且对足底回缩反射无反应时,将其转移至立体定位仪,并将异氟烷浓度降低至1.5–2%(氧气流速0.9 L/min),同时使用加热垫维持体温(41.23 ± 2.28 °C)。将幼鼠固定于立体定位仪后,皮下注射肩胛间区给予镇痛药物(5 mg/kg 美洛昔康),并在头部皮肤下方皮下注射局部麻醉药物(0.05 mg/mL 布比卡因)。30分钟后,将幼鼠从立体定位装置中取出并放入清洁笼具中。在给予镇痛药物30分钟后,观察到100%的存活率(13/13)。此外,在术后24小时和72小时以及成年期均未观察到任何并发症。这些结果表明,将局部麻醉药与非甾体抗炎药联合使用对幼鼠是安全的,并可有效减轻疼痛和应激反应。
精确且准确地将病毒递送至内侧杏仁核后部
为验证婴儿期立体定位手术中病毒递送的准确性和精确性,我们在出生后第11天(P11)将AAV2-hSyn-DIO-mCherry双侧注入Foxp2cre+/-雄性小鼠的MeApd区域(图3A)。小鼠在P21断奶。在P45时,按照本课题组14及其他研究者16先前描述的方法采集小鼠脑组织进行免疫组织化学染色和图像分析(图3B、C)。小鼠经麻醉后,以10 mL/min的速度先后灌注30 mL 1× PBS和30 mL 4%多聚甲醛(PFA)。脑组织在4% PFA中4 °C下后固定过夜,随后在30%蔗糖中进行 cryoprotection(冷冻保护),包埋于O.C.T.中,并在恒冷切片机上切成50 µm厚的切片。每隔三个切片取一片进行免疫组织化学处理,方法如前所述14。游离切片在10%正常驴血清中封闭,与一抗在4 °C孵育过夜,洗涤后与二抗(Alexa Fluor 488 AffiniPure 驴抗兔IgG (H+L))在室温孵育4小时,再次洗涤,最后用含DAPI的封片剂封片。脑切片使用Foxp2抗体进行染色。
为验证靶向效率,我们检测了mCherry的共表达情况+ 和 Foxp2+ MeA 中的细胞,观察到不同细胞群之间有 90.2% ± 2.1 的重叠,表明 mCherry 的表达以依赖 cre 的方式特异性局限于 Foxp2+ 细胞图3D)。该结果凸显了采用本方案进行病毒注射的高效性。此外,我们通过分析MeApd中mCherry+细胞占所有区域mCherry阳性细胞总数的百分比,评估了病毒注射的准确性。结果显示,MeApd区域的mCherry+细胞占比为93.7% ± 1.4+ 细胞位于MeApd内,表明病毒的空间表达局限于我们的目标区域(图3E).

图1:幼鼠立体定位手术装置示意图。(A)立体定位仪。(B)非穿刺式耳杆。(C)用于出生后12天(P12)幼鼠的气体麻醉头固定器及腭杆。(D)珠式灭菌器。(E)加热垫控制器。(F)立体定位臂。(G)纳升级注射器。请点击此处查看该图的放大版本。

图 2:P11 小鼠颅骨的主要解剖标志。(A) 婴儿期小鼠颅骨主要解剖标志的示意图。(B) 婴儿期小鼠头部通过特制的立体定位附件固定,包括无损伤耳杆、改良的气体头夹以及适用于 P12 小鼠的颗粒固定杆。缩写:RCS = 静脉窦前汇合点,SSS = 上矢状窦,RRV = 前嗅静脉,SOS = 上嗅窦。请点击此处查看该图的放大版本。
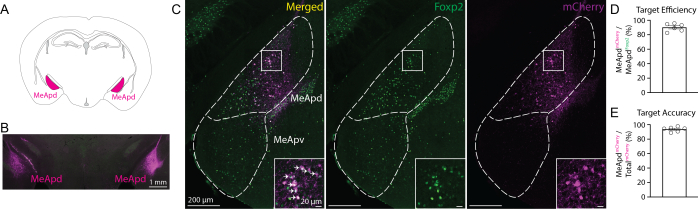
图3:婴儿期立体定位手术后MeApd中的靶向双侧病毒表达。(A)MeApd的示意图(冠状面视图)。(B)Foxp2cre+/-成年雄性小鼠中Foxp2抗体(绿色)和mCherry+细胞(品红色)双侧表达的代表性组织学图像。(C)MeA区域合并通道及单独通道的放大视图。白色箭头表示共标记的Foxp2抗体和mCherry+细胞。(D)注射效率。(E)注射准确性。(D, E)n=3只小鼠,每只小鼠的左右半球。缩写:MeApd = 内侧杏仁核后背侧部;MeApv = 内侧杏仁核后腹侧部。请点击此处查看该图的放大版本。
| 方法 | 优点 | 缺点 | 参考文献 |
| 子宫内电穿孔 | 可转染较大质粒 | 缺乏精确定位、存在毒性、需要高操作技能 | Wang, et al., Methods Mol Biol. (2013). |
| 脑室内病毒注射 | 快速、简便、经济 | 缺乏精确定位、存在杀婴风险 | Kim, et al., J Vis Exp. (2014). |
| P0期立体定位微量注射 | 精确定位、母体排斥风险较低 | 病毒导致的细胞毒性、不适用于研究青春期后时间点 | Chen, et al., J Vis Exp. (2018). |
| 重组酶品系遗传杂交 | 非侵入性 | 缺乏精确定位、成本高 | Robertson et al., Nat Neurosci. (2013). |
表1:以往用于研究啮齿类动物细胞和环路胚胎及出生后发育的方法概述。
讨论
研究出生后发育过程中社会行为背后的神经机制,对于理解这些行为的产生方式以及环境因素或神经发育障碍如何破坏这些机制至关重要。本研究描述了一种详细的立体定位手术方案,可将病毒精确且高效地递送至出生后11-12天(P11-12)幼鼠的大脑中。因此,该方案允许在青春期前后利用病毒策略对分子定义的神经元亚群进行操控、记录和环路研究。我们重点介绍了术前和术后的改进措施与护理要点,以及一种对幼鼠耐受性良好的麻醉与镇痛药物组合方案。
婴儿期立体定位手术的一个关键且具有挑战性的环节是成功将幼鼠放回其原生笼子中,与母鼠及其同窝幼鼠团聚。为确保幼鼠在返回笼子后得到适当的照料,母鼠应将幼鼠叼回并进行理毛(但不应过度理毛),同时需密切监测任何可能的忽视迹象。由于幼鼠头部存在手术切口和缝线,母鼠可能会过度舔舐头部区域,从而导致缝线撕裂或脱落。这种情况将对幼鼠造成严重伤害,因此术后密切观察母鼠对幼鼠的行为对于确保其存活至关重要。为了提高母鼠在术后对幼鼠的接受程度,我们建议在缝合后使用过氧化氢和生理盐水清洁皮肤及毛发上残留的血迹,并使用比成年鼠更细的缝线(7-0,而成年鼠通常使用5-0)。采用这两种策略后,母鼠均能接受术后幼鼠。
此外,本研究为婴儿手术中麻醉和镇痛的安全使用提供了指导。这一点至关重要,因为新生儿和幼鼠对镇痛药和麻醉药的耐受性不如成年个体,可能导致严重的呼吸和心脏不良反应6。我们观察到,经口给予的异氟烷麻醉,以及皮下注射(分别在门齿间和头部皮肤下)美洛昔康与布比卡因联合镇痛,在幼鼠中耐受良好,并实现了长期存活。此外,我们先前的研究表明,在幼鼠接受立体定位手术后两周,其对同种个体的探究时间与未接受手术的同龄对照组幼鼠相似14。因此,这些结果表明幼鼠术后恢复充分,且未出现明显的运动功能缺陷。需要注意的是,本研究未在手术过程中持续监测血氧水平。应使用脉搏血氧仪监测血氧饱和度,以防止发生低氧血症17。
该方案的另一个关键组成部分是基于矢状面中线上的λ点和RCS的立体定位坐标系统15。RCS是一个解剖标志,定义为矢状面中线上矢状窦与嗅束上窦交汇处的连接点。研究表明,在头部整体对齐后,与其他背侧标志相比,该标志的位置变异性始终更低。这是因为与bregma/λ相比,RCS/λ之间更大的间距能够提高动物间水平角度的稳定性和可重复性15。
以往研究神经元发育的方法主要集中在胚胎期和出生后第0天(P0)的病毒学策略,或通过遗传杂交对目标细胞进行命运图谱分析(表1)。诸如子宫内电穿孔和脑室内病毒注射等技术缺乏精确的靶向性。在P0时期进行靶向病毒注射18,可通过将病毒载体精确注射至目标区域来克服这一问题。然而,病毒载体在数周后可能产生细胞毒性,导致细胞死亡。因此,若在新生个体脑内注射病毒载体以开展可能延续至成年期的长期青春期研究,可能并非理想选择。因此,我们的方法将病毒注射时间设定在出生后一周半,从而降低了青春期期间细胞毒性的风险。
尽管本方法具有诸多优势,但仍需考虑若干问题。首先,用于幼鼠的脑立体定位坐标需对成年鼠所用坐标进行调整。例如,在P11幼鼠中,我们采用以下坐标定位MeApd:X = +2.03 mm,Y = -4.20 mm,Z = -5.08 mm;而成年鼠所用坐标为X = +2.15 mm,Y = -5.00 mm,Z = -5.10 mm。遗憾的是,目前针对青春期前小鼠的脑图谱参考资源相对较少。19 比成年小鼠的(艾伦小鼠脑图谱,mouse.brain-map.org 和 atlas.brain-map.org)20,21因此,为了在MeA以外的其他脑区成功实现准确的病毒靶向,研究人员需要获得坐标的合理估计值,并进行坐标验证。其次,需要考虑AAV的孵育时间。AAV表达的最佳孵育时间 体内 至少需要2-3周。考虑到本实验方案中立体定位手术是在出生后第11天(P11)的幼鼠中进行,研究人员只能在术后经过最佳AAV孵育期后,即出生后第25天(P25)开始对小鼠进行检测。
总体而言,本方案为研究人员利用病毒载体在幼鼠中高精度靶向特定脑区提供了详细的指导。该方法具有显著优势,灵活性极高:可注射任何商业或自行构建的AAV载体。因此,该方法可用于研究分子定义的特定细胞亚群及其解剖环路、神经元动态以及在青春期前后这一与社会行为出现相吻合的关键时间窗口内的细胞功能。此外,该方法不仅适用于靶向杏仁核(如此处所示),还可成功靶向其他皮层下结构(如下丘脑)以及皮层区域。
披露
作者声明无任何利益冲突。
致谢
我们感谢美国国立环境卫生科学研究所(NIEHS/NIH)比较医学处(CMB)的 Andrew Gorman 博士、Donna Webb 博士和 David Goulding 在啮齿类动物手术麻醉与镇痛最佳实践方面的宝贵讨论。我们还感谢 NIEHS 比较医学处全体成员对实验动物的悉心照护,以及神经行为回路研究组所有成员的支持。本研究由美国国立环境卫生科学研究所国家卫生研究院(NIEHS/NIH)院内研究计划(ZIA ES103403)(J.E.L.)资助。NIH 作者的贡献被视为美国政府作品。本文所述的研究发现和结论仅代表作者观点,不一定反映 NIH 或美国卫生与公共服务部的立场。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| #75 钻头 | 钻头城 | 10WS75-850FL | |
| 27号针头 | Covetrus | 60757 | |
| 3% 过氧化氢 | 天鹅 | NDC 0809-0871-43 | |
| 32% 甲醛多聚物 | 电子显微镜科学公司 | 15714 | |
| AAV2-hSyn-DIO-mCherry | Addgene | 50459-AAV2 | |
| Alexa Fluor 488 AffiniPure 驴抗兔IgG(H+L)(1:1000) | 杰克逊免疫研究公司 | 711-545-152 | |
| 分析天平 | 赛多利斯 | 1102--15 | |
| 聚维酮碘 | Avrio Pharmacy | NDC 67618-155-15 | |
| 布比卡因 | Hospira | NDC 0409-1163-18 | |
| 冷冻切片机 | Leica | CM1950 | |
| 体视显微镜 | 蔡司 | 2149-629 | |
| 眼膏 | 德克拉动物保健 | Puralube | |
| 含DAPI的Fluoromount封片剂 | 赛默飞世尔科技 | 00-4959-52 | |
| Foxp2 抗体(1:1000) | Atlas Antibody/Cosmo Bio | HPA000382 | |
| Foxp2cre+/- 小鼠 | 杰克逊实验室 | 30541 | |
| 用于P12幼鼠的气体麻醉头架和腭杆 | David Kopf Instruments | 1934-C | |
| 玻璃珠灭菌器 | Fisher Scientific | 10-000-632 | |
| 玻璃毛细管 | World Precision Instruments | 504949 | |
| 玻璃移液管夹持器 | David Kopf Instruments | 1975-1.2-A | |
| 加热垫 | Kent Scientific 公司 | RT-0520 | |
| 异氟烷 | Piramal Critical Care | NDC 66794-017-10 | |
| 美洛昔康 | Pivetal 兽用供应公司 | NDC 46066-937-13 | |
| 微型钻机 | David Kopf Instruments | 1911型训练模型 | |
| Microfil 柔性针 | 世界精密仪器公司 | MF28G67-5 | |
| 显微镜载玻片 | 赛默飞世尔科技 | 12-550-15 | |
| 矿物油 | Sigma-Aldrich | M5904-500ML | |
| 纳升级注射器 | World Precision Instruments | NANOLITER2020 | |
| 不可吸收缝线 | AD手术 | S-N718SP13 | |
| 非穿透性耳杆 | David Kopf Instruments | 1921-A | |
| 正常驴血清 | 杰克逊免疫研究实验室 | 017-000-121 | |
| O.C.T. 包埋剂 | 樱花 | 4583 | |
| 立体定位仪 | David Kopf Instruments | 1900 | |
| 无菌棉签 | ULINE | S-21102 | |
| 无菌铺巾 | 布塞医院一次性用品 | 696 | |
| 无菌生理盐水 | Hospira | NDC 0409-1966-02 | |
| 无菌水 | Hospira | NDC 0409-4887-24 | |
| 蔗糖 | Fisher Chemical | S5-500 | |
| 注射器 | Fisher Scientific | 50-252-2568 |
参考文献
- Andersen, S. L. Trajectories of brain development: Point of vulnerability or window of opportunity. Neurosci Biobehav Rev. 27 (1-2), 3-18 (2003).
- Zeiss, C. J. Comparative milestones in rodent and human postnatal central nervous system development. Toxicol Pathol. 49 (8), 1368-1373 (2021).
- Bell, M. R. Comparing postnatal development of gonadal hormones and associated social behaviors in rats, mice, and humans. Endocrinology. 159 (7), 2596-2613 (2018).
- Auger, A. P., Olesen, K. M. Brain sex differences and the organisation of juvenile social play behaviour. J Neuroendocrinol. 21 (6), 519-525 (2009).
- Barkley, M. S., Goldman, B. D. A quantitative study of serum testosterone, sex accessory organ growth, and the development of intermale aggression in the mouse. Horm Behav. 8 (2), 208-218 (1977).
- National Research Council (US) Committee on Guidelines for the Use of Animals in Neuroscience and Behavioral Research. Guidelines for the care and use of mammals in neuroscience and behavioral research. , The National Academies Press. (2003).
- Wang, C., Mei, L. In utero electroporation in mice. Methods Mol Biol. 1018, 151-163 (2013).
- Kim, J. Y., Grunke, S. D., Levites, Y., Golde, T. E., Jankowsky, J. L. Intracerebroventricular viral injection of the neonatal mouse brain for persistent and widespread neuronal transduction. J Vis Exp. (91), e51863(2014).
- Robertson, S. D., Plummer, N. W., De Marchena, J., Jensen, P. Developmental origins of central norepinephrine neuron diversity. Nat Neurosci. 16 (8), 1016-1023 (2013).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Prakash, N., Abu Irqeba, A., Corbin, J. G. Development and function of the medial amygdala. Trends Neurosci. 48 (1), 22-32 (2025).
- Raam, T., Hong, W. Organization of neural circuits underlying social behavior: A consideration of the medial amygdala. Curr Opin Neurobiol. 68, 124-136 (2021).
- Lischinsky, J. E., et al. Embryonic transcription factor expression in mice predicts medial amygdala neuronal identity and sex-specific responses to innate behavioral cues. Elife. 6, e21012(2017).
- Lischinsky, J. E., et al. Transcriptionally defined amygdala subpopulations play distinct roles in innate social behaviors. Nat Neurosci. 26 (12), 2131-2146 (2023).
- Chan, E., Kovacević, N., Ho, S. K., Henkelman, R. M., Henderson, J. T. Development of a high resolution three-dimensional surgical atlas of the murine head for strains 129s1/svimj and c57bl/6j using magnetic resonance imaging and micro-computed tomography. Neuroscience. 144 (2), 604-615 (2007).
- Tu, L., et al. Free-floating immunostaining of mouse brains. Methods Mol Biol. 176, 1-12 (2021).
- Thal, S. C., Plesnila, N. Non-invasive intraoperative monitoring of blood pressure and arterial pCO during surgical anesthesia in mice. J Neurosci Methods. 159 (2), 261-267 (2007).
- Chen, S. -Y., Kuo, H. -Y., Liu, F. -C. Stereotaxic surgery for genetic manipulation in striatal cells of neonatal mouse brains. J Vis Exp. (137), e57270(2018).
- Kronman, F. N., et al. Developmental mouse brain common coordinate framework. Nat Commun. 15 (1), 9072(2024).
- Dong, H. W. The Allen reference atlas: A digital color brain atlas of the C57BL/6J male mouse. , John Wiley & Sons. (2008).
- Paxinos, G., Franklin, K. B. The mouse brain in stereotaxic coordinates. , Academic Press. (2004).
重印与许可
本文已发表
视频即将推出