本方案提供了一种从健康及荷瘤小鼠肺组织中分离高质量单细胞悬液的详细方法。该方案可应用于单细胞RNA测序(scRNA-seq)、流式细胞术分析以及原代细胞的分离。
本文内容
摘要
摘要
非小细胞肺癌(NSCLC)约占肺癌病例的85%,其中Kirsten大鼠肉瘤病毒癌基因同源物(KRAS)是NSCLC中最常发生突变的基因。尽管近年来NSCLC的治疗已取得显著进展,但其异质性和可塑性仍尚未被充分理解。单细胞RNA测序(scRNA-seq)已成为解析肺等复杂组织中细胞异质性的关键工具。然而,从荷瘤肺组织中制备高质量的单细胞悬液仍具挑战性,尤其是在肿瘤形成过程中,组织会变得纤维化且高度异质。成功进行scRNA-seq的关键前提是获得活性高、且在处理过程中受应激或损伤最小的单细胞悬液。本文提供了一套详细的分步操作方案,用于从KrasG12D; tdTomato报告小鼠模型的健康及荷瘤小鼠肺组织中分离高质量的单细胞悬液。该流程包括组织灌注、可控的酶消化、轻柔的机械解离、红细胞裂解、过滤以及细胞活性评估,可在进行scRNA-seq前获得>85%的活细胞。最后,通过该方案可利用FACS高效分离tdTomato+肿瘤细胞,并在scRNA-seq分析中将其识别为独立的细胞簇。
引言
肺癌是全球癌症相关死亡的主要原因之一。肺癌 broadly 可分为两大亚型:小细胞肺癌(SCLC)和非小细胞肺癌(NSCLC)1。其中,非小细胞肺癌约占所有肺癌病例的85%,腺癌是最常见的组织学亚型2。尽管过去几十年中针对非小细胞肺癌的治疗策略已取得显著进展,但肺癌的死亡率仍然很高3。化疗和免疫治疗是临床实践中主要的两种治疗方式;然而,许多患者会出现药物耐药,或对免疫治疗无应答4,5。
肿瘤微环境(TME)在肿瘤的发生、发展及治疗耐药性中发挥关键作用6。越来越多的证据表明,TME的组成随时间动态变化7,8。在肿瘤发生的早期阶段,抗肿瘤免疫细胞通常在TME中富集,而随着肿瘤的进展,免疫抑制性细胞和肿瘤相关细胞群体逐渐占据主导地位9。因此,了解肺癌进展过程中TME的异质性和可塑性,对于阐明疾病机制并改善治疗效果至关重要。
单细胞RNA测序(scRNA-seq)能够在单个细胞水平上实现基因表达的高分辨率分析,从而全面表征复杂组织的转录组10。该技术已成为研究肺癌中细胞异质性以及揭示肿瘤进展和药物耐药机制不可或缺的工具11。制备高质量的单细胞悬液是成功开展scRNA-seq的关键环节,因为在组织解离过程中细胞所受的应激或损伤可能导致结果不准确12,13。
本方案能够对来自荷瘤肺组织的全部单细胞进行RNA测序,无需考虑细胞大小,并且不会丢弃任何活细胞亚群。以往许多研究报道了荷瘤肺组织的单细胞测序,但这些研究要么仅聚焦于肿瘤细胞并丢弃CD45+细胞14,15,16,要么仅关注免疫细胞或其他特定细胞类型17,而舍弃了肿瘤细胞。本方案旨在高效地从完整的荷瘤小鼠肺组织中解离所有类型的细胞,同时确保恶性细胞的有效释放并维持正常细胞的活性。通过包含所有活的单细胞,该方案可实现对荷瘤肺微环境中所有相关细胞类型的系统研究,包括癌相关巨噬细胞样细胞(CAMLs)18。方案中还包含了可选的荧光激活细胞分选(FACS)步骤,用于质量控制及特定细胞群体的富集。此外,当无法立即进行分选时,本方案还提供了有关抗体染色、4’,6-二脒基-2-苯基吲哚(DAPI)标记以及短期固定操作的附加指导。
该方案的一个潜在局限性在于,其优化和验证均针对含有早期肿瘤且肿瘤负荷低于40%的肺组织。对于含有高级别肿瘤或肿瘤负荷超过50%的肺组织,由于致密的间质成分和广泛的纤维化19,20可能阻碍恶性细胞的完全释放,解离效率可能会受到影响。
方案
所有与动物相关的实验均按照斯克里普斯研究所关于动物护理和使用的指南进行,并经斯克里普斯研究所机构动物护理和使用委员会根据方案编号 #10-0019 批准。KrasLSL-G12D/+; TdTomato+/- 小鼠通过将 KrasLSL-G12D/+ 小鼠与 TdTomato 报告小鼠杂交获得。使用9至10周龄的 KrasLSL-G12D/+; TdTomato+/- 小鼠作为肺癌模型。通过气管内感染表达Cre重组酶的慢病毒,病毒滴度为每只小鼠5 × 10⁵ 个噬斑形成单位。在感染25周后收集携带肿瘤的肺组织。可能的消化问题及相应的故障排除方法列于补充表1中。所用试剂和设备详见材料表。
1. 缓冲液的制备
- DMEM/F12 培养基:在 DMEM/F12 培养基中配制 2%(v/v)热灭活胎牛血清。
- 细胞洗涤缓冲液:在无钙、无镁的 PBS 中配制 2%(v/v)热灭活 FBS(pH 7.4)。
- 灌注缓冲液:预冷的 Ca+/毫克+ 游离 PBS(pH 7.4)
- 酶储存液:将10 mg(1600 U/mg)胶原酶IV溶解于1 mL DMEM/F12培养基中,配制成16000 U/mL的胶原酶IV储存液;将42 mg(1.19 U/mg)Dispase II溶解于1 mL DMEM/F12培养基中,配制成50 U/mL的Dispase II储存液;将5 mg DNase I溶解于1 mL DMEM/F12培养基中,配制成5 mg/mL的DNase I储存液。
- 消化液:将250 µL IV型胶原酶、200 µL Dispase II和100 µL DNase I储存液加入5 mL DMEM/F12培养基中,混匀,终浓度为800 U/mL IV型胶原酶、2 U/mL Dispase II和0.1 mg/mL DNase I。
- 重悬缓冲液:将1 µL 0.5 M EDTA(终浓度10 µM)和1 mL热灭活FBS(终体积比2% v/v)加入50 mL Ca+/毫克+ 游离 PBS(pH 7.4)
- BSA 储备液:将 0.5 g BSA 溶解于 100 mL Ca+/毫克+ 用游离 PBS 配制 0.5% (w/v) 的 BSA 储存液。
- FACS 缓冲液:将 2.5 mL 1 M HEPES 和 200 µL 0.5 M EDTA 加入 100 mL BSA 储存液中,终浓度为 25 mM HEPES 和 1 mM EDTA。
2. 小鼠肺组织的采集
注意:所有手术器械在处理不同样品之间均使用70%乙醇进行消毒。各样品在各步骤之间均保持在冰上,所有塑料器皿均经过DNase/RNase-free认证。
- 将小鼠置于 CO2 室中实施安乐死(遵循机构批准的方案)。将小鼠仰卧于解剖垫上,固定四肢,并用 70% 乙醇充分喷洒。
- 在下腹部的皮肤和肌肉上做一条 2–3 cm 宽的正中切口。小心打开胸腔,避免损伤肺或心脏。
- 将安全型多用途 21 G 针头连接至 50 mL 注射器,并吸取 30 mL 灌注缓冲液。
- 将针头插入左心室,并使用锋利的直剪刀在右心房处剪开一个小切口。
- 用 15 mL 灌注缓冲液对全身进行灌注21。
注意:肝脏变白表明全身灌注已完成。 - 从胸腔中取出肺组织,去除附着在肺上的多余组织22。将肺组织放入 10 mL 预冷的无 Ca+/Mg+ PBS 中,以洗去多余的血液。
- 将肺组织转移至含有 500 µL 冰冷 DMEM/F12 的 1.5 mL 离心管中。
3. 肺单细胞悬液的制备
- 使用超窄直剪将肺组织剪成小块(1–2 mm3),持续 2–3 分钟。
- 将剪碎的肺组织转移至含有 5 mL 消化液的 6 cm 培养皿中。
- 将 6 cm 培养皿置于恒温摇床中,37 °C、50 rpm 振荡 25 分钟。每 8 分钟用 1 mL 移液器吹打混悬液一次。
- 将 100 µm 孔径滤网置于 10 cm 培养皿上。用 1 mL DMEM/F12 培养基预润湿滤网。
- 将消化后的悬液转移至滤网上,用无菌注射器活塞的橡胶端将组织推过滤网。
- 在 50 mL 离心管上放置 70 µm 孔径滤网。用 1 mL DMEM/F12 培养基预润湿滤网。
- 将细胞悬液通过滤网过滤,并用 5 mL DMEM/F12 培养基冲洗滤网。
- 将过滤后的细胞悬液在 4 °C 条件下以 400 g 离心 10 分钟,小心弃去上清液。将细胞沉淀重悬于 1 mL 红细胞裂解缓冲液中,室温孵育 2 分钟。
- 加入 14 mL 细胞洗涤缓冲液,并在 4 °C 条件下以 400 g 离心 10 分钟。
注意:若洗涤后沉淀仍呈红色,请重复步骤 8 和 9。 - 弃去上清液,将细胞重悬于 20 mL 重悬缓冲液中。
- 取 10 µL 单细胞悬液与等体积台盼蓝混合,取 10 µL 混合液加入细胞计数板。使用细胞计数仪检测活细胞活力、细胞数量及单细胞状态。
4. 流式细胞术分析
- 将细胞重悬于预冷的FACS缓冲液中,取100 µL细胞悬液加入含有1 µL Fc阻断抗体(1:100)的1.5 mL离心管中。冰上孵育15分钟。
- 以500 g离心5分钟,弃上清。将细胞重悬于200 µL CD326-APC抗体(1:100)中,于4 °C避光孵育45分钟。
- 以500 g离心5分钟,弃上清。将细胞重悬于500 µL含DAPI染料(1:5000)的FACS缓冲液中。
- 将所有样品转移至FACS专用管中,并避免光照。
- 使用流式细胞仪分析样品。所用荧光染料如下:DAPI-V450、Tdtomato-YG585、CD326-APC。门控策略见图1。
结果
采用此优化方案制备的单细胞悬液实现了较高的细胞活力。提高荷瘤肺组织细胞活力的改进措施包括:优化酶的浓度(补充表2)、在37 °C孵育过程中进行振荡以及样品混匀。此外,在步骤6中取消了额外使用40 µm细胞筛网的步骤,以减少机械剪切应力,从而降低细胞损伤的风险;尽管加入额外筛网可能减少多重细胞事件(multiplet formation)的发生。优化后,细胞活力平均超过85%,而优化前则低于80%(表1)。细胞浓度的差异主要归因于肺组织大小以及不同重复实验中所用悬液介质的差异。
在该由 KrasG12D 驱动的小鼠肺腺癌模型中,肿瘤结节明显存在,肿瘤负荷在肿瘤发生后二十五周时介于 10% 至 40% 之间23。两个完整的肺组织单细胞悬液在 10x Genomics 平台上进行了单细胞 RNA 测序(scRNA-seq)。Cell Ranger 质量评估显示,两个样本中分别估计含有 23,488 和 21,436 个细胞(表 2)。条形码图显示环境 RNA 污染极低,可能反映了较高的细胞活力(图 2A、B)。
主成分分析(PCA)和均匀流形近似与投影(UMAP)揭示了界限清晰的细胞簇,所有主要的肺细胞类型均有代表(图3A)。代表性标记基因的点图显示,经典生物标志物在其对应的细胞类型中高表达(图3B)。此外,TdTomato+细胞富集于上皮相关细胞簇中,且通过FACS成功分离出TdTomato+/EpCAM+细胞(图1)。
综上所述,该优化方案能够高效解离荷瘤小鼠的肺组织,获得高细胞活性、低RNA污染以及全面的细胞代表性。
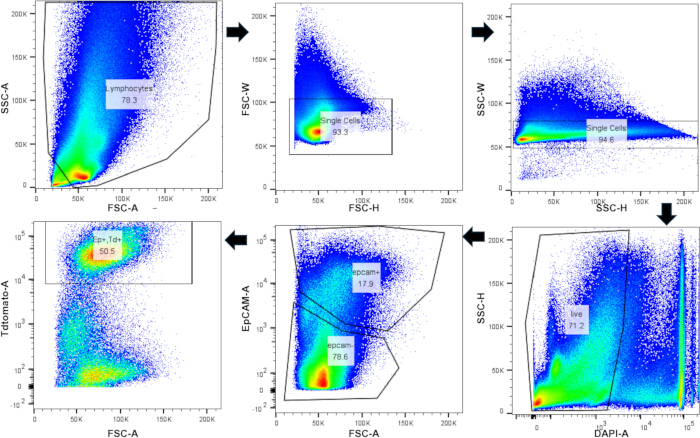
图1:通过流式细胞术分离TdTomato+/CD326 (EpCAM+) 细胞。 小鼠肺单细胞悬液的流式细胞术设门策略。 请点击此处查看该图的放大版本。
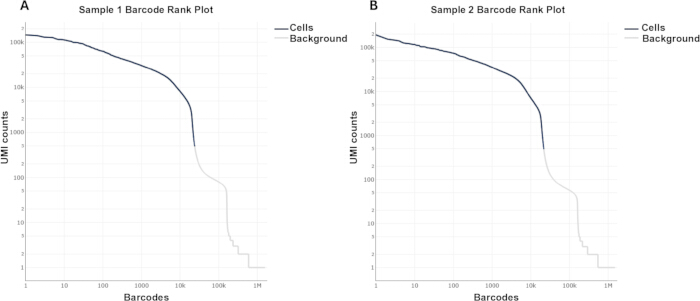
图2:携带肿瘤的鼠肺单细胞RNA测序条形码秩图。KrasLSL-G12D/+; TdTomato+/-小鼠在感染慢病毒-Cre后25周收集肺组织。(A,B)来自Cellranger分析的携带肿瘤肺组织的条形码秩图请点击此处查看该图的放大版本。
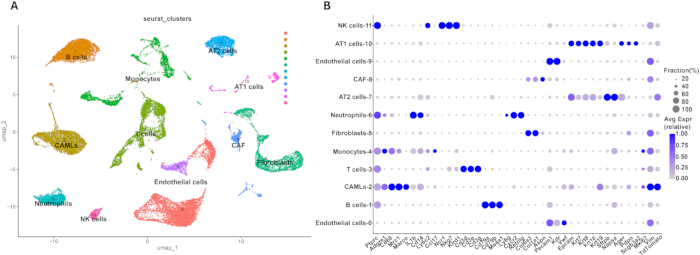
图3:荷瘤小鼠肺组织的单细胞转录组学分析。(A)荷瘤肺组织整体数据集的UMAP投影图。(B)用于聚类注释的经典基因的点图。请点击此处查看该图的高清版本。
| 优化前 | 优化后 | |||
| 重复1 | 重复2 | 重复1 | 重复2 | |
| 总细胞数 | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| 活细胞数 | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| 活细胞百分比 | 76% | 77% | 83% | 89% |
表1:荷瘤肺单细胞悬液在优化前后的细胞活力。 使用本方案前后测定的细胞浓度及活细胞百分比。
| 样本 1 | 样本 2 | |
| 估计细胞数量 | 23,488 | 21,436 |
| 每个细胞的平均测序读段数 | 18,354 | 20,542 |
| 每个细胞的中位基因数 | 2,565 | 2,513 |
| 检测到的总基因数 | 30,893 | 30,556 |
| 每个细胞的中位UMI计数 | 6,864 | 6,583 |
| 有效条形码比例 | 95.90% | 95.80% |
| 测序饱和度 | 26.10% | 28.20% |
| 细胞内读段比例 | 94.10% | 95.40% |
表2:通过Cell Ranger进行的单细胞RNA测序质量控制分析。 由Cell Ranger获得的单细胞数据的关键评估指标
补充表1:故障排除方案。 本表提供了针对消化过程中可能出现的问题的解决方案建议。请点击此处下载该文件。
补充表 2:优化前和优化后的酶混合物组分。 优化前后所用酶混合物的最终浓度。请点击此处下载该文件。
讨论
本方案提供了从小鼠肺组织制备高质量单细胞悬液的详细逐步操作流程。为获得最佳结果,需完成多个关键步骤。
在进行酶消化之前,必须进行全身灌注以清除肺部的血液。这可确保单细胞RNA测序(scRNA-seq)检测到的免疫细胞来源于肺组织本身,而非循环血液中的细胞。灌注过程中,必须将针头插入左心室,以防止灌注液进入肺循环而损伤肺细胞。为保持细胞活性,所有缓冲液(包括洗涤液、重悬液和灌注液)均应预先在冰上预冷。鉴于肺组织本身具有固有的异质性24,在消化前及消化过程中应将组织样本维持在DMEM/F12培养基中,因为该培养基可提供维持细胞活性所必需的营养成分。
高细胞存活率及清晰可见的细胞簇表明,该酶组合既温和又高效。已知钙离子和镁离子可促进细胞聚集,并增强酶活性。25,26。因此,Ca+/毫克+ 使用无钙镁磷酸盐缓冲液(free PBS)配制大多数缓冲液以减少细胞聚集成团,而含这些离子的DMEM/F12则作为消化缓冲液的基础培养基,以维持酶活性的平衡效率。
尽管先前的研究已描述了小鼠肺组织或肿瘤组织的解离方法,但这些方法通常存在显著的变异性,或对蛋白酶的选择和浓度缺乏完整描述11,15,27。例如,Han 等人11使用了酶混合物,但未报告其浓度,导致实验难以重复。相反,Chen 等人28描述的一种高度特化的方法虽适用于肺泡Ⅱ型(AT2)细胞的解离,但其操作流程复杂,若需同时处理多只小鼠,则实用性较差。
肺癌研究中的一个关键挑战是荷瘤肺组织的结构异质性,其同时包含脆弱的正常细胞和恶性肿瘤细胞。标准实验方案或商用试剂盒通常仅针对正常组织或肿瘤样本单独设计,因此在实际应用中往往导致消化不完全,无法有效释放肿瘤核心中的癌细胞;或者消化过度,对荷瘤肺样本中更为敏感的正常组织造成显著应激反应和细胞死亡。
本方案通过优化酶混合液(胶原酶IV、分散酶II和DNase I)实现细胞的平衡解离。该优化可在释放恶性细胞的同时,保持正常细胞的活性。流式细胞术分析结果支持了这一效果,我们成功鉴定并区分出两种不同的上皮细胞。这些上皮细胞被清晰地分为TdTomato+和TdTomato-细胞。如此高的分辨率表明,该方法适用于在不破坏宿主组织完整性的前提下,研究携带肿瘤的肺部微环境。通过纳入所有活的单细胞进行分析,本方案能够全面研究肿瘤肺微环境中所有相关细胞类型,包括此前研究中报道较少的肿瘤相关巨噬细胞样细胞(CAMLs)(图3)15,16,17。
消化完成后,单细胞RNA测序(scRNA-seq)分析表明,该方法能够成功分离出多种细胞类型。酶解液应在实验当天新鲜配制。所有消化参数均针对单个小鼠完整肺组织进行优化。若仅使用单个肺叶或多个肺组织,应调整消化时间,以确保细胞活性高且组织完全解离。环境RNA污染和多重细胞事件(multiplet formation)是影响scRNA-seq数据质量的两个主要因素29。尽管常使用去死细胞试剂盒以提高细胞活性,但本方案在消化后通常可获得超过80%的活细胞,因此该步骤为可选。条形码秩图(barcode rank plot)证实,即使不进行去死细胞处理,环境RNA污染也极低。
本研究在荷瘤小鼠全肺组织的背景下验证了该方法。这种优化的酶消化方法为研究具有类似微环境的其他荷瘤组织提供了参考模板。此外,该方案实现了高细胞存活率并完整保留了所有细胞类型,因此适用于CITE-seq表面蛋白图谱分析和ATAC-seq表观遗传学分析等先进测序技术。
尽管该方案能够以较低成本制备高质量的单细胞悬液,但在酶消化过程中仍可能产生由操作引起的细胞应激。为尽量减少与应激相关的基因表达干扰,建议单个操作人员同时处理的样本数不超过四个。
披露
作者声明不存在任何竞争利益。
致谢
本工作得到了美国国立卫生研究院、国立眼科研究所(NEI)资助项目5R01EY026202、R01EY035333;国立牙科与颅面研究所(NIDCR)资助项目R01DE031044、2R01DE014756;以及国家癌症研究所(NCI)资助项目R01CA271500和2R01CA211187的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | 细胞培养 |
| IV型胶原酶 | Sigma Aldich | C5138 | 消化酶 |
| 分散酶II | Sigma Aldich | D4693 | 消化酶 |
| DNase I | Roche | 11284931001 | 去除DNA |
| Falcon 70 细胞筛 | Falcon | 352350 | 去除未消化组织 |
| 无菌剪刀 | FST | 14088-10 | 切割组织 |
| 红细胞裂解缓冲液 | Sigma Aldich | R7757 | 去除血细胞 |
| 热灭活FBS | Phoenix Scientific | PS100 | 保护细胞 |
| 无钙镁PBS | Thermo Fisher | 10010023 | 溶解酶/洗涤细胞 |
| Safety-multifly 21G 针头 | Sarstedt | 3051524 | 全身灌注 |
| 50 mL 注射器 | BD | 300866 | 全身灌注 |
| 6 cm 培养皿 | Corning | 430116 | 消化组织 |
| 10 cm 培养皿 | Corning | 430167 | 消化组织 |
| Fc阻断抗体 | BD | 553141; RRID:AB_394655 | 流式细胞术 |
| DAPI | BD | 564907; RRID:AB_2869624 | 流式细胞术 |
| CD326 | BD | 563478; RRID:AB_2738234 | 流式细胞术 |
| HIVmPGKCre VSVG | UI Viral Vectore Core | VVC-U of Iowa-7556 | 慢病毒 |
| ZE5 (Yeti) 流式细胞仪 | Bio-Rad | 流式细胞分析 | |
| KrasLSL-G12D/+ 小鼠 | Jackson Laboratory | 008179; RRID:IMSR_JAX:008179 | |
| TdTomato 报告基因小鼠 | Jackson Laboratory | 007909; RRID:IMSR_JAX:007909 |
参考文献
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
重印与许可
标签
