在间歇性接触可口饮食的类似暴食模型中,采用了全身磁刺激(WB-MS)。WB-MS在刺激期间短暂减少了摄食量,但未改变标准饲料的摄入量。然而,这种效应并未持续,治疗结束后类似暴食的行为重新出现,且体重、脂肪含量或伏隔核c-Fos表达均未发生改变。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
在间歇性接触可口饮食的类似暴食模型中,采用了全身磁刺激(WB-MS)。WB-MS在刺激期间短暂减少了摄食量,但未改变标准饲料的摄入量。然而,这种效应并未持续,治疗结束后类似暴食的行为重新出现,且体重、脂肪含量或伏隔核c-Fos表达均未发生改变。
引言
暴食是一种失调的进食模式,其特征是在没有生理饥饿的情况下快速摄入大量美味食物。它是暴食症(binge eating disorder, BED)的核心特征,而暴食症与肥胖和代谢功能障碍密切相关1,2。越来越多的证据表明,中脑边缘奖赏环路在进食行为失控中起重要作用3,4。目前,BED 越来越被视为一种皮质-纹状体信号异常的疾病,其中与奖赏相关的系统和执行控制系统的失调交互促进了强迫性进食行为。在神经生物学层面,中脑边缘通路中的多巴胺能信号与谷氨酸能输入共同作用,导致对美味食物的激励显著性改变以及过度的进食动机5,6。此外,外周代谢信号如 GLP-1、胰岛素和胃饥饿素也与这些神经环路相互作用,调节奖赏评估和进食行为7。最近的研究进一步表明,类似暴食的行为与伏隔核(NAc)内神经动态的变化相关,包括 delta 和 theta 频段(2–8 Hz)的低频振荡,这些振荡与失控前的奖赏预期和渴求状态有关8。
伏隔核(NAc)作为一个整合中枢,连接边缘系统、皮层和运动系统,将动机信号转化为目标导向行为。该系统的功能紊乱,特别是在反复接触可口食物的情况下,会促进强迫性和习惯性的摄食模式9,10。采用间歇性获取可口食物的实验模型可稳定诱导类似暴食的行为,并伴随伏隔核激活增强,支持其在强迫性进食行为中的作用11–14。非侵入性神经调控是指无需手术干预即可改变脑活动的技术,包括基于磁场的方法,如经颅磁刺激15。这些策略因其调节神经兴奋性和神经网络活动的能力,在神经精神疾病中已具有临床相关性16,17。在人类研究中,神经调控已被证明可减轻暴食症状、改善行为控制,并影响代谢调节18,19。
基于这些证据,全身磁刺激(WB-MS)可能代表一种能够调节与强迫性进食相关神经环路的非侵入性治疗手段。与局部干预技术不同,低频磁场可影响神经元兴奋性及广泛分布的脑网络,提示其可能对伏隔核(NAc)等皮层下结构产生作用。8实验研究表明,此类场可调节多巴胺能和谷氨酸能神经传递6,7,8,19, 为影响奖赏相关神经环路提供了一种合理的机制。然而,其对类似暴食行为的影响仍不清楚。因此,本研究在通过间歇性接触可口食物诱导的小鼠类似暴食模型中,评估了低频WM-MS的作用,检测了食物摄入量、体重、脂肪含量以及伏隔核中c-Fos的表达。
访问受限。请登录或开始试用以查看此内容。
方案
所有操作均按照墨西哥实验室动物护理与使用官方标准(NOM-062-ZOO-199)进行,并经墨西哥国立自治大学(UNAM)实验动物护理与使用机构委员会(CICUAL)批准,批准编号为035-CIC-2023。研究中使用的所有材料均列于材料表中。
人群定义与获取
使用30只出生后第30天(P30)的C57BL/6小鼠(9只雌性和21只雄性),初始体重为15–18 g。小鼠在环境条件受控的情况下单只饲养于各自的笼具中:12:12小时明暗循环(光照开启时间为早上6:00),环境温度为23 ± 2 °C,相对湿度为70 ± 10%。
习惯化
在P30时,将动物单独饲养在标准笼具中,自由饮水并提供普通食物。ad libitum 水和标准食物。所有笼具均进行环境富集,内含纸板管,并以木屑作为垫料。在为期7天的适应期期间,每24小时记录一次体重、食物摄入量和饮水量。
类似暴饮的摄入
本研究中使用的实验模型基于研究人员所描述的间歇性暴食摄入范式14在分组前,所有动物均被调整至相近的平均体重(17 g),以减少基线差异。随后,将动物(N = 30)通过数字“转盘抽签”工具随机分配至实验组,该工具将各个个体依次分配至三个组之一。标准组包括雌性(标准雌性组,SFG;n = 3)和雄性(标准雄性组,SMG;n = 7),可持续自由获取标准饲料和水。连续获取组包括雌性(连续雌性组,CFG;n = 3)和雄性(连续雄性组,CMG;n = 7),可持续 随意摄取 可获取标准饲料、水和适口性食物(M&M´s)。间歇性接触组包括雌性(间歇性雌性组,IFG;n = 3)和雄性(间歇性雄性组,IMG;n = 7),其具有 随意摄取 可自由获取标准饲料和水,并每周三次(周一、周三和周五)在下午4:00至6:00期间提供可口食物,每次持续2小时。上述喂养条件持续维持35天。
全身磁刺激(WB-MS)
该刺激方案的选择基于先前在类似实验条件下对C57BL/6小鼠使用低频电磁场(50 Hz,1 mT)的研究20,21。WB-MS采用脉冲磁疗仪(Dhan 1000,磁疗装置)进行,该设备产生50 Hz、10高斯(1 mT)的正弦交变磁场。在刺激过程中,小鼠各自保留在其原居住的笼具中,笼具被放置于每个笼子两侧相对的两块电磁板之间。为避免磁场干扰,在刺激期间暂时移除了包括金属丝笼盖、栅格和饮水瓶在内的金属部件。该设置使动物在整个过程中能够自由活动,无需束缚,也避免了额外的应激。
为确保实验的一致性,在刺激和非刺激阶段均保持相同的操作流程和环境条件。在对照阶段(第15–21天),磁板放置位置与实验组相同,但保持不激活状态,以排除操作、笼具干扰、环境噪音或电磁板放置本身可能带来的影响。
WB-MS 处理方案为连续七天(实验方案的第22–28天),每天下午3:40至4:00进行20分钟暴露,紧接在暴食样进食评估期(下午4:00–6:00)之前进行。从第29天到第35天,小鼠再次接受无刺激的实验阶段,随后对其食物摄入量进行评估。
脂肪组织采集
在实验方案结束时(第36天,上午8:00),从所有实验组收集脂肪组织。SG组包括三只雌性和两只雄性(n = 5),CG组包括三只雌性和三只雄性(n = 6),IG组包括三只雌性和四只雄性(n = 7)。所有动物均使用氯胺酮(60 mg/kg)和赛拉嗪(5 mg/kg)进行麻醉22,并通过脚趾夹捏刺激无伤害性反应确认麻醉深度足够。随后使用3号手术刀片沿腹中线做正中切口,切口范围延伸至肋下、腹股沟及腹部中线区域,然后轻柔地向两侧牵拉皮肤以暴露腹腔。
在标准化条件下,仔细识别、分离并切除性腺、腹膜后和皮下脂肪组织库,以尽量减少样本间的变异性。分离后立即使用经校准的分析天平(最大量程220 g,可读性0.1 mg)称重,该天平已根据制造商的规格进行过验证23。所有样本均在各组间相同条件下处理,以确保实验的一致性。
脑组织制备与免疫荧光染色
在最后一次进食后90分钟处死小鼠24。通过心脏灌注4%多聚甲醛后取脑,并进行组织学分析处理。使用保持在−18 °C的冷冻切片机获取冠状脑切片(30 µm),切片储存于含叠氮化钠的PBS中,直至进一步处理。每个实验组的一部分雄性动物用于脑组织制备以进行免疫荧光分析(SG,n = 4;CG,n = 4;IG,n = 4),其余动物则用于采集脂肪组织。这种差异性分配是根据方法学要求预先确定的,因为多聚甲醛心脏灌注会导致组织固定,从而破坏脂肪组织的完整性,使其无法用于后续脂肪组织的采集。因此,样本分配完全由技术限制决定,与实验分组或生物学结果无关。
对于 c-Fos 免疫荧光染色,切片在含有 0.25% 猪皮明胶和 0.5% Triton X-100 的 PBS 中孵育 72 小时,该溶液同时作为封闭和通透溶液。一抗孵育在室温下进行 24 小时,随后在 4 °C 下继续孵育 48 小时。孵育结束后,切片用 PBS 充分漂洗,然后在相同溶液中与驴抗小鼠二抗(Alexa Fluor 488 标记,1:500,AB_2338840)室温孵育 2 小时。最后,切片用封片剂封固于载玻片上。
图像采集与定量分析
使用配备488 nm激光器和20倍物镜的显微镜进行共聚焦成像。采用NIS-Elements C软件采集Z轴层扫图像,并以编码标识存储,以便进行盲法分析。c-Fos阳性细胞核的定量分析使用ImageJ软件(ImageJ 2.9.0 / 1.53t)完成。仅计入完整包含在视野内的细胞核,并采用基于象限的方法以避免单个细胞被重复计数。每只动物从三个独立的免疫染色切片中各采集一幅图像,所有实验组均使用相同的采集参数。每幅图像中的c-Fos阳性细胞核数量被单独量化,然后将来自同一只动物的三个切片所得数值相加。该总值随后根据总分析面积进行归一化处理,并表示为c-Fos密度(阳性细胞核数/mm2)。所用实验流程的整体示意图见图1A–H。
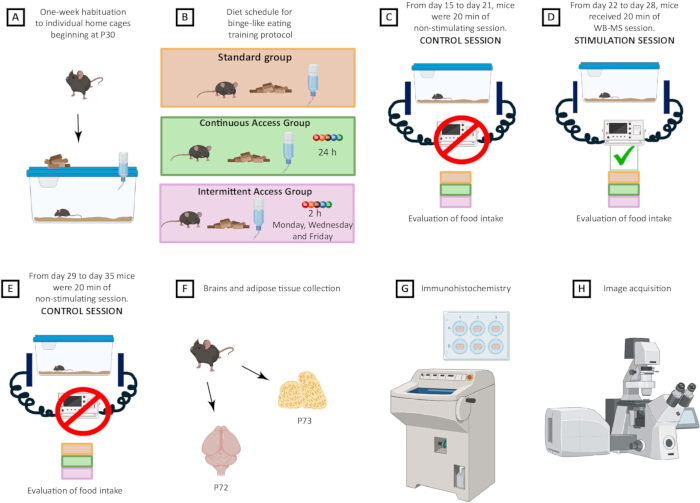
图1实验设计及暴食样进食方案与WB-MS干预的时间线。 (A) 显示了一只小鼠的代表性图像,用于说明初始饲养条件。共30只小鼠(9只雌性,21只雄性)从P30开始在各自的家庭笼中单独饲养,并经历为期1周的适应期。B) 展示了从实验第1天到第35天暴食样进食方案中实施的饮食条件。对照组在 随意摄取 可自由获取标准饲料和水。持续获取组具有 随意摄取 标准饲料、水和适口性食物的获取。间歇性获取组具有 随意摄取 可自由获取标准饲料和水。同时,仅在每周一、周三和周五下午4:00至6:00提供适口性食物。C) 表明在第15至21天期间,动物继续维持相同的饮食条件,同时将磁刺激板置于笼子下方但不施加刺激(假暴露)。D) 显示,在第22至28天期间,每组在保持相应饮食条件的同时,于可口食物暴露前20分钟给予WB-MS。E) 表明从第29天到第35天停止了WB-MS,尽管饮食条件保持不变。 (F) 显示在出生后第72天(P72)采集脑组织,随后在出生后第73天(P73)采集脂肪组织。G) 展示了使用冷冻切片机进行脑组织切片及免疫组织化学实验操作。最后,(H) 显示 c-Fos 免疫反应性的共聚焦显微镜分析结果。图像由作者使用 Biorender 创建,并已获得适当的许可。 请点击此处以查看此图的放大版本。
统计分析
统计分析使用 SPSS 25 版本进行。由于无法假定数据呈正态分布,本研究全程采用非参数检验。SG、CG 和 IG 之间的差异通过 Kruskal–Wallis 检验进行评估。各实验组内的重复比较采用 Friedman 检验分析,并在适当时进行多重比较检验。由于某些实验终点的样本量有限,尤其是雌性小鼠(每组 n = 3),为提高统计效力并支持对实验结果的探索性评估,图 2、图 3 和 图 4 中呈现的分析合并了雄性和雌性 C57BL/6 小鼠的数据。此外,对雄性和雌性 C57BL/6 小鼠合并的类似暴食摄入数据采用双因素方差分析(two-way ANOVA),并在适当时进行多重比较检验,以评估实验分组和时间在摄食方案全过程(包括 WB-MS 刺激周)中的影响。统计学显著性定义为 p ≤ 0.05。
访问受限。请登录或开始试用以查看此内容。
结果
在暴食期间,间歇性接触组(雄性为 IMG,雌性为 IFG)在第 15、17 和 19 天的热量摄入量显著高于标准组(SFG 和 SMG)和连续接触组(CFG 和 CMG)(Kruskal-Wallis 检验; p < 0.05;图 2A–B)。全身磁刺激(WB-MS)以 1 mT 的强度和 50 Hz 的频率每天施加 20 分钟,连续进行七天,如灰色区域所示。在此刺激阶段,刺激后第 26 天的热量摄入量呈现出明显的下降趋势(Kruskal-Wallis 检验:IFG, p = 0.5510;IMG, p = 0.1683),表明该效应未能持续。重要的是,在第 29、31 和 33 天,两个组均再次出现类似暴食的摄入行为(Kruskal-Wallis 检验; p < 0.05),提示 WB-MS 所诱导的行为调节作用是短暂的。
由于女性样本量有限(每组 n = 3),将男性和女性数据合并,以支持对整个摄食...
访问受限。请登录或开始试用以查看此内容。
讨论
目前的研究结果表明,在由间歇性接触可口食物诱导的小鼠模型中,WB-MS 可能短暂调节类似暴食的进食行为。尽管在伏隔核(NAc)中未检测到神经元活动的显著变化,但在刺激期间的间歇性接触阶段,对可口食物的摄入量逐渐减少,并在最后一次暴食阶段达到显著降低。这些观察结果提示,磁刺激可能影响与强迫样进食行为相关的强化或动机过程。然而,本研究并未旨在直接表征这些效应背后的神经机制,而是旨在拓展对 WB-MS 作为一种潜在的、用于暴食相关状况的辅助性神经调节方法的实验探索。
这些观察结果与先前的报道一致,表明非侵入性脑刺激方法可能减弱肥胖症及相关进食障碍个体对可口食物相关线索的反应性。20,21重要的是,保持动物 随意摄取 在整个实验期间均可获得标准饲料,表明所观察到的行为效应并非 solely 归因于稳态能量调节的改变,而可能反映了对享乐性或渴求相关机制的调节24先前的研究还表明,即使在没有食物剥夺或外界诱发应激...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在可能影响本文内容的竞争性利益或关联关系。
致谢
作者感谢Sandra Teresa Flores García理学硕士、Armando Muñoz-Comonfort博士、Francisco Estrada-Rojo博士和Fabiola Hernández-Vázquez博士提供的宝贵技术支持。作者还感谢Gustavo López-Toledo博士设计图1。Sonia Ortega-Tinoco是墨西哥国立自治大学(UNAM)生物医学科学研究生项目博士生,获得CONAHCyT奖学金(编号1102522)资助。本研究由墨西哥国立自治大学(UNAM)DGAPA-PAPIIT项目基金IN214826(授予Julieta Garduño博士)和IA301325(授予Raúl Sampieri-Cabrera博士)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| ImageJ | imagej.net | 公共领域,BSD-2 | 软件。基于 Java 的图像处理程序。由美国国立卫生研究院(National Institutes of Health)和威斯康星大学光学与计算仪器实验室(LOCI, University of Wisconsin)开发 |
| 盖玻片 | Corning | 2935 | 盖玻片 24 × 50 mm(厚度 0.13–0.17) |
| 二抗 | Jackson ImmunoResearch | AB_2340758 | 驴源多克隆抗小鼠二抗 |
| 实验室啮齿动物饲料 5001 | LabDiet | 1320 | 标准饲料。https://di.facmed.unam.mx/comisiones/Composici%C3%B3n%20del%20alimento%20Laboratory%20Rodent%20Diet%205001.pdf |
| Leica CM1510 S | Leica | CM1510 S | 用于常规组织学的冷冻切片机。 |
| M&Ms 43.8g(棕色包装) | M&M´s | NA | 适口性食物。每 100 克营养成分:480 千卡能量,19 克脂肪,70 克碳水化合物,5.1 克蛋白质,0.13 克盐。成分:蔗糖、可可原浆、脱脂乳粉、可可脂、乳糖、淀粉、乳脂、棕榈油、葡萄糖浆、乳木果油、稳定剂(阿拉伯胶)、糊精、上光剂(蜂蜡、巴西棕榈蜡)、色素(E100、胭脂红、E132、E133、E150a、E150c、E150d、E153、E160a、E160e、E162、E163、E170)、甜菜根浓缩物、乳化剂(大豆卵磷脂、E445)、盐、香料、棕榈仁油、抗氧化剂(E306)。(可能含有:花生、榛子、杏仁)。牛奶巧克力中乳固体含量不低于 14%。牛奶巧克力除可可脂外还含有植物脂肪。 |
| Dhan 1000 | Magnetoterapia SA de CV | MAG1000 | 脉冲磁疗设备 |
| PBS | MEYER | 单碱基 2415。双碱基 2410。 NaCl S3014 | 磷酸二氢钠一水合物。磷酸氢二钠七水合物。 分子生物学级结晶氯化钠。 |
| Nikon 显微镜 | Nikon Instruments, Inc | A1R+ STORM | 共聚焦显微镜 |
| 聚碳酸酯小鼠笼 | Orchid Scientific | EM01 | 用于 WB-MS 暴露的非铁磁性聚碳酸酯笼,完全透明且可高压灭菌(373 × 190 × 138 mm)。 |
| Anesket | Pisa | 040.000.0226.00 | 注射用氯胺酮溶液 |
| Procin Equus | Pisa | Q-7833-111 | 注射用赛拉嗪溶液 |
| c-Fos 抗体 | Santa Cruz Biotechnology | sc-166940 | 小鼠单克隆抗 c-Fos 抗体 |
| 实验室天平 | Sartorius | 分析天平 | |
| VECTASHIELD 封片介质 | Vector Laboratories | H-1000-10 | 抗荧光淬灭封片介质,专为免疫荧光(IF)显微镜设计,可最大限度减少光漂白,从而保护荧光信号。 |
| 载玻片 | VELAB | VE-P30 | 一侧磨砂载玻片 26 × 76 mm(厚度 0.8–1.1 mm) |
| 叠氮化钠 | K 6048.0100 | 99% 叠氮化钠 |