在此,我们描述了一种实验方案 离体 从接受治疗的肌张力障碍仓鼠模型的急性小脑脑片中进行高密度微电极阵列记录 体内 持续11天的苍白球深部脑刺激
本文内容
摘要
摘要
肌张力障碍是一种神经系统运动障碍,其特征是肌肉控制异常,影响自主运动和维持姿势的能力。尽管肌张力障碍与基底节功能障碍相关,但越来越多的证据表明小脑也参与了其病理生理过程。本实验方案介绍了一种在肌张力障碍仓鼠模型(dtsz 仓鼠)中进行的在体苍白球深部脑刺激(DBS),并结合离体 高密度微电极阵列(HD-MEA)记录技术,用于研究小脑活动。该方案包括:(1)DBS手术以植入电极和刺激器,(2)急性小脑切片制备,(3)高分辨率电生理记录,以及(4)数据分析。代表性结果表明,持续11天的苍白球DBS使分子层、浦肯野细胞层和颗粒层的放电活动恢复至接近正常水平,提示小脑网络参与了肌张力障碍的调控。本方案可实现对小脑活动及其受DBS调节作用的详细分析,为研究神经调控疗法背后的神经网络机制提供了一个平台。
引言
肌张力障碍是第三常见的运动障碍1,其特征为独特的临床体征和症状2,3,尽管有时可能被误诊为其他运动障碍4,5,6。最显著的临床特征包括不自主的肌肉收缩、重复性运动以及异常和/或扭曲的姿势7。这些特征可能伴随疼痛、运动功能受损和疲劳等症状,在压力、焦虑或身体极度疲劳期间可能加重8,9,10,11。肌张力障碍的病理生理机制尚未完全阐明12,13。尽管传统研究主要集中在基底神经节,但越来越多的证据支持该疾病是一种涉及多个脑区的网络性障碍,其中包括小脑14,15,16,17。本方案旨在研究小脑皮层不同层次的细胞外网络活动,以阐明其在肌张力障碍病理生理中的作用,并理解深部脑刺激(DBS)的全网络作用机制。
以苍白球内侧部(GPi)或丘脑底核(STN)为靶点的深部脑刺激(DBS)常用于治疗某些类型的肌张力障碍18,19,尤其是那些耐药的病原体。此外,治疗效果具有异质性和不可预测性,临床表现相似的患者可能对相同的治疗方案产生不同的反应。20对潜在肌张力障碍的神经网络获得更全面的理解,可能改善治疗效果21因此,需要大规模的实验方法,而这些方法只能通过动物模型中的临床前研究来实现。结合 体内 DBS 实验与 离体 高密度微电极阵列(HD-MEA)记录可实现对(近乎)生理状态下神经元网络活动的高分辨率监测,有助于深入理解肌张力障碍的病理生理机制以及深部脑刺激(DBS)的作用机理。
基底神经节和小脑各自通过与初级运动皮层(M1)的连接,在不同程度上影响运动控制22。一项针对纹状体损伤及小脑切除的解剖学研究支持了这一观点23。在本研究中,我们采用了肌张力障碍型 dtsz 仓鼠作为动物模型24,25,该模型表现出与肌张力障碍相关的小脑异常26。利用高密度微电极阵列(HD-MEAs),我们研究了肌张力障碍仓鼠与健康仓鼠的小脑皮层网络活动。然而,传统的电生理方法缺乏足够的空间分辨率以捕捉特定层的网络动态,而本方法克服了这一局限性。此外,我们还研究了苍白球内侧部深部脑刺激对小脑皮层网络的影响。
HD-MEA 系统具有能够并行记录详细电生理信号的优势,可实现对小脑皮层各层(颗粒层、浦肯野层和分子层)的分析,而每一层在运动序列的处理过程中均发挥着关键作用27。颗粒层由密集排列的颗粒细胞组成,接收来自苔藓纤维的感觉和运动信息,并在进一步处理前完成初始信号整合27。浦肯野层包含浦肯野细胞,向小脑深部核团传递抑制性信号,而颗粒层和分子层则对输出信号进行调节。分子层富含树突和中间神经元,通过与浦肯野细胞的突触相互作用实现复杂的信号调控,从而精细调节运动输出28。与其它记录技术不同,HD-MEA 不受空间分辨率或采样区域的限制,因此能够捕捉到肌张力障碍中各层在神经动力学改变方面的独特贡献15。该方法相较于单电极或低密度记录技术,具有更高的空间分辨率和并行记录能力。目前已有基于互补金属氧化物半导体(CMOS)29,30 技术并结合有源像素传感器(APS)概念的 HD-MEA 系统,可实现功能性成像,用于随时间可视化大量神经元的电活动31,32。利用该技术,可监测小脑皮层各层的动力学变化,并通过灌注不同物质来研究特定的突触传递过程。该方法特别适用于研究复杂神经元网络活动以及神经系统疾病模型中各层特异性的改变。
本研究解决了刺激系统封装方面的技术难题,以及 组织制备、数据采集以及大规模电生理数据集的分析。通过本研究,我们提供了一种选择方案 体外 对高度复杂的神经元处理过程进行研究,一方面有助于更深入地理解肌张力障碍性神经网络中的病理生理动力学,另一方面可提供关于深部脑刺激(DBS)治疗作用机制的知识。
方案
使用肌张力障碍大鼠尺寸 实验用仓鼠及对照叙利亚金黄仓鼠26本研究共考察了四个实验组:(1) 非肌张力障碍对照仓鼠(野生型,WT),(2) 未经处理的天然 dt尺寸 仓鼠,(3) dt尺寸-假手术组(接受植入手术,但未进行主动刺激),以及(4)dt尺寸-深部脑刺激(含连续深部脑刺激) 体内 在切片制备前持续给药11天)。所有动物实验均依据欧盟指令2010/63/EU及联邦动物保护法进行,实验许可证号为7221.3-1-029/20。
1. 动物
- 在标准条件下饲养动物:使用 GV Solas33 系统,14 小时光照/10 小时黑暗循环,自由获取水和食物(标准仓鼠饲料,Altromin)。
- 在仓鼠 20 ± 1 日龄和 27 ± 4 日龄时,使用三重刺激技术26筛查 dtsz 突变仓鼠的肌张力障碍症状。
注:此标准化轻度应激程序包括将仓鼠从其家笼中取出并转移至一个新的空笼中,随后进行腹腔或皮下注射生理盐水,以及短期睡眠剥夺。这一系列轻度焦虑诱发刺激可可靠地诱发肌张力障碍发作,且潜伏期可重复,因此用于实验分组前的表型筛查。非肌张力障碍对照仓鼠经历相同程序,以确保组间实验条件可比。 - 为镇痛,对 dtsz-假手术组和 dtsz-DBS 组的动物给予 100 mg·kg-1 口服安乃近。根据下述手术程序对两组进行植入。
2. STELLA 刺激系统的封装
- STELLA 刺激系统采用生物相容性方法进行封装,以保护设备在长期植入过程中免受液体渗透。电子元件置于定制的 3D 打印 PETG 胶囊内。
- 使用硅胶密封盖板与胶囊之间的缝隙。
- 此外,在电缆出口处用硅胶密封外壳。
- 若硅胶干燥后可见缝隙,请重复步骤 1 和 2。
- 硅胶完全固化后,按 100:35(重量比)的混合比例配制环氧树脂。
- 在真空(Vevor RS-1.5)下移除树脂中的气泡。
- 在组装模具前,在定制硅胶模具的配合表面涂抹薄层凡士林,以改善密封性并便于环氧树脂固化后脱模。将刺激器胶囊放入硅胶模具中,缓慢向模具内灌注环氧树脂,直至完全覆盖刺激器及电缆连接处。灌注过程中应避免产生气泡。
- 树脂固化后,将胶囊从模具中取出,并使用细锉或抛光工具打磨环氧树脂表面,以消除尖锐边缘。
- 将固化后的环氧胶囊浸入液态硅胶中,施加最终的薄层硅胶涂层。使用塑料移液器在连接区域附近的电缆周围额外涂抹硅胶。固化前应用小棒去除积聚的多余硅胶,以避免涂层过厚。
- 最后,在植入或实验使用前,进行封装后功能测试,以验证刺激输出是否正确。将 STELLA 刺激系统置于林格氏液中,并激活磁性 BIST 功能。确认正确的 LED 闪烁模式(2 × 2),这表明刺激输出正常,且不存在短路、开路或电池电量低的情况34。
3. 植入刺激系统的外科手术步骤
- 准备手术器械(图 1)和 STELLA(软件定义可植入模块化平台)刺激系统34。
- 将图 1中的金属器械在 200 °C 下灭菌约 5 分钟,例如使用 FST Sterilizer 250。注意取出时器械温度很高。
- 用 70 % 乙醇对带有两个 DBS 电极的 STELLA 刺激系统进行消毒。将干燥的刺激系统置于装有林格氏液的 Falcon(50 mL 锥形管)中过夜。
- 准备动物(25–32 日龄)
- 将麻醉室(自制)放入仓鼠笼中。仓鼠会在短时间内自愿走入管中(图 2A)。
- 当仓鼠进入管中后,封闭管末端,并将管子连接到挥发性异氟烷输出端 1–2 分钟(使用 4 % 异氟烷诱导麻醉)(图 2B)。
- 轻柔地将动物从圆筒中取出。将动物置于温控
表面(约 38 °C)上,并佩戴 呼吸面罩(GM-4;使用 3 % 异氟烷维持麻醉;通过趾间反射测试麻醉深度)。 - 用合适的毛剪剃除头部手术区域的毛发(图 2C)。用湿棉签清洁该区域,并向头皮皮下注射 500 µL 0.25 % 布比卡因,以对骨膜进行额外的局部麻醉。等待至少 5 分钟后再切开头皮。
- 小心地将动物转移到立体定位仪上,并用耳杆固定,使前囟和后囟处于同一高度(将异氟烷浓度降至 1.5–2.5 % 以维持麻醉)。
- 使用人工泪液(TVM Ocry-Gel)保护眼睛。
4. 植入 STELLA 刺激系统
- 在头皮正中做一条 2 cm 长的皮肤切口。用拉钩(图 1,编号 14 及 图 2D)将皮肤拉开。用刀片刮除局部骨膜以制备颅骨。用拭子止住可能的出血。
- 用棉签涂抹 3 % H2O2 以进行粗糙化处理。
- 从林格氏液中取出刺激系统,并用石蜡膜保护 DBS 电极。
- 将一把钝头剪刀从头部刚做的皮肤切口处插入,向颈部和体侧方向在皮下形成一个 5 cm 的皮肤囊袋。
- 插入刺激器,该刺激器已从 Falcon 管中取出并浸泡于皮肤消毒液中。
- 用棉签将约 500 µL 抗生素(10 mg·g-1 夫西地酸)涂抹于皮肤囊袋内。
- 根据前囟,在颅骨上为 DBS 电极钻两个 7 mm 的孔(使用 FST#19007-07),位置为 AP:−0.6 mm,ML:± 2.2 mm。
- 在每个电极孔的外侧再钻两个孔(9 mm;FST#19007-09)。将四颗螺钉(DIN 84 A2 M1x2)拧入制备好的孔中(图 2D)。
- 根据前囟,植入两根 DBS 电极(SNEX-100),DV:6.0 mm。请注意,您所用特定立体定位框架的电极夹持器决定了先植入哪一侧的电极(电极间距为 4.4 mm)。
- 用紫外光固化粘接剂(Heliobond)将电极固定到两颗螺钉上。当两根电极都植入后,在它们之间涂覆最后一层紫外光固化粘接剂。最后,用 Compoglass Flow 将电极进行粘固(图 2E)。
- DBS 组动物在至少恢复三天后,通过磁力激活刺激器,进行连续 11 天的 DBS。在本研究中,我们使用的刺激参数与临床所用参数相似(130 Hz,50 μA,60 μs)。
- 每天用磁铁在仓鼠体侧滑动以检查刺激器的指示灯模式(图 2F)。
5. 急性小脑切片的制备
- 为每只动物准备 1 L 人工脑脊液 (ACSF) 和 0.5 L 蔗糖溶液(详情参见表 1和表 2)。
- 在取脑和切片过程中,使用约 4 °C 的蔗糖溶液,并持续通入碳合气。此外,准备冰沙状蔗糖冰泥,以在快速解剖过程中维持组织低温。
- 准备工作区,放置解剖工具、蔗糖溶液、培养皿和振动切片机(参见图 3A)。
- 动物必须在停止 DBS 后约 15 分钟内处死,并立即开始小脑提取。在挥发性异氟烷诱导的深度麻醉下对动物实施断头。将头部置于盛有冰沙状蔗糖冰泥的较大培养皿中。
- 解剖大脑时,避免通过椎管进行正中切割,以保护小脑组织免受损伤。
- 将大脑转移至一个新的、盛有冰沙状蔗糖冰泥的培养皿中,底部垫有滤纸以防止小脑在切片过程中滑动。
- 首先,用刀片通过脑桥冠状切面移除小脑(图 3B)。然后,用刀片通过旁矢状切面移除小脑半球(图 3C)。
- 在振动切片机载物台上滴一滴强力胶。小心地将小脑蚓部从培养皿中取出。在粘合前,用滤纸轻拍旁矢状切面以吸干水分(图 3D)。
- 将振动切片机载物台放入托盘,并注入足够的蔗糖溶液(一半冰泥,一半溶液)以完全淹没蚓部。切勿忘记通入碳合气 (CB)。
- 以 0.08 mm·s-1 的恒定速度切割厚度为 200 μm 的旁矢状小脑切片(图 3E)。将切片储存在室温下持续通有 CB 的 ACSF 烧杯中(图 3F)。
- 将切片在室温下通有碳合气的 ACSF 中恢复约 40 分钟,然后转移至高密度微电极阵列 (HD-MEA),此阶段为记录前的复温和稳定期。在此期间,保持 ACSF 处于室温。
6. 为 BioCAM DupleX MEA 系统的 CorePlateTM 单孔准备记录
- 开启 BioCAM DupleX 记录系统与 Brainwave。 5 软件 (BW5) 至少 30 在开始实验前 min。
- 将组织切片置于 CorePlate 上之前TM 单孔记录,将单孔插入记录装置以评估背景噪声水平。高质量记录的最佳噪声水平应为9-20。 µV.
- 使用100%异丙醇清洁镀金焊盘。 % 乙醇图 4A-1),该电极阵列具有70 % 乙醇,以及一把软毛刷。图 4A-2最后,用 MilliQ 水冲洗电极阵列。
- 连接 HD-MEA/CorePlateTM 单孔接入记录系统图 4D-1).
- 移取约 2 将毫升人工脑脊液注入孔中。确保电极或接地线上无气泡。图 4D-2).
- 开始实时采集,并使用BW5记录至少30秒。
7. 分析峰峰值振幅
- 为分析噪声干扰,请打开已记录的 *.bxr 文件, 其中包含 30 数秒的本征噪声记录(由电极和放大器电路的电阻性元件产生)。
- 选择“活动图谱”以及,在“公制“选择” 峰峰值比例尺设置为500。 µV从而实现对电极阵列信号变异性的可视化图 5A).
- 在 "活动图谱" 在窗口中,将鼠标指针悬停在已记录的电极上方以显示 "孔板整体均值" 振幅值。
- 或者,您可以通过在 "图形导出。" 随后打开该 Excel 文件并计算平均振幅值 [=Average(Number1; Number2;...)]。
8. 分析基线噪声(信号标准偏差)
- 点击“回放”生成 *.brw 文件以分析基线噪声。随后,选择“活动图”,并在“指标”下选择“标准差”。标尺自动设置为 30 µV,从而可视化电极阵列的信号变异性(图 5B)。
- 在“活动图”窗口中,将鼠标指针悬停在记录的电极上以显示“全孔均值”标准差。
- 或者,您可以使用“图表导出”功能确定平均标准差并创建 *.xlsx Excel 文件。然后,打开 Excel 文件并计算平均标准差 [=Average(数值1; 数值2;...)]。
9. 用于评估信号质量:
- 计算信噪比 (SNR)
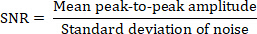
SNR ≥ 5:质量良好
SNR 介于 2 和 5 之间:质量中等
SNR < 2:质量差
10. 在 CorePlate 单孔板中进行切片定位以进行数据采集
- 借助巴斯德吸管,将脑片定位在电极阵列上,使目标区域被记录电极覆盖(图 4 B-1)。从培养皿中移除溶液(图 4 B-2)。使用直立显微镜拍照。
- 使用脑片固定锚固定组织(图 4C)。
- 使用一支 3 mL 巴斯德吸管,向脑片添加一滴 ACSF。
- 使用一支容量较小的巴斯德吸管移除液体。用一片拧成条的纸吸除剩余液体(重复此操作 7-10 次)(图 4C-2)。
- 记录期间的灌流,使用室温下的 ACSF,并将流速设定为 2 mL·min-1。流入端位于组织切片上方,流出端位于培养皿壁(图 4D)。
- 建议对流入端和流出端进行额外接地,以尽量减少灌流引起的噪声,这可以通过用导线将它们连接到记录系统来实现(图 4D-1)。
- 为减少干扰,请关闭显微镜和房间的灯光。
11. 使用 CorePlateTM 单孔板记录网络活动
- 将记录参数设置为采样频率 20,000 Hz,高通滤波器为 100 Hz。
- 在 BrainWave 5 软件中,转到“文件”并打开一个新的记录会话。
- 点击“源”。
- 打开:芯片导联,并进行以下调整:
记录自发神经活动的采样率:20,000 Hz/电极。
硬件高通滤波器截止频率:100 Hz。
光补偿速率:短(直接光刺激)。
- 选择芯片校准通道和原始迹线类型。
- 打开:控制信号,并选择:在内部芯片校准上,选择输出通道:1.1。
- 点击“+”和“图表”。
- 打开:图表设置。
- 选择原始迹线:原始迹线与锋电位。
12. 在活动图谱上插入并对齐显微镜图像
- 点击“+”。
- 选择“叠加与注释”,将显微镜图片插入 BW5 的活动图谱中:
- 进入孔层:
- 选择管理图层及小脑图片。
- 对齐所选图像层:点击开始。
- 按照数字顺序点击图片的四个角,然后应用。
13. 开始记录前的数据压缩设置
- 为压缩数据,请转至 RECORDER 的第一页:
- 驾驶舱模式:高级
- 保存原始压缩数据:小波压缩 + 事件:锋电位。
- 开始记录前,先运行 10 分钟。
- 完成记录后,用 100 % 乙醇清洁镀金垫。接着,向孔中加入纯水并刷洗 30 秒。
- 接着,向孔中加入 70 % 乙醇,轻轻刷洗电极阵列约 30 秒。最后,向孔中加入纯水并轻轻刷洗 30 秒(重复此步骤 2 到 3 次)。
- 将 CorePlateTM 单孔板干燥后保存在合适的容器中。
14. 记录数据的离线分析
- 使用 BW5 打开所需文件。
- 根据解剖层次(分子层、浦肯野细胞层、颗粒细胞层)选择电极,将小脑皮层分为三组。
注意:各层感兴趣区(ROI)内的电极数量取决于各层检测到的自发活动,因此在不同记录中存在差异。通常,每张切片中每个ROI会分析25至250个电极。为避免层归属的模糊性,位于跨越两个解剖层区域的电极被排除在外。仅明确归属于特定小脑层的电极被纳入进一步评估。- 筛选与分组: 前往 单元组.
- 在“管理单位组”页面,点击“+”以形成一个组并为其命名。
- 要将更多电极纳入组中,请选择电极并点击“添加或移除选定单元”.
- 使用精确时序尖峰检测法分析原始轨迹。该方法专注于检测峰-峰幅度超过预设阈值的相对最大值与最小值,从而确保尖峰识别的精确性与准确性。
- 数据处理:前往 尖峰检测 并将模式设置为 高级.
- 使用数据来源:原始数据。
- 算法:PTSD(精确时序尖峰检测)。
- 标准偏差因子:8.0。
- 峰值寿命周期:2.0 毫秒。
- 不应期:1.0 毫秒。
- 峰分配:负峰。
- 峰前波持续时间:1.0 毫秒。
- 峰后波持续时间:1.5 ms。
- 前往 尖峰信号分选 并将模式设置为 高级调整以下参数:
- 峰前波采集时长:0.5 毫秒。
- 峰值后波形采集时长:1.0 毫秒。
- 特征提取算法:勒让德矩。
- 特征数量:3。
- 聚类算法:K-Means &;剪影。
- 每个簇的最小尖峰数量:20。
- 最大聚类数:3。
- 轮廓阈值:2。
- 将数据导出至 Excel。
- 点击“图表绘制”.
- 前往 图表导出.
- 选择电子表格并导出。
结果
苍白球深部脑刺激使不同组间皮层各层的脉冲数量恢复至正常水平。
我们分析了四组实验动物小脑皮层三个层中的总峰电位数量——分子层(ML)、浦肯野细胞层(PL)和颗粒细胞层(GL):野生型(WT,N = 8)、dtsz(N = 8)、dtsz-Sham(N = 7)和 dtsz-DBS(N = 7),分析基于从这些动物获取的脑片进行。
尽管肌张力障碍组织(dtsz)产生的峰电位显著较少,但苍白球深部脑刺激(DBS)使峰电位数量增加至与健康对照组相当的水平(表 3)。Kruskal-Wallis H 检验进一步证实了这一结果,显示在 dtsz DBS 组中,ML 区域的峰电位数量相较于 dtsz 组和 dtsz-Sham 组均具有统计学意义上的显著增加(χ2(3) = 20.728,p = 0.001;图 6A)。dtsz-DBS 组在 PL 区域(χ2(3) = 16.855,p = 0.001;图 6B)和 GL 区域(χ2(3) = 13.164,p = 0.004;图 6C)也表现出类似的峰电位增加,达到与 WT 组相当的水平(表 3)。
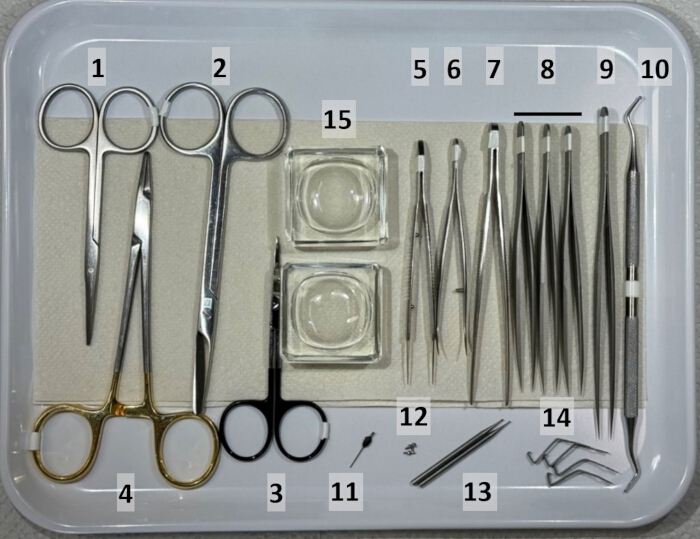
图1.外科器械概览。 该图像展示了一个排列整齐的托盘,其中包含一套专为深部电极和刺激器植入手术设计的外科及显微外科器械。这些器械按照使用顺序排列,以提高操作效率。器械放置于组织上,以保持清洁并在手术过程中便于取用。此布局注重精确性、无菌性以及对复杂外科工作流程的充分准备。(1)钝头/钝头剪刀,(2)缝线剪刀,(3)锐头/锐头剪刀,(4)持针器,(5)打结钳,(6)弯头碎屑钳,(7)带齿镊,(8)标准短镊,(9)标准长镊,(10)显微刮匙,(11)重复使用的电极,(12)螺钉,(13)钻头配件,(14)牵开器头/夹具,(15)玻璃腔块,需填充0.9 % NaCl和利多卡因。更多信息请参见材料清单。请点击此处查看该图的放大版本。
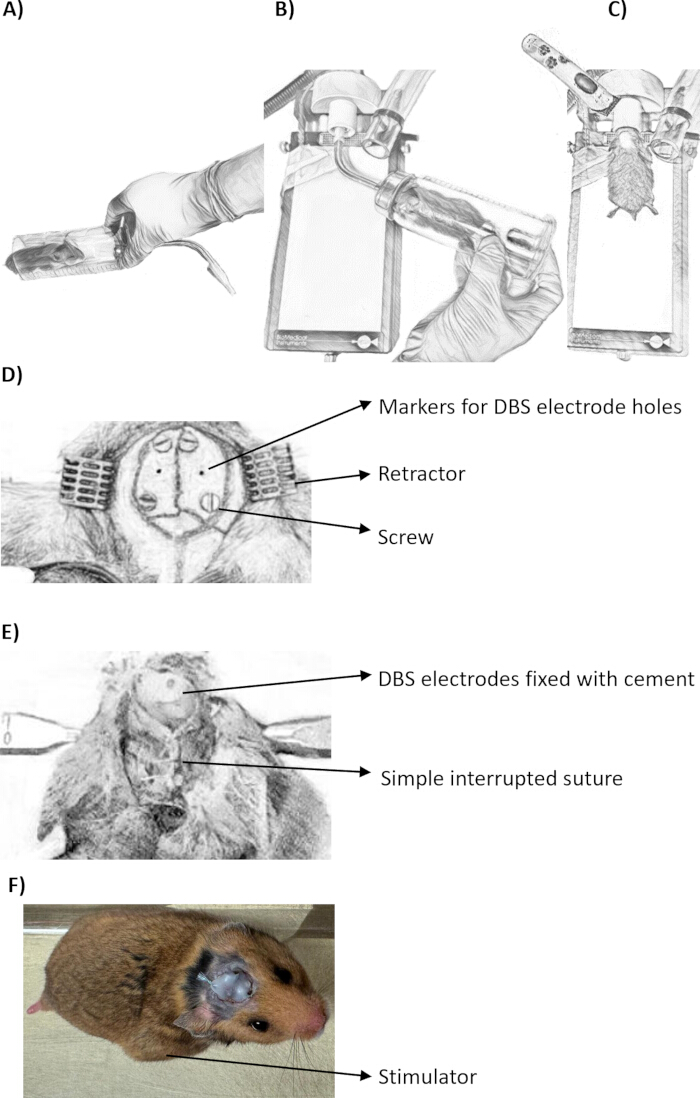
图2.用于在立体定位仪中麻醉并固定动物以植入DBS电极和刺激器的实验装置。(A)将动物轻轻放入定制的诱导室中以开始麻醉。(B)将诱导室连接至呼吸面罩,以确保在操作过程中安全地输送麻醉气体(使用4%异氟烷进行诱导)。(C)动物麻醉后,转移至带有连接呼吸面罩的加热板上(以3%异氟烷维持麻醉),以防止低体温,并在剃毛过程中持续维持麻醉状态。(D)将动物小心地固定在立体定位架中。做一纵向切口,并使用夹子牵开皮肤。四个点标示螺钉的放置位置。将螺钉插入标记区域后,再标记两个点用于电极放置。(E)将电极插入苍白球内侧部(GPi),并用胶水固定,随后移除立体定位夹持器。为增强固定效果,在电极周围涂覆牙科水泥。使用间断的纵向缝合线关闭手术切口;(F)将刺激器置于动物皮下侧腹部区域。术后动物保持存活状态,箭头指示刺激器的位置。请点击此处查看该图的放大版本。
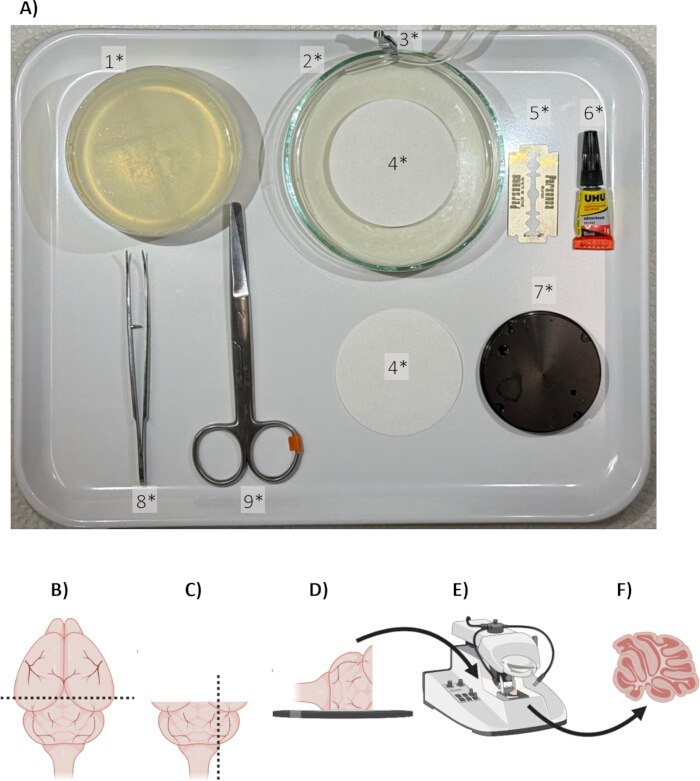
图3.脑组织切片示意图。(A)解剖操作所用的手术器械。(1*)自制琼脂培养皿,(2*)琼脂培养皿,(3*)用于固定碳氧混合气体管的夹子,(4*)滤纸,(5*)刀片,(6*)超级胶水,(7*)振动切片机载片/夹具,(8*)弯头镊子,(9*)剪刀,尖头/钝头。(B)脑组织样本准备:解剖后对脑组织进行切割,虚线表示冠状面切片的方向。(C)旁矢状面切片:沿指定的旁矢状面进行切割。(D)组织固定:将所得脑组织用胶水固定于载片/夹具上,以确保切片精确。(E)振动切片:将附着组织的载片转移至振动切片机中,获得超薄切片(200 µm)。(F)最终切片:制备出精确的旁矢状面小脑切片,可用于电生理记录35。更多信息请参见材料清单。请点击此处查看该图的放大版本。
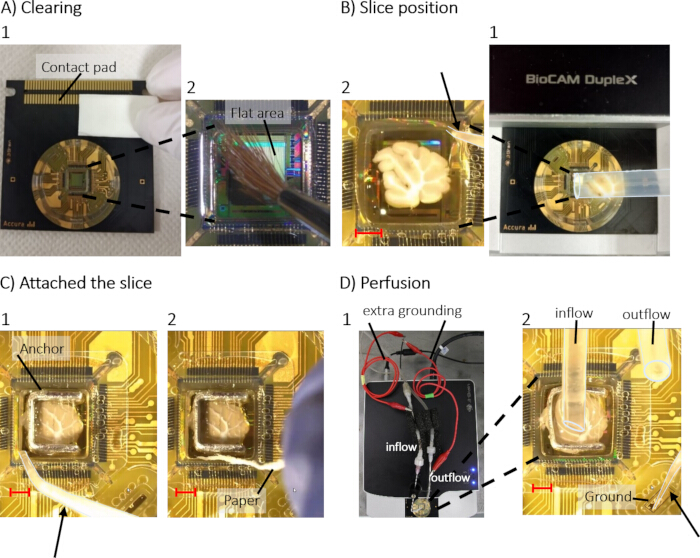
图4。获得良好细胞活性的步骤示意图。(A)清洗:此步骤包括通过清洁HD-MEA表面来准备其使用,以确保无任何污物干扰组织贴附(接触垫,A-1)或记录过程(平坦区域,A-2)。(B)脑片位置:将组织切片小心地放置在HD-MEA上(B-1),确保其正确对齐以实现电极的有效接触(B-2)。使用移液管的细尖端(箭头)去除残留的ACSF,以便插入锚定装置。(C)切片固定:使用锚定装置将切片牢固地固定在HD-MEA上。在此步骤中,关键是要先滴加一滴ACSF,然后使用移液管(C-1;箭头)和一小段卷紧的精密擦拭纸(C-2)小心地去除多余液体。这可确保切片保持稳定,并与电极良好连接,以实现准确记录。(D)灌流:最后,连接并启动灌流系统,以在实验期间维持组织切片的活性,其中流入液应位于切片上方,流出液应靠近腔室壁(D-2)。同时必须清除所有气泡,以尽量减少记录过程中的噪声(箭头所示)。额外的接地线连接至流入和流出管路(D-1)。红色标尺长度为1.5 mm。请点击此处查看该图的放大版本。
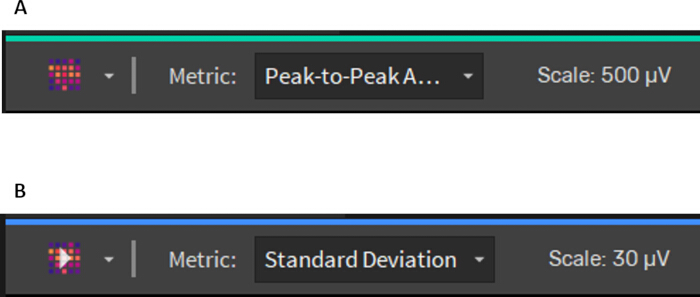
图5。使用 Brain Wave 5 软件(BW5)在 HD-MEA 记录中评估信号质量的幅值和标准差指标。(A)选择峰-峰值幅值指标以提取电极固有的幅值(量程:500 µV)。(B)选择标准差指标以量化各电极上的基线噪声(量程:30 µV)。请点击此处查看该图的放大版本。
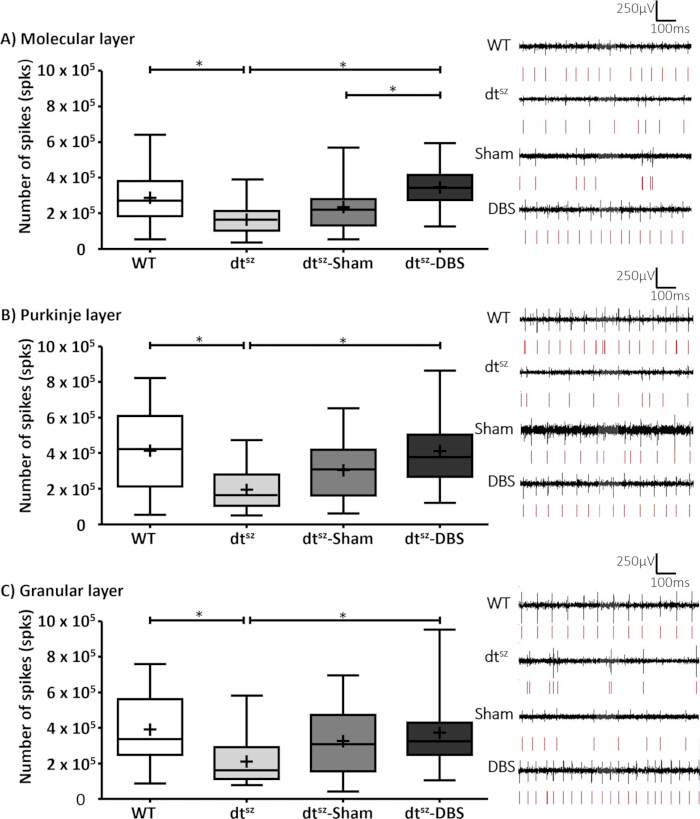
图6:苍白球深部脑刺激(DBS)对小脑皮层各层尖峰活动的影响:(A) 分子层(ML),(B) 普肯耶细胞层(PL)和(C) 颗粒层(GL)。箱须图中以十字和横线分别表示均值和中位数,同时显示第25和第75百分位数。各组分别为野生型(WT,n = 22 个切片)、未手术的dtsz型(n = 20 个切片)、dtsz型假刺激(Sham,n = 20 个切片)以及dtsz-DBS激活组(n = 20 个切片)。统计学显著性通过Kruskal-Wallis检验确定,随后进行Dunn's成对比较(*p< 0.05)。请点击此处查看该图的放大版本。
| 名称 | 分子量 [g/mol] | 终浓度 [mol/L] |
| NaCl | 58.44 | 0.124 |
| KCl | 74.55 | 0.003 |
| 葡萄糖 | 180.16 | 0.01 |
| CaCl2 (无水) | 110.98 | 0.0025 |
| NaHCO3 | 84,007 | 0.026 |
| NaH2PO4 | 119.98 | 0.00125 |
| pH | 7.35 至 7.40(可用 HCl 调节) | |
| 渗透压 [mOsmol/kg] | 290 至 300 | |
表1:人工脑脊液(ACSF)溶液:用于制备小脑切片实验所用ACSF的成分及其最终摩尔浓度。用HCl将pH值调节至7.35–7.40,渗透压维持在290–300 mOsm·kg-1。
| 名称 | 分子量 [g/mol] | 终浓度 [mol/L] |
| 蔗糖 | 342.30 | 0.075 |
| KCl | 74.55 | 0.0025 |
| NaCl | 58.44 | 0.087 |
| CaCl2 (无水) | 110.98 | 0.0005 |
| MgCl2 | 95.21 | 0.007 |
| 葡萄糖 | 180.16 | 0.01 |
| NaHCO3 | 84.01 | 0.025 |
| NaH2PO4 | 119.98 | 0.00125 |
| pH | 7.35 至 7.40(可用 HCl 调节) | |
| 渗透压 [mosmol/kg] | 320 至 330 | |
表2:蔗糖溶液。 小脑切片制备过程中所用蔗糖溶液的组成成分及最终摩尔浓度。pH值调节至7.35–7.40,渗透压维持在320–330 mOsm·kg-1。
| 分组: | WT | dtsz | dtsz-Sham | dtsz-DBS |
| n | 22 | 20 | 20 | 20 |
| 变异系数 | ||||
| ML | 0.53 | 0.55 | 0.6 | 0.35 |
| PL | 0.57 | 0.57 | 0.52 | 0.46 |
| GL | 0.48 | 0.66 | 0.61 | 0.51 |
| 尖峰数量 | ||||
| ML | 287240±32605 | 163434±19998 | 234209±31284 | 345915±27113 |
| PL | 413223±50171 | 194277±24786 | 304568±35692 | 412707±42509 |
| GL | 390817±40139 | 211274±31193 | 325533±44318 | 373208±42220 |
表3:小脑各层及实验组间峰电位指标汇总。WT — 野生型,非肌张力障碍对照组仓鼠;dtsz — 天然 dtsz 仓鼠;dtsz-DBS — 连续刺激11天的 dtsz 仓鼠;dtsz-Sham — 接受手术但无有效DBS刺激的 dtsz 仓鼠;ML — 分子层;PL — 普肯耶细胞层;GL. — 颗粒细胞层。
讨论
我们描述了一种方法学途径,用于研究深部脑刺激(DBS)在dtsz仓鼠的病理生理性肌张力障碍神经网络中的作用机制。关键步骤包括精确的电极植入、快速的小脑切片制备以及稳定的高密度微电极阵列(HD-MEA)记录条件,以确保可靠的数据采集。我们展示了手术操作、小脑切片制备、记录及分析技术,以探究ex vivo 状态下小脑的神经活动及其受DBS调控的情况。利用HD-MEA进行的电生理测量可实现对小脑自发活动的实时记录,具有高时间与空间分辨率36,我们认为这对于研究苍白球深部脑刺激治疗肌张力障碍的机制至关重要。
目前,肌张力障碍被认为是一种网络性疾病,其特征是基底神经节、小脑和皮层回路之间功能障碍性相互作用导致异常的运动输出37,38。临床和实验研究均表明,小脑异常在肌张力障碍中起着重要作用15,22,39。此外,一项针对松鼠猴小脑皮层注射逆行狂犬病毒(RV)的解剖学研究显示,基底神经节的丘脑底核对小脑皮层有显著的投射作用40。这些发现强调了在研究深部脑刺激(DBS)治疗机制时,同时探索小脑回路与基底神经节网络的重要性40,41,42。该方法特别适用于研究运动障碍中的神经元相互作用及神经调节效应。
关于苍白球深部脑刺激(pallidal DBS)的全脑网络机制,研究已表明,对苍白球内侧部(GPi)进行DBS可引发大脑活动的广泛改变,不仅影响基底神经节内部,还涉及皮质-纹状体网络43、丘脑44以及小脑15等相互连接的脑区。这些发现支持了苍白球DBS能够调节整个基底神经节-小脑网络活动的假说,从而解释其在肌张力障碍治疗中的疗效。这凸显了开展临床前研究以探究DBS作用机制的必要性,也体现了高密度微电极阵列(HD-MEA)记录技术在捕捉全网络电生理变化方面的优势。此外,Kotyra 等人(2025)的研究进一步证实,长期GPi-DBS可在肌张力障碍运动网络中诱导持久的神经可塑性重塑45。In vivo 研究结果显示,苍白球刺激可逐步减轻dtsz仓鼠的肌张力障碍严重程度,且在停止刺激后,其治疗效果仍持续存在,提示DBS的作用机制不仅限于刺激期间的急性效应45。此外,近期的电生理学研究发现,长期DBS可导致全网络范围内的突触可塑性和放电模式的调节,包括小脑活动增强15、运动丘脑神经元的兴奋性输入增加,以及初级运动皮层(M1)兴奋性输入更加集中46。
代表性结果表明,深部脑刺激(DBS)具有全网络范围的影响,这体现在肌张力障碍仓鼠小脑皮层的分子层、浦肯野细胞层和颗粒细胞层中放电活动的正常化(图6)。在dtsz DBS组中观察到的放电活动增加达到了与野生型对照组相当的水平。放电活动的这种正常化支持了DBS在治疗肌张力障碍方面的治疗潜力。值得注意的是,与WT组相比,dtsz-Sham组在所有小脑层中的放电值均处于中间水平,提示仅电极植入本身可能影响小脑网络活动。这一解释与临床上描述的肌张力障碍中的微损伤效应一致,即电极植入本身可能在刺激开始前短暂改善症状47。尽管dtsz仓鼠再现了阵发性全身性肌张力障碍的关键特征,但并未完全反映人类肌张力障碍综合征中所观察到的临床异质性。因此,在将这些发现外推至人类肌张力障碍时应保持谨慎。
本研究解决了与刺激器封装、脑深部电刺激手术、脑片制备以及大规模电生理数据分析相关的技术难题。基于CMOS的高密度微电极阵列(HD-MEA)技术的结合,为 体外 高度复杂神经元相互作用的研究48我们的研究结果有助于更深入地理解肌张力障碍背后的病理生理动态,为脑深部电刺激(DBS)治疗的网络层面机制提供了有价值的见解。对特定脑区及其相互作用进行详细的功能分析,一方面有助于更细致地认识肌张力障碍神经网络中的病理生理动态,另一方面则揭示了DBS治疗作用的机制。
本研究中,技术问题导致高密度微电极阵列(HD-MEA)记录过程中背景噪声增加,干扰了稳定信号的获取。常见的故障排除步骤包括排查噪声来源、确保正确接地以及维持组织与电极之间稳定的接触。当出现高噪声水平或测量不稳定时,应首先检查接地情况、电缆连接以及附近的电子设备。电极阵列表面的气泡也可能损害组织与电极的接触并影响记录稳定性,必须小心清除(图 4)。此外,必须确保放大器通过高质量的 USB-C 转 USB-C 电缆向计算机稳定传输数据。对于持续存在噪声的电极,应将其排除在后续分析之外。尽管使用 HD-MEA 记录细胞外信号可实现对神经网络活动的高空间分辨率,并结合叠加的显微图像将信号定位至小脑皮层的各个分层,但仍不能排除所检测到的细胞外活动由非目标分层的穿行轴突产生。此外,统计分析以脑片为单位进行,因为每张脑片代表在标准化实验条件下获得的独立电生理记录,尽管部分脑片可能来自同一只动物。
在深部脑刺激(DBS)过程中,由于电极松动或刺激器的技术缺陷,可能会出现其他问题。为尽量减少这些问题,应确保电极固定牢靠,并在整个操作过程中保持无菌操作条件。在本研究的所有试验中,此类情况的发生率为5%。为减少电极松动,必须在使用粘合剂或牙科水泥固定电极前将颅骨表面彻底干燥,以增强粘附性并防止滑脱。为确保无菌并避免机械污染,刺激器、电极尖端和单丝缝线只能使用镊子或止血钳进行操作。此外,在接触动物前,应使用乙醇对手套进行消毒并晾干,以最大限度降低感染风险。快速制备小脑脑片对于获得高质量的电生理记录至关重要。然而,这也意味着无法在事后验证植入式DBS电极的位置。在另一项研究中,研究人员探讨了不同刺激参数对dtsz-仓鼠肌张力障碍严重程度的影响,该研究采用了相同的刺激电极和手术技术。在该研究中,我们能够在94%的试验中确认电极位置的准确性37。
总之,本方案为研究深部脑刺激(DBS)的电生理机制提供了一个强大的平台,并为其作用机制提供了宝贵的见解。dtsz 仓鼠独特地实现了在肌张力障碍表型背景下对苍白球DBS效应的临床前研究,同时结合了离体 高分辨率神经元网络活动记录。我们的结果支持小脑参与肌张力障碍的概念,并强调了在理解与优化神经调控疗法中进行网络水平分析的重要性。
披露
作者无任何利益冲突需要披露。
致谢
本研究由德国研究基金会(DFG)在合作研究中心(SFB 1270/1,2 ELAINE 299150580)项目资助下完成。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 3% H2O2 | Caelo | 15301730 | |
| 50 ml 锥形管 | Greiner Bio-One | Falcon型锥形管 | |
| 琼脂培养皿 | 手工制作 | ||
| 麻醉装置 | BioMedical Instruments | Univentor 1200 | |
| BioCam DupleX | 3Brain | BioCAM DupleX | CMOS-HD-MEA 平台 |
| 刀片(5*) | Apollo Herkenrath | 09-025-056 | |
| Brainwave 软件 5 | 3Brain | 版本 5 | CMOS-HD-MEA 平台 |
| 呼吸面罩 | Narishige | GM-4 | |
| 大容量可流动材料:Compula 补充装 | Dentsply Sirona | 267-0195 | 用于粘固剂 |
| 胶囊分配枪 | Dentsply Sirona | 296-0003 | 用于粘固剂 |
| 碳酰气(Carbogen) | Air Liquide | Air Liqiuide(室内系统) | |
| 腔体阻断玻璃片 | AIM | AIM | 40 mm × 40 mm |
| 夹具(3*) | DIEFFENBACH | 12-1003-04 | 不锈钢,4 cm |
| 计算机 | Dell | Precission 3431 | |
| CorePlateTM 1W 38/60 | 3Brain | Accura HD-MEA | CMOS-HD-MEA 芯片 |
| 钻头配件(13) | FST | 19007-07 | 尖端:7 mm |
| 钻头配件(13) | FST | 19007-09 | 尖端:9 mm |
| Eco 擦拭巾 - 擦拭分配器 | Dr Schumacher | 00-915SE001 (1x1) | |
| Eco 擦拭巾 - 擦拭卷 | Dr Schumacher | 00-915SE001 (6x1) | |
| ELASTOSIL | Wacker | RT 601 A/B | |
| 电极 | Microprobes | SNEX-100 | |
| 乙醇 | Carl Roth GmbH + Co. KG | 货号 T913.3 | |
| 挖匙(10) | HLW Dental-Instruments Germany | S-10.28-6 | |
| 镊子(5) | FST | 18025-10 | 不锈钢,10 cm |
| 镊子(6) | Aesculap | BD311R | 9 cm |
| 镊子(7) | FST | 91100-12 | 不锈钢,12 cm |
| 镊子(8) | FST | 11231-20 | 不锈钢,11 cm |
| 镊子(8*) | Karl Hammacher | 9.160 160 | Wironit,10.5 cm |
| 镊子(9) | FST | 11200-33 | Dumoxel,13.5 cm |
| 镊子(9) | FST | 11200-33 | Dumoxel,13.5 cm |
| 带集成排气系统的加热手术台 | BioMedical Instruments | BioMedical Instruments | |
| heliobond | Ivoclar Vivadent | 42040 | |
| 制冰机 | Scotsman | AF 80 AS / WS | |
| 流入和流出针头 | BD Microlance | 1.25 × 70 mm | |
| Isathal 10 mg/g | Dechra | 注册号 400216.00.00 | Fucidin |
| 异氟烷 | Sedana medical | N001254 | |
| Milli-Q 水过滤器 | Elga | PURELAB flex 3 | |
| 持针器(4) | FST | 12501-13 | 碳化钨,13 cm |
| Octenisept | Schülke & Mayr | 抗菌溶液 | |
| 滤纸(4*) | Carl Roth GmbH + Co. KG | AP75.1 | |
| Parafilm | Sigma Aldrich | HS234526C | |
| 铂金锚定件 | 3Brain | 3Brain | |
| 牵开器头(14) | FST | 18200-10 | 2.5 mm |
| 重复使用电极(11) | Microprobes | SNEX-100 | 用于定位坐标 |
| 林格氏液 | B. Braun | 3570030 | |
| 剪刀(1) | FST | 14078-10 | 不锈钢,10 cm |
| 剪刀(2) | Aesculap | BC144R | |
| 剪刀(3) | FST | 14058-09 | 不锈钢,9 cm |
| 剪刀(9*) | FST | 91401-12 | 不锈钢,12 cm |
| 螺钉(12) | Online-Schrauben.de | DIN 84 A2 M 1×2 | |
| 剃毛器 | Exacta | GT415 | |
| STELLA(软件定义可植入模块化平台)刺激系统 | 非商业用途;罗斯托克大学开发 | 开源(https://github.com/SFB-ELAINE/STELLA) | 电池驱动的深部脑刺激器 |
| 灭菌器 250 | FST | 18000-45 | |
| 立体定位仪 | Narishige | 型号 SR-AR | |
| 超级胶水 | UHU | 64212 | |
| 眼用软膏(泛醇鼻用软膏) | Jenapharm | 5541249 | |
| 振动切片机 | Laica | VT12005 | |
| 利多卡因凝胶 2% | Aspen Pharma | 1138060 | |
| 称量舟 | Carl Roth GmbH + Co. KG | HYT9.1 | |
| 电子天平 | Voltcraft | TS-5000/1 | |
| 用于溶液配制的化合物 | |||
| 氯化钙(CaCl2) | Sigma-Aldrich | 10043-52-4 | |
| D-葡萄糖(C6H12O6) | Sigma-Aldrich | 50-99-7 | |
| 氯化镁(MgCl2) | Sigma-Aldrich | 7786-30-3 | |
| 氯化钾(KCl) | Sigma-Aldrich | 7447-40-7 | |
| 碳酸氢钠(NaHCO3) | Sigma-Aldrich | 144-55-8 | |
| 氯化钠(NaCl) | Sigma-Aldrich | 7647-14-5 | |
| 磷酸二氢钠(NaH2PO4) | Sigma-Aldrich | 7558-80-7 | |
| 蔗糖 | Sigma-Aldrich | 57-50-1 |
参考文献
- Beylergil, S. B., et al. Tremor in cervical dystonia. Dystonia. , (2024).
- Stephen, C. D., et al. Dystonias: Clinical recognition and the role of additional diagnostic testing. Semin Neurol. , (2023).
- Fung, V. S. C., Jinnah, H. A., Bhatia, K., Vidailhet, M. Assessment of the patient with isolated or combined dystonia: An update on dystonia syndromes. Mov Disord. , (2013).
- Klepitskaya, O., Neuwelt, A. J., Nguyen, T., Leehey, M. Primary dystonia misinterpreted as Parkinson disease. Neurol Clin Pract. , (2013).
- Drivenes, B., et al. A child with myoclonus-dystonia (DYT11) misdiagnosed as atypical opsoclonus myoclonus syndrome. Eur J Paediatr Neurol. , (2015).
- Valeriani, D., Simonyan, K. A. Microstructural neural network biomarker for dystonia diagnosis identified by a DystoniaNet deep learning platform. Proc Natl Acad Sci U S A, , (2020).
- Albanese, A., et al. Definition and classification of dystonia. Mov Disord. , (2025).
- Balint, B., et al. Dystonia. Nat Rev Dis Primers. , (2018).
- Bohne, P., et al. Cerebellar α1D-adrenergic receptors mediate stress-induced dystonia in totteringtg/tg mice. Cell Mol Life Sci. , (2025).
- Gwinn-Hardy, K. A., et al. Effect of hormone variations and other factors on symptom severity in women with dystonia. Mayo Clin Proc, , (2000).
- Kim, J. E., et al. Cerebellar 5HT-2A receptor mediates stress-induced onset of dystonia. Sci Adv. , (2021).
- Vitek, J. L. Pathophysiology of dystonia: A neuronal model. Mov Disord. , (2002).
- Rissardo, J. P., et al. Neurobiology of dystonia: Review of genetics, animal models, and neuroimaging. Brain Sci. , (2025).
- Bologna, M., Berardelli, A. The cerebellum and dystonia. Handb Clin Neurol. , (2018).
- Kragelund, F. S., et al. Network-wide effects of pallidal deep brain stimulation normalised abnormal cerebellar cortical activity in the dystonic animal model. Neurobiol Dis. , (2025).
- Löscher, W., Hörstermann, D. Abnormalities in amino acid neurotransmitters in discrete brain regions of genetically dystonic hamsters. J Neurochem. , (1992).
- Lüttig, A., et al. Short-term stimulations of the entopeduncular nucleus induce cerebellar changes of c-Fos expression in an animal model of paroxysmal dystonia. Brain Res. , (2024).
- Yousef, O., et al. Subthalamic nucleus versus globus pallidus internus deep brain stimulation in the treatment of dystonia: A systematic review and meta-analysis of safety and efficacy. J Clin Neurosci. , (2025).
- Lin, S., et al. Globus pallidus internus versus subthalamic nucleus deep brain stimulation for isolated dystonia: A 3-year follow-up. Eur J Neurol. , (2023).
- Liker, M. A., et al. Stereotactic awake basal ganglia electrophysiological recording and stimulation (SABERS): A novel staged procedure for personalized targeting of deep brain stimulation in pediatric movement and neuropsychiatric disorders. J Child Neurol. , (2024).
- Hock, A. N., et al. A randomised double-blind controlled study of deep brain stimulation for dystonia in STN or GPi: A long-term follow-up after up to 15 years. Parkinsonism Relat Disord. , (2022).
- Shakkottai, V. G., et al. Current opinions and areas of consensus on the role of the cerebellum in dystonia. Cerebellum. , (2017).
- Neychev, V. K., et al. The basal ganglia and cerebellum interact in the expression of dystonic movement. Brain. , (2008).
- Fredow, G., Löscher, W. Effects of pharmacological manipulation of GABAergic neurotransmission in a new mutant hamster model of paroxysmal dystonia. Eur J Pharmacol. , (1991).
- Löscher, W., et al. The sz mutant hamster: A genetic model of epilepsy or of paroxysmal dystonia? Mov Disord. , (1989).
- Richter, A., Löscher, W. Pathophysiology of idiopathic dystonia: Findings from genetic animal models. Prog Neurobiol. , (1998).
- Hull, C., Regehr, W. G. The cerebellar cortex. Annu Rev Neurosci. , (2022).
- van der Heijden, M. E., Sillitoe, R. V. Interactions between Purkinje cells and granule cells coordinate the development of functional cerebellar circuits. Neuroscience. , (2021).
- Emery, B. A., et al. High-resolution CMOS-based biosensor for assessing hippocampal circuit dynamics in experience-dependent plasticity. Biosens Bioelectron. , (2023).
- Viswam, V., et al. Impedance spectroscopy and electrophysiological imaging of cells with a high-density CMOS microelectrode array system. IEEE Trans Biomed Circuits Syst. , (2018).
- Imfeld, K., et al. Large-scale, high-resolution data acquisition system for extracellular recording of electrophysiological activity. IEEE Trans Biomed Eng. , (2008).
- Berdondini, L., et al. Extracellular recordings from locally dense microelectrode arrays coupled to dissociated cortical cultures. J Neurosci Methods. , (2009).
- Busch, M., et al. Species-appropriate housing of laboratory rats. , GV-SOLAS Committee for Laboratory Animal Husbandry. (2019).
- Plocksties, F., et al. The software defined implantable modular platform (STELLA) for preclinical deep brain stimulation research in rodents. J Neural Eng. , (2021).
- Kragelund, F. S. Illustration of brain sectioning and slicing. , BioRender. (2026).
- Schröter, M., et al. Advances in large-scale electrophysiology with high-density microelectrode arrays. Lab Chip. , (2025).
- Paap, M., et al. Deep brain stimulation by optimized stimulators in a phenotypic model of dystonia: Effects of different frequencies. Neurobiol Dis. , (2021).
- Takada, M., et al. Two separate neuronal populations of the rat subthalamic nucleus project to the basal ganglia and pedunculopontine tegmental region. Brain Res. , (1988).
- Filip, P., Lungu, O. V., Bareš, M. Dystonia and the cerebellum: A new field of interest in movement disorders? Clin Neurophysiol. , (2013).
- Bostan, A. C., Strick, P. L. The basal ganglia and the cerebellum: Nodes in an integrated network. Nat Rev Neurosci. , (2018).
- Bostan, A. C., Dum, R. P., Strick, P. L. The basal ganglia communicate with the cerebellum. Proc Natl Acad Sci U S A, , (2010).
- Middleton, F. A., Strick, P. L. Basal ganglia and cerebellar loops: Motor and cognitive circuits. Brain Res Rev. , (2000).
- Heerdegen, M., et al. Mechanisms of pallidal deep brain stimulation: Alteration of cortico-striatal synaptic communication in a dystonia animal model. Neurobiol Dis. , (2021).
- Pralong, E., et al. Effect of deep brain stimulation of GPI on neuronal activity of the thalamic nucleus ventralis oralis in a dystonic patient. Neurophysiol Clin. , (2003).
- Kotyra, M., et al. Effects of longer-term pallidal stimulation on the severity of dystonia in a phenotypic animal model. Exp Neurol. , (2026).
- Franz, D., et al. Network-wide modulation of synaptic plasticity and spike patterns in motor circuits after pallidal deep brain stimulation in a dystonia model. Neurobiol Dis. , (2025).
- Cersosimo, M. G., et al. Micro lesion effect of the globus pallidus internus and outcome with deep brain stimulation in patients with Parkinson disease and dystonia. Mov Disord. , (2009).
- Blotter, M. L., et al. High-quality seizure-like activity from acute brain slices using a complementary metal-oxide-semiconductor high-density microelectrode array system. J Vis Exp. (211), e67065(2024).
重印与许可
