该研究提出了一种方法 体外 细菌感染的研究 利用组织干细胞来源的肠道类器官。该方案描述了如何在二维条件下培养和分化类器官,并用黏附侵袭性 大肠杆菌并评估关键读数,包括上皮屏障损伤、感染成像以及上皮RNA反应。
本文内容
摘要
摘要
类器官技术提供了一种实验方法 体外 用于研究健康与疾病状态下人体生理学的平台。与其他方法相比 体外 系统(如癌细胞系或外植体)相比,组织干细胞(TSC)来源的类器官具有显著优势:它们可在维持基因组稳定性的同时无限扩增,并适用于CRISPR基因编辑。由于这些类器官来源于正常的组织干细胞,因此包含其来源组织的各种细胞类型。这使得类器官在研究细菌与分化状态的非肿瘤性人类细胞之间的相互作用方面尤为有价值。肠道类器官可在涂有基底膜提取物(BME)或invasin(一种无动物成分、成本较低的替代物)的细胞培养小室上培养为二维极化单层结构,并可分化为主要的肠道上皮细胞类型,用于感染研究致病性黏附侵袭性 E. coli关键感染读数包括通过逆转录定量PCR(RT-qPCR)监测上皮基因表达、利用共聚焦显微镜观察细菌-上皮相互作用,以及量化上皮屏障的破坏。该方案可轻松调整用于研究其他器官和细菌种类,为类器官中宿主-微生物相互作用的研究提供了一个多功能平台。
引言
肠上皮构成了抵御肠道管腔内病原菌的第一道防线。In vitro 肠上皮模型已被广泛用于研究细菌如何与上皮细胞相互作用、这些细胞对感染的反应机制,以及细菌如何突破上皮屏障1。这些模型在受控且简化的条件下研究人类特异性病原体尤其有价值。传统上,in vitro 感染生物学研究依赖于肿瘤来源的细胞系(例如 Caco-2 细胞)或患者来源并在 ex vivo 条件下维持的组织外植体2,3。近年来,由人类组织干细胞生成的肠道类器官已成为一种强大的工具,结合了上述两种方法的优势:类器官像细胞系一样可传代、扩增、冷冻保存、复苏并进行遗传操作;同时又与外植体相似,来源于非肿瘤性干细胞,能够分化为所有主要的上皮细胞类型4,5。
当嵌入Matrigel或基底膜提取物(BME)等基质中时,人肠道类器官通常会自组织形成球形、极化的结构,其顶面朝内,基底面朝外。由于大多数肠道病原体从顶面侵入上皮细胞,目前已开发出多种策略以使类器官的顶面暴露于细菌4。其中一种方法是将细菌直接显微注射到类器官腔内6;另一种方法是通过将类器官从细胞外基质中释放,使其极性反转,从而在悬浮状态下形成顶面朝外("apical-out")的类器官7。第三种策略是将类器官解离为单个细胞,并接种至细胞培养小室中,形成具有极性的二维单层细胞(2D类器官片),其顶面朝向上室8。前两种方法存在重要局限性:显微注射耗时且劳动强度大,通量受限;而顶面朝外的类器官在缺乏基质支持的情况下仅能存活数天,且无法实现分化1。相比之下,二维类器官片支持高通量实验(细菌可直接加入上室),并可在持续数周的培养中分化为多种主要的肠道上皮细胞类型9。
与能够轻易贴附于塑料表面的永生化细胞系不同,类器官来源的细胞需要对培养板进行包被处理才能实现有效黏附。包被可使用稀释的BME10进行,也可选用invansin(一种可与类器官细胞表面整合素结合的细菌蛋白)替代11。Invasin可在实验室中便捷地制备,成本显著低于BME或Matrigel,且完全不含动物源成分。
本方案描述了在涂有侵袭素或基底膜提取物(BME)的细胞培养小室上,将肠道类器官建立并分化为二维极化单层细胞的方法。随后,利用与炎症性肠病相关的致病性黏附侵袭性大肠杆菌(Adherent-invasive Escherichia coli,AIEC)感染已分化的类器官单层。本方案概述了多种下游感染检测方法,用于评估上皮细胞的反应及细菌的跨细胞转运。由于AIEC可侵入上皮细胞并破坏肠上皮屏障——这一机制被认为与其致病性相关——因此在通过跨上皮/跨内皮电阻(TEER)测定确认屏障完整性后,通过定量迁移至细胞培养小室基底侧腔室的细菌来量化上皮屏障的破坏程度12。此外,本方案还提供了固定和成像感染单层细胞的操作步骤,以可视化细胞内和细胞外的AIEC,以及提取RNA以评估上皮细胞对感染的转录响应。整个方案可在两周内完成,仅需常规实验室设备,包括BSL-2生物安全柜、共聚焦显微镜和定量PCR仪13。
总体而言,该方案为研究细菌对分化的人肠上皮的感染提供了一种成本低廉、用途广泛且易于实施的方法 体外可轻松适配于其他类器官系统及其他微生物种类,因而为相关研究提供了实用的参考方案。 体外 感染生物学研究。
方案
人肠道类器官由乌得勒支大学医学中心(UMCU)接受结直肠癌手术患者的废弃组织材料制备而来。患者已签署知情同意书,同意其类器官的制备,该研究遵循经生物样本库本地伦理委员会批准的方案 UPORT Cancer Biobank 21-042 。 图1A 展示了本实验方案的8个部分。试剂与设备详情见材料表。
1. 细胞培养小室的包被
- 使用invasin包被
- 所有操作均须在组织培养罩内无菌条件下进行。
- 用无菌磷酸盐缓冲液(PBS)配制5 µg/mL的invasin溶液。
- 将100 µL该溶液加入置于24孔板中的每个3 µm孔径聚酯细胞培养小室的上室中。
- 确保膜表面完全被覆盖。
- 于4 °C孵育过夜。
注意:加样时避免产生气泡,因为气泡会影响包被的均匀性。
- 使用基底膜提取物包被(替代方法)
- 将基底膜提取物置于冰上解冻。
- 用预冷的DMEM配制10%的溶液。
注意:保持溶液低温,以防止提前聚合。 - 将100 µL稀释后的溶液加入每个3 µm孔径细胞培养小室的上室中。
- 确保膜表面完全覆盖。
- 室温孵育1小时。
2. 类器官细胞的接种
- 类器官的制备
- 从处于扩增培养条件(传代后3-5天)的类器官培养板中移除培养基。
- 将类器官重悬于1 mL预冷的DMEM14中。
- 将悬液转移至含有4 mL预冷DMEM的15 mL锥形离心管中。
注意:使用12孔板中约一个完整孔的类器官接种4个细胞培养小室。
- 类器官离心
- 在4 °C条件下,以500 × g离心5分钟。
- 完全移除上清液。
- 类器官解离
- 将沉淀物重悬于3 mL重组胰蛋白酶替代液中。
- 使用P1000移液器反复吹打,以机械方式破坏类器官结构。
- 在37 °C孵育15-20分钟,直至获得单细胞或小细胞团(3-4个细胞)。
注意:孵育时间不得超过20分钟。每5分钟吹打一次以促进解离。如需更强的机械力,可将P10枪头插入P1000枪头内进行吹打。
- 细胞洗涤
- 加入5 mL预冷的DMEM。
- 在4 °C条件下,以500 × g离心5分钟。
- 移除上清液。
- 制备细胞悬液
- 将细胞重悬于扩增培养基中(每个细胞培养小室100 µL;扩增培养基的成分见表1)。
注意:不要添加抗生素。需加入Rho激酶抑制剂以防止失巢凋亡。 - 使用细胞计数仪或血细胞计数板对细胞进行计数。
- 调整细胞浓度至约2 × 10⁶ 个细胞/mL。
- 将细胞重悬于扩增培养基中(每个细胞培养小室100 µL;扩增培养基的成分见表1)。
- 接种细胞培养小室
- 从培养小室中移除包被溶液。
- 向小室上层加入100 µL细胞悬液(含2 × 10⁵ 个细胞)。
- 向小室下层加入500 µL扩增培养基。
3. 细胞培养小室的培养与分化
- 在 37 °C、5% CO2 条件下孵育,直至细胞达到汇合(约 3 天)。
注意:如有需要,每 4–5 天更换两个腔室中的培养基。 - 细胞汇合后,用预热的 DMEM 清洗两个腔室。
- 向下方腔室中加入 500 µL 分化培养基(表 2)。
- 向上方腔室中加入 100 µL 添加了 HEPES 和 Glutamax 的高级 DMEM/F12 培养基(AdvDMEM++)(表 3)。
- 在 37 °C、5% CO2 条件下孵育 5 天。
- 每 2 天更换两个腔室中的培养基。
4. 测量跨上皮/跨内皮电阻(TEER)
- 将TEER电极在70%乙醇中灭菌15分钟。
- 用无菌PBS冲洗电极。
- 将短电极插入上室,长电极插入下室。
注意:电极尖端不得接触单层细胞。 - 记录电阻值。
- 使用不含细胞、仅含PBS的插入式培养小室(上室100 µL,下室500 µL)测量空白电阻。
- 计算TEER值:TEER = (R_细胞培养插入小室 − R_空白) × 表面积 (cm²)
注意:对于24孔插入小室,表面积 = 0.33 cm²。
5. 使用AIEC进行感染
- 准备细菌培养
- 将荧光标记的AIEC接种于3 mL LB培养基中15。
- 在37 °C条件下振荡培养过夜。
注意:所有细菌操作均须在BSL-2生物安全柜中进行。
- 制备接种物
- 取500 µL菌液,在1500 × g 条件下离心5分钟。
- 用1 mL AdvDMEM++重悬菌体。
- 测定光密度(OD)。
- 用AdvDMEM++稀释至约1 × 10⁸ CFU/mL。
注:OD = 1 对应于约1 × 10⁹ CFU/mL。
- 感染单层细胞
- 更换两个腔室中的培养基。
- 向下方腔室中加入500 µL分化培养基。
- 向上方腔室中加入100 µL细菌悬液,用于感染组。
- 向上方腔室中加入100 µL AdvDMEM++,用于未感染组。
- 在37 °C、5% CO₂条件下孵育。
6. 评估上皮层的穿透情况
- 感染后2.5小时,从下室收集100 µL液体。
- 用PBS稀释后,接种于LB琼脂平板上。
- 向下室加入100 µL新鲜的分化培养基。
- 在37 °C条件下孵育平板过夜。
- 在感染后5小时重复取样。
- 次日计数菌落形成单位(CFU)。
- 计算每个细胞培养小室的CFU数:每个细胞培养小室的CFU = 菌落数 × 5 × 稀释倍数
7. 图像感染
- 感染后5小时,移除培养基,并用4%多聚甲醛固定。
注意:多聚甲醛具有毒性和挥发性。操作时须在通风橱内进行,并佩戴手套。 - 固定30分钟。
- 用PBS洗涤三次。
- 切下膜插件,将细胞面朝上置于孔板中。
- 用荧光标记的鬼笔环肽染色1–2小时。
- 用PBS洗涤三次。
- 用DAPI染色细胞核10分钟。
- 用PBS洗涤三次。
- 将样本用封片剂封固于载玻片上,并加盖盖玻片。
- 用指甲油封边。
- 采集DAPI、肌动蛋白和细菌通道的共聚焦图像。
- 采集从基底到顶端表面、以1 µm为间隔的z轴层扫图像。
- 在Fiji中打开图像。
- 选择 图像 → Z轴投影 → 平均强度。
- 选择 图像 → 图像栈 → 正交视图,以观察横截面。
8. 分析上皮细胞反应
- 感染后5小时,移除培养基。
- 向顶端室加入350 µL裂解缓冲液。
- 用移液器吹打裂解细胞,并转移至预冷的无RNase离心管中。
- 按照试剂盒说明书进行RNA提取。
- 测定RNA浓度并进行样本归一化处理。
- 进行逆转录反应。
- 按照制造商说明书进行定量PCR(TNFα 和参考基因 β-actin 的引物序列见表4)。
结果
达到汇合后,细胞培养小室上的肠细胞呈现出类似镶嵌的形态(图1B),单层细胞中无可见的间隙。分化完成后,通过测量跨上皮电阻(TEER)来评估上皮紧密性(图1C)。TEER值高于500 Ω·cm²表明已形成紧密的上皮单层¹⁶。
在基底外侧区室中检测到的AIEC数量随时间增加,反映了细菌穿透上皮屏障的过程(图2A,B)。若在下层区室中未检测到AIEC,则表明细菌易位失败。
可视化感染过程的工作流程总结见图3A。共聚焦成像显示形成了极化单层结构,细胞核位于基底侧,肌动蛋白网络在顶膜侧富集(图3B)。更高倍数的成像揭示了位于细胞内的AIEC以及附着在顶膜上的细胞外细菌(图3C)。
RT-qPCR 分析显示,AIEC 感染后 TNFα 表达上调(图 4A、B),证实了上皮细胞炎症反应的激活。
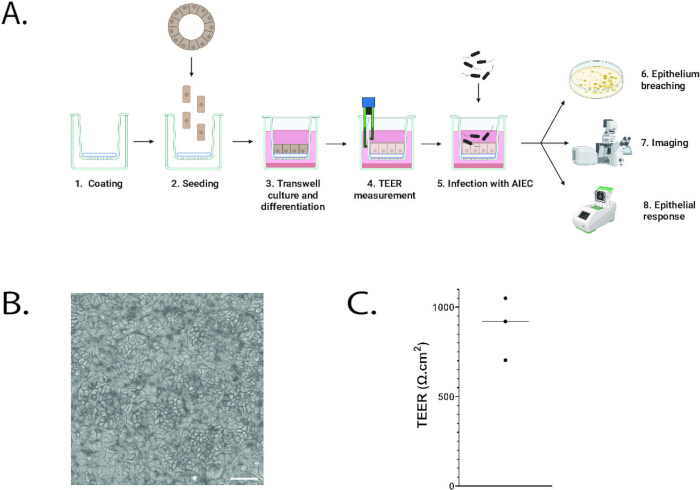
图 1:实验方案概览。(A)实验流程示意图。(B)在侵袭素包被的细胞培养小室上培养并分化的小肠类器官细胞的明场图像。比例尺:50 µm。(C)在侵袭素包被的细胞培养小室上生长并分化的小肠类器官的跨上皮/跨内皮电阻(TEER)值。每个数据点代表一次独立实验。请点击此处查看该图的放大版本。
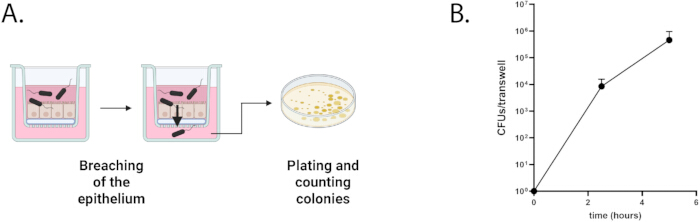
图 2:评估上皮屏障穿透(A) 实验流程示意图。(B) 随时间变化,在细胞培养小室底部腔室中AIEC菌落形成单位(CFU)的定量结果。请点击此处查看该图的放大版本。
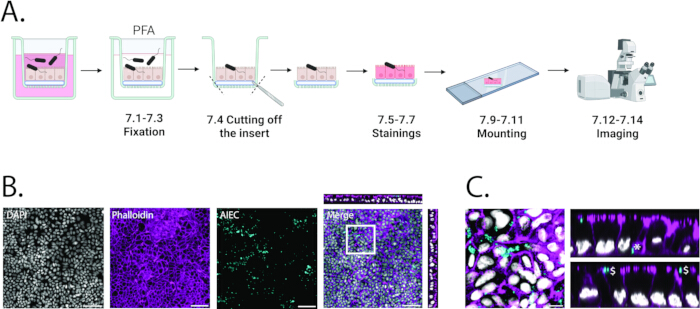
图3:感染成像。(A)实验流程示意图。(B)肠类器官感染荧光标记的AIEC菌5小时后的共聚焦成像。灰色:DAPI染色。品红色:鬼笔环肽(phalloidin)。青色:AIEC。比例尺:50 µm。合并图像的正交视图显示在顶部和右侧。(C)B图中白色方框区域的高倍放大图像。灰色:DAPI染色。品红色:鬼笔环肽。青色:AIEC。比例尺:10 µm。正交视图显示在右侧。图中突出显示了细胞内的AIEC(*)以及附着在上皮细胞顶膜上的细胞外AIEC($)。请点击此处查看该图的放大版本。
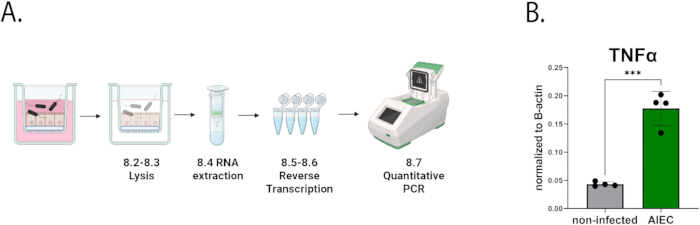
图 4:分析上皮细胞反应。(A) 实验流程示意图。(B) 肠类器官感染 AIEC(绿色)5 小时后与未感染对照组(灰色)中 TNFα 的表达水平。TNFα 表达量通过公式 2-(Cq(TNFα)-Cq(β-actin)) 归一化至 β-actin 表达量。n=4 个重复样本。采用非配对 Student t 检验进行统计分析。***P < 0.001。请点击此处查看该图的放大版本。
| 组分 | 浓度 |
| Adv DMEM | 1X 终浓度 |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
| Wnt surrogate | 0.5 nM |
| R-spo1 UPE | 2% v/v |
| Noggin UPE | 1% v/v |
| B27 不含维生素 A | 2% v/v |
| N-乙酰半胱氨酸 | 1.25 mM |
| 烟酰胺 | 10 µM |
| hEGF | 50 ng/mL |
| A83-01 (TGF-β 抑制剂) | 0.5 µM |
| SB202190 (p38 抑制剂) | 3 µM |
| 前列腺素 E2 | 1 µM |
| Rho 激酶抑制剂 | 10 µM |
表1:人肠道类器官的扩增培养基。用于人肠道类器官维持与增殖的扩增培养基的成分。
| 组分 | 浓度 |
| Adv DMEM | 1X 终浓度 |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
| R-spo1 UPE | 2% v/v |
| Noggin UPE | 1% v/v |
| B27(不含维生素A) | 2% v/v |
| NAC | 1.25 mM |
| hEGF | 50 ng/mL |
表2:人肠道类器官的分化培养基。用于促进人肠道类器官单层上皮成熟的分化培养基的成分。
| 组分 | 浓度 |
| Adv DMEM | 1X 最终浓度 |
| HEPES | 1% v/v |
| Glutamax | 1% v/v |
表3:感染实验用Adv DMEM++培养基。 在细菌感染实验中使用的添加了HEPES和Glutamax的Advanced DMEM/F12培养基(Adv DMEM++)的成分。
| 名称 | 序列 |
| TNFα F | CTCTTCTGCCTGCTGCACTTTG |
| TNFα R | ATGGGCTACAGGCTTGTCACTC |
| β-actin F | TGACGTTGACATCCGTAAAG |
| β-actin R | GAGGAGCAATGATCTTGATCT |
表4:TNFα 定量PCR引物。TNFα 的定量PCR分析所用引物序列,以β-actin作为参考基因。
讨论
本研究建立了一种利用细胞培养小室中培养的TSC来源类器官研究细菌感染人肠上皮细胞的实验方案。具有3 µm孔径的小室可实现高效的细胞贴附和细菌转位,而0.4 µm孔径则不允许AIEC通过,这与大肠杆菌(E. coli)约1 µm的尺寸相符。未观察到类器官细胞穿过3 µm孔径,可能与其上皮性及非侵袭性表型有关。
多个实验变量对可重复性至关重要,包括高效的细胞贴附、适当的接种密度以及感染前达到完全汇合。类器官来源的上皮细胞无法贴附于未包被的塑料表面,因此包被步骤必不可少。基底膜提取物(BME)可提供稳定且高效的细胞贴附效果。侵袭素(invasin)包被可获得类似的结果,且是一种具有成本效益的替代方案11,但需自行制备。胶原蛋白包被也被提出作为另一种替代方法17。
细菌的生长条件会显著影响感染效率。E. coli 菌株在DMEM中生长良好;然而,残留的抗生素可能会抑制其增殖。在最佳条件下,与对照组相比,感染后的培养物通常表现出更高的浊度,且可通过接种顶室内容物来确认细菌生长。
通过靶向在组成型启动子下表达荧光蛋白的AIEC(例如使用质粒pMB1-spect-PthrC-eGFP),该成像策略能够实现对细胞内和细胞外细菌的可视化。其他方法可选择性地检测细胞内细菌,包括差异免疫荧光染色18或在入侵特定阶段表达的报告系统19。庆大霉素保护实验则提供了另一种定量分析方法20。
该模型有意采用简化设计,专注于细菌与肠上皮之间的直接相互作用。它能够在分化的上皮单层中研究感染过程,而无需额外的体内细胞类型。分化培养基主要诱导肠上皮细胞和杯状细胞的分化21,但也可通过调整以改变上皮细胞的组成22,23。通过在基底区室中共培养免疫细胞或间质细胞,可提高系统的复杂性24。
该系统无法重现肠道黏膜的三维结构。器官芯片平台克服了部分结构上的局限性。25 但需要更高的技术复杂性和资源投入。此外,该模型最适合用于急性感染研究,因为细菌过度生长将实验时间限制在约8小时。研究慢性感染则需要更复杂的系统,例如能够实现培养基持续更换的微流控平台。 体外26.
类似的基于细胞培养小室的类器官感染系统已应用于多种组织和病原体,包括被幽门螺杆菌(Helicobacter pylori)感染的胃类器官27,28、被志贺氏菌(Shigella)感染的肠类器官29、被铜绿假单胞菌(Pseudomonas aeruginosa)感染的呼吸道类器官10,以及被粪肠球菌(Enterococcus faecalis)感染的尿路上皮类器官30。因此,该实验方案为研究不同器官系统中的上皮-细菌相互作用提供了一个通用的框架,前提是需考虑特定病原体的生长需求。
类器官技术为研究非转化上皮细胞中宿主与病原体的相互作用提供了具有生理相关性的人体模型4,5。鉴于耐药性感染的负担日益加重,且其与慢性炎症性疾病及癌症密切相关,此类体外系统已成为机制研究和转化研究的重要工具。
披露
H.C. 是多项与类器官技术相关专利的发明人。H.C. 的完整披露信息见于 https://www.uu.nl/staff/JCClevers/。
致谢
作者感谢乌得勒支类器官技术中心(Utrecht Portal for Organoid Technology,UPORT),特别是 Anneta Brousali、Jorieke Salij 和 Arnold Binda,以及乌得勒支大学医学中心的患者和外科医生提供结肠组织。作者还感谢 Nicolas Barnich 分享 AIEC 菌株 LF82。本研究由英国癌症研究基金会(CRUK)资助项目 OPTIMISTIC(C10674/A27140)支持。TG 获得了欧盟“地平线 2020”研究与创新计划下的玛丽·斯克沃多夫斯卡-居里基金协议(101107988)资助。示意图使用 BioRender(https://www.biorender.com/)制作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| A83-01(TGF-β 抑制剂) | Tocris | 2939 | |
| 黏附侵袭性大肠杆菌 LF82 | Nicolas Barnich 惠赠 | ||
| 高级 DMEM/F12 | Invitrogen | 12634-010 | |
| 不含维生素 A 的 B27 | Invitrogen | 12587010 | |
| cDNA 试剂盒 | Applied Biosystems | 4387406 | 使用手册可在此获取:https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| 细胞计数仪 | DeNovix | H2796 | |
| 细胞计数仪 | Leica | Stellaris | |
| 盖玻片 24 mm x 50 mm | Menzel-Gläzer | BB024050S1 | |
| Cultrex 基底膜提取物(BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| DAPI | Sigma-Aldrich | 10236276001 | |
| 一次性无菌手术刀 N° 10 | Swann Morton | 3033838 | |
| DMEM | Gibco | 11965092 | |
| Fiji | Fiji | Fiji 为开源软件,可在此下载:https://imagej.net/software/fiji/downloads | |
| Glutamax | Gibco | 35050-061 | |
| hEGF | Peprotech | AF-100-15 | |
| HEPES | Gibco | 15630-080 | |
| Invasin | 根据 Wijnakker 等人 PNAS 2024 论文定制 | ||
| LB 培养基 | Thermofisher | CM0996 | |
| LB 琼脂 | Thermofisher | CM1116 | |
| 马氏载玻片计数室(Malassez chamber) | KOVA | 87144E | |
| 显微镜载玻片 | Skycraft | 18901 | |
| Milli 细胞伏特欧姆计(TEER 测量) | Merck | MERS00002 | |
| 封片剂 | Vectors Laboratories | Vectashield H-1000-10 | |
| N-乙酰半胱氨酸 | Sigma-Aldrich | A9165 | |
| 烟酰胺 | Sigma-Aldrich | N0636 | |
| Noggin UPE | IPA Therapeutics | N002 | |
| 4% 甲醛溶液 | Sigma-Aldrich | 1.00496 | |
| Phalloidin 647 | Sigma-Aldrich | 65906-10NMOL | |
| 质粒 pMB1-spect-PthrC-eGFP | Addgene | 107408 | |
| 前列腺素 E2 | Tocris | 2296 | |
| qPCR 仪 | Biorad | C1000-Touch | |
| Rho 激酶抑制剂 | AbMole | M1817 | |
| RNA 提取试剂盒 | Qiagen | 74534 | 使用手册可在此获取:https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 f-291d-48ae-8206-86b0696b28c0& lang=en |
| R-spo3 UPE | IPA Therapeutics | R001 | |
| SB202190(p38 抑制剂) | Sigma-Aldrich | S7076 | |
| 壮观霉素 | Sigma-Aldrich | S9007 | |
| 类器官培养用悬浮培养板 | Greiner | 665102 | |
| SYBR Green | Biorad | 170-8887 | 使用手册可在此获取:https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| PCR 仪 | Biorad | T100 | |
| 细胞培养插件 | Transwells 24 孔,3 µm 孔径,Greiner | 662631 | |
| Triton X-100 | Sigma-Aldrich | T8787 | |
| TrypLE | Gibco, Thermo Fisher Scientific | 12605-010 | |
| Wnt 替代物 | U-Protein Express | 定制订单 | https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
参考文献
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
重印与许可
