SNRNP70 作为骨关节炎(OA)的诊断标志物具有潜在价值,其在OA组织中的表达水平 consistently 低于对照组。该基因还可能发挥抗炎作用,提示其具有治疗潜力。未来开展的机制性研究可能有助于推动OA的管理与治疗。
研究文章
SNRNP70 与骨关节炎中局灶性黏附相关特征及软骨细胞炎症相关
* These authors contributed equally
本文内容
摘要
摘要
骨关节炎(OA)是一种退行性关节疾病,其特征是软骨进行性降解和滑膜炎症,但其发病机制中的关键分子驱动因素尚未完全阐明。本文旨在考察是否 SNRNP70—作为U1 snRNP复合体的核心组分,在pre-mRNA剪接中起关键作用—参与骨关节炎(OA)的进展。对十个公开转录组数据集的分析显示 SNRNP70 在骨关节炎软骨组织中持续下调,与正常对照组相比差异显著。一项荟萃分析进一步表明其对骨关节炎具有良好的诊断准确性,合并AUC为0.92。在白细胞介素-1β(IL-1β)刺激的大鼠原代软骨细胞中, SNRNP70 在炎症条件下,表达受到抑制。强制表达 SNRNP70 不仅减少了 促炎介质(IL-6 和 MMP-13)的产生减少,同时恢复了关键的细胞外基质(ECM)成分(ACAN 和 COL2A1),并促进软骨细胞迁移和伤口愈合。Pearson 相关性分析结合 KEGG 富集分析表明,黏着斑信号通路是与之相关的通路 SNRNP70 调控。挽救实验支持了这一观点 SNRNP70 通过激活该通路,至少部分增强了软骨细胞的修复能力。综上所述,这些发现表明 SNRNP70 可能作为炎症性软骨细胞功能和软骨稳态的一种先前未被认识的调控因子。这些发现也提示剪接体活性与黏着斑介导的基质合成之间可能存在机制性关联,值得进一步评估 SNRNP70 作为骨关节炎的候选诊断标志物或治疗靶点。
引言
骨关节炎(OA)是一种常见的关节疾病,主要影响65岁及以上的个体,全球约有7%的人口受其影响1,2。令人震惊的是,从1990年到2019年,全球OA患病率惊人地增长了113.25%,病例数从2.4751亿例上升至5.2781亿例3。OA的主要特征是关节组织发生隐匿性退行性改变,突出表现为软骨降解和滑膜炎症4,5,6。值得注意的是,机械性超负荷和时间的推移已被确认为其发病机制中两个最显著的危险因素7,8。此外,越来越多的研究强调了半月板退变在OA复杂病理过程中所起的关键作用9。先前的研究已有力地证明,68%至90%的OA患者存在半月板病变10,11。
在分子水平上,越来越多的证据表明,骨关节炎(OA)不仅仅是生物力学应力和衰老的结果,更是一种由基因调控和转录后调控复杂改变所驱动的疾病12,13,14。在这些机制中,剪接体在多种疾病背景下受到日益关注。尽管剪接体在炎症发病机制中已被广泛研究,但其在OA中的作用却显著缺乏系统研究15,16,17。本质上,剪接体可被视为一种由蛋白质引导的金属核酶18,19。在这些机制中,RNA剪接已成为决定软骨细胞表型和细胞外基质(ECM)稳态的关键因素。精确的剪接可确保维持软骨完整性所必需的结构蛋白和信号蛋白的正确表达,而异常剪接则会破坏ECM的更新,促进分解代谢通路,并加速软骨退变20,21,22。
近期研究强调了剪接体蛋白在关节组织稳态中的关键调控作用,但这些蛋白在骨关节炎(OA)发病机制中的作用仍 largely 未被探索23。特别是SNRNP70,作为U1小核核糖核蛋白复合物的核心组分,在pre-mRNA加工过程中负责识别5′剪接位点,从而影响特定外显子的包含或排除24,25。SNRNP70的失调已被证实在多种病理条件下发挥作用,但其在软骨退变中的作用此前尚未被阐明。剪接体介导调控的一个潜在靶点是黏着斑激酶(focal adhesion kinase, FAK),这是一种中心信号分子,可整合机械和生化信号,调控软骨细胞的黏附、细胞骨架动态、存活及机械转导26。FAK活性增强与黏着斑信号通路的激活相关,进而促进细胞外基质(ECM)合成,并上调关键的软骨特异性蛋白,包括聚集蛋白聚糖(aggrecan, ACAN)和II型胶原α1链(collagen type II alpha 1, COL2A1)27,28。这些蛋白对维持软骨结构与功能至关重要,其表达下调是OA进展的标志性特征。
尽管骨关节炎(OA)的转录和表观遗传学研究已取得进展,剪接体介导的FAK调控在控制黏着斑信号传导和细胞外基质(ECM)代谢中的作用仍不明确。基于这些观察结果,推测SNRNP70可能通过调控FAK的选择性剪接及下游的黏着斑信号通路,影响软骨细胞行为和ECM稳态。为验证这一假设,首先需明确SNRNP70在OA中表达是否发生改变,评估其作为诊断标志物的潜力,并探索其与软骨细胞中炎症反应及黏着斑相关通路的潜在关联。
方案
动物研究方案已获广西医科大学及广西医科大学第一附属医院伦理委员会批准(方案编号 202109001,NO.2022-KY-E-252)。
警告:所有操作必须遵循机构和国家的动物护理指南。操作动物或样本时,必须由经过培训的人员穿戴个人防护装备(手套、口罩、实验服)。手术需要充分的麻醉和术后监测。如出现不良事件(出血、感染、行为改变),须立即报告。动物尸体和受污染材料须妥善处置。应定期进行设施检查以确保合规。本研究中使用的动物、试剂和设备的商业信息列于材料表中。
患者与基因表达数据集
为研究 SNRNP70 在骨关节炎(OA)中的表达模式,系统性地从基因表达综合数据库(Gene Expression Omnibus, GEO)(https://www.ncbi.nlm.nih.gov/geo/)21 获取了公开可用的RNA测序(RNA-seq)和微阵列数据集。检索策略包含以下关键词:“SNRNP70 OR RPU1 OR Snp1 OR U1AP OR U170K OR U1RNP OR RNPU1Z OR SNRP70 OR U1-70K” 与 “OA” 的组合。纳入标准定义如下:(i)数据集来源于人类样本;(ii)研究明确聚焦于OA,排除类风湿性关节炎及其他炎症性关节疾病;(iii)OA组与正常对照组(NC)均至少包含三个独立的生物学重复,以支持标准化均数差(SMD)的计算。数据处理流程:在确定符合条件的数据集后,下载原始表达数据及相应的临床元数据。对于微阵列数据集,采用稳健多阵列平均(RMA)算法对探针水平数据进行标准化,并利用平台注释文件将探针注释至官方基因符号。对于RNA-seq数据集,将原始计数转换为每百万转录本(TPM)值,随后进行log2转换,以确保不同数据集间的可比性。当多个探针对应同一基因时,保留样本间表达方差最大的探针。质量控制与数据整合:为减少不同研究间的批次效应,采用 R 软件包 "sva" 中的 ComBat 函数进行校正。在校正前后均进行主成分分析(PCA),以评估批次效应去除的有效性。对于质量差、注释不完整或无法区分OA组与NC组的数据集,予以排除,不进入后续分析。
在骨关节炎与正常软骨组织中鉴定差异表达的SNRNP70
为评估SNRNP70在骨关节炎(OA)与正常软骨(NC)组织之间的差异表达,采用多步骤分析方法。首先,从现有数据集中提取SNRNP70的表达数据。使用Student t检验对OA组与NC组进行统计学比较,以确定其平均表达水平是否存在显著差异。为进一步评估SNRNP70的判别能力,利用GraphPad Prism 8.0和Sangerbox平台(http://vip.sangerbox.com/)绘制受试者工作特征(ROC)曲线。计算曲线下面积(AUC)以量化SNRNP70表达水平的诊断效能。
接下来,使用 Stata 14.0 进行荟萃分析,以整合多个数据集的研究结果。采用 Cochran’s Q 检验和 I2 统计量评估统计学异质性。当异质性较低时(p > 0.01 且 I2 < 50%),采用固定效应模型;否则采用随机效应模型。计算标准化均数差(SMD)及其对应的 95% 置信区间(CI),以量化 OA 组织与 NC 组织之间 SNRNP70 表达的差异。对于诊断准确性,使用 Stata 中的 Midas 模块进行诊断性荟萃分析。该分析估算了 SNRNP70 的汇总敏感性、特异性、阳性似然比(PLR)、阴性似然比(NLR)和诊断优势比(DOR)。此外,构建汇总受试者工作特征(sROC)曲线,以全面评估诊断效能。最后,通过依次排除单个数据集进行敏感性分析,以评估合并结果的稳健性和稳定性。采用 Deeks’ 漏斗图不对称性检验评估潜在的发表偏倚。通过这一整合分析框架,系统评估了 SNRNP70 在 OA 组织与 NC 组织中的表达模式及其诊断价值。
细胞分离与培养
原代软骨细胞从出生后第2天的Sprague–Dawley大鼠关节软骨中分离获得。每次分离使用六只新生大鼠。由于动物处于出生后早期阶段,未确定性别。每次独立的细胞制备中,将六只大鼠的软骨组织收集并混合后进行培养。每次独立分离的软骨细胞制备物均来自一组独立的动物,视为一个生物学重复。技术重复(包括来自同一批细胞制备物的重复孔或重复qRT-PCR反应)不被视为独立的生物学重复。
简而言之,在无菌条件下处死新生大鼠,解剖膝关节以暴露关节软骨。使用显微外科剪将软骨组织小心地从软骨下骨分离,切成约 1 mm³ 的碎片,随后进行酶的连续消化。首先将组织碎片在 37 °C 下用 0.25% 胰蛋白酶–EDTA 孵育 30 分钟,以去除残留的结缔组织。用磷酸盐缓冲液洗涤后,将剩余的碎片在无血清 DMEM 中加入 0.2% II 型胶原酶,在 37 °C 下轻柔振荡消化 4–6 小时。所得细胞悬液经 70 μm 细胞筛过滤,以 300 × g 离心 5 分钟,然后重悬于完全 DMEM 培养基中,该培养基添加了 10% 胎牛血清、100 U/mL 青霉素和 100 μg/mL 链霉素。细胞接种至培养瓶中,在 37 °C、含 5% CO₂ 的湿润培养箱中培养。每 2–3 天更换一次培养基。为最大限度减少去分化,后续实验仅使用第 1 代或第 2 代软骨细胞。
软骨细胞的身份和纯度在实验使用前已得到确认。形态学上,原代细胞在相差显微镜下呈现典型的多边形或铺路石样的软骨细胞形态。在分子水平上,通过Western blot检测软骨相关标志物COL2A1和ACAN的表达,验证了软骨细胞的身份。对于 体外 炎症模型中,原代软骨细胞用10 ng/mL重组大鼠白细胞介素-1β(IL-1β)刺激48小时。在相同条件下培养的未处理细胞作为正常对照组。 SNRNP70 过表达实验中,来自独立生物学样本的软骨细胞被分别转染,每个生物学重复样本在转染、IL-1β刺激、RNA/蛋白质提取及统计分析过程中均独立处理。
实时定量 PCR(qRT-PCR)
使用 RNAfast200 试剂盒从亚融合软骨细胞培养物(约 80% 融合度)中提取总 RNA。采用 NanoDrop 2000 测定 RNA 纯度,仅接受 A260/280 比值为 1.8–2.0 的样品,并通过 1% 琼脂糖凝胶电泳确认其完整性。以 1 µg 总 RNA 为模板,在含有随机引物和 dNTPs 的 20 µL 反应体系中,使用 qPCR RT 试剂盒进行第一链 cDNA 的逆转录。逆转录程序为:42 °C 反应 30 分钟,随后 95 °C 变性 5 分钟。qPCR 使用基于 SYBR Green 的预混液在实时 PCR 系统上进行。每个 20 µL 反应体系包含 10 µL SYBR Green 主混合液、上下游引物(10 µM)各 0.5 µL、cDNA 模板 2 µL 以及无核酸酶水 7 µL。扩增循环条件为:95 °C 预变性 30 秒,随后进行 40 个循环(95 °C 变性 5 秒,60 °C 退火延伸 30 秒)。扩增结束后进行熔解曲线分析,以确认扩增产物的单一性。GAPDH 作为内参基因,相对表达量采用 2−ΔΔCt 法计算。每个样本设三个技术重复,并进行三次独立的生物学重复实验。引物序列见 表 1。
蛋白质印迹法
在IL-1β处理及SNRNP70过表达后,检测软骨细胞中ACAN、COL2A1和MMP13的蛋白表达水平。细胞用预冷的磷酸盐缓冲液(PBS)洗涤两次,加入含蛋白酶和磷酸酶抑制剂的RIPA裂解液裂解。裂解液于冰上孵育30分钟,期间定期涡旋振荡,随后在12,000 × g 4 °C下孵育15分钟。采用BCA试剂盒测定澄清上清液中的蛋白浓度。取等量蛋白(每泳道30 µg)进行10% SDS-PAGE分离,随后通过湿转法转移至PVDF膜。膜在室温下用含5%脱脂奶粉的TBST封闭1小时,然后在4 °C与一抗ACAN(1:1000)、COL2A1(1:1000)或MMP13(1:1000)孵育过夜。膜用TBST洗涤三次(每次10分钟)后,在室温下与HRP标记的二抗(1:5000)孵育1小时。使用ECL试剂显色,并在ChemiDoc XRS+系统上采集信号。采用ImageJ进行条带密度分析,所有目标蛋白信号均以GAPDH作为上样内参进行归一化。数据以相对蛋白水平表示 与 对照组
转染
当软骨细胞培养至约80%融合度时,使用SNRNP70过表达质粒(oe-SNRNP70)进行转染。转染时,将细胞以每孔2 × 10⁵个细胞的密度接种于6孔板中,在含10%胎牛血清和1%青霉素/链霉素的DMEM标准培养基中,于37 °C、5% CO₂条件下孵育过夜使其贴壁。按照制造商说明书,使用LipoFiter 3.0进行转染。简言之,每孔取2–3 µg质粒DNA溶于100 µL无血清培养基中,与适量脂质试剂混合。DNA-脂质复合物在室温孵育15–20分钟以形成复合物,随后轻轻加入含有软骨细胞的新鲜无血清培养基孔中。6小时后,更换为完全培养基以降低细胞毒性。
转染后48–72小时评估转染效率和SNRNP70表达水平。采用定量实时PCR(qRT-PCR)检测SNRNP70 mRNA水平,以内参基因GAPDH作为对照。蛋白表达水平使用Simple Western全自动蛋白分析系统,按照制造商提供的操作说明进行检测。简言之,制备细胞裂解液,测定蛋白浓度后,将样品加入毛细管芯片中,通过自动化程序进行蛋白分离,并利用抗SNRNP70抗体进行免疫检测。通过比较转染SNRNP70过表达质粒(oe-SNRNP70)的细胞与转染空载体对照质粒的细胞中SNRNP70的表达水平,计算转染效率。
免疫荧光
采用免疫荧光法检测IL-1β刺激后oe-SNRNP70软骨细胞中IL-6和MMP-13蛋白水平。简言之,将细胞接种于24孔板中的无菌玻璃盖玻片上,在标准条件下培养至融合度达70–80%。随后在室温下用4%多聚甲醛固定15分钟,并用PBS洗涤三次。使用含0.1% Triton X-100的PBS溶液在室温下处理10分钟以进行透化。用含5%牛血清白蛋白(BSA)的PBS溶液在室温下孵育1小时,以封闭非特异性结合位点。
封闭后,细胞在4 °C下与针对IL-6和MMP-13的一抗(用1% BSA/PBS按1:200稀释)孵育过夜。用PBS洗涤三次以去除未结合的一抗后,细胞在避光条件下于室温与种属特异的荧光染料标记的二抗(按1:500稀释)孵育1小时。细胞核用4′,6-二脒基-2-苯基吲哚(DAPI)复染5分钟。将盖玻片用抗荧光淬灭封片剂封固于载玻片上,使用荧光显微镜在20×放大倍数下采集荧光图像。进行定量分析时,每份样本随机选取10个细胞,利用ImageJ软件测量目标蛋白的荧光强度。计算每组的平均荧光强度,并用于统计学比较。
细胞划痕伤口闭合实验
通过划痕伤口闭合实验评估软骨细胞在不同处理条件下闭合人工伤口间隙的能力。将原代软骨细胞以每孔 1 × 10⁵ 个细胞的密度接种于 6 孔板中,培养至细胞融合度达到约 90%。使用无菌的 200 µL 移液枪头在细胞单层上制造一条线性划痕。用 PBS 洗涤两次以去除脱落的细胞,随后加入含有指定处理因素的新鲜完全培养基。细胞被分为以下几组:正常对照组、IL-1β 处理组以及 IL-1β 加 SNRNP70 过表达组。使用倒置显微镜在划痕后 6 h 和 12 h 时间点拍摄相同伤口区域的图像(补充图 1)。伤口闭合率通过以下公式计算,即相对于 0 h 初始伤口面积的伤口面积减少百分比:
伤口闭合率(%)= [(0 h时的伤口面积 - 指定时间点的伤口面积)/ 0 h时的伤口面积] × 100。(1)
统计分析
除非另有说明,所有定量数据均以三次独立生物学重复实验(n = 3)的均值 ± 标准差(SD)表示。统计分析使用 GraphPad Prism 8.0 软件进行。两组之间的比较采用非配对 Student t 检验。统计学显著性表示如下:*p < 0.05 和 **p < 0.01。
结果
SNRNP70 在关节腔组织中的表达
为了全面探究 SNRNP70 在骨关节炎(OA)中的作用,系统筛选了10个符合严格纳入和排除标准的公开RNA测序及微阵列数据集(表2)。在这些数据集中,对 SNRNP70 的表达水平进行了仔细提取与分析。值得注意的是,在10个队列中的6个中,OA组织中的 SNRNP70 表达水平相较于正常对照显著下调(p < 0.05),提示存在一致的转录抑制模式(图1)。
值得注意的是,三个数据集(GSE114007、GSE169077 和 GSE19060)未显示出骨关节炎(OA)样本与对照样本之间具有统计学意义的差异。为不忽视这些差异,本研究采用了批次校正和数据集整合策略,以增强分析的稳健性和可靠性。具体而言,将来自相同测序平台的数据集进行合并,以提高统计效能。例如,将 GSE114007 与 GSE89408 合并生成 GSE114007-89408,而 GSE169077、GSE12021 和 GSE55457 则合并为 GSE169077-12021-55457(图 1)。这种整合方法最大限度地减少了不同研究间的变异性,并增强了研究结果的可重复性。综上所述,对人类数据集的分析一致表明,SNRNP70 在 OA 关节组织中呈下调趋势,提示其可能作为诊断性生物标志物的潜力。然而,这种下调是否直接导致人类剪接失调或软骨退变尚不明确,有待在人类组织模型中进一步验证。
SNRNP70 的临床诊断能力
为严格评估 SNRNP70 在骨关节炎(OA)中的诊断价值,本研究整合了来自 165 例 OA 样本和 125 例正常对照样本的数据,进行了全面的荟萃分析。据目前所知,这是对 SNRNP70 作为 OA 潜在诊断生物标志物的首次系统性评价。异质性分析显示各数据集间存在显著异质性(I2 = 72.9%;p = 0.001),因此采用随机效应模型。合并分析结果显示,与正常对照相比,OA 组织中 SNRNP70 表达水平显著且一致地下调,标准化均数差(SMD)为 -1.07(95% CI:-1.34 至 -0.80)(图 2A–B)。除表达谱分析外,进一步评估了 SNRNP70 的诊断效能。合并诊断试验结果表明,其综合敏感度为 0.82(95% CI:0.57–0.94),特异度为 0.88(95% CI:0.73–0.95),凸显其良好的鉴别能力(图 3A)。一致地,汇总受试者工作特征(SROC)曲线的曲线下面积(AUC)为 0.92(95% CI:0.90–0.94),进一步表明 SNRNP70 在区分 OA 患者与健康个体方面具有高准确性(图 3B)。
为确保这些发现的稳健性,进行了敏感性分析,结果证实依次排除各个独立数据集并未对总体效应量产生实质性影响(图4A)。重要的是,Deek's 漏斗图不对称性检验(p = 0.41)和 Egger's 检验均表明不存在显著的发表偏倚,进一步增强了结果的可信度(图4B)。综上所述,这些数据表明 SNRNP70 在骨关节炎(OA)中表达下调,并提示其可能作为诊断生物标志物。然而,不同数据集之间的异质性以及缺乏独立验证队列仍需引起谨慎。因此,这些发现被视为初步结果,尚需进一步研究以明确 SNRNP70 在骨关节炎诊断与管理中的临床应用价值。
SNRNP70 骨关节炎中炎症相关基因表达的调控
为了阐明调控作用 SNRNP70 在OA进展过程中的炎症信号传导 体外 OA模型最初通过将软骨细胞暴露于IL-1β建立,IL-1β是一种特征明确的促炎性细胞因子。在IL-1β刺激48小时后进行的qRT-PCR分析显示,软骨细胞中多种基因表达显著下调 SNRNP70 mRNA 水平与 NC 组相比(图5)。这种抑制作用 SNRNP70 在炎症条件下的表达情况与公开可用的骨关节炎数据集中的转录组学数据一致,从而提供了有力证据表明 SNRNP70 在骨关节炎相关炎症中持续受到抑制。为进一步研究恢复其表达是否能够 SNRNP70 表达可能调节软骨细胞的炎症表型,细胞使用以下方法进行转染: SNRNP70 过表达质粒(oe-SN)。值得注意的是,强制表达SN SNRNP70 显著缓解了IL-1β诱导的炎症反应,这在转录和翻译水平的变化中均有体现。具体而言,qRT-PCR结果显示,与IL-1β处理的对照组相比,oe-SN组中IL-6和MMP-13的mRNA水平显著降低图5).
除了这些分子水平的发现外,免疫荧光染色还为SNRNP70的抗炎潜力提供了直接的细胞学证据。在IL-1β处理的细胞中,IL-6表现出明显的胞质积聚,符合炎症激活状态的特征。值得注意的是,过表达SNRNP70显著减弱了IL-6的胞质染色强度(图6A),从而凸显其在细胞水平逆转炎症反应的能力。MMP-13也呈现出类似模式:IL-1β处理可增强其表达,而过表达SNRNP70则明显抑制MMP-13的定位及其信号强度(图6B)。
与以往主要关注软骨结构性损伤的研究不同,该 体外 来自大鼠软骨细胞的数据表明 SNRNP70 作为炎症相关基因表达的调控因子。具体而言,强制表达 SNRNP70 减弱了该大鼠模型中由IL-1β驱动的促炎介质(包括IL-6和MMP-13)的表达。重要的是,由于这些实验仅在大鼠炎症模型中进行,因此并不能直接重现人类数据集的研究结果。尽管如此,这些结果提供了一个概念框架,表明 SNRNP70 可能不仅作为剪接因子发挥作用,还可能作为炎症的潜在调节因子——这一可能性值得在人体组织中进一步探索。
鉴定骨关节炎中与 SNRNP70 相关的通路
为了探索骨关节炎中与 SNRNP70 表达相关的生物学通路,分别在 GSE98918、GSE117999、GSE129147、GSE51588、GSE169077_12021_55457、GSE114007-89408 和 GSE82107-190607 公共转录组数据集中进行了皮尔逊相关性分析。在每个数据集中,绝对相关系数(|r|)> 0.8 且 p < 0.05 的基因被视为与 SNRNP70 表达显著相关。整合所有数据集中相关基因的并集,共获得 929 个与 SNRNP70 相关的基因。
随后使用 clusterProfiler 软件包进行 KEGG 通路富集分析,并通过 Benjamini–Hochberg 方法对多重检验进行校正。该分析揭示了所鉴定基因在多个通路中的显著富集,包括黏着斑通路(图7)。该信号级联已知可调控软骨细胞黏附、机械转导以及细胞外基质重塑,这些过程均为骨关节炎(OA)进展中的关键环节。综上所述,这些发现提示 SNRNP70 表达与 OA 数据集中黏着斑相关基因表达特征之间存在关联。
SNRNP70 通过黏着斑通路介导炎症性软骨细胞修复
为了评估SNRNP70在炎症性软骨细胞伤口愈合能力中的作用,使用原代软骨细胞进行了划痕伤口闭合实验。细胞被分为三组:正常对照组、IL-1β处理组以及IL-1β联合SNRNP70过表达组。与正常对照组相比,IL-1β刺激降低了划痕间隙闭合程度,表明在炎症条件下伤口愈合能力受损。相反,与单独IL-1β处理相比,SNRNP70过表达促进了IL-1β处理的软骨细胞中划痕间隙的闭合(图8A)。综上所述,这些结果表明SNRNP70过表达可增强IL-1β处理的软骨细胞的伤口闭合反应。
在分子水平上,Western blot 分析表明,IL-1β 处理抑制了软骨基质蛋白 ACAN 和 COL2A1 的表达,同时促进降解酶 MMP13 的上调。重要的是, SNRNP70 过表达不仅恢复了 ACAN 和 COL2A1 水平,还显著下调了 MMP13,从而维持了细胞外基质的完整性(图8B)。从机制上讲, 体外,其有益作用 SNRNP70 与黏着斑信号通路的激活密切相关。
综合来看,人类数据集分析表明 SNRNP70 在骨关节炎中呈下调,且其表达与参与局灶性黏附通路的基因相关。在经IL-1β刺激的大鼠软骨细胞中,强制表达 SNRNP70 促进炎症细胞修复和细胞外基质(ECM)合成,并与黏着斑信号通路相关。尽管这些 体外 来自大鼠模型的观察结果虽具提示性,但并不能直接证实从人类数据集中得出的发现。然而,这些一致的证据支持一种模型,其中 SNRNP70 通过局部黏附信号通路参与人类骨关节炎的发病机制——这一假说目前仍有待在人体组织中得到确切验证 体内 具有人类相关性的模型。
数据可用性:
本研究中使用和分析的数据集可从 GEO 数据库(https://www.ncbi.nlm.nih.gov/geo/)获取。本研究期间生成或分析的所有数据均已完整呈现在文稿中并进行了讨论。本研究的原始数据已作为补充文件上传。
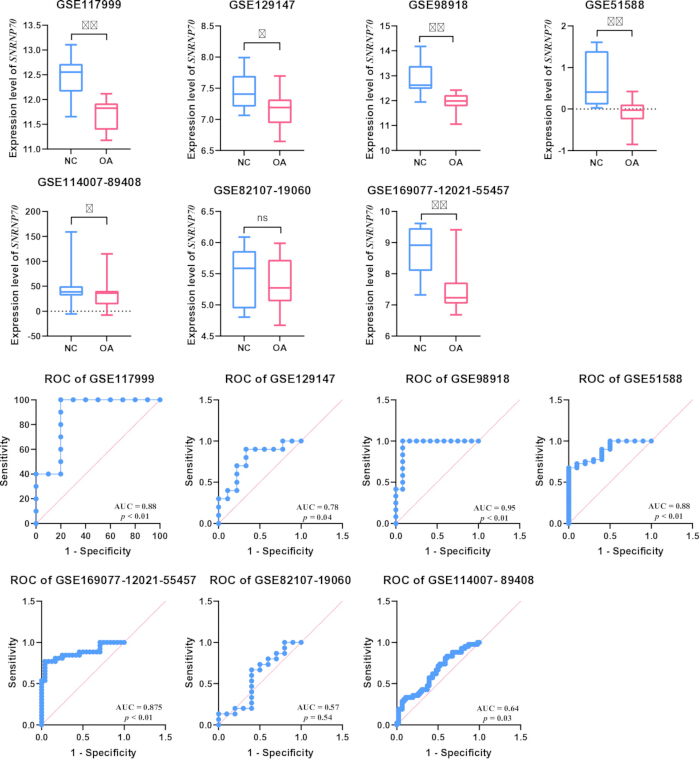
图1:七项研究的t检验与ROC曲线。 结果表明,在GSE117999、GSE129147、GSE98918、GSE51558、GSE114007-89408和GSE169077-12021-55457数据集中,SNRNP70在OA组织中的表达低于NC组织(p < 0.05),且ROC曲线下面积(AUC)显示其具有较高的可行性。p < 0.05(*),p < 0.01(**)。请点击此处查看该图的放大版本。
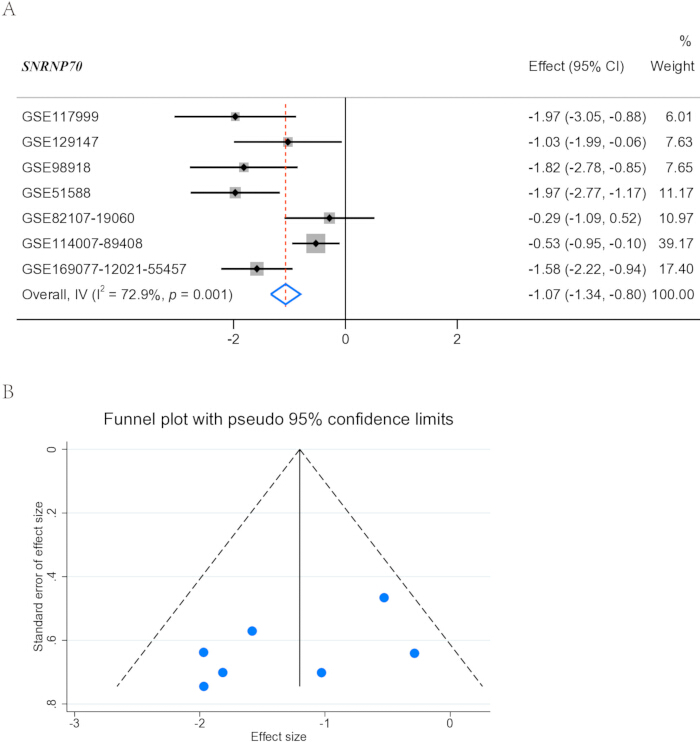
图 2:七项数据集的荟萃分析。(A)结果显示 I² = 72.9%,p = 0.001,总体 SMD 为 -1.07。(B)通过漏斗图评估荟萃分析中的发表偏倚,结果显示基本对称。请点击此处查看该图的高清版本。
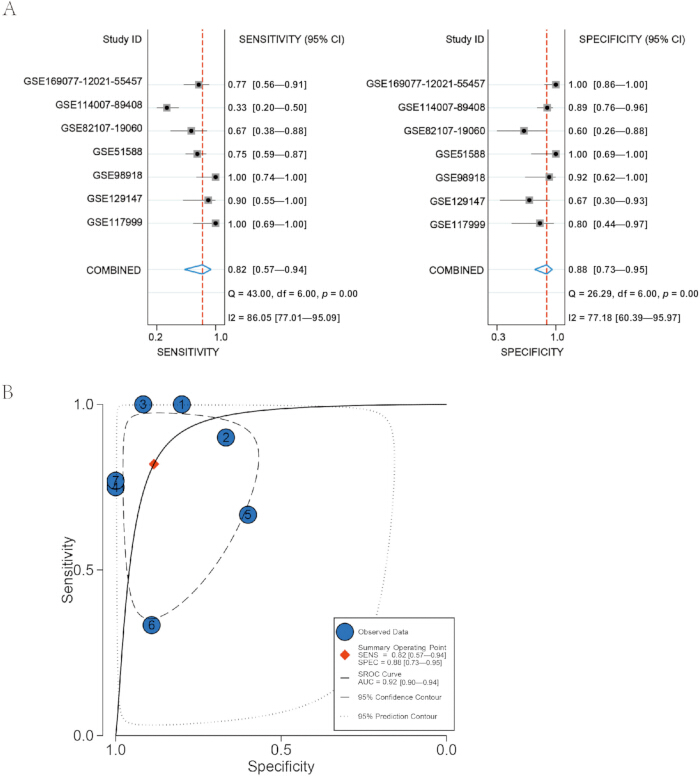
图3:SNRNP70 的诊断性能。(A)Q检验显示,敏感性和特异性的 p 值均< 0.05,I²值分别为86.05%和77.18%,表明存在显著的异质性。该研究报道的敏感性为0.82,特异性为0.88,显示出其良好的诊断性能。(B)sROC曲线的AUC为0.92,表明研究结果具有较高的可信度。请点击此处查看该图的放大版本。
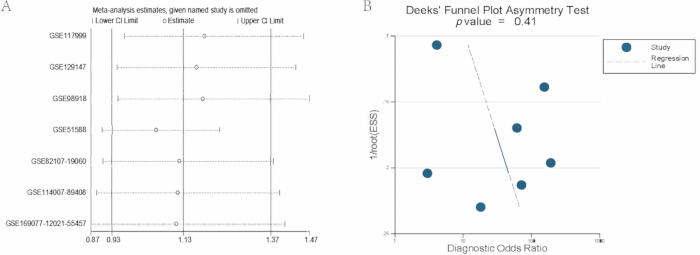
图4:影响分析与Deek's漏斗图。(A)影响分析表明,排除任何一项单独研究均未对整体结果产生明显影响。(B)在七项研究中,所有结果均显示无显著偏倚(p = 0.41)。请点击此处查看该图的放大版本。
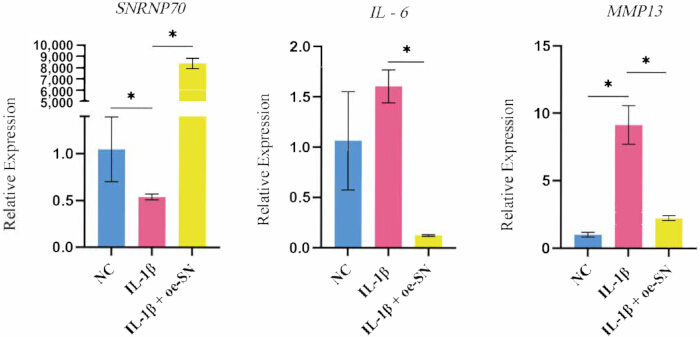
图5:qRT-PCR结果表明,经IL-1β处理后软骨细胞中SNRNP70的表达显著降低。 在oe-SN组中,与IL-1组相比,炎症标志物IL-6和MMP13的表达水平明显下降,提示SNRNP70的过表达可逆转IL-1β处理的软骨细胞中的炎症标志物。数据以n = 3次独立生物学重复实验的均值±标准差表示。p值< 0.05(*),p值< 0.01(**)。请点击此处查看该图的放大版本。
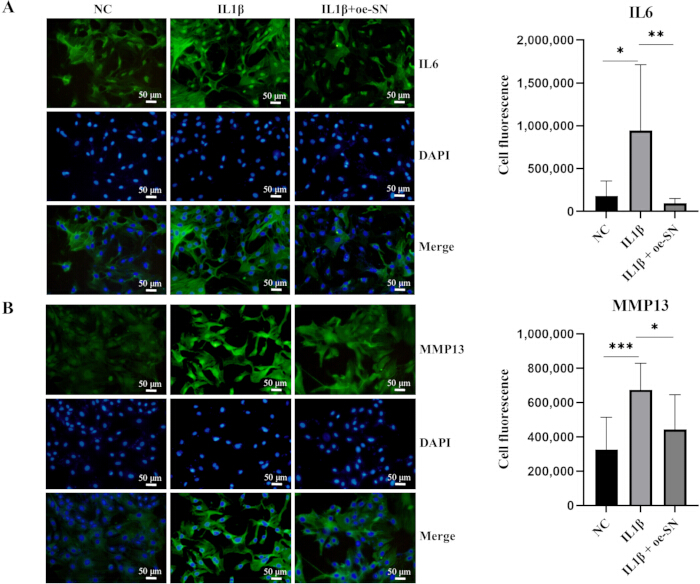
图6:经IL-1β处理的软骨细胞在IL-1β处理后的免疫荧光分析,显示荧光强度。(A)IL-6的荧光强度和(B)MMP13的荧光强度显著增加。然而,SNRNP70的过表达导致炎症标志物IL-6和MMP13的荧光强度明显降低。这些结果表明,SNRNP70的过表达可能减轻IL-1β处理的软骨细胞中的炎症反应。所有显微镜图像均以10倍放大倍数拍摄。数据以n = 3次独立生物学重复实验的均值±标准差表示。p值< 0.05(*),p值< 0.01(**)。比例尺 = 50 µm。请点击此处查看该图的放大版本。
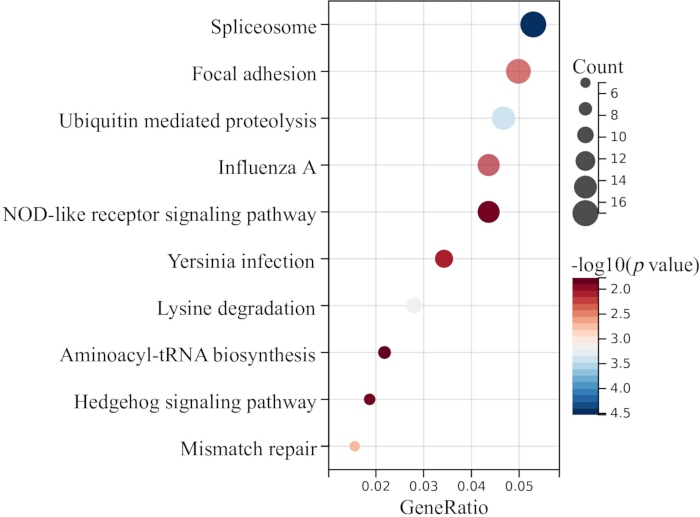
图 7:骨关节炎数据集中与 SNRNP70 相关基因的基于相关性的 KEGG 通路富集分析。由 clusterProfiler(Benjamini–Hochberg 校正)鉴定出的前 10 个富集通路。气泡大小表示基因数量,颜色表示显著性(-log10(p 值))。焦点黏附通路(已高亮)在骨关节炎中调控软骨细胞黏附、机械信号转导及细胞外基质重塑。请点击此处查看该图的放大版本。
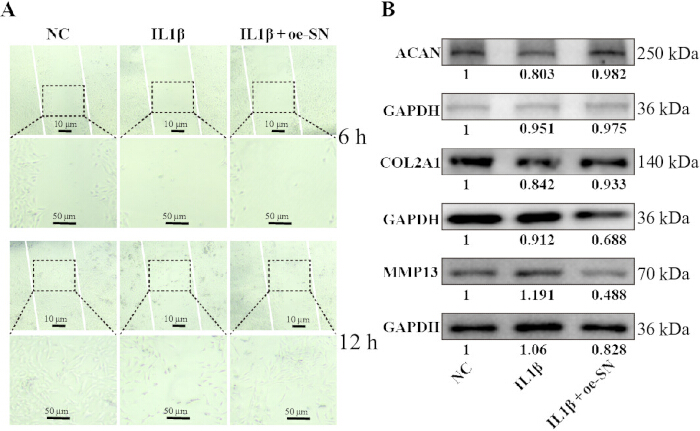
图8:SNRNP70过表达恢复IL-1β处理的软骨细胞中细胞外基质的修复。(A)对照组、IL-1β处理组以及IL-1β联合SNRNP70过表达软骨细胞的划痕伤口闭合图像。(B)关键软骨基质及分解代谢相关蛋白的代表性蛋白质印迹。膜分别用ACAN、COL2A1和MMP13探针进行检测。GAPDH作为上样对照。放大倍数如下:NC、IL-1β和IL-1β+oe-SN组:4倍放大时,比例尺=10 µm;10倍放大时,比例尺=50 µm。请点击此处查看该图的放大版本。
补充图1:伤口闭合的定量分析及Western blot条带密度分析。(A)NC、IL-1β及IL-1β + oe-SNRNP70组原代软骨细胞划痕伤口闭合的定量分析。(B)ACAN、COL2A1和MMP13 Western blot条带的密度定量分析。使用ImageJ对条带强度进行定量,并以GAPDH为内参进行归一化。数据表示为n = 3次独立生物学重复实验的均值±标准差。*p < 0.05,**p < 0.01。请点击此处下载该文件。
| 目的基因 | 上游引物序列 | 上游引物序列 |
| GAPDH | 5'-TCTCTGCTCCTCCCTGTTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGCTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCGCC-3' | 5'-GGCATGACTCTCACAATGCG-3' |
表1:目的基因的引物序列。 用于qRT-PCR的GAPDH、SNRNP70、IL6和MMP13基因的正向和反向引物序列如表所示,所有序列均为5′ > 3′方向。GAPDH作为内参对照。
| 研究编号 | 平台 | 正常对照组 (n) | 骨关节炎组 (n) | 组织类型 |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | 软骨 |
| GSE117999 | GPL20844 | 10 | 10 | 软骨 |
| GSE129147 | GPL15207 | 9 | 10 | 软骨 |
| GSE169077 | GPL96 | 5 | 6 | 软骨 |
| GSE12021 | GPL96 | 13 | 20 | 滑膜 |
| GSE55457 | GPL96 | 10 | 10 | 滑膜 |
| GSE89408 | GPL11154 | 28 | 22 | 滑膜 |
| GSE82107 | GPL570 | 7 | 10 | 滑膜 |
| GSE19060 | GPL570 | 3 | 5 | 半月板 |
| GSE98918 | GPL20844 | 12 | 12 | 半月板 |
| GSE51588 | GPL13497 | 10 | 40 | 软骨下骨 |
表2:本研究中来自GEO数据库的数据集。 符合纳入标准的11个公开可用GEO数据集的汇总。针对每个数据集,提供了登录号ID、平台、正常对照(NC)和骨关节炎(OA)样本数量,以及组织类型。n = 样本数量。
讨论
本研究提示,SNRNP70 可能在骨关节炎(OA)这一复杂的关节疾病发病机制中发挥保护性基因的作用,而 OA 是当前全球面临的重要医疗挑战之一29,30。本研究首次报道了 SNRNP70 在 OA 中的作用。我们通过 GEO 数据分析发现,OA 组织中 SNRNP70 的表达显著下调(总体 SMD = -1.07,95% CI:-1.34,-0.80;图 2)。重要的是,该结果随后在 IL-1β 处理的软骨细胞中得到了验证。此外,本研究还探讨了 SNRNP70 在 IL-1β 处理的软骨细胞炎症反应中的作用。 作为与 OA 相关的保护性基因,SNRNP70 能够通过抑制 IL-1 和 MMP13 的表达来阻遏 OA 的进展。迄今为止,这是首项实验研究,明确揭示了 SNRNP70 在 OA 与正常对照(NC)组织之间表达水平的显著差异,提示 SNRNP70 可能在 OA 的发病机制中具有潜在作用。这一引人关注的发现促使我们思考 SNRNP70 在 OA 中可能具有的诊断价值。 可能
我们开展的荟萃分析整合了多个RNA-seq数据集和芯片数据,获得了SNRNP70潜在 诊断 价值的证据。标准化均数差(SMD)为-1.07,表明SNRNP70在骨关节炎(OA)组织中 consistently 下调,提示其可能作为诊断标志物的应用前景。受试者工作特征(ROC)曲线分析进一步凸显了这一潜力,其曲线下面积(AUC)达0.92,显示出较强的鉴别能力。此外,综合的敏感性和特异性数值支持SNRNP70可能有助于实现更早且更准确的OA诊断。除诊断潜力外,SNRNP70在OA管理背景下仍是一个值得关注的候选分子。OA的发病机制是一个涉及机械超负荷、衰老、遗传易感性和炎症等多因素参与的过程31,32。在这些因素中,炎症 increasingly 被认为是推动OA进展的关键驱动因素33,34。它调控一系列病理事件,包括软骨降解、滑膜炎症以及关节稳态的改变。
本研究探讨了抗炎潜力 SNRNP70,因其作为剪接体组分的作用而受到关注35,36. 使用一个 体外 模型中,软骨细胞经重组大鼠IL-1β处理,以模拟骨关节炎关节中的炎症微环境。这些发现表明 SNRNP70 可能在调节IL-1β刺激的软骨细胞炎症反应中发挥作用。免疫荧光分析进一步提供了支持证据。 SNRNP70其抗炎特性。经IL-1β处理的软骨细胞表现出炎症相关蛋白表达升高,而oe-SN可减弱该表达。oe-SN对炎症相关蛋白表达的这种调控作用 SNRNP70 强调了与骨关节炎发病机制相关的炎症级联反应之间潜在的联系。
尽管本研究提供了SNRNP70在骨关节炎中具有诊断和治疗潜力的观察性证据,但其作用的具体机制仍是一个值得深入探究的领域。37. SNRNP70 是剪接体的关键组分,剪接体是一种参与RNA剪接的复合物,而RNA剪接是基因表达调控中的基本过程。RNA剪接通过切除mRNA分子中的非编码区域(内含子)并将编码区域(外显子)连接起来,在基因表达中发挥关键作用,最终塑造蛋白质组38,39,40很可能参与了 SNRNP70 RNA剪接可能影响与骨关节炎发病机制相关基因的表达。由特定RNA靶标及受调控的剪接事件 SNRNP70 在骨关节炎(OA)病变组织中的作用机制仍有待阐明。深入理解这些机制可能为OA的分子基础提供有价值的见解,并为后续研究提供潜在的候选靶点。此外,未来的研究应探讨SNRNP70与OA发病机制中其他相关分子之间的相互作用。研究其与炎症、软骨降解及关节组织重塑相关信号通路之间的交互作用,有助于更全面地理解其多方面的影响。
本研究存在一些值得考虑的局限性。尽管荟萃分析纳入了大量数据集,但研究设计、患者人口学特征和数据处理方法的差异可能引入异质性。此外,所纳入的数据集在组织来源(例如,软骨 与 滑膜)和处理平台方面存在差异,这可能部分解释了观察到的研究间异质性(I2 = 73.3%)。进一步地,该整合分析基于公开可获取的人类数据集,而功能实验则使用从新生大鼠分离的软骨细胞。这种跨物种差异限制了 体外 研究结果直接外推至人类骨关节炎病理生理过程的程度。另一个局限在于依赖于急性IL-1β刺激模型,该模型仅能捕捉早期炎症反应,无法完全模拟人类骨关节炎的慢性、进行性和多因素特性。此外,功能实验仅限于功能获得性方法(SNRNP70过表达);未开展功能缺失性实验(例如,SNRNP70敲低),这是当前研究的一个局限。最后,尽管相关性分析提示SNRNP70参与了黏着斑通路,但并未直接检测FAK的剪接事件,也未提供实验证据证明黏着斑信号通路在SNRNP70下游发生改变。因此,有必要在更大规模的患者队列和动物模型中进行验证,以增强这些发现的稳健性。此外,体外实验采用的是细胞培养模型,可能无法完全模拟骨关节炎关节复杂的体内微环境。未来的研究应探索SNRNP70在骨关节炎动物模型中的作用,以评估其在更符合生理条件下的治疗潜力。
致谢
本研究由广西重点研发项目(桂科 AB22035014)、广西医科大学第一附属医院特色创新团队专项基金(YYZS2022003)以及2026年海南省卫生健康科技协同创新联合项目(WSJK2026QN087)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 抗聚集蛋白聚糖(ACAN)抗体 | Abcam | ab36861 | 一抗,稀释比例 1:1000 |
| 抗II型胶原α1链(COL2A1)抗体 | Abcam | ab34712 | 一抗,稀释比例 1:1000 |
| 抗IL6抗体 | Proteintech | 21865-1-AP | 细胞培养用抗生素 |
| 抗MMP13抗体 | Proteintech | 18165-1-AP | 一抗,稀释比例 1:1000 |
| BCA蛋白检测试剂盒 | Thermo Fisher Scientific | 23225 | 总蛋白浓度测定 |
| CFX96 实时荧光定量PCR检测系统 | Bio-Rad | 1855195 | 实时PCR检测系统 |
| ChemiDoc XRS+ 成像系统 | Bio-Rad | 1708265 | 化学发光成像系统 |
| II型胶原酶 | Sigma-Aldrich | C6885 | 软骨组织消化,2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | 细胞核复染剂 |
| Dulbecco’s 改良Eagle培养基/F12 | Gibco | 11320033 | 基础细胞培养基 |
| ECL检测试剂 | Thermo Fisher Scientific | 34580 | 增强型化学发光试剂 |
| 胎牛血清 | Gibco | 10082147 | 培养补充剂,浓度10% |
| 荧光显微镜 | Olympus | BX53 | 免疫荧光成像(20倍放大) |
| GEO数据库 | NCBI | N/A | 公共RNA-seq和微阵列数据集 |
| GraphPad Prism 8.0 | GraphPad | N/A | ROC曲线分析 |
| HRP标记的二抗 | Santa Cruz Biotechnology | sc-516102 | 二抗 |
| ImageJ软件 | NIH | N/A | 密度分析软件 |
| LipoFiter 3.0 | Hanbio | HB-OV5101 | 转染试剂 |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | RNA纯度与浓度测定(A260/280比值) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | 过表达质粒 |
| 青霉素 | Thermo Fisher Scientific | 15140122 | 细胞培养用抗生素 |
| Primer-BLAST | NCBI | N/A | 基因特异性引物设计 |
| 引物(合成) | Sangon Biotech | N/A | PCR引物商业合成 |
| 蛋白酶和磷酸酶抑制剂混合物 | Roche | 4693159001 | 蛋白酶和磷酸酶抑制剂混合物 |
| PVDF膜 | Millipore | IPVH00010 | 蛋白转印膜 |
| ReverTra Ace qPCR RT试剂盒 | TOYOBO | FSQ-101 | 第一链cDNA合成 |
| RIPA裂解缓冲液 | Beyotime | P0013B | 含蛋白酶和磷酸酶抑制剂的细胞裂解液 |
| 重组大鼠白细胞介素-1β | PeproTech | 400-01B | 诱导软骨细胞炎症反应 |
| Sangerbox平台 | http://vip.sangerbox.com/ | N/A | ROC曲线分析 |
| Simple Western 自动化Western Blot系统 | ProteinSimple Jess | Jess (model 004-600) | 自动化蛋白表达检测系统 |
| Stata 14.0 | Stata | N/A | Meta分析 |
| 链霉素 | Thermo Fisher Scientific | 细胞培养用抗生素 | |
| SYBR® Premix Ex Taq™ 试剂盒 | Takara | QPK-201 | 实时定量PCR |
| RNAfast200试剂盒 | Fastagen Biotech | 220010-100 | 软骨细胞总RNA提取 |
| 胰蛋白酶-EDTA | Gibco | 25200072 | 细胞消化,0.25%胰蛋白酶-EDTA |
参考文献
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).