本方案描述了iGATA4-囊胚样结构的生成与分析方法,这是一种可扩展的基于干细胞的模型,能够重现小鼠囊胚的关键特征,包括细胞谱系组织和腔体形成,并可实现对影响早期胚胎发育的环境与分子扰动进行可重复的高通量评估。
本文内容
摘要
摘要
基于干细胞的胚胎模型为研究哺乳动物早期发育及其对环境扰动的敏感性提供了强大的平台。本文介绍了一种稳健且易于操作的方案,用于利用胚胎干细胞(ESCs)、滋养层干细胞(TSCs)以及经基因工程改造可诱导表达GATA4的胚胎干细胞(iGATA4-ESCs)生成高保真度的小鼠囊胚样结构(blastoids)。该系统产生的iGATA4-囊胚样结构能够精确模拟天然E4.5囊胚的形态特征、细胞谱系比例及转录图谱,从而提供一种可靠的模型 体外 原始内胚层(PE)、上胚层(EPI)和滋养外胚层(TE)区室的模型。本方案首先演示如何维持和准备囊胚样结构形成所需的三种干细胞群体。随后详细阐述在着床前培养条件下iGATA4-囊胚样结构的逐步组装过程,并强调关键的实验参数。为实现严谨的表征,提供了一套经过验证的囊胚样结构固定、染色与成像工作流程。最后,通过一个实例展示iGATA4-囊胚样结构如何用于高通量分析。通过将大量囊胚样结构暴露于特定环境因素下,可快速且可重复地量化其形态变化、谱系分配及发育进程。综上,本方案建立了一个可扩展的平台,用于模拟着床前发育过程、解析早期谱系决定机制,并开展多参数筛选以评估环境或分子因素对囊胚形成的影响。
引言
了解早期哺乳动物胚胎如何自我组装,以及常见环境因素如何对其形成产生负面影响,需要具备可重复性、实验可及性和可扩展性的模型系统。通过结合胚胎干细胞和胚外干细胞构建的整合型类胚胎模型为此提供了平台1,2本方案描述了在着床前条件下,如何将胚胎干细胞(ESCs)、滋养层干细胞(TSCs)以及经基因工程改造可诱导表达GATA4的胚胎干细胞(iGATA4-ESCs)组装形成类囊胚结构,该结构具有强健且比例适当的原始内胚层(PE)、上胚层(EPI)和滋养外胚层(TE)谱系。近期研究表明,这些结构被称为iGATA4-类囊胚3,与E4.5囊胚在谱系比例、转录特征和功能标志物表达方面相似。当培养时 体外,这些结构中有12.5%会转变为植入后形态。重要的是,它们适用于毒理学和环境筛查。
该技术的开发源于现有类囊胚系统存在的局限性2,4,5. 尽管许多实验方案6,7,8,9,10,11,12,13,14,15,16,17,18,19,20,21 生成类似早期囊胚的空化结构时,多数方法效率相对较低,或产生的结构存在内脏内胚层(PE)形成不完全、细胞身份未明确定义、谱系比例异常等问题。这些不一致性降低了它们在机制研究和高通量扰动筛选中的适用性。由于PE特化 体内 GATA6、SOX17、GATA4 和 SOX7 激活之后22,且PE或其衍生物脏壁内胚层(VE)的缺陷会损害着床前后的发育23,24,25,26,27,执行这一转录程序 体外 提高胚状体保真度。携带条件性 GATA4 转基因的 ESC 能够高效转分化为卵黄囊内胚层(VE),并在着床后条件下与 ESC 和 TSC 结合,生成可进行原肠胚形成并启动器官发生的整合型胚胎模型。28,29,30,31在此,该原理被应用于着床前条件,证明iGATA4-ESCs能够可靠地生成胚外内胚层(PE),并形成与天然胚泡高度相似的类胚体3.
该方法克服了以往利用干细胞进行囊胚建模的局限性,具有高效的胚状体形成效率(形成的结构中有80%为胚状体,其中75%表现出正确的谱系组织和比例)以及高度的胚胎相似性。此外,iGATA4-胚状体的模块化组装方式——即囊胚的每个谱系均来源于独立培养的干细胞群体——为直接实验操控胚胎的各个区室提供了便利。这些特性使该体系特别适用于多参数筛选应用。由于该方法能够产生大量形态一致、滋养外胚层(TE)、上胚层(EPI)和原始内胚层(PE)谱系比例精确的结构,因而可实现对不同谱系特异性反应的并行干扰与定量分析,其统计效力是使用天然胚胎无法达到的。
作为概念验证,研究了在生理范围内常见的环境因素的影响32,33,34,35,36,37,38 测量了咖啡因、尼古丁、乙醇及氨基酸修饰对囊胚样结构形成过程中空腔化率、形态、适应性及谱系比例的影响,评估范围涵盖多种浓度和不同时间处理窗口。大多数条件(咖啡因、乙醇、尼古丁以及模拟低蛋白饮食的条件)导致囊胚样结构形成异常和结构质量受损。相比之下,提高支链氨基酸浓度(类似于高蛋白饮食)可改善囊胚样结构的形成效率和质量。这些结果与在实际胚胎中观察到的效应一致。 体外–培养的自然小鼠囊胚3,表明该系统能够捕捉细微的、剂量依赖性表型,并支持可扩展的、多维度筛选流程,而这些在天然胚胎中难以实现。
在胚胎建模的更广泛背景下,该技术表明,用于模拟植入后整合发育的相同细胞也可被用于构建植入前模型。该方法特别适用于需要可扩展地模拟具有准确原始内胚层(PE)形成和稳健谱系整合能力的类胚泡结构的研究。然而,与其他基于干细胞的小鼠胚泡模型类似,iGATA4-类胚泡在移植到宿主小鼠体内后无法实现植入并进一步发育,因此不适用于胚胎-母体相互作用的研究。总体而言,本方案提供了一种可靠且易于操作的方法,用于生成高保真度的类胚泡,以模拟哺乳动物胚胎早期的细胞命运决定过程。
方案
本方案中描述的所有实验步骤均涉及已建立的细胞系,并严格按照加州理工学院的机构生物安全指南进行。未开展任何涉及活体动物或人类受试者的实验工作。
已测试多种ESC和TSC细胞系,发现均可支持iGATA4-类胚体的形成。先前研究28中的ESC、iGATA4-ESC和TSC已成功用于完成本方案中描述的所有步骤。同一批作者描述了如何从已建立的CD1(ICR)小鼠ESC细胞系生成iGATA4-ESC。
滋养层干细胞(TSCs)培养于市售的小鼠胚胎成纤维细胞(MEFs)之上。本实验方案中使用的所有化学品、试剂、试剂盒、设备和软件均列于材料表中。
1. 用于囊胚样结构形成的 小鼠干细胞培养
- MEF 饲养层平板的制备
- 用 1.5 mL 浓度为 0.2%(w/v)的明胶溶于去离子水(DI 水)中,对 6 孔细胞培养板每孔进行包被。在 37 °C 常氧条件下孵育至少 45 分钟。
- 孵育期间,准备一个 15 mL 离心管,加入 4 mL 预热至 37 °C 的 FC 培养基(表 1)。
- 将 MEF 冻存管在水浴中以“8”字形轻轻晃动,直至仅剩少量冰粒。将内容物转移至已准备好的离心管中,用移液器反复吹打混匀。在 500 × g 条件下离心 4 分钟。
- 吸除上清液,将沉淀用 1 mL FC 培养基重悬。调整体积,使每孔加入 1.5 mL 时可接种约 160,000 个细胞。
- 吸除明胶溶液,每孔加入 1.5 mL MEF 细胞悬液。在常氧条件下孵育过夜,期间避免扰动。
- 次日更换为新鲜的 FC 培养基,每孔 1.5 mL。此后每 48 小时更换一次培养基。接种后 2–7 天内使用 MEF。MEF 可维持更长时间的健康状态,但其支持滋养层干细胞(TSC)生长的能力可能下降。
注意:所有小鼠细胞培养操作均须在生物安全等级(BSL)1级的层流柜中,采用BSL-2级技术进行。
- 小鼠胚胎干细胞(WT ESCs 和 iGATA4-ESCs)的解冻与传代
- 按照 步骤 1.1.1–1.1.3 解冻 WT ESCs 或 iGATA4-ESCs。离心后,将细胞重悬于 1 mL N2B27/2i/LIF 培养基(表 1)中,并以每孔约 50,000 个细胞接种至明胶包被的 6 孔板中,每孔加入约 1.5 mL 培养基。在常氧条件下于 37 °C 培养,每 48 小时更换一次培养基。
- 传代前应确保细胞集落紧密、呈圆形且突起最少。每 2–3 天传代一次。
注意:在使用强力霉素(DOX)诱导前,WT ESCs 与 iGATA4-ESCs 在形态上无法区分。 - 用去离子水配制的 0.2% 明胶溶液,每孔 1.5 mL 包被 6 孔板。37 °C 孵育至少 45 分钟。
- 每孔加入 500 µL 细胞解离试剂,孵育 3 分钟。边轻柔吹打边缘边加入 2 mL FC 培养基。在显微镜下确认 >90% 的细胞已脱落。若仍有细胞贴壁,可轻柔吹打以助重悬。
- 将细胞悬液转移至 15 mL 离心管中,于 500 × g 离心 4 分钟。
- 吸除上清液,将沉淀用 1 mL N2B27/2i/LIF 培养基重悬。取 10 µL 样品使用血细胞计数板测定细胞浓度,并调整体积以每孔接种约 50,000 个细胞。
- 吸除明胶溶液后接种细胞。在常氧条件下培养。次日更换培养基,之后每 48 小时更换一次。
- 小鼠滋养层干细胞(TSCs)的解冻与传代
- 按照 步骤 1.1.1–1.1.3 解冻 TSCs。离心后,将细胞重悬于 1 mL TSF4H 培养基(表 1)中,并以每孔约 20,000 个细胞接种至 MEF 包被的 6 孔板中。在 37 °C、5% CO₂、5% O₂(低氧)条件下培养,每 24 小时更换一次培养基。
- 传代前应确保集落较大(>75 µm 直径)且呈扁平状。每孔加入 500 µL 细胞解离试剂,孵育 5 分钟。边轻柔吹打边加入 2 mL FC 培养基。确认 >90% 的细胞已脱落。
- 将细胞转移至离心管中,于 500 × g 离心 4 分钟。
- 用 1 mL TSF4H 培养基重悬细胞。测定细胞浓度并调整至每孔约 20,000 个细胞。
- 接种至 MEF 上,在低氧条件下培养。每 24 小时更换培养基,并在集落融合前每 2–3 天传代一次。
iGATA4-类囊胚的形成
- 细胞聚集用微孔聚集板的制备
- 向微孔板的每个孔中加入 500 µL 抗黏附冲洗液。在 2,000 × g 5分钟,适当平衡以去除微孔中的滞留空气。在常氧条件下37 °C孵育至少1小时或过夜。
- 类囊体准备,第0天——野生型和iGATA4-ESCs的准备与铺板
- 预热 N2B27/2i/LIF、FC 和 FCYL 培养基(FC + 10 ng/mL 小鼠重组 LIF (mLIF) + 2 µM ROCK 抑制剂 Y27632)至 37 °C。配制 0.2% 明胶溶于去离子水中,并准备好细胞解离试剂。
- 吸弃防黏附溶液,避免接触孔底。用1 mL PBS洗涤两次,再用1 mL FCYL培养基洗涤一次。沿孔壁移液,避免损伤微孔。
- 准备经明胶包被的6孔板(孵育时间≥45分钟),用于细胞传代。
- 吸弃培养基,每孔加入500 µL细胞解离试剂,37 °C孵育3分钟。加入2 mL FC培养基,轻轻吹打。在显微镜下确认细胞完全脱落,转移至15 mL离心管中,500 × g离心 × g 4 分钟。
- 用1 mL FCYL培养基重悬。取10 µL细胞悬液,使用血细胞计数板测定细胞浓度,并调整至500,000–700,000个细胞/mL。计算每个微孔所需体积,使每孔接种5个野生型ESC和5个iGATA4-ESC(即每孔6,000个细胞)。
注意: 如有需要,可针对其他ESC系进行优化。起始范围为每微孔4–7个ESC,ESC与iGATA4-ESCs的比例为1:1。 - 每孔准备 500 µL 细胞悬液。使用 1000 µL 移液器将细胞悬液逐滴加入微孔聚集板中。在 100 × g 条件下离心 × g 3 分钟,确保均匀分布。孵育 6 小时,直至形成聚集体。
- 按照所述方法传代剩余的ESC 第1.2节.
- 类胚体制备,第0天——TX培养基的配制
- 准备约 20 mL TX 基础培养基,使用 DMEM/F12表2每次实验前需新鲜配制。
- 加入200 µL 200 mM L-丙氨酰-L-谷氨酰胺补充剂(终浓度2 mM)。将储备液置于4 °C保存。
- 加入200 µL 10,000 U/mL 青霉素/链霉素(终浓度均为100 U/mL)。于−20 °C保存。
- 加入40 µL 32 mg/mL L-抗坏血酸(终浓度64 µg/mL)。用去离子水配制,过滤除菌,于−20 °C保存。
- 加入20 µL亚硒酸钠(终浓度14 ng/mL)。配制后于−20 °C保存。
- 加入 240 µL NaHCO₃(终浓度 543 µg/mL)。解冻后充分混匀。
- 加入20 µL全转铁蛋白(终浓度10.7 µg/mL)。解冻后混匀。
- 加入约 37.5 µL 胰岛素(终浓度 19.4 µg/mL;依批次而定)。4 °C 保存。
- 使用前立即加入 Y27632 至终浓度为 20 µM,CHIR99021 至 3 µM,IL-11 至 30 ng/mL,FGF4 至 25 ng/mL,肝素至 1 µg/mL,mLIF 至 10 ng/mL,TGFβ 至 15 ng/mL,以及 8Br-cAMP 至 25 µM。
- 准备约 20 mL TX 基础培养基,使用 DMEM/F12表2每次实验前需新鲜配制。
- 类囊胚制备,第0天——滋养层干细胞的准备与接种
- 预热 TSF4H、FC(表1)和 TX 培养基(第 2.3 节)。准备明胶包被的培养板(≥45 分钟),用于 MEF 去除。
- 在低氧条件下,每孔加入 500 µL 细胞解离试剂,孵育 5 分钟。加入 2 mL FC 培养基,轻轻吹打。确认细胞完全脱落。转移至离心管中,于 500 × g 离心 × g 4 分钟。
注意: 培养的TSCs >4天的细胞可能需要长达10分钟的解离试剂处理。 - 用1 mL TSF4H培养基重悬,并调整至适当体积,按1:2比例传代接种。
- 接种至明胶包被的孔板中以去除MEF。在低氧条件下孵育约45分钟,确保MEF已贴壁,而TSC大部分仍处于未贴壁状态。
- 从微孔聚集板的孔中移除 900 µL 培养基,加入 500 µL TX 培养基。放回低氧环境。
- 将含有TSC的上清液转移至新离心管中,注意勿扰动贴壁的MEF细胞。测定细胞浓度(目标浓度为500,000–700,000个细胞/mL)。
- 计算每个微孔中12个TSC的体积(每孔14,400个细胞)。如需进一步浓缩,进行离心。
注意: 针对其他TSC细胞系进行优化(建议每微孔10–15个细胞)。 - 每孔加入 500 µL 细胞悬液,缓慢滴加。在 100 ×g 离心 × g 3 分钟。确认分布均匀后,在缺氧条件下孵育 24 小时。
- 根据需要传代剩余的滋养层干细胞(TSCs)第1.3节).
- 类胚体制备,第1天——诱导
- 在加入TSC约24小时后,每孔加入20 µL 5 mM 8Br-cAMP和1 µL 1 µg/mL DOX。在低氧条件下孵育48–72小时。
- 类胚体制备,第3天——固定
- 使用剪裁过的1000 µL枪头重悬聚集体。转移至2 mL离心管中,静置沉降5 min。
- 吸除上清液,加入 250 µL 4% 多聚甲醛(PFA),轻轻重悬。
警告: 在通风橱中操作PFA,并穿戴适当的个人防护装备。 - 孵育15分钟,每5分钟轻摇一次。
- 去除PFA,加入300 µL PBST(PBS + 0.1% Tween-20),轻轻混匀,于4 °C保存 <染色前1周。
- 囊胚样结构的免疫荧光染色
- 将每份样品 150 µL 转移至 96 孔 U 型底板。
- 加入100 µL透化缓冲液,孵育20分钟。弃去缓冲液,加入一抗溶液,4 °C过夜孵育。
- 用 PBST 洗涤 3 次,每次 5 分钟。加入二抗。
- 室温避光孵育2小时。
- 洗涤3次,转移至成像培养皿。
- 使用共聚焦显微镜成像(物镜倍数≥25×,数值孔径NA≥0.8)。
3. 使用 iGATA4-blastoid 模型进行高通量筛选
- iGATA4-囊胚样结构的制备及环境因素测试
- 按照第2.1节所述方法制备微孔聚集板,并依照第2.2–2.4节生成iGATA4-囊胚样结构。准备足够数量的孔,包括适当的对照组。应包含空白对照(采用标准方案制备的囊胚样结构)、载体对照以及一个或多个实验条件。
- 将囊胚样结构在低氧条件下过夜培养。在滋养层干细胞(TSC)接种后约24小时,制备含有8Br-cAMP、多西环素(DOX)以及目标化合物(或载体对照)的TX培养基。以下条件已被测试:
- 咖啡因:3.5 mg/L,由超纯水储备液稀释而来。
- 尼古丁:330 ng/L,由100%乙醇(EtOH)储备液稀释而来。
- 乙醇:17 mM,由无水乙醇(EtOH)稀释而来。
- 高支链氨基酸(BCAA):相对于基础浓度(0.45 mM L-亮氨酸、0.45 mM L-缬氨酸、0.42 mM L-异亮氨酸)分别增加+5%、+25%、+50%,由超纯水中浓缩储备液配制。
- 低甲硫氨酸和亮氨酸:相对于基础浓度(0.12 mM L-甲硫氨酸、0.45 mM L-亮氨酸)分别减少−5%、−25%、−50%、−100%,使用无甲硫氨酸/亮氨酸DMEM/F12培养基(Met-/Leu-free DMEM/F12)配制。使用前需向无甲硫氨酸/亮氨酸DMEM(LM-DMEM)中添加1×Ham's F-12营养混合物。
注意:配制和操作高浓度咖啡因与尼古丁储备液时,应在通风橱中佩戴适当的个人防护装备(PPE;手套、实验服、护目镜)。乙醇易燃,必须远离热源。
- 吸除每孔中的培养基,加入1 mL含化合物的TX培养基。每次处理一个孔,以避免干燥。将培养板放回低氧培养箱中继续培养至第3天。
- 在第3天使用透射光显微镜拍摄具有代表性的明场图像。固定结构后,按照第2.6节和第2.7节所述进行免疫荧光染色。
备注:根据实验目的调整处理时间窗口。处理可在早期聚集阶段(第1天)或后期阶段(如腔体扩张期)进行。示例处理时间段包括第1–3天、第1–2天(随后更换培养基)以及第2–3天。
- 多参数iGATA4-囊胚样结构分析
- 利用明场图像定量含有腔体结构(即具有清晰中央腔体的结构)的孔所占百分比,并测量囊胚样结构的直径。
- 在图像分析软件中打开图像。
- 使用直线工具穿过每个结构绘制一条线。
- 通过分析 > 测量功能测量直径。
- 选择具有代表性的免疫染色样本(每个生物学重复20–40个结构,每种条件至少三个生物学重复),并按照第2.7节所述进行成像。
- 利用免疫荧光标记物定量总细胞数及谱系组成:滋养外胚层(TE,CDX2阳性)、上胚层(EPI,SOX2阳性且SOX17阴性)、原始内胚层(PE,SOX17阳性)。
- 通过判断原始内胚层(PE)细胞是否在内细胞团(ICM)内与上胚层(EPI)细胞在空间上分离,评估结构的组织性和形态(二分类:是/否)。
- 将形态分为良好(具有清晰囊胚样结构,包含明确腔体以及正确组织化的TE、EPI和PE区室)、中等(存在轻微异常,如形状不规则或腔体部分形成)或差(存在严重异常,如无腔体或谱系混乱/未分选)。
- 在适用情况下,定量其他参数,如腔体大小或体积。使用生物信息学工具或其他分析工具进行绘图和统计分析,使用三维图像分析软件进行细胞计数和/或图像展示前的处理。
- 利用明场图像定量含有腔体结构(即具有清晰中央腔体的结构)的孔所占百分比,并测量囊胚样结构的直径。
结果
在适当的培养条件下维持胚胎干细胞(ESCs)和诱导表达GATA4的胚胎干细胞(iGATA4-ESCs)(常氧条件)以及滋养层干细胞(TSCs)(低氧条件),对于成功生成类囊胚至关重要。按照所述条件培养时,ESCs和iGATA4-ESCs应基本无法区分,培养3天后形成中等大小、圆形且边界清晰的克隆。若出现扁平化克隆或外突边缘,提示早期分化迹象,此类细胞不应用于类囊胚的构建。TSCs应形成扁平的上皮样克隆,边缘略隆起,中心较平坦。过度生长或相互融合的TSC克隆(通常在培养超过>3天后)常导致类囊胚形成效果不佳(图1)。
在iGATA4-类胚体组装过程中,若干早期特征可指示实验方案的成功(图2A,B)。胚胎干细胞(ESC)与iGATA4-ESC聚集后约6小时,应在微孔底部观察到紧密的细胞聚集体。若聚集体松散,提示细胞解离试剂作用时间过长,导致细胞间黏附能力下降。只有在观察到紧密聚集体后,方可进入下一步操作(添加滋养层干细胞TSC;第2.4节)(图2B,D0.5时间点)。此阶段的免疫染色结果应显示为均一的SOX2⁺、GATA4⁻聚集体(图2B,D0.5时间点)。
加入TSC并过夜孵育后,应可见一个由CDX2⁺细胞包围的单一、完整的类胚体(图2B)。若在类胚体表面存在大量未聚集的细胞,通常提示有残留的MEF细胞。MEF污染会降低类囊胚的形成效率;因此,在聚集前充分去除MEF以获得以TSC为主的细胞群体至关重要。可使用40 µm细胞筛网去除残留的MEF,但此步骤可能降低TSC的得率。若CDX2⁺细胞覆盖不完全或过度,可通过调整每个微孔中添加的TSC数量进行优化(推荐范围:10–15个)。
加入DOX和8Br-cAMP后,通常在第2天可观察到腔体结构,可持续至第3天。在明场显微镜下,腔体表现为囊胚样结构内部清晰的空腔区域(图2B,C;白色虚线)。GATA4⁺细胞在DOX诱导后不久出现,并逐渐迁移至类内细胞团(ICM-like)结构的表面(图2B)。成功的囊胚样结构形成表现为较高的成腔效率(通常每微孔聚集板中约80%的结构成腔;图2D)、单层CDX2⁺的类滋养外胚层(TE-like)外上皮、类囊胚腔的腔体结构,以及包含SOX2⁺的类上胚层(EPI-like)细胞并被GATA4⁺的类胚外内胚层(PE-like)细胞覆盖的圆形类内细胞团结构(图2C–E)。
常见的非理想结果包括无腔体结构、具有多个腔体或类内细胞团(ICM)区域的不规则形状类胚体,以及含有较少结构或细胞碎片的孔。尽管预计约有20%的异常结构(图2C),但若比例更高,则可能提示存在问题,例如TX培养基配制不当、起始细胞质量差、第1天未添加DOX或8Br-cAMP,或在换液过程中结构发生移位。
在高通量筛选应用中,未经处理组和溶剂对照组的孔应产生与阳性对照条件相当的类囊胚结构(图3A、B)。实验处理可能影响多个质量指标,包括类囊胚大小(图3C)、腔化效率、总细胞数和谱系特异性细胞数(图3D)、原始内胚层(PE)分选能力以及整体形态(图3E)。例如,在类囊胚形成过程中加入咖啡因、尼古丁或乙醇会导致结构变小、腔化效率降低、总细胞数或内细胞团(ICM)细胞数减少、PE分选受损以及形态学评分下降。相反,增加支链氨基酸的浓度可产生更大、腔化更充分的类囊胚,其细胞数量增多且形态学表现更优(图3C–E)。不同实验之间存在预期的生物学变异,因此强调每次实验均需包含空白对照和载体对照。
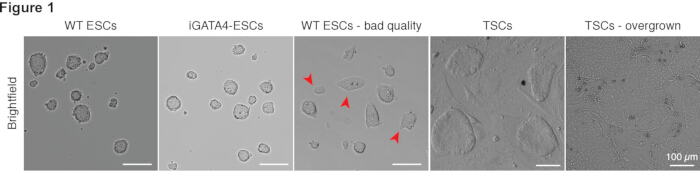
图 1:高质量与低质量的野生型 ESCs、iGATA4-ESCs 及 TSCs 的示例。 在 N2B27/2i/LIF 培养基(ESCs)或 TSF4H 培养基(TSCs)中培养 2–3 天后,野生型 ESCs、iGATA4-ESCs 和 TSCs 的明场显微图像,显示预期的克隆形态。“野生型 ESCs – 低质量”图示展示了形态欠佳的细胞,包括边缘突出的扁平克隆(红色箭头)。“TSC 过度生长”图示展示了培养 4 天后融合并扩大的 TSC 克隆。比例尺:所有图示均为 100 µm。请点击此处查看该图的放大版本。
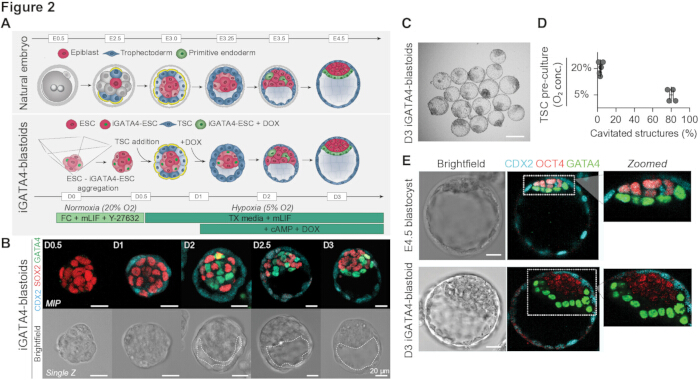
图2iGATA4-类囊胚的示意图及预期形态 转载自 发育细胞第61卷,Jorgensen V,Bao M,Junyent S 等 用于环境研究的高效干细胞来源小鼠胚胎模型,第193–207.e6页,版权所有 (2025)3,经Elsevier许可。 (A自然小鼠囊胚发育的示意图(顶部)与基于干细胞的囊胚建模示意图,后者使用野生型胚胎干细胞(WT ESCs)、诱导型GATA4胚胎干细胞(iGATA4-ESCs)和滋养层干细胞(TSCs)。
(B) 显示方案不同阶段预期形态及标志物表达的显微图像。最大强度投影(MIP);虚线标示腔体边界。比例尺:20 µm。C第3天iGATA4-类胚体的明场图像。比例尺:100 µm。
(D) 使用常氧或低氧条件下预培养的TSCs生成的iGATA4-类囊胚的空化率;聚集体在低氧条件下培养。n ≥ 4;误差条表示均值的标准误。 (EE4.5 囊胚和第3天iGATA4-类囊胚的谱系标志物免疫染色(CDX2,青色;OCT4,红色;GATA4,绿色)。最大强度投影(MIP);在指定位置显示单个Z平面。比例尺:25 µm。 请点击此处以查看此图的放大版本。
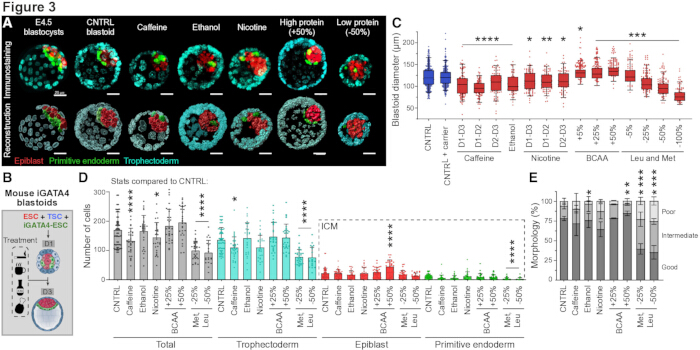
图 3。环境因素对囊胚样结构形成及质量的影响。(A)经环境因素处理的 iGATA4-囊胚样结构的代表性免疫荧光三维图像(上方)和 IMARIS 表面重建图像(下方)(环境因素包括咖啡因、尼古丁、乙醇以及模拟高蛋白和低蛋白饮食的条件)。比例尺:所有图像均为 25 µm。(B)实验流程示意图。(C)不同处理条件下囊胚样结构的直径。范围表示第10至第90百分位数;方框表示四分位距;线条表示中位数。统计分析采用单因素方差分析(one-way ANOVA)结合多重比较。(D)对照组和处理组囊胚样结构中总细胞数(灰色)、滋养外胚层细胞数(青色)、上胚层细胞数(红色)以及原始内胚层细胞数(绿色)的定量分析。柱状图表示均值;误差线表示标准差。统计分析采用单因素方差分析结合多重比较。(E)在对照和处理条件下,被归类为“良好”(谱系分选正常且形态学异常极少)、“中等”(形态基本正常但存在轻微异常,包括上胚层–原始内胚层分选不完全)或“差”(形态严重异常且谱系组织紊乱)的囊胚样结构所占比例的定量分析。统计分析采用双因素方差分析(two-way ANOVA),相对于对照条件进行比较。所有图示数据均来自至少三次独立实验(n ≥ 3)。统计学显著性标记为 *p < 0.05,**p < 0.01,***p < 0.001,****p < 0.0001。请点击此处查看该图的放大版本。
| 培养基 | 试剂 | 终浓度 |
| FC | ||
| DMEM | n.a. | |
| 热灭活胎牛血清 (iFBS) | 15% | |
| GlutaMax | 2 mM | |
| 2-巯基乙醇 (2-ME) | 0.1 mM | |
| 非必需氨基酸 (NEAA) | 1x | |
| 丙酮酸钠 (Na Pyruvate) | 1x | |
| 青霉素-链霉素 (Penicillin–Streptomycin) | 1x | |
| N2B27/2i/LIF | ||
| DMEM/F12 | 50% | |
| NeurobasalA | 50% | |
| B27 添加剂 | 1x | |
| N2 添加剂 | 0.5x | |
| 2-ME | 100 µM | |
| 青霉素-链霉素 (Penicillin–Streptomycin) | 1% | |
| GlutaMax | 2 mM | |
| PD0325901 | 1 µM | |
| CHIR99021 | 3 µM | |
| 小鼠重组 LIF | 10 ng/mL | |
| TSF4H | ||
| Megacell RPMI-1640 培养基 | n.a. | |
| iFBS | 20% | |
| GlutaMax | 2 mM | |
| 丙酮酸钠 (Na Pyruvate) | 1x | |
| 青霉素-链霉素 (Penicillin–Streptomycin) | 1x | |
| FGF4 | 25 ng/mL | |
| 肝素 (Heparin) | 1 μg/mL |
表1:FC、N2B27/2i/LIF 和 TSF4H 培养基配方。 配制 FC 培养基、N2B27/2i/LIF 培养基和 TSF4H 培养基的配方,含最终浓度。
| 组分 | 终浓度 | 储存液浓度 | 溶剂及储存条件 | 加至约 20 mL 的体积 |
| 8Br-cAMP | 25 µM | 5 mM | PBS,-20 °C 保存 | 100 µL |
| CHIR99021 | 3 µM | 10 mM | DMSO,-20 °C 保存 | 6 µL |
| DMEM/F12 | 不适用 | 不适用 | 4 °C 保存 | 20 mL |
| FGF4 | 25 ng/mL | 100 µg/mL | 含 0.1% BSA 的 PBS,-20 °C 保存 | 5 µL |
| L-丙氨酰-L-谷氨酰胺补充剂 | 2 mM | 200 mM | 4 °C 保存 | 200 µL |
| 肝素 | 1 µg/mL | 1 mg/mL | PBS,-20 °C 保存 | 20 µL |
| 全转铁蛋白 | 10.7 µg/mL | 10.7 mg/mL | 去离子水,-20 °C 保存 | 20 µL |
| 人 TGF-β1 | 15 ng/mL | 20 µg/mL | 4 mM HCl + 0.1% BSA,-20 °C 保存 | 15 µL |
| IL-11 | 30 ng/mL | 25 µg/mL | 含 0.1% BSA 的 PBS,-20 °C 保存 | 24 µL |
| 胰岛素 | 19.4 µg/mL | 9.5 - 11.5 mg/mL | 浓度依批次而定,4 °C 保存 | 33.7–40.8 µL,根据储存液浓度调整体积。 |
| L-抗坏血酸-2-磷酸镁 | 64 µg/mL | 32 mg/mL | 去离子水,-20 °C 保存 | 40 µL |
| 小鼠重组 LIF | 10 ng/mL | 10 µg/mL | PBS + 0.1% BSA,-20 °C 保存 | 20 µL |
| NaHCO3 | 543 µg/mL | 45.25 mg/mL | 去离子水,-20 °C 保存 | 240 µL |
| 青霉素/链霉素 | 1x | 100x | -20 °C 保存 | 200 µL |
| 亚硒酸钠 | 14 ng/mL | 14 µg/mL | 去离子水,-20 °C 保存 | 20 µL |
| Y27632 | 20 µM | 20 mM | DMSO,-20 °C 保存 | 20 µL |
表2:TX培养基配方。 TX培养基的制备配方,包含小分子及其他试剂的配制与储存方法,以及最终浓度信息。
讨论
iGATA4-囊胚样结构通过自我组织形成三种胚层,提供了一种高效、类胚胎的基于干细胞的小鼠囊胚模型 体外–培养的细胞类型:ESCs、可诱导型GATA4-ESCs(iGATA4-ESCs)以及低氧培养的TSCs。这些结构可重现E4.5囊胚的关键特征,包括适当的谱系比例和转录特征,并可用于多参数环境筛选,可靠地反映囊胚阶段的发育缺陷3最近一项研究表明,在基础囊胚样结构培养基中聚集ESC、iGATA4-ESCs和TSC同样可高效形成囊胚样结构,凸显了该方法在不同实验室和培养条件下具有高度稳健性和适应性39iGATA4-ESCs 既往已被证明可在植入后基于干细胞的胚胎模型中重现卵黄囊内胚层细胞的功能28,29,30,31这些结果共同表明,iGATA4-ESCs 可作为干细胞胚胎建模中不同发育阶段的前肠内胚层/脏壁内胚层细胞的灵活且可靠的替代细胞。
该方案中有多个步骤对于获得高质量的囊胚样结构(blastoids)至关重要。这些步骤包括起始细胞群体的质量,特别是低氧培养的滋养层干细胞(TSCs)(图1);TX培养基的配制,应在第0天新鲜配制(表2;第2.3节);以及聚集体形成后对培养板的小心操作。判断方案成功的关键指标包括空腔化效率(通常约为80%)、适当的形态特征(直径约100 µm,具有类似囊胚腔的空腔、CDX2⁺的类似滋养外胚层(TE)的外层,以及分选良好的SOX2⁺和GATA4⁺的内细胞团,其TE:EPI:PE比例约为3:1:1),以及存在正确分选的GATA4⁺的类似原始内胚层(PE)的细胞层。这些指标在本领域中被广泛使用1,2,4,5。在已发生空腔化的囊胚样结构中,约75%的结构具备上述全部特征。这些指标可作为问题排查的初步依据。细胞质量不佳通常表现为异常的克隆形态,导致聚集体形成不良或无法空腔化。培养基配制不当可能导致聚集体不完全或谱系发育缺陷,而操作粗暴则可能导致每个微孔中出现多个聚集体或空孔。
进一步优化可包括调整接种细胞数量(推荐起始范围:每个微孔4–7个ESCs和iGATA4-ESCs,以及10–15个TSCs)、优化MEF去除方法(例如,通过40 µm细胞筛网进行过滤),以及调整TX培养基成分。例如,去除FGF4和肝素仍可支持高效的类囊胚形成,同时促进更接近壁层滋养层样(mural TE-like)的特性。iGATA4类囊胚可在体外培养中维持长达6天;然而,第4至6天的结构通常会增大体积,同时保持类似囊胚的谱系比例。该方案在生物学重复间可产生一致的结果,但每次实验均应设置适当的对照组。
与其他小鼠囊胚样系统相比,iGATA4-囊胚样结构在起始细胞群体和培养条件方面具有一致性6,7,8,9,10,11,12,13,14,15,16,17,18,19,20,并实现了高效的形成效率和准确的谱系代表性。尽管许多现有方案能够生成具有腔体结构的类囊胚,并在特定生物学应用中具有重要价值,但这些结构常表现出原始内胚层(PE)形成不完全、细胞身份异质或未明确定义,以及谱系比例不正确等问题。通过逐步整合三种谱系定向的干细胞群体,iGATA4-囊胚样结构克服了上述局限性,提供了一个可重复、模块化且实验上易于操作的系统。
尽管具有这些优势,但仍存在一些局限性。延长 体外 在TX培养基中培养超过4–6天会导致过度生长,即使谱系比例仍保持类似胚泡的特征。约12.5%的iGATA4类胚体转变为类似着床前后形态 体外,其特征是具有杯状、假复层的上胚层包围着一个前羊膜腔,靠近近端上胚层处有一个扩大的类似胚外外胚层的区室,以及外层的类似脏壁内胚层的结构。然而,iGATA4-胚状体在移植到宿主小鼠体内后无法着床并进一步发育。因此,iGATA4-胚状体以及更广泛的胚状体均不适用于研究着床过程或胚胎-母体相互作用。
囊胚样结构无法着床的分子基础仍不明确,但现有证据表明,滋养外胚层(trophectoderm, TE)模拟不完整可能是导致该问题的因素之一。iGATA4-囊胚样结构中的类TE细胞表现出过度极化的分子特征。未来若能构建更接近壁滋养外胚层细胞的滋养层干细胞(TSCs),或引入更能重现具备着床能力的滋养外胚层的替代细胞系,将是克服这些局限性的有前景方向。iGATA4-囊胚样结构具有模块化特性,即针对TE的特异性改造可独立于上胚层(EPI)和原始内胚层(PE)的形成而进行,这使得该系统特别适合用于此类优化与开发。
综上所述,iGATA4-囊胚样结构构建方案为研究哺乳动物胚胎中的谱系特化及早期发育过程提供了一个稳健且可扩展的平台。其可重复性和可调节性使其非常适用于高通量的环境、药理学和遗传学筛选应用。因此,iGATA4-囊胚样结构是研究早期发育机制以及评估多种干扰因素如何影响着床前发育的有力体系。
披露
作者声明无竞争利益。
致谢
作者感谢Christoph Häfelfinger、Victoria Jorgensen、Min Bao、Lenja Fluetsch以及Zernicka-Goetz实验室成员在开发和改进iGATA4-类囊胚过程中提供的帮助。本研究得到了美国国立卫生研究院主任先锋奖(5DP1HD104575-04,授予M.Z.-G.)、Open Philanthropy奖(M.Z.-G.)、人类前沿科学计划(LT-0022/2022,授予S.J.)、国家自然科学基金委员会(82301873,授予M.B.)、中国科学技术部(2024YFA1107002,授予M.B.)、瑞士研究基金会(C.M.H.)、巴塞尔自由学术协会(Freie Akademische Gesellschaft)Werenfels基金(C.M.H.)以及Claudine和Hans-Heiner Zaeslin-Bustany基金会(C.M.H.)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2-巯基乙醇 | Thermo Fisher Scientific | 31350010 | 用于常规培养基制备 |
| 8-溴-cAMP | STEMCELL Technologies | 73602 | 用于 TX 培养基制备和类囊胚腔化 |
| AggreWell400 | STEMCELL Technologies | 34415 | 微孔聚集板;用于类囊胚制备 |
| 防粘附冲洗液 | STEMCELL Technologies | 7010 | 用于类囊胚制备 |
| ART 宽口滤芯移液吸头 | Thermo Fisher Scientific | 2079GPK | 用于免疫染色过程中类囊胚的转移 |
| B27 添加剂 | Thermo Fisher Scientific | 17504044 | 用于培养基制备 |
| 咖啡因 | Sigma | 58-08-2 | 作为环境因素用于测试 iGATA4-类囊胚 |
| CDX2 抗体,小鼠来源 | Biogenex | MU392A5UC | 用于免疫荧光,使用比例为 1:200 |
| CellXpert(常氧培养箱) | Eppendorf | 6731010015 | 其他品牌/型号也可使用。 |
| CHIR99021 | STEMCELL Technologies | 72054 | 用于培养基制备 |
| Countess 细胞计数板载玻片 | Invitrogen | C10228 | 用于常规组织培养 |
| DAPI | Thermo Fisher Scientific | D1306 | 用于免疫荧光,使用比例为 1:500–1:1,000 |
| DMEM | Gibco | 11995040 | 用于 FC 培养基制备 |
| DMEM/F12 | Thermo Fisher Scientific | 21331-020 | 用于 N2B27 和 TX 培养基制备 |
| DMEM-LM | Thermo Fisher Scientific | 30030 | 将 Ham's F-12 营养混合物粉末加入 DMEM-LM 中,配制成终浓度为 1x 的 Met 和 Leu 缺失型 DMEM/F12 |
| 驴抗山羊 IgG (H+L) 交叉吸附二抗,Alexa Fluor 488 标记 | Invitrogen | A-11055 | 用于免疫荧光,使用比例为 1:500–1:1,000 |
| 驴抗小鼠 IgG (H+L) 高度交叉吸附二抗,Alexa Fluor™ 647 标记 | Invitrogen | A-31571 | 用于免疫荧光,使用比例为 1:500–1:1,000 |
| 驴抗兔 IgG (H+L) 高度交叉吸附二抗,Alexa Fluor™ 568 标记 | Invitrogen | A10042 | 用于免疫荧光,使用比例为 1:500–1:1,000 |
| 驴抗大鼠 IgG (H+L) 高度交叉吸附二抗,Alexa Fluor 647 标记 | Invitrogen | A78947 | 用于免疫荧光,使用比例为 1:500–1:1,000 |
| 驴血清 | Jackson ImmunoResearch | 017-000-121 | 用于免疫荧光。在 4°C 下解冻,并分装后于 -20°C 保存。 |
| 多西环素 | Sigma | D9891-5G | 用于类囊胚制备过程中的 iGATA4 诱导 |
| Eppendorf Centrifuge 5702 | Eppendorf | 5702 | 本实验室使用,其他型号亦可。需配备离心管和板适配器。 |
| Falcon 96 孔透明圆底未处理微孔板,带盖,独立包装 | Corning | 351177 | 用于免疫荧光 |
| FGF4 | R&D Systems | 5846-F4 | 用于培养基制备 |
| Fiji | Schindelin 等,2012 | https://imagej.net/Fiji | 用于图像分析 |
| GATA4 抗体,兔来源 | Cell Signalling | 36966S | 用于免疫荧光,使用比例为 1:500 |
| 明胶溶液,2% | Sigma | G1393 | 用于常规组织培养 |
| 35 mm 玻底培养皿 | Ibidi | 81218-200 | 用于免疫荧光和成像 |
| GlutaMAX | Thermo Fisher Scientific | 35050-061 | L-丙氨酰-L-谷氨酰胺添加剂;用于培养基制备 |
| Ham's F-12 营养混合物粉末 | Thermo Fisher Scientific | 21700075 | 作为 DMEM-LM 的补充剂,用于低蛋白条件。 |
| 肝素 | Sigma | H3149 | 用于培养基制备 |
| Heracell VIOS 160i(低氧培养箱) | Thermo Fisher Scientific | 51030400 | 其他品牌/型号也可使用。 |
| 全转铁蛋白 | Sigma | T4132 | 用于 TX 培养基制备。 |
| 人重组 TGF-ß1 | PeproTech | 100-21 | 用于 TX 培养基制备。 |
| IL-11 | PeproTech | 200-11 | 用于 TX 培养基制备。 |
| Imaris | Oxford Instruments | https://imaris.oxinst.com/ | 用于图像分析和图像处理。 |
| 灭活胎牛血清 | Corning | 35-010-CV | 用于培养基制备 |
| 可诱导 GATA4 胚胎干细胞(tetO-GATA4-ESCs) | Amadei 等,2021 | NA | 细胞系可向 Zernicka-Goetz 实验室申请获取 |
| 胰岛素 | Sigma | I9278 | 用于 TX 培养基制备。 |
| 辐照 C57bl/6 小鼠胚胎成纤维细胞 | Thermo Fisher Scientific | A34960 | 用作滋养层以培养滋养层干细胞(TSC)。按方案指示解冻,并在一周内使用。 |
| L-抗坏血酸-2-磷酸镁 | Sigma | A8960 | 用于 TX 培养基制备。 |
| L-异亮氨酸 | Thermo Fisher Scientific | 73-32-5 | 用于补充 TX 培养基。 |
| L-亮氨酸 | Thermo Fisher Scientific | 61-90-5 | 用于补充 TX 培养基。 |
| L-缬氨酸 | Thermo Fisher Scientific | 72-18-4 | 用于补充 TX 培养基。 |
| Megacell RPMI-1640 培养基 | Sigma | M3817 | 用于培养基制备 |
| 各类移液吸头 | 多个供应商 | NA | 用于常规液体操作 |
| 小鼠重组 LIF | STEMCELL Technologies | 78056 | 用于培养基制备 |
| N2 添加剂 | Thermo Fisher Scientific | 17502048 | 用于培养基制备 |
| NaHCO₃ | Sigma | S5761 | 用于 TX 培养基制备。 |
| Neurobasal A | Thermo Fisher Scientific | 10888-022 | 用于培养基制备 |
| 尼古丁 | Sigma | 54-11-5 | 作为环境因素用于测试 iGATA4-类囊胚 |
| 非必需氨基酸 | Thermo Fisher Scientific | 11140-050 | 用于常规培养基制备 |
| Parafilm | Thermo Fisher Scientific | 13-374-10 | 用于免疫荧光 |
| 多聚甲醛,16% | Electron Microscopy Sciences | 15710 | 用于免疫荧光,使用前用 PBS 稀释为 4% 工作浓度。 |
| PBS | Thermo Fisher Scientific | 10010031 | 用于常规组织培养和免疫荧光 |
| PD0325901 | STEMCELL Technologies | 72184 | 用于培养基制备 |
| 青霉素–链霉素 | Thermo Fisher Scientific | 15140122 | 用于培养基制备 |
| Pluriselect pluriStrainer(细胞滤网),40 μm 孔径 PET 材质 | Thermo Fisher Scientific | NC1401489 | 可选,用于去除 MEF |
| Prism10 | GraphPad | https://www.graphpad.com/scientific-software/prism/ | 用于数据分析和作图。 |
| ROCK 抑制剂 Y27632 | STEMCELL Technologies | 72304 | 用于培养基制备和类囊胚形成 |
| 丙酮酸钠 | Thermo Fisher Scientific | 11360070 | 用于培养基制备 |
| 亚硒酸钠 | Sigma | S5261 | 用于 TX 培养基制备。 |
| SOX17,山羊来源 | R&D Systems | AF1924 | 用于免疫荧光,使用比例为 1:500–1:1,000 |
| SOX2,大鼠来源 | Invitrogen | 14981180 | 用于免疫荧光,使用比例为 1:500–1:1,000 |
| 吐温 X-100 | Sigma | T8787 | 用于免疫荧光 |
| TrypLE Select 酶 | Thermo Fisher Scientific | 12563011 | 细胞解离试剂;用于常规组织培养 |
| TSC-eGFP | Tanaka 等,1998 | NA | 细胞系可向 Zernicka-Goetz 实验室申请获取 |
| 吐温-20 | Sigma | P1379 | 用于免疫荧光 |
| 组织培养用超纯水 | Thermo Fisher Scientific | 10977023 | 用于常规组织培养 |
| 野生型 CD1 胚胎干细胞 | Amadei 等,2021 | NA | 细胞系可向 Zernicka-Goetz 实验室申请获取 |
| 野生型滋养层干细胞(TSCs) | Sozen 等,2019 | NA | 细胞系可向 Zernicka-Goetz 实验室申请获取 |
| 蔡司 980 共聚焦显微镜 | ZEISS | NA | 显微镜,其他品牌和型号亦可使用。 |
参考文献
- Zernicka-Goetz, M. The evolution of embryo models. Nat Methods. 20 (12), 1844-1848 (2023).
- Handford, C. E., Junyent, S., Jorgensen, V., Zernicka-Goetz, M. Embryonic models. Curr Opin Genet Dev. 84, 102134 (2024).
- Jorgensen, V., et al. Efficient stem cell-derived mouse embryo models for environmental studies. Dev Cell. 61, 193-207.e6 (2025).
- Luijkx, D., Shankar, V., van Blitterswijk, C., Giselbrecht, S., Vrij, E. From mice to men: generation of human blastocyst-like structures in vitro. Front Cell Dev Biol. 10, 838356 (2022).
- Oura, S., Hamilton, J. N., Wu, J. Recent advances in stem cell-based blastocyst models. Curr Opin Genet Dev. 81, 102088 (2023).
- Rivron, N. C., et al. Blastocyst-like structures generated solely from stem cells. Nature. 557 (7703), 106-111 (2018).
- Kime, C., et al. Induced 2C expression and implantation-competent blastocyst-like cysts from primed pluripotent stem cells. Stem Cell Reports. 13 (3), 485-498 (2019).
- Li, R., et al. Generation of blastocyst-like structures from mouse embryonic and adult cell cultures. Cell. 179 (3), 687-702.e18 (2019).
- Sozen, B., et al. Self-organization of mouse stem cells into an extended potential blastoid. Dev Cell. 51 (6), 698-712.e8 (2019).
- Yang, M., et al. Chemical-induced chromatin remodeling reprograms mouse ESCs to totipotent-like stem cells. Cell Stem Cell. 29 (3), 400-418.e13 (2022).
- Xu, Y., et al. Derivation of totipotent-like stem cells with blastocyst-like structure forming potential. Cell Res. 32 (6), 513-529 (2022).
- Seong, J., et al. Epiblast inducers capture mouse trophectoderm stem cells in vitro and pattern blastoids for implantation in utero. Cell Stem Cell. 29 (7), 1102-1118.e8 (2022).
- Vrij, E. J., et al. A pendulum of induction between the epiblast and extraembryonic endoderm supports post-implantation progression. Development. 149 (20), dev192310 (2022).
- Li, H., et al. In vitro generation of mouse morula-like cells. Dev Cell. 58 (22), 2510-2527.e7 (2023).
- Zhang, P., et al. Highly efficient generation of blastocyst-like structures from spliceosome-repressed mouse totipotent blastomere-like cells. Sci China Life Sci. 66 (3), 423-435 (2023).
- Liu, K., et al. Bilineage embryo-like structure from EPS cells can produce live mice with tetraploid trophectoderm. Protein Cell. 14 (4), 262-278 (2023).
- Linneberg-Agerholm, M., et al. The primitive endoderm supports lineage plasticity to enable regulative development. Cell. 187 (15), 4010-4029.e16 (2024).
- Wu, B., et al. Blastoids generated purely from embryonic stem cells both in mice and humans. Sci China Life Sci. 67 (2), 418-420 (2024).
- Wong, K. W., et al. Nuclear receptor–SINE B1 network modulates expanded pluripotency in blastoids and blastocysts. Nat Commun. 15 (1), 1-21 (2024).
- Peng, B., et al. Mouse totipotent blastomere-like cells model embryogenesis from zygotic genome activation to post-implantation. Cell Stem Cell. 32 (3), 391-408.e11 (2025).
- Li, H., et al. A complete model of mouse embryogenesis through organogenesis enabled by chemically induced embryo founder cells. Cell. 188 (21), 5912-5930.e20 (2025).
- Artus, J., Piliszek, A., Hadjantonakis, A. K. The primitive endoderm lineage of the mouse blastocyst: sequential transcription factor activation and regulation of differentiation by Sox17. Dev Biol. 350 (2), 393-404 (2011).
- Moore, R., Tao, W., Smith, E. R., Xu, X. X. The primitive endoderm segregates from the epiblast in β1 integrin-deficient early mouse embryos. Mol Cell Biol. 34 (3), 560-572 (2014).
- Yang, D. H., et al. Disabled-2 is essential for endodermal cell positioning and structure formation during mouse embryogenesis. Dev Biol. 251 (1), 27-44 (2002).
- Smyth, N., et al. Absence of basement membranes after targeting the LAMC1 gene results in embryonic lethality due to failure of endoderm differentiation. J Cell Biol. 144 (1), 151-160 (1999).
- Niakan, K. K., et al. Sox17 promotes differentiation in mouse embryonic stem cells by directly regulating extraembryonic gene expression and indirectly antagonizing self-renewal. Genes Dev. 24 (3), 312-326 (2010).
- Shirai, T., et al. Identification of an enhancer that controls up-regulation of fibronectin during differentiation of embryonic stem cells into extraembryonic endoderm. J Biol Chem. 280 (8), 7244-7252 (2005).
- Amadei, G., et al. Inducible stem-cell-derived embryos capture mouse morphogenetic events in vitro. Dev Cell. 56 (3), 366-382.e9 (2021).
- Amadei, G., et al. Embryo model completes gastrulation to neurulation and organogenesis. Nature. 610 (7930), 143-153 (2022).
- Lau, K. Y. C., et al. Mouse embryo model derived exclusively from embryonic stem cells undergoes neurulation and heart development. Cell Stem Cell. 29 (10), 1445-1458.e8 (2022).
- Tarazi, S., et al. Post-gastrulation synthetic embryos generated ex utero from mouse naive ESCs. Cell. 185 (18), 3290-3306.e25 (2022).
- Fabro, S., Sieber, S. M. Caffeine and nicotine penetrate the pre-implantation blastocyst. Nature. 223 (5204), 410-411 (1969).
- McLachlan, J. A., Dames, N. M., Sieber, S. M., Fabro, S. M. Accumulation of nicotine in the uterine fluid of the six-day pregnant rabbit. Fertil Steril. 27 (10), 1204-1213 (1976).
- Kamimori, G. H., et al. The rate of absorption and relative bioavailability of caffeine administered in chewing gum versus capsules. Int J Pharm. 234 (1-2), 159-167 (2002).
- Russell, M. A. H., Jarvis, M., Iyer, R., Feyerabend, C. Relation of nicotine yield of cigarettes to blood nicotine concentrations in smokers. Br Med J. 280 (6219), 972 (1980).
- Hughes, K., et al. Drinking behaviours and blood alcohol concentration in four European environments: a cross-sectional study. BMC Public Health. 11, 918 (2011).
- Colombo, J. P., et al. Effect of different protein diets on amino acid distribution in plasma, liver, and brain in the rat. Ann Nutr Metab. 36 (1), 23-33 (1992).
- Eckert, J. J., et al. Metabolic induction and early responses of mouse blastocyst programming following maternal low protein diet. PLoS One. 7 (12), e52791 (2012).
- Guo, F., et al. High-efficiency generation of blastoids with gastrulation potential through Gata4-induced PrE specification in mESCs. Cell Discov. 11 (1), 94 (2025).
重印与许可
本文已发表
视频即将推出