本方案描述了一种利用分裂型 Broccoli RNA 报告系统进行的可视化检测方法,用于检测和定量 RNA 簇中的分子间碱基配对 体外.
本文内容
摘要
摘要
RNA聚类由多价分子间RNA–RNA相互作用驱动,可能发生 体外 在缺乏蛋白质的情况下。尽管化学探针和计算模拟已被用于预测这些相互作用,但直接评估RNA簇中分子间碱基配对的方法仍然有限。本研究提出了一种基于分裂的Broccoli RNA报告系统与荧光标记的目标RNA结合的可视化检测方法。该方法可实现对RNA簇中分子间碱基配对的检测与定量。分裂的Broccoli系统包含互补的报告序列,可发生二聚化形成Broccoli RNA适体。所形成的二聚化RNA结构可结合DFHBI-1T——一种在结合后发出绿色荧光的荧光染料。当RNA发生簇集时,绿色荧光的出现即指示了由目标RNA之间的互补报告序列介导的碱基配对。通过测量DFHBI-1T的荧光强度,可对RNA分子间碱基配对的程度进行定量分析 体外 RNA 聚类条件会影响这些报告序列之间的分子间碱基配对。
引言
体外转录的RNA在加入盐和分子拥挤试剂后可自组装成可见的簇状结构1,2,3,4,5。值得注意的是,这些RNA簇的形成无需其他细胞组分(包括蛋白质)的参与,表明在特定条件下,分子间的RNA–RNA相互作用足以在体外驱动RNA的凝聚。
在多种类型的分子间RNA–RNA相互作用中,分子间碱基配对在凝聚相领域受到了广泛关注1,2,4,6,7,8,9,10。这些相互作用可由转录本之间暴露的互补序列(“邮政编码”)驱动,这一点已通过转录本的共聚集现象得到证实 BNI1 和 SPA2 丝状真菌中的mRNA 阿什比酵母(Ashbya gossypii)2 或寡聚化 oskar mRNA 在 黑腹果蝇 6,7或者,通过重塑RNA二级结构,暴露出原本在结构上被埋藏的互补序列,从而促进分子间碱基配对。该机制已在重复RNA中被观察到。 计算机模拟9 和鸟苷酸核开关 体外10暴露的互补序列和RNA结构重塑均可通过化学探针法进行检测11,12 或模拟方法4,9,13,14然而,能够直接可视化分子间碱基配对的方法在 体外 RNA聚类分析仍存在局限性。
使用碱基配对交联剂的RNA下拉实验15,16,17以及凝胶电泳4,6,7常用于研究分子间RNA碱基配对 体外然而,这些方法缺乏足够的空间分辨率,无法区分簇内与簇外的碱基配对。此外,将RNA簇分离以进行下游分析在技术上具有挑战性,因为该过程需要在保持簇稳定的同时,确保缓冲体系与后续检测的兼容性。
基于分裂型 Broccoli RNA 报告系统的可视化检测方法18 与荧光标记的目标RNA结合的方法此前已被用于在RNA凝聚过程中直接检测分子间碱基配对 体外4在此背景下,分裂的 Broccoli 系统可用于报告在特定条件下携带该系统的报告分子之间或携带该系统的 RNA 分子之间的分子间相互作用发生的可能性 体外 聚簇条件。因此,该检测方法用于探究序列环境和环境因素如何影响RNA聚簇样环境中分子间碱基配对的倾向性。
分裂的Broccoli系统由两个互补的RNA序列组成, 顶部 和 底部,可二聚化以重建 Broccoli RNA 适体(图1A–C)18二聚化后,适体结合荧光染料DFHBI-1T,产生绿色荧光(图1A–C)18通过该系统,RNA簇内报告分子互补序列之间的分子间碱基配对程度被证明依赖于RNA的折叠结构。通过比较不同实验条件下DFHBI-1T荧光与RNA水平的比值,可揭示 体外 可在RNA簇内对报告分子介导的分子间碱基配对条件进行定量评估。
该检测方法可补充RNA下拉和凝胶电泳技术,用于研究RNA簇中的分子间碱基配对。然而,强信号的检测可能需要分子拥挤试剂,且检测灵敏度受限于分裂型Broccoli top 和 bottom RNA二聚化及折叠的效率。
方案
本方案提供了实施该检测的逐步操作方法,并讨论了其应用。所使用的试剂和设备列于材料表中。
1. 准备用于的DNA模板 体外 RNA转录
- 在含有分裂型 Broccoli 适配体序列的每个 DNA 模板的 5′ 端添加 T7 启动子序列,用于体外 RNA 转录。可单独使用分裂型 Broccoli 适配体序列(top 和 bottom),或将其插入 T7 启动子下游任意位置,可选择性地与其它感兴趣的 RNA 序列连接。
注意: T7 启动子、分裂型 Broccoli 报告系统及用于扩增 DNA 模板的引物序列见表 1。
注意: T7 RNA 聚合酶强烈倾向于在 +1 位以“G”起始转录。在 +2 和 +3 位存在额外的 G 可提高转录产量19。然而,当下游序列以 G 起始时(如以两个 G 起始的 top 和 bottom 构建体),转录可能在不同位置起始20。因此,转录本可能在 5′ 端携带一个、两个或三个 G(例如 GATCC、GGATCC 或 GGGATCC),这可能影响对设计构建体中碱基配对的解释。 - 使用商业合成的基因片段、质粒或 DNA 片段作为 PCR 模板。如果原始模板不含 T7 启动子,则使用带有 5′ T7 启动子悬垂的正向引物与相应的反向引物配对。
- 在 200 µL PCR 管中配制 50 µL PCR 反应体系,包含 2.5 µL 10 µM 正向引物、2.5 µL 10 µM 反向引物、20 ng DNA 模板、25 µL 2× 高保真预混液以及无核酸酶水。通过移液器反复吹打充分混匀,并在 2,000 × g 离心 2 秒。
- 在 PCR 仪中运行以下程序进行扩增反应:98 °C 预变性 30 秒(1 个循环);98 °C 变性 10 秒,退火温度(优化后)30 秒,72 °C 延伸(每千碱基 30 秒)(35 个循环);72 °C 终延伸 2 分钟(1 个循环)。
注意: 可使用在线工具(如 Tm 计算器)确定优化的退火温度。PCR 产物完成后可保存于 4 °C。 - 取 2 µL PCR 产物与 8 µL 无核酸酶水及 2 µL 6× 上样缓冲液混合,将混合液上样至 1% 琼脂糖凝胶进行电泳分析。
注意: PCR 产物应呈现单一清晰条带。若出现多条带,需切取目标条带并使用凝胶回收试剂盒纯化后再进行后续操作。 - 使用 DNA 纯化试剂盒对 PCR 产物或凝胶回收的 DNA 进行纯化,并用 20–30 µL 无核酸酶水洗脱至 1.5 mL 微量离心管中。
- 使用微量分光光度计测定 DNA 浓度和纯度。确保 A260/A280 比值约为 1.8,A260/A230 比值大于 2.0。
注意: 若 A260/A230 比值低于 2.0,应进行额外纯化步骤。 - 将 DNA 模板储存于 −20 °C,待后续使用。
2. 准备 体外 RNA转录反应
- 使用RNase去污染溶液擦拭工作台面、离心管架和移液器。使用无RNase的滤芯吸头。
- 将T7转录试剂盒中提供的反应缓冲液和核苷酸溶液(ATP、CTP、GTP、UTP)以及UTP-Cy5置于冰上解冻。所有离心管在使用前以2,000 × g 离心2秒。
注意:避免UTP-Cy5暴露于光照下。 - 计算DNA模板中胸腺嘧啶碱基的数量(不包括T7启动子),并确定20 µL转录反应所需的UTP和UTP-Cy5体积。保持不同RNA种类之间的标记密度一致。
注意:例如,若要对含有100个尿嘧啶碱基的RNA进行标记,使其约含3个Cy5标记的尿嘧啶,则加入4.5 µL的1 mM UTP-Cy5和1.9 µL的75 mM UTP。 - 通过混合以下组分配制20 µL转录反应体系:ATP、CTP和GTP各2 µL,计算好的UTP体积(均来自试剂盒)和UTP-Cy5,2 µL 10×反应缓冲液,2 µL酶混合物,200 ng DNA模板,以及无核酸酶水。通过反复吹打充分混匀,并以2,000 × g 离心2秒。
- 在37 °C孵育6小时。
- 加入试剂盒提供的1 µL DNase。通过反复吹打充分混匀,并以2,000 × g 离心2秒。
- 在37 °C继续孵育15分钟。
- 将反应液(约20 µL)转移至1.5 mL离心管中。加入115 µL无核酸酶水和15 µL试剂盒提供的乙酸铵终止液。通过反复吹打充分混匀,并以2,000 × g 离心2秒。
注意:可选用市售RNA纯化试剂盒替代步骤2.9–3.7。 - 加入150 µL酚/氯仿,轻轻混匀。
注意:酚/氯仿操作应在化学通风橱中进行。 - 在4 °C下以16,000 × g 离心10分钟。
- 将上层水相转移至新离心管中。
注意:避免扰动中间相;下层可能因未掺入的染料而呈现蓝色。 - 加入等体积氯仿,充分混匀。
注意:氯仿操作应在化学通风橱中进行。 - 在4 °C下以16,000 × g 离心2分钟。
- 重复步骤2.11–2.13。
- 将水相(约100–150 µL)转移至新离心管中。加入900 µL异丙醇,充分混匀。
- 分装为三份等体积样品至不同的离心管中。
注意:每份样品足以进行多次RNA簇化反应。 - 在−20 °C保存过夜或最长一个月。
3. 纯化 体外 转录的RNA
- 将RNA样品在异丙醇中于4 °C、16,000 × g 离心15分钟。
- 小心移除异丙醇,避免扰动RNA沉淀。
- 加入1 mL用无核酸酶水配制的70%乙醇。
- 在4 °C、16,000 × g 离心2分钟。
- 移除乙醇,并重复步骤3.3–3.4。
- 在最后一次乙醇洗涤时,使用1000 µL移液器吸出大部分乙醇。在台式小型离心机中以2,000 × g 短暂离心2秒,然后用20 µL移液器去除残留的乙醇。
- 将RNA沉淀在室温(RT)下空气干燥1–2分钟。
- 将RNA沉淀重悬于20 µL无核酸酶水中。将样品置于冰上,并避免光照。
- 使用微量分光光度计测定RNA浓度和纯度。确保A260/A280比值约为2.0,A260/A230比值大于2.0。
4. 准备 体外 RNA 聚类反应
注意:根据先前的研究2,4,5,本实验方案中RNA成簇的诱导需要亚精胺和PEG 8000。具体而言,将用无核酸酶水配制的100 mM四盐酸亚精胺储存液分装至多个1.5 mL微量离心管中,并于−20 °C保存。
- 在冰上解冻一管100 mM亚精胺溶液和50% PEG 8000。
注意: 开启后,由于可能降解,50% PEG 8000 应在两个月内使用完毕。 - 要制备 500 µL 新配制的 10× RNA 复性缓冲液,将 50 µL 2M KCl、50 µL 1M MgCl₂ 和 400 µL 无核酸酶水混合均匀。2,50 µL 1M Tris(pH 7.0)和350 µL无核酸酶水。用移液器吹打混匀。2,000 × g离心 × g 在台式微型离心机中离心2秒。
注意: RNA聚类实验当天应配制复性缓冲液。
注意: 步骤 4.3–4.4 取决于实验条件,可根据需要进行调整。本研究中使用的两种RNA聚类条件示例如下。共折叠条件改编自一种将反义寡核苷酸退火至RNA的方法2在此方法中,将RNA混合于盐缓冲液中并共同加热,以促进携带互补序列的RNA之间的分子间碱基配对。相比之下,在分别折叠条件下,每种RNA在混合前单独进行折叠。该条件旨在模拟细胞内RNA在相互作用之前已预先折叠的场景。 - 共折叠
注意: 该条件促进含有特定序列的RNA分子间的碱基配对 顶部 和 底部 序列。它在RNA聚类条件下作为报告分子驱动的分子间碱基配对的阳性对照。- 在一支200 µL的PCR管中,加入各16 pmol的 体外 携带以下之一的转录RNA 顶部 或 底部 序列,2 µL 10× 复性RNA缓冲液,以及无核酸酶水,定容至终体积14 µL。通过反复吹打充分混匀。在2,000离心 × g 在台式微型离心机中离心2秒。
注意: 计算与16 pmol相对应的RNA质量。 - 将RNA样品在90 °C下加热2分钟。
- 立即将样品转移至室温环境,并避光保存。在室温下孵育反应1小时。
- 在一支200 µL的PCR管中,加入各16 pmol的 体外 携带以下之一的转录RNA 顶部 或 底部 序列,2 µL 10× 复性RNA缓冲液,以及无核酸酶水,定容至终体积14 µL。通过反复吹打充分混匀。在2,000离心 × g 在台式微型离心机中离心2秒。
- 分离折叠
- 将RNA样品在90 °C下加热2分钟,然后立即置于冰上至少15分钟。
- 在一支200 µL的PCR管中,加入16 pmol的 体外 携带以下之一的转录RNA 顶部 或 底部 序列,1 µL 10× RNA复性缓冲液,以及无核酸酶水,定容至终体积7 µL。
注意: 计算对应于16 pmol的RNA质量。 - 在室温下避光孵育反应30分钟。
- 将含有 RNA 的样品混合 顶部 和 底部 将序列加入同一PCR管中,用移液器吹打混匀。在2,000离心 × g 在台式微型离心机中离心2秒,室温孵育30分钟。
- 加入6 µL 1:2(v/v)的预混液(含100 mM亚精胺和50% PEG 8000),用移液器上下吹打充分混匀。在2,000 × g下离心 × g 在台式微型离心机中离心2秒。
注意: 50% PEG 8000 黏度较高,移液时应缓慢且小心。 - 加入 2 µL 的 1 mM DFHBI-1T 至反应体系中,用移液器吹打混匀,2,000 × g 离心 × g 在台式微型离心机中离心2秒。反应液应呈现黄绿色。
注意: 从1 mg冻干的DFHBI-1T染料(分子量:320.21)配制20 mM DFHBI-1T储备液,需加入156 µL分子生物学级无水DMSO。将储备液分装至多个微量离心管中,每管分装少量,于-20 °C保存。避免对染料进行反复冻融。使用无核酸酶水将20 mM储备液稀释,新鲜配制1 mM DFHBI-1T工作液,并置于冰上保存。 - 将反应液加入玻璃培养皿盖玻片中。
- 将培养 chamber 置于室温避光环境中,加盖孵育 4 h,以尽量减少蒸发。
5. 成像前准备
- 使用配备适当激光器和物镜的结构光照明显微镜或共聚焦显微镜获取三维图像。
注意:必须使用共聚焦显微镜以最大程度减少非焦平面的杂散光。 - 设置显微镜,对每个感兴趣区域(ROI)在每个z平面先用Cy5通道成像,然后在同一ROI使用GFP通道成像。
- 所有通道的曝光时间设置为500 ms。GFP通道的激光功率设为80%,Cy5通道设为40%。
- 在室温下对反应液滴以外的盖玻片区域进行成像,z轴步长为150 nm。
6. 分子间碱基配对的定量分析
- 将图像导入图像分析软件21。识别 GFP(DFHBI-1T)和 Cy5(RNA)通道。
- 在 RNA 聚集区域内部绘制一个 5 × 5 像素的兴趣区域(ROI),并在同一 z 平面测量两个通道的积分密度。从每幅图像中不同 RNA 聚集区域选择 5–8 个 ROI。
注意:根据相机设置调整 ROI 大小,但在不同实验间保持一致。 - 在反应液滴外部选择 5–8 个 ROI 进行背景测量,并计算两个通道的平均积分密度。
- 使用以下公式计算每个 ROI 的归一化 DFHBI-1T 强度:
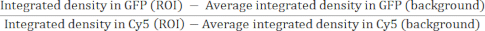
7. 常见问题与故障排除
- 若离心后未观察到RNA沉淀,可能原因包括RNA降解、转录时间不足、聚合酶失活、残留盐分或RNA浓度过低。建议使用无RNase的试剂,延长转录时间,使用新鲜酶,并纯化模板。
- 若未观察到Cy5标记的RNA簇,可能原因包括RNA降解或PEG 8000、UTP-Cy5降解。应使用新鲜试剂并在无RNase条件下操作。
- 若在共折叠条件下未观察到DFHBI-1T信号,可能原因包括染料质量差、Broccoli结构未正确形成或转录本截短。应使用新鲜染料,确保缓冲液成分正确,并通过凝胶分析验证转录本大小。
- 若荧光信号发生漂白,应降低激光功率和曝光时间,减少成像步骤,并在孵育过程中避免样品暴露于光照。
结果
在本示范实验中,该方法的 顶部 和 底部 单独使用RNA报告分子进行碱基配对并形成Broccoli结构的能力首先通过先前描述的方法进行评估 体外 RNA 聚类实验方案4碱基配对之间 顶部 和 底部 生成两个 Broccoli 结构域,每个结构域能够嵌插一个 DFHBI-1T 分子(图1A–C)18,22.
在精胺和PEG 8000诱导RNA成簇后,两种RNA无论单独存在还是共同存在均形成了簇状结构(图1D–Eii)。当单独检测top或bottom RNA时,RNA簇内的DFHBI-1T荧光显著低于共折叠条件下的荧光强度;在共折叠条件下,两种RNA在热变性及复性前已被混合(图1F)。在共折叠条件下,DFHBI-1T(0.1 mM)与top(0.8 µM)和bottom(0.8 µM)的摩尔比估计为125:1:1。这相当于DFHBI-1T相对于潜在Broccoli结构最大数量约有62.5倍的过量。
观察到的低但非零的DFHBI-1T信号 顶部 和 底部 单独表达时,每种报告基因产生的DFHBI-1T荧光均较弱,这与以往的报道一致18. DFHBI-1T 在无 RNA 存在时也表现出极低但可检测到的背景荧光(图1F上述结果共同表明,DFHBI-1T 与 体外 RNA 聚类实验表明,共折叠可增强分子间的碱基配对 顶部 和 底部 RNA
在对RNA强度进行归一化后,共折叠条件下的归一化DFHBI-1T荧光强度达到1.03,显著高于单独的top和bottom RNA(分别为0.054和0.023)(图1D,图1Ei和图1F)。随后检测了将预先分别折叠的top和bottom RNA混合后形成的RNA簇(图1D,图1Eii和图1F)。在此分别折叠条件下,归一化的DFHBI-1T信号为0.031,与阴性对照(单独的top或bottom RNA)中观察到的基础水平相当(图1F)。这些结果表明,共折叠可促进top与bottom RNA之间的分子间碱基配对,而分别折叠则限制了此类相互作用。
top 和 bottom 序列随后被插入到黑腹果蝇(Drosophila melanogaster)shutdown(shu)基因的 3′ 非翻译区(UTR)中,该基因为生殖颗粒 mRNA4,23,24,同时也在其反义链(shuanti)中进行了相应构建。选择 shu 的 3′ UTR 是因为先前的研究表明,该 RNA 在黑腹果蝇中主要以单体形式存在,在 RNA 凝胶实验中即使在高摩尔浓度下也不会发生二聚化4,24。此外,shu-top 和 shu-bottom 在 RNA 凝胶中不会形成同源二聚体4,从而可以更直接地评估 top 与 bottom 之间的分子间相互作用,以及来自 shu 的侧翼序列对这些相互作用的影响。
shu-top、shu-bottom、shuanti-top 和 shuanti-bottom 的 DNA 模板列于表 2中。top 和 bottom 序列被插入至 shu 或 shuanti 3′ UTR 的中部,这种设计需要进行结构重塑以促进相互作用,并更真实地模拟生理条件下的 RNA–RNA 相互作用,因为在天然转录本中,相互作用区域通常嵌入在 RNA 序列内部4。
在诱导RNA成簇后,单独存在的shu-top、shu-bottom、shuanti-top和shuanti-bottom均表现出极低的DFHBI-1T荧光信号,与单独的top和bottom相似(图2A和2B)。一致地,shu-top与shu-bottom共折叠,或shuanti-top与shuanti-bottom共折叠,所产生的DFHBI-1T信号均高于各自单独折叠的情况(图2Ci和Cii)。在对RNA强度及阴性对照(定义为每种RNA单独存在时归一化的DFHBI-1T信号的平均值)进行归一化后,shu-top与shu-bottom共折叠导致归一化的DFHBI-1T荧光信号增加了5.63倍(图2Di和2Dii)。相比之下,单独折叠仅产生1.04倍的增加,与shu-top和shu-bottom各自单独存在时观察到的基础水平相当。在共折叠和单独折叠条件下,shuanti-top与shuanti-bottom也表现出类似的趋势(图2Di和2Dii)。这些结果表明,单独折叠不会促进shu-top与shu-bottom之间,或shuanti-top与shuanti-bottom之间的分子间碱基配对,而共折叠则增强了这些相互作用,这可能是由于插入的报告序列所致。
为了检测 shu 和 shuanti 是否能够发生碱基配对,将 shu-top 与 shuanti-bottom 混合,并将 shuanti-top 与 shu-bottom 混合。在共折叠和分别折叠条件下,这两种组合均表现出比 shu-top 与 shu-bottom 或 shuanti-top 与 shuanti-bottom 更高的 DFHBI-1T 荧光信号(图 2Ci 和 2Cii)。归一化后,shu-top 与 shuanti-bottom 以及 shuanti-top 与 shu-bottom 在共折叠条件下的 DFHBI-1T 荧光分别增强了 61.86 倍和 82.60 倍(图 2Di 和 2Dii)。相比之下,在分别折叠条件下,其荧光仅分别增强了 2.69 倍和 4.94 倍(图 2Di 和 2Dii)。尽管显著低于共折叠条件下的增强倍数,但这些数值仍高于 shu-top 与 shu-bottom 或 shuanti-top 与 shuanti-bottom 的结果(分别为 1.04 和 1.16 倍)。
综上所述,这些结果表明,携带额外互补序列的报告基因比不携带此类序列的报告基因具有更强的碱基配对能力。在共折叠条件下,这种效应进一步增强,因为共折叠条件可促进分子间的相互作用。
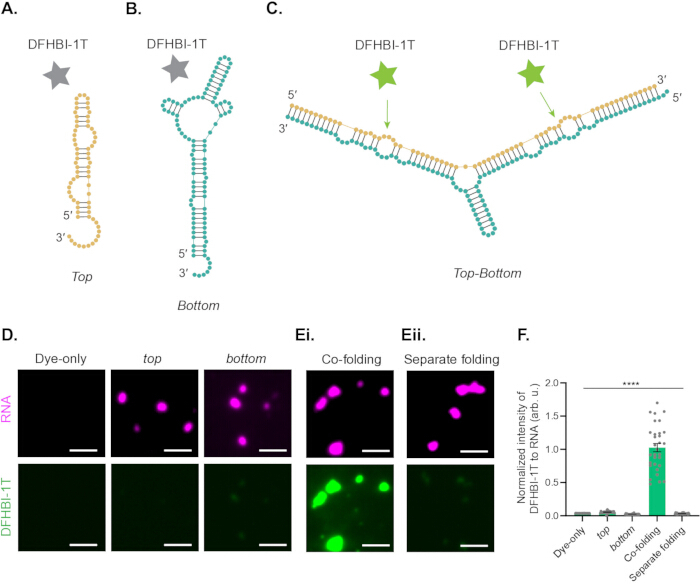
图1:预测的二级结构 顶部 和 底部 RNA及其分子间碱基配对的定量分析 体外 RNA簇 (A–B) 二级结构的示例 顶部 (A)和 底部 (B) 根据 RNAfold 预测结果单独折叠25单独折叠时 顶部 和 底部 不要重悬 Broccoli 适体,且 DFHBI-1T(灰色星号)产生极低的荧光。 (C) 碱基配对二级结构示例 顶部 和 底部 RNAs,由 RNAcofold 预测得出25. 两条RNA之间的分子间碱基配对重建了两个Broccoli结构臂18,使DFHBI-1T结合,从而产生强烈的绿色荧光(绿色星号)。 (DDFHBI-1T 单独成像(仅染料对照)及 体外 RNA簇(品红色)由 顶部 和 底部 存在DFHBI-1T(绿色)时的RNA (Ei, ii) 体外 RNA簇(品红色)由 顶部 和 底部 共折叠条件下的RNAi)以及独立折叠(ii在存在DFHBI-1T(绿色)的条件下。对于D和E图,RNA以Cy5标记,使得平均每三个RNA中约有一个含有单个Cy5标记的尿嘧啶,其余三分之二未标记。图像表示使用150 nm步长采集的27个切片的平均Z投影,所有条件下各通道均采用相同的曝光时间和激光功率。DFHBI-1T荧光强度在不同条件下归一化至相同的强度范围。比例尺:2 µm。 (FDFHBI-1T 荧光强度根据 Cy5 荧光测定的 RNA 丰度进行归一化处理。数据以均值 ± 标准误(SEM)表示。双尾 t 检验的 P 值(**** 对比共折叠组):1.0 × 10⁻22 (仅染料),2.3 × 10⁻22 (顶部), 4.9 × 10⁻23 (底部),以及 7.0 × 10⁻23 (独立折叠)。染料单独条件为30个区域,其余各条件为30–31个RNA簇。 请点击此处查看此图的放大版本。
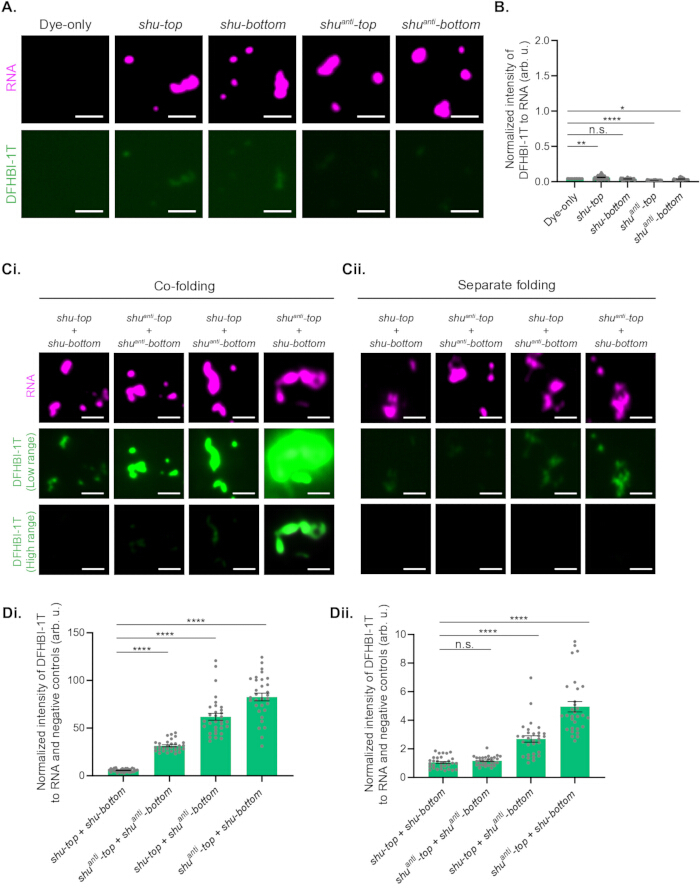
图2:分子间碱基配对的代表性图像及定量分析 shu 和 shu抗 携带 顶部 和 底部 报告基因。 (A) DFHBI-1T单独成像(仅染料对照)及 体外 RNA簇(品红色)由 shu-top, shu-bottom, shu抗-顶部,以及 shu抗底部 存在DFHBI-1T(绿色)情况下的RNA。RNA用Cy5标记,使得平均每条RNA在转录过程中掺入三个UTP-Cy5尿嘧啶。 体外 转录。图像表示在所有条件下,使用相同曝光时间和激光功率,以150 nm步长采集的27个切片的平均Z投影。DFHBI-1T荧光强度在不同条件下被归一化至相同的强度范围。比例尺:2 µm。 (BDFHBI-1T 荧光强度根据 Cy5 荧光测定的 RNA 丰度进行归一化处理。数据以均值 ± 标准误表示。n.s.,无显著性差异。双尾 t 检验(相对于仅染料对照组)的 P 值:3.1 × 10⁻3 (**; shu-top), 1.7 × 10⁻1 (无显著性; shu-bottom), 2.9 × 10⁻35 (***; shu抗-顶部)和 2.2 × 10⁻2 (; shu抗底部n = 30 个区域(仅染料条件)以及所有其他条件下的 30–32 个 RNA 聚集体。 (Ci,ii) 图像 体外 RNA簇(品红色)由混合形成 shu-top 与 shu-bottom, shu抗-顶部 与 shu抗底部, shu-top 与 shu抗底部,以及 shu抗顶部 与 shu-bottom 在DFHBI-1T(绿色)存在下共折叠时i)以及独立折叠(ii)条件下获取的图像,代表了以150 nm步长采集的27个切片的平均Z投影图像,所有条件下各通道均采用相同的曝光时间和激光功率。对于低强度范围,DFHBI-1T荧光被归一化至与 图1D–Eii 和 图2A对于高信号范围,各图中 DFHBI-1T 荧光强度被归一化至较高但一致的强度范围 Ci 和 Cii比例尺:2 µm。 (二,二) DFHBI-1T 荧光强度首先根据 RNA 强度进行归一化,然后相对于阴性对照进行归一化,阴性对照定义为每种 RNA 单独存在时的平均归一化 DFHBI-1T 信号。数据以均值 ± 标准误表示。n.s.,无显著性差异。i双尾 t 检验的 P 值(**** 对比 vs. shu-top + shu-bottom): 1.1 × 10⁻31 (shu抗顶部 + shu抗底部), 1.1 × 10⁻22 (shu-top + shu抗底部),以及 4.3 × 10⁻27 (shu抗-顶部 + shu-bottom). (ii双尾 t 检验的 P 值(相对于 shu-top + shu-bottom): 2.2 × 10⁻1 (无显著性; shu抗顶部 + shu抗底部), 1.9 × 10⁻9 (; shu-top + shu抗底部),以及 1.3 × 10⁻15 (; shu抗-顶部 + shu-bottom)。所有条件下 n = 29–32 个 RNA 聚集区。 请点击此处以查看此图的放大版本。
| 名称 | 序列 (5′-3′) |
| T7 promoter | TAATACGACTCACTATAG |
| top | GGATGATGGAGACGGTCGGGTC CAGGATCATTCATGGCAAGAGAC GGTCGGGTCCAGATGATGCGGAT |
| bottom | GGATCCGCATCATCTGTCGAGTAG AGTGTGGGCTCTTGCCATGTGTAT GTGGGTCAACCCACATACTCTGAT GATCCTGTCGAGTAGAGTGTGGGC TCCATCATCC |
| top-T7 forward | TAATACGACTCACTATAG GGATGATGGAGACGGTCG |
| top-Reverse | ATCCGCATCATCTGGACCC |
| bottom-T7 forward | TAATACGACTCACTATAGG GATCCGCATCATCTGTCGA |
| bottom-Reverse | GGATGATGGAGCCCACACT |
| 正向引物包含一个T7启动子序列突出端(加粗),后接靶向RNA 5′端的序列。 | |
表1:用于T7转录的T7启动子、分裂型Broccoli报告基因及引物的序列。 所列出的引物用于生成体外转录top和bottom RNA的DNA模板,这些RNA随后用于本研究中描述的RNA聚类实验。
| 名称 | 序列 (5′-3′) | ||
| shu-top | GCTTACTAAGAAGCCCCAGTATTTCATATTTCATATCTTACTCAAAAAGGATGATGGAG ACGGTCGGGTCCAGGATCATTCATGGCAAGAGACGGTCGGGTCCAGATGATGCGGA TAAAAAACATACCAAACATGAAGGTAATTTAGTTCCAAGTTCTAGAAGAGCAGTATCATT AGTTATTTCGATATTAGCAACATGAATATCGTAAGCCCAGACGAATGTTAACGTTTTTTGT TATTTAGAGCAACGTAGACCTTAAGTTGTTAAAAACCACAATAAAAGTAATGCACGGCAGCTACAT | ||
| shu-bottom | GCTTACTAAGAAGCCCCAGTATTTCATATTTCATATCTTACTCAAAAAGGATCCGCATCATC TGTCGAGTAGAGTGTGGGCTCTTGCCATGTGTATGTGGGTCAACCCACATACTCTGATG ATCCTGTCGAGTAGAGTGTGGGCTCCATCATCCAAAAAACATACCAAACATGAAGGTAAT TTAGTTCCAAGTTCTAGAAGAGCAGTATCATTAGTTATTTCGATATTAGCAACATGAATATCG TAAGCCCAGACGAATGTTAACGTTTTTTGTTATTTAGAGCAACGTAGACCTTAAGTTGTTAA AAACCACAATAAAAGTAATGCACGGCAGCTACAT | ||
| shuanti-top | ATGTAGCTGCCGTGCATTACTTTTATTGTGGTTTTTAACAACTTAAGGTCTACGTTGCTCTAA ATAACAAAAAACGTTAACATTCGTCTGGGCTTACGATATTCATGTTGCTAATATCGAAATAAC TAATGATACTGCTCTTCTAGAACTTGGAACTAAATTACCTTCATGTTTGGTATGTTTTTTGGA TGATGGAGACGGTCGGGTCCAGGATCATTCATGGCAAGAGACGGTCGGGTCCAGATGAT GCGGATTTTTTGAGTAAGATATGAAATATGAAATACTGGGGCTTCTTAGTAAGC | ||
| shuanti-bottom | ATGTAGCTGCCGTGCATTACTTTTATTGTGGTTTTTAACAACTTAAGGTCTACGTTGCTCTA AATAACAAAAAACGTTAACATTCGTCTGGGCTTACGATATTCATGTTGCTAATATCGAAATA ACTAATGATACTGCTCTTCTAGAACTTGGAACTAAATTACCTTCATGTTTGGTATGTTTTTT GGATCCGCATCATCTGTCGAGTAGAGTGTGGGCTCTTGCCATGTGTATGTGGGTCAAC CCACATACTCTGATGATCCTGTCGAGTAGAGTGTGGGCTCCATCATCCTTTTTGAGTAA GATATGAAATATGAAATACTGGGGCTTCTTAGTAAGC | ||
| shu-top 或 shu-bottom-T7 正向 | TAATACGACTCACTATAGGGCTTACTAAGAAGCCCCAGT | ||
| shu-top 或 shu-bottom- 反向 | ATGTAGCTGCCGTGCATTAC | ||
| shuanti-top 或 shuanti-bottom-T7 正向 | TAATACGACTCACTATAGGGATGTAGCTGCCGTGCATTA | ||
| shuanti-top 或 shuanti-bottom- 反向 | GCTTACTAAGAAGCCCCAGTA | ||
| 正向引物包含一个T7启动子序列悬突(加粗),后接靶向RNA 5′端的序列。在T7启动子与shu-top和shu-bottom或shuanti-top和shuanti-bottom之间分别加入了1至2个额外的G。这是因为+2和+3位点上的G可显著提高转录产量19。然而,这些额外的G可能会影响对设计构建体中碱基配对的解释。参见步骤1.1中的说明。 | |||
表2:序列 shu-top, shu-bottom, shu抗-顶部, shu抗底部以及用于扩增T7转录DNA模板的引物。 所列引物用于扩增DNA模板 体外 转录 shu 和 shu抗 携带以下的RNA 顶部 和 底部 报告基因,随后用于本研究中所述的RNA聚类分析。
讨论
在本研究中,分裂的 Broccoli 适体系统18 适用于直接可视化和定量分析分子间碱基配对 体外 RNA 聚类条件。该方法可实现对不同分子间碱基配对的评估 体外 条件并补充下游生化检测,例如使用碱基配对交联剂的RNA下拉实验15,16,17 凝胶电泳4,6,7与这些缺乏空间分辨率、无法区分RNA簇内与簇外碱基配对的生化方法不同,该方法能够直接在空间上可视化这些相互作用在簇内的分布。具体而言,它可实现对RNA簇内碱基配对的实时监测 顶部 和 底部 在定义的RNA成簇条件下,对RNA或携带这些报告分子的RNA进行分析。此外,该方法无需交联或RNA提取,即可实时定量读取报告RNA之间的碱基配对情况,从而最大限度地减少样品损失和缓冲液不相容问题。
使用荧光显微镜,通过DFHBI-1T信号定量检测了分裂型Broccoli适体序列之间的分子间碱基配对,证明了DFHBI-1T与该体系的兼容性 体外 RNA 聚类实验方案。在共折叠与分别折叠条件下观察发现,分子间碱基配对的程度因 RNA 折叠条件的不同而有所差异(图1F 和 图 2Di–2Dii这些发现表明,RNA折叠条件会显著影响RNA分子间的相互作用,在解释实验结果时应予以充分考虑。
该实验还提供了一个平台,用于评估位于top和bottom报告基因两侧的序列是否能够增强分子间碱基配对,这一点已通过shu序列得到验证。当shu-top与shuanti-bottom配对,或shuanti-top与shu-bottom配对时,DFHBI-1T荧光强度高于shu-top与shu-bottom配对,或shuanti-top与shuanti-bottom配对的情况,表明涉及shu与shuanti的分子间相互作用可进一步增强Broccoli信号。这些结果表明,仅由top和bottom报告基因共折叠所产生的DFHBI-1T荧光信号并未达到该检测方法的上限。
本实验中测得的 DFHBI-1T 荧光值具有较宽的动态范围,从单独折叠条件下 shu-top 与 shu-bottom 组合的 1.04 倍增加,到共折叠条件下 shuanti-top 与 shu-bottom 组合的 82.60 倍增加。该动态范围使得能够检测携带这些报告分子的 RNA 之间分子间 RNA 相互作用的差异。
本方案中有多个步骤对于成功检测RNA簇中分裂型Broccoli top 与 bottom RNA之间的分子间RNA碱基配对至关重要。应使用新鲜分装的PEG 8000以可靠地诱导RNA成簇,且应尽量减少反复冻融循环,因为该试剂不稳定。DFHBI-1T应分装并保存于−20 °C,以维持其荧光特性。体外转录产物在成簇前应通过变性RNA凝胶电泳进行分析,以确认转录本大小正确。此外,保持无RNase的环境(包括洁净的工作环境和成像腔室)至关重要,因为RNA液滴在成像前需在室温下孵育较长时间。
该实验方法的一个局限性在于,DFHBI-1T 仅特异性报告由top和bottom序列介导的分子间碱基配对。发生在其他RNA区域的分子间碱基配对事件则无法被检测。此外,由top和bottom链之间碱基配对形成的Broccoli结构在热力学上是稳定的26,可能无法完全反映较弱或瞬时的相互作用,例如在Drosophila生殖颗粒mRNA簇中观察到的分散且暴露于表面的碱基所形成的相互作用4。
此外,分子间的 RNA–RNA 相互作用可能具有广泛的非特异性,且位于top和bottom报告序列两侧的序列可能会影响 DFHBI-1T 的荧光信号。这些侧翼区域可能直接与报告序列相互作用,抑制 Broccoli 的形成或改变 RNA 结构,从而影响携带报告序列的 RNA 分子之间的相互作用。因此,该检测方法反映的是 RNA 结构、top与bottom之间的碱基配对、侧翼序列之间的相互作用,以及侧翼序列与报告序列之间相互作用的综合效应。
该检测方法为未来的研究提供了机会。例如,改变报告基因两侧的RNA序列、引入RNA解旋酶或分子伴侣,或改变盐浓度条件,均可能影响RNA簇中的分子间碱基配对。这些效应可通过在共折叠和分别折叠条件下测量DFHBI-1T信号来评估。鉴于类似的RNA适体已在细胞、细菌和酵母中得到应用26,27,28,29,30,该方法可拓展应用于 细胞内 用于研究 mRNA 簇中分子间碱基配对的系统或模式生物。
披露
作者声明无竞争利益。
致谢
在本研究的撰写过程中,作者使用 ChatGPT 5.2 来提升文稿的可读性和语言表达。本研究由授予 T.T. 的 NIGMS R35GM142737 基金资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 M MgCl₂2 | Millipore Sigma | M1028 | 用于10的制备× RNA复性缓冲液 |
| 2M KCl | 赛默飞世尔科技 | AM9640G | 用于制备10× RNA复性缓冲液 |
| 50% PEG 8000 | NEB | M0204S | T4 RNA连接酶试剂盒组分;用作分子拥挤试剂以诱导RNA聚集。 |
| 无水乙醇,200 proof | 赛默飞世尔科技 | T038181000CS | 用于配制RNA洗涤缓冲液。 |
| 酸性酚:氯仿,pH 4.5(含IAA,125:24:1) | 赛默飞世尔科技 | AM9722 | 用于RNA纯化。 |
| 氨基烯丙基-UTP-Cy5 | Jena Bioscience | NU-821-CY5 | 用于体外转录过程中的RNA标记。 |
| 带腔室的盖玻片 | 赛默飞世尔科技 | 155409PK | 用于RNA成簇反应的成像室 |
| 氯仿 | 赛默飞世尔科技 | C298-500 | 用于RNA纯化。 |
| DFHBI-1T | 卢塞纳 | 410 | 用作检测 Broccoli RNA 适体的荧光团。 |
| DMSO | 赛默飞世尔科技 | D12345 | 无水;分子生物学级;用于 DFHBI-1T 制备。 |
| DNA 纯化 & 浓缩试剂盒 | Zymo | D4014 | 用于T7转录前DNA产物的纯化。 |
| DNA凝胶回收试剂盒 | NEB | T1020L | 用于凝胶回收。 |
| 干浴器 | Benchmark Scientific | BSH1001 | 用于加热微量离心管中的RNA样品。 |
| FIJI/ImageJ | 美国国立卫生研究院(National Institutes of Health) | N/A | 开源图像分析软件;用于荧光强度定量和感兴趣区域(ROI)分析。 |
| 凝胶电泳系统 | 赛默飞世尔科技 | B2-BP | 用于进行DNA凝胶电泳。 |
| 上样缓冲液,紫色(6×) | NEB | B7024S | 用作DNA凝胶电泳的上样染料。 |
| 即时结构光照明显微镜 | VisiTech International | VT-iSIM | 能够对GFP和Cy5荧光进行成像的共聚焦显微镜 |
| 异丙醇 | 赛默飞世尔科技 | 327272500 | 用于RNA纯化。 |
| MEGAscript T7 转录试剂盒 | 赛默飞世尔科技 | AM1334 | 用于体外T7转录。试剂盒包含核苷酸溶液(ATP、CTP、GTP、UTP)和DNase。 |
| 微量离心管 | Genesee Scientific | 22-284 | 1.5 mL离心管;用于储存体外转录用DNA模板、RNA产物以及亚精胺和DFHBI-1T的分装样品。 |
| 小型离心机 | Benchmark Scientific | Z763845 | 用于短暂离心。 |
| Nanodrop One 分光光度计 | 赛默飞世尔科技 | 13-400-518 | 用于测量DNA和RNA浓度与质量的微量分光光度计 |
| 无核酸酶水 | 赛默飞世尔科技 | AM9937 | 用于RNA沉淀的重悬、RNA洗涤和复性缓冲液的配制,以及精胺和DFHBI-1T的稀释。 |
| 在线摩尔质量计算器 | New England Biolabs (NEB) | N/A | 用于根据摩尔量(例如 pmol)计算 RNA 质量的在线工具 |
| 聚丙烯PCR管 | 康宁 | 3745 | 200 μ用于PCR、体外转录和RNA成簇反应的PCR管 |
| PowerPac Basic 电源供应器 | Bio-rad | 1645050 | 用于进行DNA凝胶电泳。 |
| Proflex PCR热循环仪 | 赛默飞世尔科技 | 44-840-73 | 用于PCR、体外转录以及在PCR管中加热RNA样本。 |
| Q5 高保真 2× 预混液 | NEB | M0492S | 用作 2× 高保真预混液 |
| 冷藏离心机 | Eppendorf | 5424R | 用于RNA纯化和沉淀。 |
| RNase 去污染溶液 | 赛默飞世尔科技 | AM9782 | 用于清洁实验台和表面,以尽量减少RNase污染。 |
| 亚精胺 四盐酸盐 | Sigma-Aldrich | S1141-1G | 用于诱导RNA聚类。 |
| Tris碱 | 默克生命科学 | T1503-1KG | 用于配制 Tris 缓冲液(pH 7.0)。 |
| 超纯琼脂糖 | 赛默飞世尔科技 | 16500500 | 用于DNA凝胶电泳。 |
参考文献
- Jain, A., Vale, R. D. RNA phase transitions in repeat expansion disorders. Nature. 546, 243-247 (2017).
- Langdon, E. M., et al. mRNA structure determines specificity of a polyQ-driven phase separation. Science. 360, 922-927 (2018).
- Tauber, D., et al. Modulation of RNA condensation by the DEAD-box protein eIF4A. Cell. 180, 411-426 (2020).
- Tian, S., et al. Controlling intermolecular base pairing in Drosophila germ granules by mRNA folding and its implications in fly development. Nat Commun. 16, 8135 (2025).
- Van Treeck, B., et al. RNA self-assembly contributes to stress granule formation and defining the stress granule transcriptome. Proc Natl Acad Sci U S A. 115, 2734-2739 (2018).
- Bose, M., Rankovic, B., Mahamid, J., Ephrussi, A. An architectural role of specific RNA–RNA interactions in oskar granules. Nat Cell Biol. 26, 1934-1942 (2024).
- Jambor, H., Brunel, C., Ephrussi, A. Dimerization of oskar 3′ UTRs promotes hitchhiking for RNA localization in the Drosophila oocyte. RNA. 17, 2049-2057 (2011).
- Majumder, S., Coupe, S., Fakhri, N., Jain, A. Sequence-encoded intermolecular base pairing modulates fluidity in DNA and RNA condensates. Nat Commun. 16, 4258 (2025).
- Nguyen, H. T., Hori, N., Thirumalai, D. Condensates in RNA repeat sequences are heterogeneously organized and exhibit reptation dynamics. Nat Chem. 14, 775-785 (2022).
- Poudyal, R. R., et al. RNA sequence and structure control assembly and function of RNA condensates. RNA. 27, 1589-1601 (2021).
- Smola, M. J., et al. Selective 2′-hydroxyl acylation analyzed by primer extension and mutational profiling (SHAPE-MaP) for direct, versatile and accurate RNA structure analysis. Nat Protoc. 10, 1643-1669 (2015).
- Zubradt, M., et al. DMS-MaPseq for genome-wide or targeted RNA structure probing in vivo. Nat Methods. 14, 75-82 (2017).
- Nguyen, H. T., Hori, N., Thirumalai, D. Theory and simulations for RNA folding in mixtures of monovalent and divalent cations. Proc Natl Acad Sci U S A. 116, 21022-21030 (2019).
- Maity, H., Nguyen, H. T., Hori, N., Thirumalai, D. Odd–even disparity in the population of slipped hairpins in RNA repeat sequences with implications for phase separation. Proc Natl Acad Sci U S A. 120, e2301409120 (2023).
- Liao, J. N., et al. Characterization of intermolecular base pairing using AMT crosslinking in mammalian cells during oxidative stress. bioRxiv. , (2025).
- Kirsch, R., et al. A streamlined protocol for the detection of mRNA–sRNA interactions using AMT-crosslinking in vitro. Biotechniques. 67, 178-183 (2019).
- Aw, J. G., et al. In vivo mapping of eukaryotic RNA interactomes reveals principles of higher-order organization and regulation. Mol Cell. 62, 603-617 (2016).
- Alam, K. K., et al. A fluorescent split aptamer for visualizing RNA–RNA assembly in vivo. ACS Synth Biol. 6, 1710-1721 (2017).
- Conrad, T., et al. Maximizing transcription of nucleic acids with efficient T7 promoters. Commun Biol. 3, 439 (2020).
- Imburgio, D., Rong, M., Ma, K., McAllister, W. T. Studies of promoter recognition and start site selection by T7 RNA polymerase using a comprehensive collection of promoter variants. Biochemistry. 39, 10419-10430 (2000).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9, 671-675 (2012).
- Shanaa, O. A., Rumyantsev, A., Sambuk, E., Padkina, M. In vivo production of RNA aptamers and nanoparticles: problems and prospects. Molecules. 26, (2021).
- Rangan, P., DeGennaro, M., Jaime-Bustamante, K., Coux, R. X., Martinho, R. G., et al. Temporal and spatial control of germ-plasm RNAs. Curr Biol. 19, 72-77 (2009).
- Trcek, T., et al. Sequence-independent self-assembly of germ granule mRNAs into homotypic clusters. Mol Cell. 78, 941-950 (2020).
- Lorenz, R., et al. ViennaRNA package 2.0. Algorithms Mol Biol. 6, 26 (2011).
- Filonov, G. S., et al. Broccoli: rapid selection of an RNA mimic of green fluorescent protein by fluorescence-based selection and directed evolution. J Am Chem Soc. 136, 16299-16308 (2014).
- Song, W., Strack, R. L., Svensen, N., Jaffrey, S. R. Plug-and-play fluorophores extend the spectral properties of Spinach. J Am Chem Soc. 136, 1198-1201 (2014).
- Guet, D., et al. Combining Spinach-tagged RNA and gene localization to image gene expression in live yeast. Nat Commun. 6, 8882 (2015).
- You, M., Litke, J. L., Jaffrey, S. R. Imaging metabolite dynamics in living cells using a Spinach-based riboswitch. Proc Natl Acad Sci U S A. 112, E2756-E2765 (2015).
- Zinskie, J. A., Roig, M., Janetopoulos, C., Myers, K. A., Bruist, M. F. Live-cell imaging of small nucleolar RNA tagged with the broccoli aptamer in yeast. FEMS Yeast Res. 18, (2018).
重印与许可
