本实验方案旨在实现对Riboglow探针进行定量的荧光寿命测量,从而建立可重复的体外、活体哺乳动物细胞以及三维细胞模型中的RNA成像工作流程。我们概述了样品制备、探针递送、数据采集以及定量分析的工作流程,以提取无偏倚的荧光寿命测量结果。
方法文章
表征 Riboglow 探针 体外 作为活体哺乳动物细胞及三维细胞模型中荧光寿命成像的基础
* These authors contributed equally
† These authors contributed equally
本文内容
摘要
摘要
人类基因组中近80%的序列可转录为RNA,而编码蛋白质的序列不足2%,表明大多数哺乳动物转录本为非编码RNA,并参与多种调控过程。因此,在活体哺乳动物细胞系统中对RNA分子进行定量感知与可视化,对于理解RNA的动态行为和相互作用至关重要,但在技术上仍具挑战性,尤其是在复杂的细胞环境中。Riboglow是一种可遗传编码的RNA生物传感器,其包含一段短RNA适体,可结合小分子探针,产生可由荧光寿命成像显微镜(FLIM)检测的可量化荧光寿命开启信号。本文提供了一套Riboglow-FLIM的详细操作流程,包括样品制备、图像采集以及FLIM数据集的定量分析。本实验方案旨在实现利用Riboglow在受控环境及活细胞中基于荧光寿命的定量RNA检测。该方案已通过验证 体外,用于测量依赖RNA的寿命变化,以及在活体哺乳动物细胞中建立荧光寿命成像(FLIM)数据采集、感兴趣区域选择和亚细胞分析。成功实施该方法需要严格控制实验和采集参数。文中重点强调了可重复实施的关键注意事项。综上,本实验方案为Riboglow-FLIM技术的实施及在活细胞中对RNA可视化进行定量评估提供了实用参考。
引言
近年来,随着对RNA在细胞功能中作用的理解不断深入,人们越来越需要在活细胞中可视化RNA,特别是在疾病状态下。然而,由于天然存在的RNA不具有荧光特性,因此必须借助经过工程化设计的标记系统,通常还需结合外源性荧光探针。为此,已开发出多种RNA成像技术,以实现对活体系统中RNA定位、动态变化及其相互作用的可视化观察。
一类主要的RNA成像方法依赖于基因编码的标签。荧光团-适配体系统和基于蛋白质的标记策略,例如MS2噬菌体衣壳蛋白(MCP)系统,至今仍被广泛使用1,2。在MS2系统中,RNA茎环结构可被与荧光蛋白融合的噬菌体衣壳蛋白结合,从而在活细胞中追踪转录本。尽管该方法具有实用性,但其需要相对较大的RNA标签以及额外蛋白组分的表达,可能干扰RNA的天然行为1,2,3。荧光团适配体系统包括Spinach4及其后续变体如Broccoli5、Corn6、Mango7和Pepper8,可在配体结合后直接激活荧光,且标签尺寸更小。然而,这些系统在复杂的细胞环境中可能面临信号强度有限、背景荧光较高以及多重检测困难等问题3。
其他策略包括荧光团-淬灭剂系统和基于杂交的方法。荧光团-淬灭剂系统(如 RhoBAST)在 RNA 结合后因淬灭作用被破坏而产生荧光,但可能存在背景信号以及对探针浓度敏感的问题3,9。基于杂交的 RNA 成像方法(如 smFISH 和分子信标)具有高特异性,但需要递送探针,且由于结合动力学和脱靶相互作用,通常在长期活细胞成像中受到限制10,11,12。总体而言,这些方法凸显了活细胞 RNA 成像中的关键挑战3,13,14。尽管已有诸多进展,在复杂的生物系统中,仍缺乏基于定量荧光寿命 RNA 成像的标准化工作流程。
Riboglow 旨在克服上述诸多局限。Riboglow 是一种基因编码的 RNA 标记系统,该系统将一段短的源自核糖开关的 RNA 适体“标签”与一种合成的小分子钴胺素(Cbl)-荧光团“探针”相结合,从而实现对活细胞 RNA 的可视化15。天然淬灭剂 Cbl 在与标签结合后,会与荧光团在空间上分离,从而产生可量化的荧光强度“开启”信号15。将 Riboglow 技术拓展至荧光寿命成像显微术(FLIM)后发现,其读数在很大程度上不受荧光团浓度和激发光强度的影响,因而能够缓冲探针递送差异和不同操作者之间的变异16,17。更重要的是,改变 RNA 适体可产生独特的荧光寿命,这一点可通过 FLIM 直观呈现16。这些正交的荧光寿命实现了多重 RNA 成像,使得仅用一种荧光团即可同时可视化两种 RNA16。该平台已在多种哺乳动物模型中得到验证,包括 U-2 OS、HeLa、MDA-MB-231 和 HOS 细胞,并实现了 ACTB mRNA 与 NORAD lncRNA 的同步可视化15,16,17。最近,Riboglow 还被用于活体动物胚胎中的 RNA 可视化18。综上所述,这些研究确立了 Riboglow 作为一种紧凑且多功能的定量多重 RNA 成像系统。
在生物系统中,由于荧光寿命成像显微技术(FLIM)对局部分子环境具有高敏感性,并且对实验条件的变异具有相对较强的抗干扰能力,因此已被广泛应用于研究活体系统中的分子相互作用、代谢过程以及细胞动态变化19。FLIM通过测量荧光样品中激发态的衰减速率来实现,通常采用时间相关单光子计数(TCSPC)方法。TCSPC记录样品被激光激发后,发射光子到达探测器的时间间隔,并将采集到的光子寿命数据汇总为每次测量中光子到达时间的分布。基于寿命的成像技术具有重要优势,可降低对系统中荧光生成部分浓度的依赖性,包括细胞内探针的负载量、RNA表达水平以及光路差异等因素的影响。然而,FLIM实验在概念和操作上均具有较高难度,需要对光子采集、拟合模型以及分析流程进行精确控制。
本文介绍了Riboglow-FLIM的详细实验方案,涵盖样品制备、图像采集以及荧光寿命数据定量分析的工作流程。本研究旨在建立一种可在不同生物系统中重复使用的定量Riboglow-FLIM成像工作流程。Riboglow-FLIM最适合用于定量比较,需配备专业的FLIM硬件及分析技术。本方案已通过验证 体外,其中测量了依赖RNA的寿命变化,并在活体哺乳动物细胞和三维细胞系统中建立了基于Riboglow探针的荧光寿命成像显微镜(FLIM)数据采集、感兴趣区域选择及定量寿命提取方法。本方案为建立定量且无偏倚的FLIM数据分析所需的工作流程与基本原理奠定了重要基础,有助于推动Riboglow-FLIM及其他基于FLIM系统的后续应用。文中重点阐述了实验设计中的关键选择、无偏数据采集方法以及FLIM数据获取与分析过程中常见的挑战。尽管已有研究报道通过转染携带Riboglow标记的构建体实现细胞内RNA检测,但尚无研究提供涵盖二维与三维系统的逐步数据采集与分析操作流程。本研究整体为将Riboglow-FLIM作为活细胞RNA成像工具的应用提供了实用技术资源。
方案
1. RNA 的制备与纯化
- 组装 体外 按照制造商说明书中的要求,在无菌的1.6 mL微量离心管中加入转录反应组分 体外 RNA合成试剂盒
注意:本实验所用的RNA是使用TranscriptAid T7高产转录试剂盒(Thermo Fisher Scientific)合成的。RNA合成可采用任何 established 实验方案进行,包括其他市售试剂盒,如先前研究所证实的那样。17,20,21.- 简而言之,将转录反应缓冲液、NTPs、酶混合物、模板DNA和无核酸酶水混合,总体积为20 µL。
- 将试管及内容物置于37 °C培养箱中孵育至少4小时,最长可过夜。使用RNA纯化柱,按照RNA纯化试剂盒制造商说明书中的步骤纯化合成的RNA。
注意:本实验所用的RNA纯化方案为Monarch RNA Cleanup Kit(New England Biolabs)。RNA纯化可采用任何已建立的方案,只要能获得纯化的RNA(此处定义为A260/A230和A260/A280比值均高于2.0),包括其他市售试剂盒,如先前研究所证实的那样。17,20,21所有用于RNA柱纯化的离心步骤均为16,000 x g离心1分钟 g 除非另有说明。- 简言之,用无核酸酶水将合成的RNA总体积补至50 µL,然后加入100 µL结合缓冲液,再加入150 µL 100%乙醇。
- 将全部300 µL样品加入柱中,并插入收集管。离心柱子,弃去穿流液。
- 向柱中加入 500 µL 洗涤缓冲液,离心。弃去穿流液。
- 重复步骤 1.2.3 再额外一次。
- 从层析柱上取下收集管,换上一个无菌的1.6 mL 微型离心管。
- 向柱中加入15 µL无核酸酶水,室温静置1 min。
- 通过离心将洗脱液收集至微量离心管中,弃去层析柱。
- 使用微量分光光度计测定纯化后RNA的浓度和纯度。
- 使用 1 µL 无核酸酶水作为空白对照校准分光光度计。
- 将1 µL纯化的RNA样品加入样品台并进行测量。
- 记录样品浓度和纯度,以 A260/A230 和 A260/A280 值表示。
- 将纯化的 RNA 在 -80 °C 下保存。
2. Riboglow 探针
注意:本方法中包含的所有Riboglow探针的合成步骤均可在先前发表的文献中找到21。
- 不使用时,将探针储备液(95 µM)储存于无RNase、避光的微量离心管中,并置于-20 °C保存。
- 使用前立即解冻,并用RNA缓冲液(100 mM KCl、10 mM NaCl、1 mM MgCl₂、40 mM HEPES,pH 8.0)稀释至4.5 µM,用于成像实验。
3. 体外 样品制备
注意:所有涉及纯化 RNA 的步骤均应在无 RNase 环境中进行,例如定期使用 RNase 变性剂处理的通风橱。
- 制备 体外 RNA 与 Riboglow 探针的溶液
- 在无RNase的微量离心管中,将纯化的RNA样品与Riboglow探针(Cbl-3xGly-ATTO590或Cbl-5xGly-ATTO590)混合,使RNA终浓度为5.0 µM,Riboglow探针终浓度为4.5 µM,溶于RNA缓冲液(100 mM KCl,10 mM NaCl,1 mM MgCl₂)中。2,40 mM HEPES pH 8.0)。轻轻吹打混匀。
注意:溶液中 RNA 的浓度必须高于 Riboglow 探针的浓度,以确保探针被 RNA 充分饱和。如果对 RNA 或探针的浓度存在疑问,可提高 RNA 浓度或降低探针浓度,以确保达到饱和状态21.
- 在无RNase的微量离心管中,将纯化的RNA样品与Riboglow探针(Cbl-3xGly-ATTO590或Cbl-5xGly-ATTO590)混合,使RNA终浓度为5.0 µM,Riboglow探针终浓度为4.5 µM,溶于RNA缓冲液(100 mM KCl,10 mM NaCl,1 mM MgCl₂)中。2,40 mM HEPES pH 8.0)。轻轻吹打混匀。
- 用铝箔包裹试管或试管架,并在室温下孵育溶液至少20分钟。随后进行下一步操作 荧光寿命成像(FLIM) (第6步)孵育结束后立即进行。
4. 细胞培养
注意:本实验使用 HeLa 和 U-2 OS 两种细胞系,其培养和探针加载方案相同。细胞培养操作应在生物安全柜(BSC)中进行,并遵循 BSL-2 实验室环境规定的标准无菌技术。
- 将冻存于冻存管中的细胞快速置于37 °C水浴中解冻,并将细胞培养基放入37 °C水浴中预热。
- 向冻存管中加入等体积的预热细胞培养基,轻轻吹打混匀以重悬细胞。
- 将细胞悬液转移至90 mm组织培养皿中,并补加细胞培养基至总体积10 mL。将细胞置于37 °C、5% CO2的加湿培养箱中培养至少过夜,以使细胞贴壁。
- 在光学显微镜下观察细胞,判断其贴壁情况和融合度。
- 当细胞融合度达到80–90%时,进行传代。
- 吸除90 mm培养皿中的细胞培养基。加入4 mL磷酸盐缓冲液(1 × PBS),通过轻轻左右摇动培养皿使液体覆盖细胞表面,洗涤细胞。
- 吸除PBS,加入2 mL消化试剂。将培养皿放回加湿培养箱中,孵育 5–10 min,使细胞脱落。
- 在细胞孵育期间,向至少一个新的培养皿中加入8 mL细胞培养基,并标记日期、细胞系名称和传代次数。
- 5–10 min后,在光学显微镜下观察细胞脱落情况。脱落的细胞应在培养基中自由移动。
- 取出已脱落细胞的培养皿,向新培养皿中转移等量的新鲜细胞培养基。根据后续实验需求,将1–3 mL细胞悬液转移至新的培养皿中。
注意:不同细胞系具有不同的生长周期和敏感性。对于HeLa和U-2 OS细胞,将一个完全融合的培养皿中的约1 mL细胞悬液接种至新培养皿,大约需要4天再次达到完全融合。
- 进行细胞成像时,将细胞传代至35 mm成像培养皿中,并按照上述方法进行洗涤和传代。
5. Riboglow 探针珠装载
- 当细胞达到合适的成像汇合度时,从培养箱中取出35 mm成像培养皿,吸除培养基。按照前述方法用1 mL 1× PBS以T形动作洗涤细胞,然后吸除PBS。
- 将3 µL 30 µM Riboglow探针分成三 等份液滴均匀滴加到细胞表面。轻轻倾斜并旋转培养皿,使探针溶液在细胞表面均匀分布。
注意:Riboglow探针浓度可在5–30 µM范围内调整。本实验中使用的是30 µM储备液,但对于转染细胞样本,通常使用5 µM浓度。 - 使用微珠分配器在培养皿中加入一层薄薄的玻璃微珠。
注意:确保微珠在细胞上形成单层,避免添加过多,否则可能难以去除。 - 将培养皿底部在实验台面上轻敲8–10次,以促进微珠加载22。
- 迅速打开培养皿,加入新鲜细胞培养基,并将培养皿放回湿化培养箱中孵育10分钟,使探针进入细胞。
- 10分钟后,取出培养皿并吸除细胞培养基,尽量同时去除玻璃微珠。
- 用PBS反复洗涤培养皿以清除残留的玻璃微珠。
- 将培养皿倾斜,从顶部加入少量PBS,使其沿表面流下,带走沿途的微珠。在培养皿底部吸除含有微珠的PBS。根据需要重复3–5次,以清除大部分残留微珠。
注意:此步骤中PBS冲洗不宜过猛,以免贴壁细胞脱落。若经过多次洗涤后仍有少量微珠残留,建议保留这些微珠进行成像,而非冒险冲走过多细胞。
- 将培养皿倾斜,从顶部加入少量PBS,使其沿表面流下,带走沿途的微珠。在培养皿底部吸除含有微珠的PBS。根据需要重复3–5次,以清除大部分残留微珠。
- 向成像培养皿中加入1 mL含10% FBS的透明成像培养基,孵育10分钟。随后进行FLIM成像(第6步)。应在微珠加载后3小时内完成成像。
注意:将荧光分子导入贴壁哺乳动物细胞的微珠加载法改编自已有文献报道的方案22。
6. FLIM 成像
注意:本方案适用于配备 FLIM/FCS 硬件和 NIS-Elements 软件的尼康 Ti2 Eclipse AX 共聚焦显微镜(详见材料表中的信息)。
- 按以下顺序开启显微镜:共聚焦激光扫描显微镜、显微镜控制单元,然后是基于时间相关单光子计数(TCSPC)的荧光寿命成像系统(FLIM),该系统包括激光合束单元、光电倍增管探测器和事件计时器。
- 显微镜启动后,打开台式计算机,并启动图像采集与分析软件。
- 在启动选项中,选择“AX with PicoQuant”。等待图像采集与分析软件完成启动。
- 启动完成后,选择“AX FLIM and FCS”。
- 设置显微镜以进行荧光寿命数据采集。
- 在 AX 控制面板部分:
- 确保已选择Galvano模式。
- 将平均次数(Averaging)设置为1。
- 将像素驻留时间(Dwell Time)设置为2。
- 在激光功率部分:
- 将各个激光滑块调至较低水平,即 3–4%。
- 将所有激光(All Lasers)滑块设置为零。
- 在 TI2 控制面板部分:
- 确保已选择20x 物镜。
- 在扫描区域中,选择512 × 512。
- 确保正确的探测器已开启。以双激光系统为例:
- 探测器 1 用于 560 nm 激光。
- 探测器 2 用于 640 nm 激光。
注意:根据实验需求,可能使用一个或多个激光器。可通过右键点击探测器来开启或关闭。
- 定义数据文件保存路径。
- 转至控制器部分底部,点击“Configure”。
- 切换到PicoQuant/FLIM FCS选项卡。
- 在“Workspace path”下,点击右侧的文件夹图标。
- 选择一个位置,并为当天的实验创建一个新文件夹。
- 关闭配置窗口。
- 在 AX 控制面板部分:
- 点击“Live”,直到图像采集窗口出现,然后再次点击“Live”以暂停光子采集。
- 开始设置 FLIM 数据采集窗口。
- 在实时图像窗口中右键点击,选择“PicoQuant Plugin”。
- 启用以下选项:
- 显示衰减曲线(Show Decay Curve)
- 显示时间轨迹(Show Time trace)
- 显示 FLIM 统计信息(Show FLIM Statistics)
注意:每次都需要在实时图像窗口中右键点击,以打开这三个窗口。
- 根据所成像样品的类型,进入相应的实验方案子章节。
7. 体外 数据采集
- 加载 体外 FLIM 样本
- 获取一块黑色载玻片垫板和一片盖玻片。将盖玻片放置在载玻片垫板上。
- 放置5–20 µL的液滴于 体外 盖玻片上的样品。
- 将载玻片垫片安装到显微镜载物台上。
注意:与小液滴相比,较大的液滴(约 20 µL)更优,因其蒸发时间更长。可通过在液滴上覆盖小盖子或形状相似的物体进一步减缓蒸发。 - 使用操纵杆,将物镜视觉引导至液滴中心。
- 选择“实时”并观察时间轨迹图。该图将显示探测器在特定时间接收到的光子数量。
- 找到样品液滴的正确Z轴高度。
- 继续调整Z轴高度,直至时间轨迹信号达到最大值。
- 在观察检测器滑块下的计数率的同时,开始逐步增加激光功率。每帧的目标光子数(CPS)因情况而异,但建议获取 1,000–10,000 个光子/帧。
- 开始降低Z轴高度,然后再次升高,以重新观察最大时间轨迹。这代表载玻片-液滴界面。
- 观察右下角的绝对 Z 高度,将其增加约 20 µm,以将焦点移至液滴中心。时间轨迹信号应略微下降,随后趋于平稳。
注意:当处于正确的Z高度时,略微增加或减少Z高度不会显著改变时间轨迹或实时图像的平均颜色。此外,可通过选择“小鼠 XY通过点击实时窗口顶部的“”按钮并移动图像。
- 确定采集参数。
- 观察衰减曲线,查看其光子计数的峰值。这代表在三帧中获取的总光子数。根据该数值,确定每次采集所需的帧数。对于 体外 荧光寿命成像分析,105 期望的总光子数。每次采集获取 10–15 帧应已足够。
- 根据已确定的帧数,设置“捕获” 值
- 每次捕获时,暂停实时图像,选择“捕获”,允许数据采集,然后点击“活体” 再次操作,并使用“小鼠 XY”按钮以导航至新位置。
- 重复 步骤 7.5 进行技术重复,直至收集到足够的数据。
注意:每次单独捕获将最终获得该样品的一个荧光寿命值。为收集十五个寿命数据点,需总共完成步骤 7.5 十五次。 - 所有数据采集完成后,关闭图像采集与分析软件,并导出荧光寿命成像显微镜(FLIM)数据。
- 打开文件资源管理器,导航至先前定义的数据存储位置。
注意:每次 FLIM 数据采集会话将生成一个单独的 .sptw 文件夹,该会话的所有数据均保存在此文件夹中。NIS Elements 会根据实验日期自动命名文件夹,各个采集文件则根据采集时间命名。 - 导出 .sptw 文件夹并进行荧光寿命成像(FLIM)处理。
- 打开文件资源管理器,导航至先前定义的数据存储位置。
8. 二维细胞数据采集
- 如果尚未完成,请为细胞实验设置正确的激光配置。
- 转到页面右上角激光器旁边的“实验设置”。
- 在多通道染料框旁边点击“添加”。
- 添加所需的染料。
注意:大多数 Riboglow 探针使用 ATTO 590 荧光团,因此大多数 Riboglow 实验应添加该染料。 - 点击 专家模式。
- 在此处调整哪个探测器接收哪些发射光谱。理想情况下,具有重叠激发/发射光谱的信号应分配至不同的探测器。优先选择 GaAsP 探测器而非 MA 探测器,因为 MA 探测器不可调谐。
- 在左侧,更改扫描顺序,以尽量减少具有重叠激发/发射光谱的染料之间的串扰。
- 保存设置并为新的激光配置命名。为本次实验选择该配置。
注意: 每个用户配置仅需完成此步骤一次,应将设置保存至用户配置文件中以供后续实验使用。
- 通过导航至 视图 > 采集控制 > XYZ 概览 打开 XYZ 概览窗口。此视图显示图像在载物台上的采集位置,有助于防止意外重复采集。
- 进行样品加载。
- 在加载成像培养皿之前,确保已加入活细胞核染料。染料约需 30 秒穿透细胞,以便可视化细胞核。
- 将成像培养皿放置在显微镜上。将培养皿尽可能推至显微镜载物台的左下角。若使用非空气物镜,需用胶带将样品固定在载物台上,以防止 xy 漂移。
注意:使用非空气物镜时,必须用胶带将样品固定在显微镜载物台上,以防止培养皿移动。 - 切换至 DAPI 通道,并使用控制器侧面的旋钮逐步升高 Z 轴高度。缓慢调节,直至细胞核 进入焦点。
- 调节显微镜控制器上的“箭头”以调整 Z 轴高度旋钮的灵敏度。
- 如果未看到细胞,可能需要调整 XY 坐标至培养板上有细胞核的区域。
- 在显微镜控制面板上将 PFS 自动对焦设置为“开启”。
- 在 AX 面板右侧,点击 PFS 按钮旁边的 放大镜。显微镜将开始自动调节以校正 Z 轴高度。完成后,PFS 按钮应亮起并显示“in focus”,表示 PFS 已启用。
注意:完美对焦系统(Perfect Focus System, PFS)可最小化由 XY 载物台移动或长时间实验引起的 Z 轴漂移。启用 PFS 后,进行任何 Z 轴高度调节时应使用两种速度,因为 PFS 会自动补偿微小的调整。
- 在 AX 面板右侧,点击 PFS 按钮旁边的 放大镜。显微镜将开始自动调节以校正 Z 轴高度。完成后,PFS 按钮应亮起并显示“in focus”,表示 PFS 已启用。
- 在开始采集细胞数据之前,确保使用 AX 探测器搜索细胞,而不是 FLIM/FCS 探测器。
- 在搜索细胞时,先使用 DAPI 通道寻找细胞区域,然后切换至 ATTO 590 通道,以识别成功通过微珠转染的细胞。
注意:微珠转染效率显著低于核染效率(在我们的实验中,约 30% 的细胞被成功转染),因此并非所有具有荧光细胞核的细胞都含有 ATTO 590。 - 一旦识别到目标细胞,双击该细胞使其居中。或者,在采集窗口中右键点击并选择“将此点移至中心”。
- 细胞居中后,切换至“AX FLIM 和 FCS”模式。
- 在屏幕右下角,确保已选择“512 × 512”。
- 在右下角的小窗口中,通过点击并拖动角点调整帧大小以适配细胞。等待新调整的帧变为红色。在帧内右键点击或选择“Live”,直到帧变为绿色,表示调整已生效。
- 将采集帧数调整为所需数值。
注意:细胞实验的理想总光子数至少为 104。对于亚细胞实验,理想总光子数为 105 或更高,因为在定义感兴趣区域(ROI)时会排除大量光子。对于 512 × 512 的帧,通常约 30 帧即可满足细胞采集需求。增加或减少采集帧数将分别提高分辨率或采集速度。 - 选择“采集”。应出现一个包含采集结果的新窗口。屏幕右侧的采集进度框应出现在采集输入框附近。
- 同时,打开荧光寿命成像显微技术(FLIM)分析软件并导航至正确的文件路径。FLIM 采集数据将自动填充至 FLIM 分析软件窗口中,并可在采集过程中进行重命名。
- 采集完成后,切换回 AX 探测器并选择“Live”以寻找下一个细胞。AX FLIM/FCS 窗口的大小可随时调整,以适应更大或更小的细胞。
- 在 3 小时成像期内持续采集新细胞。
- 完成后,按照“体外 数据采集”中的第 7 步导出生成的 .sptw 文件。
- 完成后进入 FLIM 处理 步骤。
9. 三维Z轴层扫细胞FLIM数据采集
- 完整的激光设置、Z轴高度调整和细胞搜寻步骤如所述 二维细胞数据采集 步骤 8.1 - 8.12
- 在设置区域的顶部,切换到“ND采集” 标签。
- 点击“XY”复选框后,应出现一个表格。
- 如果表格中包含任何坐标,请点击“清晰的数值位于表格右上角的“”
- 点击“添加在表格顶部单击“添加单元格”以将该单元格加入表格。
- 这将填充载物台当前的XY坐标以及Z值/PFS值。
- 点击“Z表格上方的“复选框”。
- 使用活细胞成像和显微镜控制器,向下移动至靠近培养板的细胞底部。找到细胞底部后,点击黄色“底部单击立方体旁边的“”按钮,将此Z高度用作细胞的底部。
- 重复此过程,点击细胞顶部的“顶部使用显微镜控制器将视野移至细胞顶部后,点击“”按钮。
- 在立方体下方,点击“步骤 该操作将根据设定的Z轴高度,自动填充推荐步骤数至步骤框中。
注意:增加步数将提高Z轴的最终分辨率,同时延长采集时间。由于必须对细胞的每一层切片进行单独分析,以确定整个细胞的荧光寿命分布,因此在确定每个细胞的步数时,还应考虑图像分析所需的时间。在确定Z-stack实验的步数之前,请参见“细胞FLIM处理”小节,了解有关FLIM拟合过程的完整说明。 - 返回到“采集” 选项卡中,将帧数更改为正常数量的大约一半。
注意:这主要是 为节省时间,由于单个Z轴层切片的质量对最终图像质量的影响较小。为保持严格的图像质量,应选择正常甚至更高的每层采集次数,但这会延长采集时间。 - 回到“ND采集” 表中,选择“立即运行”.
- 让显微镜采集细胞的所有切片; 采集时间将根据所选的切片数量和每张切片的采集次数而变化。
- 图像采集完成后,将其保存为 .nd2 文件,并使用“显示体积视图采集窗口顶部的“”按钮。
- 如果需要获取共聚焦图像 对于细胞的Z轴层扫,使用AX检测器对该细胞拍摄一幅相同的图像。
- 通过选择“切换到 AX 检测器”AX” 靠近控制面板顶部的位置。
- 回到“ND采集” 表格,选择“立即运行”. 共聚焦图像的采集时间将远短于FLIM图像。
- 完成后,按照“体外 FLIM 数据采集”部分。
- 共聚焦图像可导出为 .nd2 文件,并保存至计算机中已知位置。
- 继续执行“荧光寿命成像处理 完成后。
10. FLIM 处理
- 通用/体外荧光寿命成像处理
注意:有关细胞FLIM数据处理的特定方案修改步骤(如选择ROI),请参见细胞FLIM处理(见步骤10.2)。- 启动FLIM分析软件。
注意:如果FLIM分析软件密钥连接在与显微镜相同的计算机上,则必须完全开启显微镜电源,软件才能启动。如果软件密钥位于另一台计算机上,软件可能会显示错误信息“Device bootup failed. Cannot connect TCSPC”,此提示可安全忽略。 - 使用以下方法之一,在FLIM分析软件中打开FLIM .sptw文件:
- 在屏幕顶部,导航至 文件 > 开放工作区 > [选择 .sptw 文件位置].
- 单击并拖动保存的 .sptw 文件,将其放入 FLIM 分析软件窗口左侧的大白色方框内。
注意:FLIM 分析软件要识别 FLIM 文件夹,文件夹名称必须以“.sptw”结尾,并包含 WSLogfile。在重命名或移动数据文件夹时,确保不要删除这些标识。成功加载后,左侧窗口将出现小的绿色方块,代表各个数据采集项。
- 单击其中一个绿色采集项。
- 导航至 分析 > 成像 > 荧光寿命成像显微镜 并选择“开始FLIM 文件将开始加载。
- 加载后,可通过在样品窗口上右键单击并取消勾选“自动比例尺”来移除自动生成的比例尺显示比例尺” 选项。
- 在“衰变拟合”选项卡中选择以下下拉选项:
- 拟合模型: N-指数再卷积
- 衰变: 总体衰变
- IRF: 计算的 IRF
注意: 体外 FLIM 图像通常具有均匀性,无需定义感兴趣区域(ROI)。然而,可能存在需要排除的不良图像特征。若如此,可通过右键点击样本窗口并选择其中一种 ROI 绘制选项来定义 ROI。点击并按住以确定区域。被排除的区域应变为单色,而选定区域应保持彩色。为保持一致性,使用计算得到的 IRF;但在某些实验条件下,实测 IRF 可能提供更高的准确性,若有条件,应予以考虑。17.
- 在底部,选择橙色的“初步拟合”按钮。软件将计算最佳拟合线,并将其以黑色绘制在绿色衰减曲线数据旁。
- 分析拟合结果及残差,并确定拟合质量。
- 在衰减曲线下方,观察生成的残差以评估拟合质量。随机的、类似噪声的残差表明拟合质量良好,而明显的线性特征和平滑的斜坡则表明拟合效果较差。
- χ2 用于评估拟合质量的值位于拟合表格的右下角。χ2 随着拟合度提高,趋近于1。
注意:残差图仅表示计算得到的衰减曲线(黑线)与实测衰减曲线(绿线)之间重叠程度的线性呈现。这意味着可通过观察两条曲线的吻合程度来评估拟合质量。关于荧光寿命成像(FLIM)数据拟合的更多细节,请参见近期发表的一篇文献。23.
- 根据需要调整参数数量以提高拟合质量。
- 旁边是“模型参数”,将 n 的值增加 1,并选择“初步拟合。将计算新的曲线,以及新的残差和χ2 将显示数值。
- 评估该新拟合的质量,并确定是否需要增加参数。
- 重复步骤 10.1.9.1 至 10.1.9.2,直至模拟的衰减达到最佳质量。
注意:应在实现最佳拟合质量的同时,尽可能减少参数数量。若两个参数所产生的拟合质量几乎相同,则应采用较少的参数数目。理论上,模型参数的数量对应于样品中产生寿命的物种数量;实际上,理想参数数量随所观测系统的复杂性增加而增加。 - 在最终参数数量确定后,τAvAmp 加权寿命(τ AvAmp [ns])可从衰变拟合表中记录。
注意:Tau 平均幅度(τAvAmp)和 Tau 平均强度(τAvInt和 均为衡量样品平均荧光寿命的指标。然而,计算这两个值所采用的方法不同,二者不可互换。通常情况下,τAvAmp 是用于生物系统的更准确度量指标23. - 为获得样品的拟合FLIM图像,需使用拟合数据进行背景扣除,并执行FLIM拟合。
- 在衰变拟合表中,除 τ 外,取消勾选所有其他白色复选框n[ns] 盒子中 τ 的数量n[ns] 个方框将对应于所确定的拟合参数的数量。
- 将 BkgrDec[Cnts] 的值更改为零。
- 在样品窗口的紧左侧,选择“荧光寿命成像拟合软件将开始对样品进行拟合。
- 拟合完成后,可通过调整样品窗口右侧的图例来修改伪彩色标尺和强度显示设置。
- 右键单击可将样本图像导出为位图,以便进行进一步的图像处理 > 导出 > 位图或带颜色标尺的位图
- 启动FLIM分析软件。
- 细胞荧光寿命成像处理
- 完成通用部分的步骤 10.1.1 - 10.1.5体外 荧光寿命成像处理
- 通过在样本显示窗口中右键单击,并选择其中一种ROI绘制选项,来定义细胞区域。
注意:由于细胞形状不规则,通常使用“自由选择区域”(Free ROI)选项来定义细胞最为合适。在定义区域时,按住 CTRL 键可排除 ROI 中的某一部分区域;按住 SHIFT 键可向已选中的 ROI 添加额外区域。在分析亚细胞结构时,共聚焦图像中可见的荧光染料可能在后续的荧光寿命成像(FLIM)图像中不可见。在此类情况下,建议以共聚焦图像为参考,在 FLIM 图像中绘制 ROI。 - 在“衰变拟合”选项卡中选择以下下拉选项:
- 拟合模型: N-指数重卷积
- 衰变: 感兴趣区域
- IRF: 计算的IRF
- 在通用部分完成其余步骤体外 荧光寿命成像处理, 步骤 7 至 13
结果
完整的实验流程图示见图1。为尽量减少实验偏差,可对数据集进行盲法分析。作为示例,本研究在数据采集和处理过程中对研究人员隐藏了所有样本的身份信息。因此,实验组仅以其分配的标识符(组A、组B等)进行标记,其真实身份将在正文和图注中予以说明。
在RNA A标签纯化后, 体外 两种Riboglow探针Cbl-3xGly-ATTO590(3xGly)和Cbl-5xGly-ATTO590(5xGly)在有无RNA A标签存在条件下的荧光寿命被测定。探针3xGly和5xGly的结构完全相同,仅在其连接区的甘氨酸单体重复次数上有所不同,3xGly含有三个甘氨酸重复单元,而5xGly含有五个甘氨酸重复单元(图2D). 体外 荧光寿命数据的采集与分析采用上述方法,整体衰减分析未进行ROI选择(图2E-2G)。经过n指数重卷积后,τAvAmp 数值按实验组提取并绘图(图3B)。为每组生成了具有归一化伪彩色标尺的代表性荧光寿命成像(FLIM)采集窗口,并展示其与收集到的τ值的一致性AvAmp 与其特定样本类型相对应的值(图3A 和 3B)。正如预期的那样, 体外 含有 RNA A 标签的样本(B 组和 C 组)的荧光寿命值显著高于不含 RNA A 标签的样本(A 组和 D 组)。各实验组的代表性衰减曲线进一步表明,RNA A 标签的存在延长了提取出的寿命值 体外 (图3C对于不含RNA A标签的样本,其衰减曲线向左偏移,表明与含有RNA A标签的样本相比,其平均寿命值更短。
为了研究活细胞中的荧光寿命,采用上述方法对贴壁的 HeLa 细胞进行微珠载入 Riboglow 探针 3xGly 和 5xGly 的处理(图 4A)。使用荧光寿命成像显微技术(FLIM)分析不同 Riboglow 探针在活细胞中是否产生独特的寿命信号。根据细胞内探针载入情况及细胞整体健康状态,选择用于 FLIM 测量的细胞。在进行寿命分析前,依据探针成功载入和正常形态来筛选细胞,而不考虑荧光寿命的具体结果。通过选取感兴趣区域(ROIs)对采集的 FLIM 数据进行分析,以限制非靶向荧光信号的干扰(图 2H,图 4B)。结果显示,载入 3xGly 的细胞(E 组)其细胞内荧光寿命显著低于载入 5xGly 的细胞(F 组, 图 4D)。该趋势可通过两组样本的代表性衰减曲线进一步可视化:与载入 5xGly 的细胞相比,载入 3xGly 的细胞表现出向左偏移的衰减曲线,表明其平均荧光寿命更短(图 4C)。这些结果证明了所述实验方案在从二维细胞图像中提取 Riboglow 探针细胞内荧光寿命方面的有效性。
随后,我们致力于在亚细胞结构中实现Riboglow-FLIM的分辨。以细胞核为例,我们选择了核内区域进行研究。 与 细胞核的荧光寿命成像显微信号。采集细胞核的荧光寿命,并与细胞质的荧光寿命进行比较,以研究不同细胞区室间的荧光寿命差异。图5). 收集了细胞的共聚焦图像(蓝色核染色)以及FLIM图像,并用于确定细胞核和细胞质的ROI(感兴趣区域)图 2J, 图5C). 对载有3xGly和5xGly的细胞核与细胞质进行FLIM分析,结果显示两组中不同亚细胞区室的荧光寿命存在显著差异图 5F)。与先前的观察结果一致,用Riboglow探针标记的细胞其细胞核的荧光寿命始终高于同一细胞的细胞质。对于3xGly和5xGly,细胞核的寿命平均分别比细胞质高0.18 ns和0.13 ns。重要的是,伪彩色标度采集窗口、衰减曲线以及提取的τAvAmp 所有数值均显示出相同的荧光寿命趋势(图5C-图5F)。这些细胞核中的差异 与 细胞质中的寿命较短,但通过我们稳健的数据分析流程 consistently 被检测到。
为了展示荧光寿命成像显微技术(FLIM)在日益复杂的系统中的应用价值,采集并分析了三维细胞Z轴层扫数据。共对四个细胞进行了三维成像,采用Z轴层扫切片方式,每个细胞的切片数量为10–15层。针对每层细胞切片,分别采集细胞核和细胞质区域的感兴趣区域(ROI),并将所有切片提取出的τAvAmp值进行绘图分析,采用配对t检验进行统计(图5A 和 5B,5G)。所有实验结果均显示,这些细胞中细胞核与细胞质的荧光寿命之间无显著差异。这可能是由于每层Z切片的光子计数减少以及样本量有限,导致三维分析中的统计效能和寿命分辨率下降。这些数据凸显了在FLIM数据采集过程中样本量和光子计数的重要性:当对多个细胞进行分析且每次采集的光子计数较高时,能够揭示出单细胞、低光子实验中无法观察到的寿命差异(图5F 和 5G)。
综上所述,这些结果证明了所述方案在多种相关生物分子背景下采集和分析Riboglow系统产生的荧光寿命成像数据(FLIM数据)的实用性。
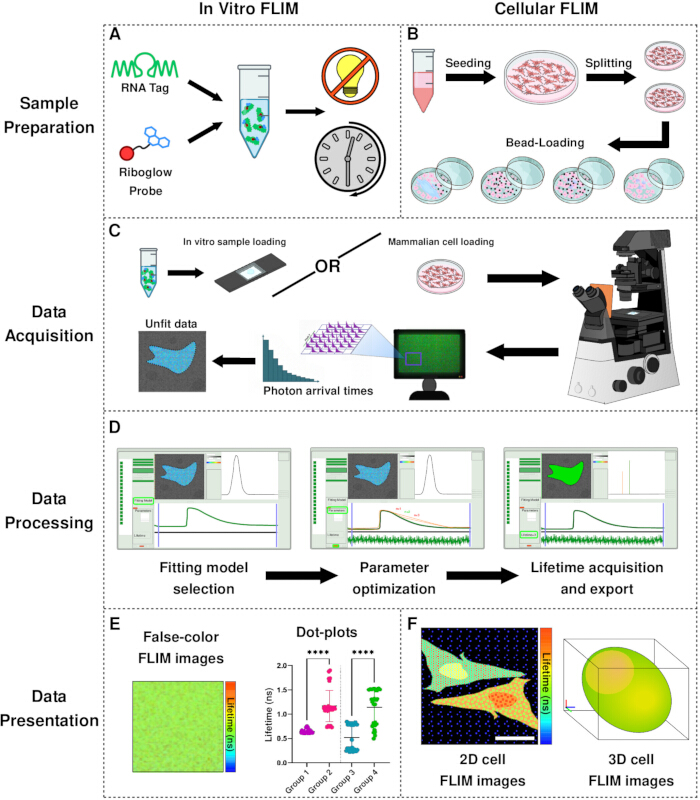
图1实验流程概览。A-B) 样品制备流程用于 体外 (A) 和哺乳动物细胞 (B) 样本。 C) FLIM 数据采集工作流程 D) 荧光寿命成像数据处理流程。采集的数据采用n指数去卷积法进行拟合,针对每次采集确定拟合参数数量,最终确定并导出生命周期值。 E-F) FLIM 数据展示。 体外 数据 (E) 以伪彩色荧光寿命成像(FLIM)图像或寿命点图形式呈现,并包含细胞数据 (F) 以二维或三维细胞荧光寿命成像(FLIM)图像形式呈现。 请点击此处以查看此图的放大版本。
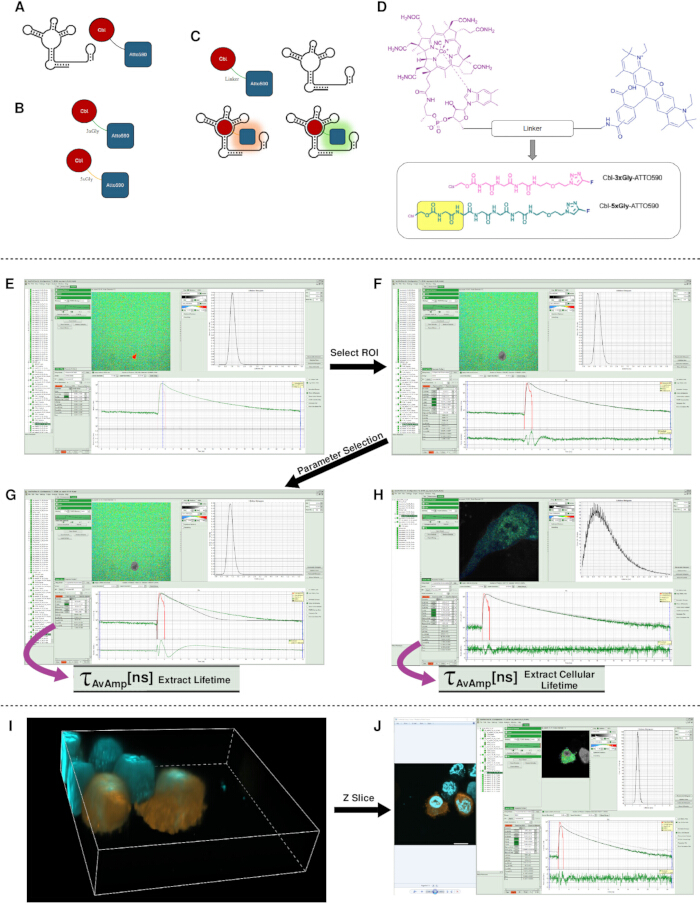
图 2:Riboglow 平台、连接子系列及 FLIM 拟合工作流程。A-B) Riboglow 探针与 RNA A 标签(A Tag)的示意图。C) Riboglow 探针结合 RNA 适配体标签(A Tag)的示意图,复合物形成后荧光强度和寿命均增加。D) 本研究中使用的 Riboglow 连接子系列。Cbl(紫红色)通过可变化学连接子共价连接至荧光团(蓝色)。5xGly 包含两个额外的甘氨酸残基,如黄色所示。E-J) 通过 SymPhoTime 64 进行 FLIM 数据处理。E-G) 将 FLIM 数据导入 SymPhoTime 64 (E);选择一个无干扰的感兴趣区域(ROI)(F),然后使用 n 项指数再卷积模型拟合衰减曲线 (G);采用最优拟合结果计算振幅加权平均寿命(τAvAmp)。H) 在 U-2 OS 细胞中标记淬灭型 3xGly 的二维细胞 FLIM 分析,显示 n = 3 的拟合结果。I) 使用淬灭型 5xGly 和 DAPI 标记的 HeLa 细胞的三维体积渲染图。J) 细胞核与细胞质 FLIM 分析的 Z 层切工作流程,展示相应的共聚焦 Z 层切图像如何指导精确 ROI 定位,以实现区室特异性的寿命拟合。请点击此处查看该图的放大版本。
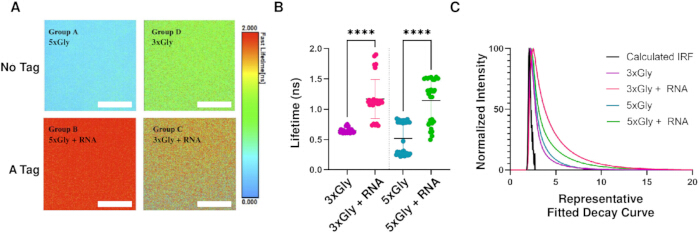
图3:评估两种探针变体的荧光寿命 体外 ± RNA。A) 利用荧光寿命成像显微镜(FLIM)对Riboglow探针进行定量可视化 体外 存在或不存在RNA A标签的情况下。比例尺 = 50 µm. B) 绘制的 τ AvAmp 3xGly 和 5xGly 的数值 体外 样本,含或不含 RNA A Tag。每个点代表一次 FLIM 采集数据。误差线表示均值和标准差。单因素方差分析结合事后 Tukey HSD 检验显示寿命存在显著差异(****p < 0.0001). C) 代表性 体外 5xGly 和 3xGly 探针在有无 RNA-A 情况下的衰减曲线 请点击此处以查看此图的放大版本。
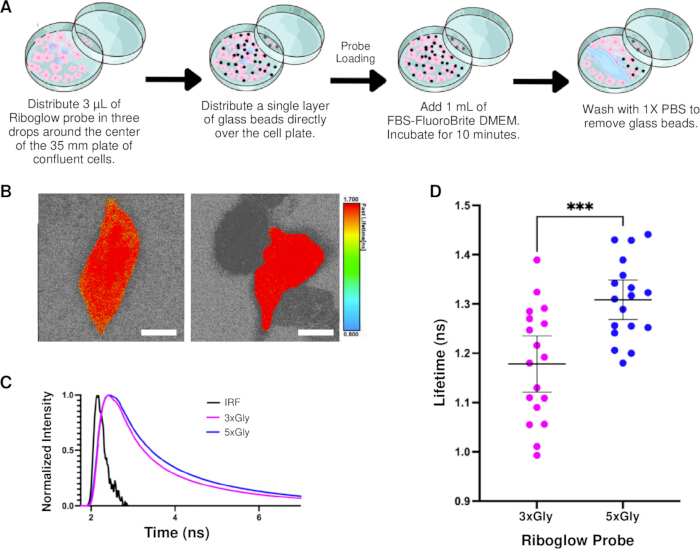
图4:使用3xGly(E组)和5xGly(F组)Riboglow探针对HeLa细胞进行荧光寿命成像。(A) 探针加载过程概述。 (B) E组(左)和F组(右)的细胞摄取图像。比例尺 = 10 μm. (C) 从E组和F组提取的拟合寿命衰减曲线,并与IRF一同绘制。D) HeLa细胞中E组(n=18个细胞)和F组(n=18个细胞)的荧光寿命,误差线表示均值和95%置信区间。非配对t检验显示,加载3xGly与5xGly的细胞间荧光寿命存在显著差异,*** p < 0.0005. 请点击此处以查看此图的放大版本。
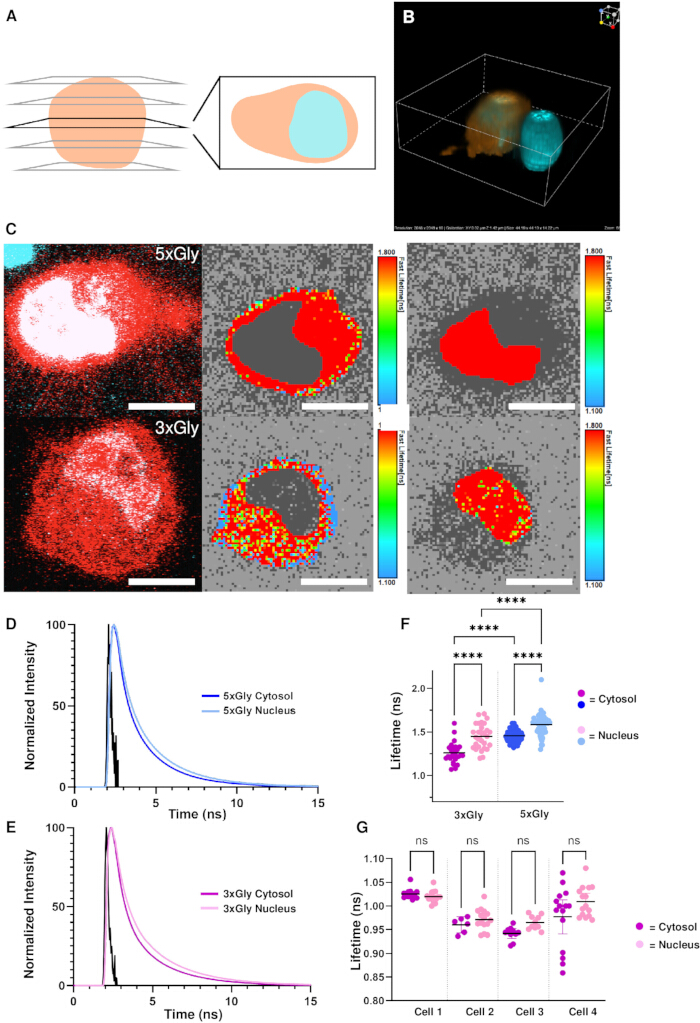
图5使用3xGly(L组)和5xGly(M组)Riboglow探针对亚细胞区室进行荧光寿命成像分析。(A) Z-stack成像的示意图。 (B) 通过共聚焦Z轴层扫图像获得的HeLa细胞三维重建图像。HeLa细胞经蓝色核染色(青色),并加载了Riboglow探针(橙色)。 (C) 负载微珠的HeLa细胞的FLIM分析。共聚焦图像(左列)用作ROI选择的参考(中列、右列)。比例尺 = 10 μm. (D-E) 从负载了相应探针的HeLa细胞核和细胞质ROI中提取的代表性荧光衰减曲线 (D) 3xGly,或 (E) 5xGly. 曲线显示归一化的光子计数随衰减时间的变化,每条衰减曲线均叠加了其仪器响应函数(IRF,黑色)。F) 点图量化两个实验组中核区与胞质区ROI的荧光寿命。每个点代表一个细胞ROI。单因素方差分析结合事后Tukey HSD检验显示,两组内核区与胞质区的荧光寿命均存在显著差异(****p < 0.0001). (G) 四个细胞荧光寿命Z轴层扫的点图。每个点代表从细胞Z轴层扫中某一层面提取的一个独立ROI。对于源自同一细胞的多个ROI需谨慎处理,因其并非完全独立的生物学重复。所有ROI均以共聚焦图像为参考进行定义。配对t检验显示,在所有细胞Z轴层扫中,细胞核与细胞质间的寿命差异均无统计学意义(ns) p > 0.05). 请点击此处以查看此图的放大版本。
讨论
Riboglow-FLIM 通过利用荧光寿命读数,为定量 RNA 成像提供了一个框架。该方案的成功应用在很大程度上依赖于对光子采集、衰减拟合和无偏采样的严格控制。必须平衡光子计数,以确保获得足够统计量用于可靠的 n 指数重卷积,同时避免探测器饱和、堆积效应和光漂白,这些因素会人为降低提取的寿命值。在实践中,光子数不足最常导致拟合失败,尤其是在细胞成像中使用较小的感兴趣区域(ROI)时,例如试图分辨微小的细胞区室;而过高的光子通量则会因 TCSPC 探测的时间箱限制导致衰减曲线压缩。因此,根据实验目标选择合适的驻留时间、帧数和激光功率至关重要。驻留时间和帧数共同决定了总光子预算:前者控制每个像素的采样时长,后者控制视场的重复扫描次数;而激光功率则设定激发速率,从而决定每个驻留周期内的光子产出量,直接影响信噪比、光漂白和堆积效应。同样重要的是避免衰减曲线的过拟合,应通过最小化模型参数并确认残差的随机性来实现,因为参数过多会系统性地低估寿命值。寿命参数的选择是一个重要的分析考量,因为幅度加权寿命(τAvAmp)和强度加权(τAvInt)平均值反映 多指数衰减的不同方面,二者不可互换。与先前的指导一致,τAvAmp 此处使用是因为它能更直接地表示寿命组分的分数贡献,且更适用于解析异质性生物环境23准确测定仪器响应函数(IRF)对于可靠的反卷积拟合至关重要,尤其是在解析短寿命组分时。采用计算得到的IRF可保持实验拟合结果随时间的稳定性。 然而,若与真实仪器响应存在偏差,则可能引入系统误差。应定期使用碘化钾标准品测量仪器响应函数(IRF),以验证实测与计算所得IRF的一致性。对于细胞实验,为实现无偏采样,在提取荧光寿命前需评估细胞状态及探针加载情况,因为依据寿命结果进行事后排除会引入选择偏差。珠粒加载会增加细胞活力的变异性,分析中仅应包含经明场或共聚焦成像确认具有正常形态且荧光信号稳定的细胞。形态不规则的结构,如细胞变圆、出泡或荧光微弱的细胞,应予以排除。22根据我们的经验,为尽量减少细胞应激(这种应激可能随时间改变荧光寿命测量结果),最好在加载微珠后约3小时内完成成像。
衰变曲线拟合是Riboglow-FLIM实验中最常见的故障排查难题。拟合失败可通过非物理参数来识别,例如拟合振幅为负值(在FLIM分析拟合中an < 0)、拟合曲线与实测衰变曲线重叠性差,或残差呈现结构性偏差。在许多情况下,通过调整时间拟合边界,排除低信号区域或后期噪声,同时在对数尺度下保留衰变曲线的线性区域,可提高拟合质量。尽管该方法会略微降低寿命分辨率,但对提取的平均寿命影响极小,并可保留原本可用的数据集。当光子计数充足且拟合边界已优化后仍持续出现拟合失败时,则应排除该次采集数据。对于大规模细胞研究,可通过修改实验方案显著提高通量,例如在共聚焦成像中预先筛选细胞,以及自动化多点FLIM采集;但这些方法需要利用显微镜的完美聚焦系统实现稳定的焦点控制,以尽量减少长时间成像过程中的Z轴漂移。本方案在配备PicoQuant TCSPC硬件的Nikon Ti2 Eclipse AX系统上进行演示,但只要能够对光子计数、时间分辨率和探测器配置进行等效控制,其通用的采集与分析原理可转移至其他FLIM平台,如Leica SP8或Abberior STEDYCON系统。虽然此处使用SymPhoTime 64进行数据分析,但导出的FLIM数据集也兼容支持TCSPC格式的其他分析软件,用户可根据需要调整工作流程。
在设计实验时,应考虑该方法的若干局限性。首先,在共聚焦成像过程中定义的兴趣区域无法直接导入荧光寿命成像(FLIM)分析软件,而必须针对每组FLIM数据集手动重新绘制,这增加了分析时间,并可能引入操作者依赖的变异性。此外,当前的FLIM处理流程需要对Z轴层扫图像的每一层进行单独分析,因为SymPhoTime 64目前不支持三维体积荧光寿命拟合,这不仅延长了分析时间,还将光子统计信息分散到各个切片中。这种分散会降低每次测量的有效光子计数,可能在信号较弱的区域或微小区室中降低拟合精度。在三维细胞成像中,由于每层的光子计数减少以及系统复杂性增加,该局限性对寿命分辨率的影响尤为显著。由于通常需从同一细胞的不同切片中提取多个兴趣区域,这些测量并非完全独立,从而减少了有效的生物学重复次数,在统计学解释时应予以考虑。与此限制一致的是,在三维实验中,较小的样本量可能掩盖具有生物学意义的寿命差异,而这些差异在单细胞或二维分析中因定义的兴趣区域内光子计数较高而更易显现。此外,当空间分辨率或光子密度不足时,极微小或信号微弱的亚细胞定位难以实现可靠拟合,这进一步凸显了随着样品复杂性增加,空间细节与寿命精度之间存在的权衡关系。
尽管存在这些局限性,本方案通过提供一种跨样本类型的详细且标准化的操作流程,填补了Riboglow-FLIM应用中的空白。虽然此前Riboglow已采用基于荧光强度的测量方法,但Riboglow-FLIM能够提供一种定量且对环境敏感的读数,该读数在很大程度上不受探针浓度和RNA表达水平的影响。已有研究报道,荧光寿命相较于基于强度的方法具有多项优势,包括对探针浓度、光漂白以及光路差异的敏感性更低。尤为重要的是,此前尚未发表任何关于Riboglow-FLIM数据采集与分析的标准化操作流程,而本文所提出的详细操作流程为在体外(in vitro)、细胞以及三维系统中实现无偏倚的数据采集、规范的拟合方法和结果解读建立了一套实验准则。
经过验证的Riboglow-FLIM实验方案的建立,拓展了研究活细胞中RNA动态、定位及调控的实验工具。该方法适用于需要在不同亚细胞区域、时间点或实验条件下进行定量比较的研究,也适用于利用正交寿命信号实现多重RNA成像的实验。除了基础RNA生物学研究外,该方案还可广泛应用于日益复杂的生物模型中,用于研究RNA加工、转运、应激反应以及转录调控。随着FLIM仪器设备和分析软件的不断发展 ,本研究所建立的方法为将基于寿命的RNA成像技术拓展至更高维度及活体系统奠定了基础。
披露
作者无任何利益冲突需要披露。
致谢
Braselmann 实验室的工作得到了美国国立卫生研究院(E.B.,项目编号 R35GM150823)、Luce 基金会(E.B.)以及乔治城大学化学系(L.K.S. 获 Espenscheid 奖学金)的支持。本研究是乔治城大学课程 CHEM 4505 实验课的一部分。所有注册 CHEM 4505 课程的学生均参与了数据采集、分析及本论文的撰写工作,均列为共同作者。所有作者感谢 Sanuja Mohanaraj 和 Rodrigo Maillard 博士在本论文撰写过程中提供的支持。作者们还感谢 Emerson Boggs 和 Clayton Hazelett 博士提供的技术反馈。
数据可用性
所有数据集和分析文件将在发表后提供于一个公开的存储库中(一个公开可用的 Box 文件夹,并引用本手稿)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 15 mL 离心管 | Abdos | P10402 | 用于细胞培养及构建微珠加样装置 |
| Cbl-3xGly-ATTO590 | N/A | N/A | 用于 Riboglow 系统中 RNA 的检测,合成信息见:https://doi.org/10.1021/acschembio.5c00917 |
| Cbl-5xGly-ATTO590 | N/A | N/A | 用于 Riboglow 系统中 RNA 的检测,合成信息见:https://doi.org/10.1021/acschembio.5c00918 |
| 细胞解离液 | Gibco | 12605-28 | 用于细胞传代和转移 |
| 细胞成像培养皿 | Ibidi | 81218-200 | 用于活细胞成像 |
| 细胞显微镜用 DMEM 培养基 | Gibco | A1896701 | 用于活细胞成像 |
| 共聚焦显微镜系统 | Nikon | AX | 用于细胞共聚焦成像 |
| DMEM 培养基 | Gibco | 1195-092 | 用于哺乳动物细胞培养 |
| FBS | Cytiva | SH30910.03 | 用于 DMEM 培养基的血清补充 |
| 荧光寿命成像(FLIM)分析软件 | PicoQuant | SymPhoTime 64,版本 2.9,构建号 5818 | 用于 FLIM 分析 |
| 玻璃微珠 | Millipore Sigma | G4649 | 用于将 Riboglow 探针通过微珠加载法导入活细胞 |
| 玻璃盖玻片 | VWR | 48368 062 | 用于体外成像 |
| HEPES | Sigma | H3375 | 用于配制 RNA 缓冲液 |
| 高产量 RNA 合成试剂盒 | Thermo Scientific | K0441 | RNA 转录试剂盒 |
| 混合型光电倍增探测器 | PicoQuant | PMA Hybrid 系列 | 用于时间分辨光子探测以测量荧光寿命 |
| KCl | Fisher Scientific | BP366 | 用于配制 RNA 缓冲液 |
| 活细胞核染色试剂 | Invitrogen | R37605 | 用于活细胞成像过程中对细胞核进行染色 |
| 哺乳动物细胞冻存管 | Fisher Scientific | 12-567-501 | 用于哺乳动物细胞的储存 |
| MgCl2 | Sigma | M8266 | 用于配制 RNA 缓冲液 |
| 微量离心管 | Thermo Scientific | 90410 | 用于常规体外实验和细胞培养操作 |
| 显微镜主机平台 | Nikon | Ti2 Eclipse | 用于体外和细胞成像 |
| 显微镜物镜 | Nikon | N Plan Apochromat | 用于体外和细胞成像 |
| 显微镜操作软件/图像采集与分析软件 | Nikon | NIS-Elements,版本 6.20.02. | |
| 微量分光光度计 | Thermo Scientific | ND-2000 | 用于 DNA 和 RNA 浓度及纯度测定 |
| 多通道事件计时器 | PicoQuant | MultiHarp 150 | 用于 TCSPC 技术,从体外和细胞样品中提取荧光寿命信息 |
| NaCl | Fisher Scientific | BP358 | 用于配制 RNA 缓冲液 |
| PBS,1X | Corning | 21-040-CV | 用于细胞洗涤和去除微珠 |
| 脉冲二极管激光器及激光合束单元 | PicoQuant | Sepia PDL 828,PicoQuant LCU | 用于体外和细胞样品的激光激发 |
| RNA 纯化试剂盒 | New England Biolabs | T2050L | RNA 纯化试剂盒 |
| RNase 去活剂 | Invitrogen | AM9780 | 用于制备无 RNase 的实验环境 |
| 组织培养皿 | Fisher Scientific | FB012923 | 用于常规细胞培养与维护 |
参考文献
- Bertrand, E., Chartrand, P., Schaefer, M., Shenoy, S. M., Singer, R. H., et al. Localization of ASH1 mRNA Particles in Living Yeast. Molecular Cell. 2 (4), 437-445 (1998).
- Johansson, H. E., Liljas, L., Uhlenbeck, O. C. RNA Recognition by the MS2 Phage Coat Protein. Seminars in Virology. 8 (3), 176-185 (1997).
- Braselmann, E., Rathbun, C., Richards, E. M., Palmer, A. E. Illuminating RNA Biology: Tools for Imaging RNA in Live Mammalian Cells. Cell Chemical Biology. 27 (8), 891-903 (2020).
- Paige, J. S., Wu, K. Y., Jaffrey, S. R. RNA Mimics of Green Fluorescent Protein. Science. 333 (6042), 642-646 (2011).
- Filonov, G. S., Moon, J. D., Svensen, N., Jaffrey, S. R. Broccoli: Rapid Selection of an RNA Mimic of Green Fluorescent Protein by Fluorescence-Based Selection and Directed Evolution. Journal of the American Chemical Society. 136 (46), 16299-16308 (2014).
- Song, W., et al. Imaging RNA polymerase III transcription using a photostable RNA–fluorophore complex. Nature Chemical Biology. 13 (11), 1187-1194 (2017).
- Dolgosheina, E. V., et al. RNA Mango Aptamer-Fluorophore: A Bright, High-Affinity Complex for RNA Labeling and Tracking. ACS Chemical Biology. 9 (10), 2412-2420 (2014).
- Chen, X., et al. Visualizing RNA dynamics in live cells with bright and stable fluorescent RNAs. Nature Biotechnology. 37 (11), 1287-1293 (2019).
- Sunbul, M., et al. Super-resolution RNA imaging using a rhodamine-binding aptamer with fast exchange kinetics. Nature Biotechnology. 39 (6), 686-690 (2021).
- Chen, M., et al. A molecular beacon-based approach for live-cell imaging of RNA transcripts with minimal target engineering at the single-molecule level. Scientific Reports. 7 (1), 1550(2017).
- Raj, A., Van Den Bogaard, P., Rifkin, S. A., Van Oudenaarden, A., Tyagi, S. Imaging individual mRNA molecules using multiple singly labeled probes. Nature Methods. 5 (10), 877-879 (2008).
- Bratu, D. P., Cha, B. -J., Mhlanga, M. M., Kramer, F. R., Tyagi, S. Visualizing the distribution and transport of mRNAs in living cells. Proceedings of the National Academy of Sciences. 100 (23), 13308-13313 (2003).
- Zuo, F., et al. Imaging the dynamics of messenger RNA with a bright and stable green fluorescent RNA. Nature Chemical Biology. 20 (10), 1272-1281 (2024).
- Grün, F., et al. Super-Resolved Protein Imaging Using Bifunctional Light-Up Aptamers. Angewandte Chemie International Edition. 63 (51), e202412810(2024).
- Braselmann, E., et al. A multicolor riboswitch-based platform for imaging of RNA in live mammalian cells. Nature Chemical Biology. 14 (10), 964-971 (2018).
- Sarfraz, N., Moscoso, E., Oertel, T., Lee, H. J., Ranjit, S., et al. Visualizing orthogonal RNAs simultaneously in live mammalian cells by fluorescence lifetime imaging microscopy (FLIM). Nature Communications. 14 (1), 867(2023).
- Sarfraz, N., Shafik, L. K., Stickelman, Z. R., Shankar, U., Moscoso, E., et al. Evaluating Riboglow-FLIM probes for RNA sensing. RSC Chemical Biology. 5 (2), 109-116 (2024).
- Sarfraz, N., et al. Establishing Riboglow-FLIM to visualize noncoding RNAs inside live zebrafish embryos. Biophysical Reports. 3 (4), 100132(2023).
- Datta, R., Heaster, T. M., Sharick, J. T., Gillette, A. A., Skala, M. C. Fluorescence lifetime imaging microscopy: fundamentals and advances in instrumentation, analysis, and applications. Journal of Biomedical Optics. 25 (07), 1(2020).
- Stickelman, Z., Sarfraz, N., Rice, M. K., Lambeck, B. J., Milkovich, S., et al. Expanding the Riboglow-FLIM Toolbox with Different Fluorescence Lifetime-Producing RNA Tags. Biochemistry. 64 (11), 2429-2438 (2025).
- Shafik, L. K., et al. Evaluating Linker Architecture in RNA-Detecting Riboglow Probes and Effects on Fluorescence Turn-On. ACS Chemical Biology. 21 (2), 371-379 (2026).
- Cialek, C. A., Galindo, G., Koch, A. L., Saxton, M. N., Stasevich, T. J. Bead Loading Proteins and Nucleic Acids into Adherent Human Cells. Journal of Visualized Experiments. (172), e62559(2021).
- Sarfraz, N., Braselmann, E. Practical guide to fluorescence lifetime imaging microscopy. Molecular Biology of the Cell. 36 (6), tp1(2025).
重印与许可
