本方案描述了从大肠杆菌(Escherichia coli)中重组表达并纯化疏水蛋白SC16的方法,并提供了基于荧光的检测手段以监测其自组装过程。
本文内容
摘要
摘要
疏水蛋白是一类小型两亲性蛋白质,可在疏水-亲水界面自组装,形成覆盖真菌孢子的稳定防水涂层。I类疏水蛋白可形成特别稳定的“棒状结构”,其中包含有序的类淀粉样结构,覆盖在表面。这种特殊的表面化学性质使其在药物递送、泡沫稳定、乳化和表面修饰方面具有潜在应用价值。为了生产疏水蛋白,亟需从简单的表达系统中获得全面且高产率的制备方案。此外,还需提供简便的方法,在重组表达与纯化后对疏水蛋白功能进行表征。本文中,我们描述了SC16的制备与表征方案,SC16是一种由真菌Schizophyllum commune产生的IB类疏水蛋白,可在Escherichia coli中进行重组表达,并在非还原性、天然条件下后续纯化。该方法包括将编码SC16并融合N端融合蛋白的表达质粒转化至E. coli中,诱导蛋白表达,在天然条件下裂解细胞,亲和层析,以及通过蛋白酶切割分离疏水蛋白,产率可达≥5 mg。随后可通过基于硫磺素T的终点法或动力学荧光检测法监测SC16的自组装过程。两种检测方法均涉及将SC16在持续搅拌条件下孵育,以促进其在气-水界面的自组装,并通过荧光测量进行监测。综上,这些方法为SC16的纯化及其自组装行为的监测提供了简化的操作流程,且可推广至其他涉及类似蛋白质自组装的系统。
引言
疏水蛋白是由真菌分泌的一类具有表面活性的两亲性蛋白质,可在疏水-亲水界面(例如真菌结构上的气-液界面)处自发组装。1,2 在自然界中,疏水蛋白的功能是包被孢子和子实体,使其具备防水性,防止空气通道被水淹没,并促进孢子的扩散1。由于其独特的表面化学性质,疏水蛋白在工业上具有广泛的应用,包括用于提高植入物和假体生物相容性的涂层材料3,4,5、作为药物递送和医学治疗中的生物相容性表面活性剂6,7,8,9,10,以及用于捕获纳米塑料的候选材料11。
疏水蛋白可分为Ⅰ类和Ⅱ类,这两类蛋白均能在疏水-亲水界面(包括气-水、油-水12,13,14以及塑料-水15,16,17界面)发生自组装。Ⅰ类疏水蛋白的一个显著特征是在界面处形成高度稳定的“棒状”结构,该结构具有有序的类淀粉样(富含β-折叠)特征18,使其特别适用于表面修饰或保护类应用。相比之下,Ⅱ类疏水蛋白不形成类淀粉样结构,而是形成易于解离的薄膜1,18。有趣的是,还存在第三类疏水蛋白,其结构特征兼具Ⅰ类和Ⅱ类的某些特点18,19。由于这些差异,监测疏水蛋白的自组装过程对于其分类以及评估重组表达疏水蛋白的正确折叠和功能具有重要意义。
利用淀粉样结合染料(如硫磺素T(ThT))进行荧光检测,可方便地监测疏水蛋白的自组装过程,ThT能够结合淀粉样蛋白中的交叉β结构20。ThT分子中含有一个单键,将两个芳香环分隔开,通常情况下可自由旋转。 当ThT结合到交叉β结构时,该旋转受到限制,从而产生荧光20。由于其具有选择性荧光特性,ThT被广泛用于监测疏水蛋白在气-水界面的自组装过程21,22,23,24,25,26,27,28。ThT检测可提供疏水蛋白自组装过程的时间依赖性动力学信息23,27,28,相较于原子力显微镜(AFM)和接触角测量等技术更具优势,后者通量较低,且不适用于时间依赖性分析。此外,ThT在结合交叉β结构后荧光显著增强,而游离状态下的荧光极弱20。这些特性使得ThT检测成为一种简单且灵敏的监测疏水蛋白自组装的方法,可与更深入的结构分析技术相互补充。
鉴于疏水蛋白具有多种应用,迫切需要建立便捷的实验方案来监测其自组装过程。本文所述方案为重组疏水蛋白的纯化优化及其功能表征提供了系统框架。此前,Morris 和 Sunde(2013)已概述了在大肠杆菌中进行重组表达的方案 大肠杆菌,疏水蛋白自组装的纯化及基于ThT的监测21. 本研究通过描述一种改良的纯化疏水蛋白SC16的方法,拓展了上述技术。SC16是一种疏水蛋白 I类疏水蛋白(来自 裂褶菌) 能够轻松纯化的 E. coli 无需对二硫键进行变性、还原或再氧化。所得SC16蛋白具有功能活性,可通过基于硫磺素T(ThT)的终点法和动力学自组装检测方法监测棒状体的形成来验证。本文旨在详细阐述一种全面且简化的重组生产、纯化及基于ThT的功能性检测方法,用于IB类疏水蛋白SC16。
方案
本研究不涉及人类参与者、脊椎动物或组织取样,因此无需伦理审批。
1. SC16疏水蛋白的表达 E. coli
- 使用编码带有六组氨酸标签的蛋白G的B1结构域与SC16融合的质粒(H-GB1-SC16)通过42°C热激45秒转化SHuffle T7 Express E. coli细胞。
注:选择SHuffle T7 Express细胞是因为其能够促进正确的二硫键形成29。H-GB1-SC16质粒可通过限制性酶切克隆方法构建,如先前所述30。 - 取单克隆接种于2 mL含100 µg mL−1氨苄青霉素的溶菌肉汤(LB)培养基中,37°C振荡培养过夜。
- 取1 mL过夜培养物接种至1 L LB培养基中(置于2.8 L带挡板的圆底烧瓶中),37°C振荡培养(转速约120–135 rpm,振幅19 mm),直至600 nm处光密度达到0.6 ± 0.1。
- 加入异丙基-β-D-1-硫代半乳糖吡喃糖苷至终浓度0.5 mM,以诱导H-GB1-SC16表达。20°C下振荡培养过夜。
注:选择该温度是为了降低包涵体形成和错误折叠的风险31。 - 以4000 × g离心20分钟收集细胞,倾去上清液。
暂停点:可在进行纯化前将细胞沉淀在−20°C保存最多3周。避免反复冻融。
2. 疏水蛋白SC16的纯化
- 将细胞沉淀重悬于30 mL裂解缓冲液(20 mM 三(羟甲基)氨基甲烷 [Tris],pH 8,250 mM NaCl)中。
- 将悬液置于80°C水浴中孵育15分钟以裂解细胞。孵育期间每5分钟轻柔混匀一次。
注意:此步骤依赖于SC16的热稳定性,可能不适用于其他蛋白质。
警告:操作80°C的离心管和水浴时请使用耐热手套。混匀和取出离心管时避免热液体飞溅。 - 在4°C下以25,000 × g离心细胞裂解物20分钟。将上清液加载至含有2–3 mL Ni2+负载的固定化金属离子亲和层析(IMAC)树脂的重力柱中。
- 用含30 mM咪唑的裂解缓冲液洗涤柱子。使用含300 mM咪唑的裂解缓冲液10 mL洗脱蛋白。
- 将洗脱组分使用截留分子量为3500 kDa的透析袋,在含Tris(pH 8;20 mM)和NaCl(50 mM)的1 L缓冲液中透析3小时,搅拌速度为100 rpm。
注意:透析过程中的搅拌速度可根据实验装置(例如透析袋体积和烧杯几何形状)调整。搅拌速度应以能引起透析袋轻微旋转的最低转速为宜。 - 将凝血酶蛋白酶(20 U mg−1 融合蛋白)直接加入透析袋(总反应体积10 mL)中以切割融合蛋白。更换缓冲液。
暂停点:加入蛋白酶并更换缓冲液后,在4°C下继续透析过夜。次日继续纯化步骤。通过SDS-PAGE验证切割完成情况(预期约18 kDa条带消失,出现约10 kDa和约8 kDa条带)。 - 将透析后的样品重新加载至Ni2+负载的IMAC柱。分别用约12 mL含30 mM和300 mM咪唑的缓冲液进行洗涤和洗脱。
- 在还原条件下(上样缓冲液中加入β-巯基乙醇)通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分析收集的各组分。通过洗涤组分中是否存在预期分子量(约10 kDa)的条带来鉴定SC16。将含有SC16的整个洗涤组分在含Tris(pH 8;20 mM)和NaCl(50 mM)的1 L缓冲液中透析3小时,以去除残留的咪唑。
注意:SC16通常出现在洗涤组分中,而H-GB1通常富集于洗脱组分中。洗脱组分中也可能含有少量残留的SC16。 - 采用任一合适方法定量SC16(例如高效液相色谱氨基酸分析、Bradford法或280 nm处吸光度测定)。使用该方法,预期每升培养物可获得≥5 mg SC16。
注意:本课题组常规使用预测消光系数3480 M−1 cm−1 32,通过280 nm处吸光度测定SC16含量。由于操作简便,这是SC16定量的首选方法。 - 在纯化过程中各阶段收集样品用于SDS-PAGE分析。
3. SC16 自组装的终点荧光检测
- 配制三份反应混合物,每份含有 50 µg mL−1 SC16、50 mM NaCl,以及各 20 mM 的 2-(N-吗啉代)乙磺酸(MES)、Tris 和磷酸钠。提前配制缓冲液母液,包含 MES、Tris 和磷酸钠,并通过逐滴加入浓 HCl 或 1 M NaOH 调节至最终 pH 为 6.5。在开始检测前立即加入蛋白和 NaCl。
注意:可在该步骤设置对照。例如,设置不进行翻转旋转的 SC16 阳性对照,以及仅含缓冲液的阴性对照。已测试过 25–100 µg mL−1 范围内的 SC16 浓度,其中 50 µg mL−1 时结果最为一致。可根据需要优化此参数。 - 将混合物转移至 2–5 mL 离心管中。
注意:确保样品管填充量不超过其容量的 50%,以便在倒置时充分混匀。 - 以 20 rpm 的速度翻转旋转试管 2 小时。将每份样品各 100 µL 转移至不透明黑色 96 孔板中,该板具有圆形烟囱式孔。
- 向所有样品中加入过滤后的硫黄素 T(ThT),使其终浓度为 20 µM。
- 将酶标仪的激发波长和发射波长设定在适合 ThT 荧光检测的范围内33,34,35,36,增益设为 55,积分时间为 20 µs。在 2 小时旋转结束后立即测定各样品的荧光强度。
注意:文献报道的 ThT 激发和发射最大波长分别为 450 nm 和 490 nm37。本实验根据可用光学滤光片,分别采用 438 nm 和 494 nm 的激发与发射波长。翻转旋转操作使用自制旋转装置完成。
4. SC16 自组装的动力学荧光分析
- 在加入 SC16 和 ThT 之前,使用浓 HCl 或 1 M NaOH 将缓冲液储备液(含 Tris、MES 和磷酸钠)的 pH 调整至 5.5、6.5、7.5 或 8.5。混合缓冲体系可在不改变缓冲液种类的情况下实现 pH 调节。
- 在黑色 96 孔板中制备三份平行的 100 µL 反应混合液。
- 每孔包含 50 µg mL−1 SC16、50 mM NaCl、20 µM 过滤后的 ThT,以及各 20 mM 的 MES、Tris 和磷酸钠。设置仅含 ThT 和缓冲液(不含 SC16)的阴性对照组。
- 将 96 孔板放入微孔板读数仪中。
- 设定激发波长和发射波长在 ThT 荧光检测的合适范围内33,34,35,36。
- 设置读数仪每 70 秒进行一次循环测量。
- 每个循环包括 60 秒、432 rpm 的轨道振荡,随后静置 10 秒。
- 设定积分时间为 20 µs,增益为 55。
- 运行 120 个循环,以监测 2 小时振荡过程中荧光信号的变化。
注意:确保选择轨道振荡模式;线性振荡可能导致自组装结果不一致或不理想。
结果
图1 展示了考马斯亮蓝染色的SDS-PAGE凝胶,用于监测SC16的纯化过程。图中代码分别代表:蛋白标记物(M)、诱导前(B)、诱导后(A)、可溶性组分(S)、穿流组分(F)、洗涤组分(W)、洗脱组分(E)和透析后样品(D)。在第一次IMAC洗脱组分中,出现一条分子量约为~18 kDa的条带,对应于凝血酶切割前的H-GB1-SC16融合蛋白。经凝血酶切割后,第二次IMAC的穿流组分中未检测到蛋白,而在洗涤组分中出现一条约~10 kDa的条带,对应SC16。在第二次IMAC洗脱组分中,仍残留少量SC16以及一条约~8 kDa的较小蛋白条带,对应H-GB1。纯化后的SC16随后用于终点法和动力学自组装实验。这些结果证实SC16成功纯化,表现为出现了预期分子量的蛋白条带,并且在凝血酶切割后实现了H-GB1融合标签的有效分离。
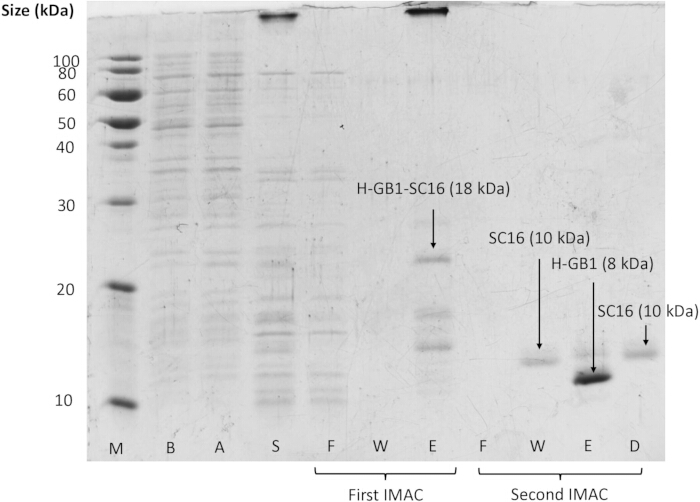
图1。SC16蛋白在第一次(凝血酶切割前)和第二次(凝血酶切割后)IMAC分离过程中的SDS-PAGE分析。 显示了分子量标记物(M),以及诱导前(B)、诱导后(A)、细胞裂解上清(S)、穿流(F)、洗涤(W)和洗脱(E)组分,以及透析后的样品(D)。请点击此处查看该图的放大版本。
SC16自组装的终点ThT检测 表1 与未旋转的含蛋白对照组相比,室温旋转2小时后ThT荧光强度增加了11倍。同样,缓冲液样本在旋转后未观察到荧光强度的显著变化。SC16在振荡条件下ThT荧光的增强表明其形成了类淀粉样β-折叠结构,提示SC16发生了自组装。24,25这些结果表明,所述基于荧光的检测方法能够有效监测 SC16 在测试条件下的自组装过程。
| 样品 | ThT 荧光强度(计数 ± 标准差) |
| 静置培养的 SC16 | 2679 ± 177 |
| 旋转培养后的 SC16 | 30315 ± 2141 |
| 旋转培养后的缓冲液 | 665 ± 888 |
表1. SC16样品在端对端旋转后采集的硫磺素T(ThT)荧光测量结果。 SC16(50 µg mL−1)样品在无搅拌条件下孵育或经2小时旋转处理。在进行荧光检测前加入ThT(20 µM)。荧光在438 nm激发波长和494 nm发射波长下测定,结果以原始计数值表示。数据以均值±标准差(SD)表示。
在不同缓冲液中振荡数小时后,SC16的动力学自组装实验结果如图2所示。典型的淀粉样纤维化动力学自组装曲线呈S型,包括特征性的延迟期、生长期和平台期38。对于SC16,在初始阶段未观察到明显的延迟期,尽管该现象已在其他疏水蛋白(如EAS)中有所报道21,23。在各个pH条件下的自组装曲线相似,均表现出较强的正斜率,对应于棒状结构的形成。在振荡约20分钟后,荧光强度达到平台期,随后缓慢下降。在不含SC16的对照样品中,整个实验过程中荧光信号无明显变化。
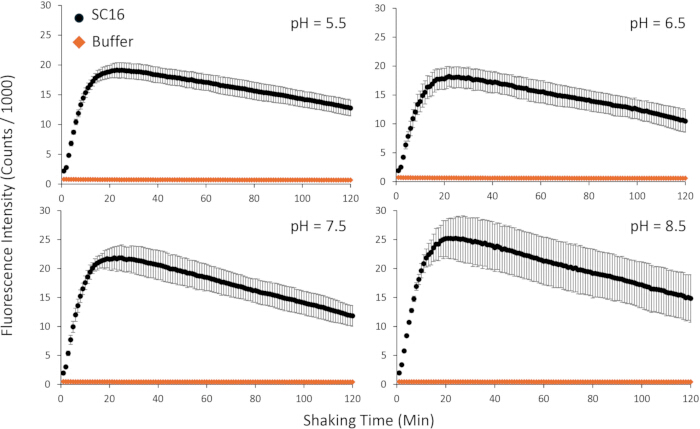
图 2.使用动力学 ThT 荧光检测法测定的 SC16 自组装曲线。 SC16 在含 20 µM ThT、50 mM NaCl、20 mM 磷酸钠、20 mM MES 和 20 mM Tris 的多组分缓冲液中配制,浓度为 50 µg mL−1。每次测量前进行 60 秒的轨道振荡,并静置 10 秒。横轴表示振荡时间(总计 2 小时)。荧光检测的激发波长和发射波长分别为 438 nm 和 494 nm,结果以计数 × 10−3 表示。误差线代表标准偏差(n = 3)。各子图分别对应 pH 5.5(左上)、6.5(右上)、7.5(左下)和 8.5(右下)。 请点击此处查看该图的放大版本。
图3展示了一个动力学自组装检测中结果不理想的示例。在此情况下,检测按照方案部分所述完成,但使用的是“线性”振荡模式,而非“轨道”振荡模式。
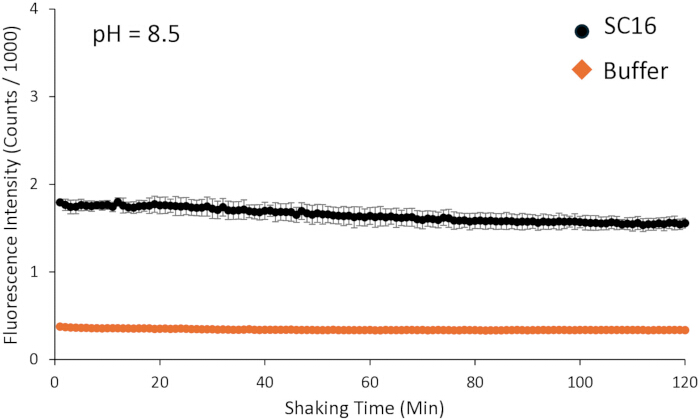
图 3.使用动力学 ThT 荧光检测法获得的 SC16 次优动力学自组装数据示例。 本实验中采用线性振荡而非轨道振荡。样品制备方法同图 2 所述。测量在 60 秒线性振荡及 10 秒静置后进行。横轴表示振荡时间(总计 2 小时)。荧光检测使用 438 nm 和 494 nm 的激发波长与发射波长,结果以计数 × 10−3 表示。误差线代表标准偏差(n = 3)。 请点击此处查看该图的放大版本。
讨论
本文总结了疏水蛋白SC16的表达与纯化方案,以及适用于SC16自组装的低通量和高通量荧光检测方法,每种方法各有优缺点。这些工作流程可推广至相关体系,用于监测蛋白质的自组装过程。在本方案中,SC16纯化前采用加热法裂解细胞,不同于大多数使用传统方法裂解大肠杆菌(E. coli)的方案。我们发现H-GB1-SC16在80°C以下具有可溶性和热稳定性,加热裂解可作为初步样品纯化步骤,使细胞裂解液中非热稳定性的蛋白酶及其他杂质蛋白发生沉淀39。然而,SC16属于特例,因为疏水蛋白通常以不溶性包涵体形式表达12,21,40。当以包涵体形式表达时,通常需要在变性条件下溶解,再通过已建立的方案进行复性21,40,41。
在本实验方案中,采用SDS-PAGE对SC16纯化的每一步进行评估,包括诱导前后细胞沉淀、细胞裂解后的可溶性组分以及后续所有层析柱洗脱组分。如图1所示;然而,与H-GB1相比,对应于SC16的条带相对较弱。我们发现,对于包括SC16在内的许多疏水蛋白(hydrophobins),获得一致且清晰的考马斯亮蓝染色结果具有挑战性。当使用β-巯基乙醇作为还原剂时,SC16通常呈现中等强度的条带(图1)。在某些情况下,可能需要采用银染法以更清晰地观察疏水蛋白。
终点法和动力学荧光检测可用于监测SC16的自组装过程。终点法硫磺素T(ThT)检测的优势在于能够快速、简便地评估自组装情况。除了在室温旋转2小时后荧光信号增强外,自组装过程通常还伴随着反应管中出现可见的白色浑浊。该检测采用简单的台式旋转仪进行混匀,可最大限度减少对酶标仪组件的磨损。根据我们的经验,该检测对仪器参数(如酶标仪中的振荡设置)相对不敏感。
动力学ThT检测可提供有关自组装过程的更详细信息。例如,SC16的自组装在很大程度上不依赖于缓冲液条件24,尽管在较高pH值下,重复实验之间的变异程度更大。然而,这种行为在疏水蛋白中并非普遍现象,已知盐浓度、pH24,27,42以及添加剂(如去污剂或醇类)等因素会影响疏水蛋白的自组装过程27,28。例如,疏水蛋白SLH4在低离子强度和低pH条件下表现出更高效的自组装24,而HFBII的自组装据报道与pH和电解质浓度无关42,与SC16类似。其他研究已将添加剂对棒状结构形成的影响与表面张力的变化相关联27,28。鉴于这些差异,针对每个体系都应考虑缓冲液组成和pH,并监测其对自组装曲线(包括滞后期、生长期和平台期)的影响。
一个重要的局限性是,基于动力学的硫磺素T(ThT)检测对微孔板读数仪的仪器参数高度敏感,不同仪器之间结果可能存在差异。例如,在轨道振荡(圆周运动)与线性振荡(往复运动)两种摇动模式下,SC16的自组装行为表现出显著差异(分别为图2和图3)。尽管基于ThT的检测方法可用于有效模拟疏水蛋白的自组装过程,但由于其选择性存在变异性,该方法具有固有的局限性,可能导致假阳性或假阴性信号43。此外,疏水蛋白聚集体产生的光散射可能影响测得的荧光强度44,从而降低测量的准确性。样品稀释和缩短光程可有助于减轻这些影响。
本文总结的实验方案提供了纯化和监测SC16自组装的有效方法。终点检测法操作简便,对仪器依赖性较低;而动力学检测法则能提供详细的时间分辨信息,但对仪器参数更为敏感。本方案概述了一种纯化SC16的简便方法,可能也适用于其他在大肠杆菌(E. coli)中表达且正确折叠的疏水蛋白。尽管本研究所述的硫黄素T(ThT)检测法存在固有局限性,但与原子力显微镜(AFM)或接触角测量等单一技术相比,仍可提供易于获取的、关于自组装过程的时间依赖性信息。这些工作流程可适用于相关蛋白质,尤其在生物材料开发、药物递送以及其他需要理解蛋白质自组装行为的领域中具有重要意义。
披露
作者声明不存在任何竞争性财务或非财务利益。
致谢
作者感谢新前沿研究基金(探索项目;NFRFE-2023-00322)和加拿大自然科学与工程研究委员会(NSERC;发现基金;RGPIN-2024-06440)提供的资金支持。IED 获得加拿大研究生奖学金——硕士项目(NSERC)的支持。RH 获得达尔豪斯大学医学院 2024 年研究生奖学金项目中 Molly Appeal 捐赠者以及新斯科舍省研究生奖学金(博士层次)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2-(N-吗啉代)乙磺酸 (MES) | Sigma-Aldrich | 145224-94-8 | 用于自组装实验的缓冲液组分 |
| 5 mL 圆底聚苯乙烯管 | Falcon | 352054 | 用于低通量自组装实验 |
| 96 孔黑色聚苯乙烯微孔板 | Grenier | 655076 | 用于微孔板读数仪中的荧光检测 |
| 丙烯酰胺/双丙烯酰胺 (29:1) 溶液 (40%) | BioShop | ACR004.500 | 用于制备 SDS-PAGE 凝胶 |
| 琼脂 | BioShop | AGR002.1 | 用于制备含氨苄青霉素抗性的 LB 琼脂平板 |
| 氨苄青霉素 | IBI Scientific | IB02040 | 用于 LB-琼脂平板的抗生素 |
| 带挡板的 2.8 L Fernbach 三角烧瓶 | Fisher Scientific | 955239 | 用于大体积细菌培养 |
| β-巯基乙醇 | TCI Chemicals | 60-24-2 | 用于 SDS-PAGE 样品制备的还原剂 |
| 层析柱 (1.5 cm 直径重力柱) | Bio-Rad | 7371522 | 用于镍亲和层析纯化 |
| 透析袋 (3500 kDa 截留分子量) | BioDesign | D302 | 用于纯化过程中的缓冲液置换 |
| 发射滤光片 | Edmund Optics | 84080 | 用于 ThT 实验 (494 nm,带宽 20 nm) |
| 激发滤光片 | Edmund Optics | 67012 | 用于 ThT 实验 (438 nm,带宽 24 nm) |
| 荧光微孔板读数仪 | Tecan | Infinite F200 Pro | 用于测定 ThT 荧光强度 |
| 加热板 | Lab Fish | HS5C | 用于带温度监控的水浴装置 |
| 盐酸 (HCl) | Fisher Chemical | A144-212 | 用于缓冲液的 pH 调节 |
| 咪唑 | TCI Chemicals | 288-32-4 | 用于 IMAC 纯化 (洗涤和洗脱缓冲液) |
| 异丙基-β-D-硫代半乳糖吡喃糖苷 (IPTG) | Sigma-Aldrich | 367-93-1 | 用于诱导大肠杆菌中的蛋白表达 |
| LB 培养基 (Lennox 型) | BioShop | LBL405.5 | 用于细菌培养的生长培养基 |
| 低速冷冻离心机 | Beckman Coulter | 360291 | 用于细胞收集和储存前沉淀 |
| 镍-NTA 琼脂糖微珠 | GoldBio | H-350-50 | 用于纯化带 His 标签蛋白的层析树脂 |
| SC16 质粒 | BioBasic | N/A | 编码 H-GB1-SC16 融合蛋白的定制 DNA 构建体 |
| SHuffle T7 Express 感受态大肠杆菌 | New England Biolabs | C3029J | 用于重组蛋白表达的宿主菌株 |
| 氯化钠 (NaCl) | BioShop | SOD001.5 | 缓冲液组分及离子强度调节剂 |
| 氢氧化钠 (NaOH) | Fisher Chemical | SS255-1 | 用于缓冲液的 pH 调节 |
| 磷酸钠 | BioShop | SPD579.1 | 用于维持 pH 的缓冲液组分 |
| 分光光度计 | Pharmacia Biotech | 5096 | 用于 SC16 的定量分析 |
| 硫黄素 T (ThT) | Acros Organics | 2390-54-7 | 用于监测蛋白自组装的荧光染料 |
| 凝血酶蛋白酶 | Sigma-Aldrich | 04-04-9002 | 用于切割 H-GB1-SC16 融合蛋白 |
| 三(羟甲基)氨基甲烷 (Tris) | BioShop | TRS001.5 | 用于纯化和实验溶液中的缓冲液 |
| 高速冷冻离心机 | Sorvall | 46915 | 用于细胞裂解后裂解液的澄清 |
| SDS-PAGE 电泳装置 | Bio-Rad | 1658000EDU | 用于制备和运行 SDS-PAGE 凝胶 |
重印与许可
