黏附侵袭性大肠杆菌(Escherichia coli)菌株中的抗生素耐药性给传统庆大霉素保护实验评估细菌侵袭能力带来了挑战。本文描述了一种改进的方法,可通过定量计数菌落形成单位以及通过免疫荧光共聚焦显微镜对感染细胞进行定性观察,从而更全面地评估细菌侵袭能力。
本文内容
摘要
摘要
上皮细胞侵袭是许多肠道病原体的关键表型,包括Salmonella、Shigella和Vibrio。近年来新出现的一种侵袭性病原体是黏附侵袭性大肠杆菌(adherent-invasive Escherichia coli,AIEC),其与炎症性肠病(inflammatory bowel disease,IBD)的发病机制相关。AIEC菌株缺乏通常与其他侵袭性病原体相关的毒力因子,使得其基因鉴定较为困难。因此,目前主要根据其侵入上皮细胞的能力,通过领域标准的庆大霉素保护实验对AIEC菌株进行表型分类。然而,由于AIEC菌株常从接受多种抗生素治疗的IBD患者中分离得到,庆大霉素耐药菌株的出现使得该实验在AIEC分类中的可靠性下降。为解决这一问题,研究人员开发了一种基于阿米卡星的替代性保护实验,用于定量和可视化AIEC的细胞侵袭能力。该实验采用阿米卡星,这是一种广谱半合成氨基糖苷类抗生素,能够有效杀灭对其他氨基糖苷类耐药的菌株,同时无法进入真核宿主细胞内部。因此,在感染过程中,细胞外的细菌被杀死,而细胞内的细菌则被"保护"存活下来。这一原理构成了定量比较菌株侵袭能力的实验基础,侵袭能力以感染后回收的菌落形成单位(colony-forming units,CFU)计算的侵袭率百分比表示。此外,该实验还可通过免疫染色感染的上皮细胞并结合共聚焦显微镜观察,实现对侵袭程度的定性评估。该方法可作为筛查IBD患者中AIEC的诊断工具,也可推广应用于其他多重耐药病原体的细胞侵袭能力检测,从而间接评估其毒力与致病性。
引言
炎症性肠病(inflammatory bowel disease, IBD),包括克罗恩病(Crohn’s disease, CD) 和溃疡性结肠炎, 是一种影响全球数百万人的慢性胃肠道炎症性疾病1尽管炎症性肠病(IBD)的全球发病率不断上升,但由于遗传、环境、微生物和免疫因素之间的复杂相互作用,其确切病因仍不明确。2,3炎症性肠病(IBD)的一个显著特征是肠道微生物组成发生改变,这种改变通常由环境因素驱动,例如工业化国家常见的高糖、高脂饮食。4,5炎症性肠病患者的肠道菌群常表现为微生物多样性降低、致病性γ-变形菌门(Gammaproteobacteria)富集以及保护性厚壁菌门(Firmicutes)减少。6,7在患有 CD, 大肠杆菌 (E. coli在肠道微生物群中富集,与肠黏膜结合并侵入肠黏膜,且与活动性及重度疾病呈正相关8,9. 这种新出现的病理型 E. coli 与克罗恩病相关的称为黏附侵袭性 大肠杆菌 (AIEC)
AIEC 是一类革兰氏阴性机会性病原菌,相较于健康对照者,更易定植于克罗恩病(CD)患者的回肠黏膜10。从 CD 患者中分离出的 AIEC 菌株在基因上具有多样性,通常跨越所有 E. coli 种系群,其中包括共生性和致病性 E. coli11。与依赖 III 型分泌系统介导宿主细胞侵袭的 Shigella 和 Salmonella 等病原菌不同,AIEC 缺乏这些保守的毒力系统12。因此,目前对 AIEC 毒力机制的理解主要基于其 in vitro 表型,其特征是能够黏附并侵入上皮细胞,并在巨噬细胞内存活10。
AIEC对上皮细胞的侵袭由多种毒力因子介导,包括I型菌毛和长极性菌毛。位于I型菌毛顶端的FimH可介导AIEC与宿主受体CEACAM6上高度糖基化的甘露糖残基结合13。这种结合促进AIEC进入肠上皮细胞,并支持其在细胞内的复制14。AIEC还可通过其长极性菌毛与微皱褶(M)细胞表面蛋白糖蛋白2之间的相互作用,黏附于位于派尔集合淋巴结上方的特化上皮细胞——M细胞15,16。该黏附作用使AIEC能够穿越M细胞,到达下方的巨噬细胞,并触发促炎性细胞因子(如TNF-α)的表达。TNF-α不仅促进炎症反应,还支持AIEC在巨噬细胞内的复制17,18。这些致病机制被认为可在宿主体内持续引发慢性炎症,这在克罗恩病(CD)中已有观察证实。
AIEC 菌株由其体外(in vitro)表型定义,因此庆大霉素保护实验对于菌株分类和毒力因子的发现至关重要8。该方法可能因存在庆大霉素耐药分离株而变得复杂,导致这些菌株被错误归类为侵袭性菌株11。为避免这一问题,研究人员测试了其他可有效杀灭庆大霉素耐药菌株但无法穿透宿主细胞膜的替代抗生素。通过该策略,发现阿米卡星可作为庆大霉素的合适替代物,其在标准侵袭实验中具有与庆大霉素相当的效果和兼容性,且细胞毒性极低;此前研究中台盼蓝染色结果已证实其低毒性,本研究进一步通过乳酸脱氢酶释放实验予以验证(补充图1)11。阿米卡星是一种由卡那霉素衍生的半合成氨基糖苷类抗生素,通过干扰蛋白质合成抑制细菌生长19。阿米卡星对多重耐药的革兰氏阴性菌特别有效,包括假单胞菌属(Pseudomonas)、不动杆菌属(Acinetobacter)和埃希菌属(Escherichia)菌种19。值得注意的是,阿米卡星在卡那霉素骨架基础上的结构修饰使其对细菌产生的氨基糖苷类失活酶具有较低的敏感性19。因此,在侵袭实验中,阿米卡星是靶向多重耐药细菌时一种可靠的庆大霉素替代方案。以下实验方案描述了如何利用参考菌株 NRG857c 和临床分离株,通过阿米卡星保护实验评估大肠杆菌(E. coli)的侵袭表型。
方案
注意:本方案描述了一种评估AIEC菌株侵入Caco-2上皮细胞能力的方法。本方案中使用的阿米卡星浓度为240 µ微克/毫升(g/mL)对应于10× 最低抑菌浓度(MIC),通过使用阿米卡星 MIC 试纸条测定来自 13 名炎症性肠病患者的 32 株代表性 AIEC 临床分离株获得11研究人员应在进行实验前确定其自身AIEC分离株的最小抑菌浓度(MIC)(参见 材料表),因为不同分离株的抗生素敏感性可能存在差异。第1部分详细介绍了用于定量测定侵袭率百分比的阿米卡星保护实验,第2部分描述了用于共聚焦显微镜观察的阿米卡星保护实验。
1. 用于定量分析侵袭百分比的阿米卡星保护实验
- 24孔板的胶原蛋白包被
- 在50 mL锥形管中,将35.29 µL无菌冰醋酸(见材料表)溶于30 mL 1× PBS(见材料表)中。
- 将300 µL胶原蛋白(见材料表)加入含醋酸的1× PBS溶液中。
- 涡旋振荡溶液10秒 以充分混匀。
- 向无菌24孔组织培养板的每孔中加入250 µL稀释后的胶原蛋白溶液。
注意:30 mL胶原蛋白溶液足以包被约五个 24孔板。 - 将板子向各个方向倾斜,确保溶液均匀覆盖每孔底部。
- 于37 °C孵育2小时 ,使胶原蛋白牢固黏附于塑料表面。
- 孵育结束后,吸除每孔中的胶原蛋白溶液。
- 向每孔加入1 mL 1× PBS 以洗去残留胶原蛋白,随后吸除液体。重复此步骤2次(共洗涤3次)。
- 将板子置于生物安全柜内干燥,确保所有可见水分 完全蒸发。
注意:板子可立即用于细胞接种,也可在室温下储存。储存时,需用无菌封口膜密封板子外缘,或将其放入无菌自封袋中。
- 阿米卡星储备液的制备
- 称取240 mg阿米卡星硫酸盐(见 材料表)并转移至1.5 mL微量离心管中。
- 用移液器取1 mL无菌水,通过涡旋振荡溶解阿米卡星,得到终浓度为240 mg/mL(1000× 库存
- 制备20 µ将阿米卡星溶液分装成 L 份,于 -20 ℃ 保存 °C.
注意:阿米卡星在 -20℃ 下稳定 °在 6–12 个月内于 C 条件下保存。制备单次使用分装样品,以尽量减少反复冻融循环。
- Caco-2 细胞的制备
- 从冻存菌种中复苏Caco-2细胞
- 通过在高糖 Dulbecco 改良 Eagle 培养基(DMEM,参见 材料表) 加入10%胎牛血清(FBS,参见 材料表)和 1% 抗生素-抗真菌溶液(参见 材料表).
- 将培养基预热至37 °30分钟的C水浴 分钟
- 将冻存的 Caco-2 细胞冻存管置于 37 °37°C 水浴中孵育 1–2 分钟,直至细胞完全解冻。
- 从水浴中取出小瓶,并用70%乙醇喷洒小瓶外部。
- 在生物安全柜内,用移液器将细胞加入含有9 mL完全培养基的15 mL锥形管中。
- 500 × g 离心细胞 × g 室温下孵育5分钟。
- 吸弃上清液,并将细胞沉淀重悬于5 mL完全培养基中。
- 将细胞转移至 75 cm² 培养瓶中2 含有10 mL温热完全培养基的组织培养瓶(T75)
- 轻轻晃动培养板3次,确保细胞均匀分布在培养板底部。
- 在37℃下孵育细胞 °5% CO₂条件下37°C培养2 待细胞生长至约90%汇合度(6–7天)。
注意:使用光学显微镜通过视觉估测细胞融合度。细胞恢复期间每3天更换一次培养基。
- 接种Caco-2细胞
- 预热完全培养基和0.25%(w/v)胰蛋白酶-EDTA(见 材料表) 在 37 °C 水浴
- 当 Caco-2 细胞达到约 90% 汇合度时,吸除细胞培养基,加入 2 mL 胰蛋白酶-EDTA 溶液。倾斜培养瓶,使胰蛋白酶溶液覆盖瓶底全部表面,以确保完全灭活残留的胎牛血清(FBS)。
- 吸弃胰蛋白酶-EDTA溶液,加入3 mL胰蛋白酶-EDTA溶液。将细胞在37℃孵育 °C,含5% CO₂2 孵育期间在不同时间点使用光学显微镜观察细胞,若细胞变圆,表明细胞已脱落,孵育时间为5–15分钟。
注意:避免撞击培养瓶侧面以促进细胞脱落,因为这可能导致细胞成团。 - 用移液器加入6 mL完全培养基以终止胰蛋白酶-EDTA溶液的作用,并通过轻轻吹打混匀,使细胞重新悬浮。
- 将细胞用移液器转移至15 mL锥形管中,于500 ×g离心 × g 离心5分钟以沉淀细胞。
- 吸弃培养基,并将细胞重悬于3 mL完全培养基中。
- 转移10 µ将悬浮的 Caco-2 细胞 1 L 转移至 1.5 mL 微量离心管中。加入 10 µL 的台盼蓝染料(参见 材料表将溶液加入1.5 mL 微量离心管中,用移液器上下吹打数次以混匀。
- 移液10 µL 的 Caco-2/台盼蓝混合液加入细胞计数板(参见 材料表)。计数活细胞数量以计算细胞存活率。
注意:在计数存在的 Caco-2 细胞数量时,仅考虑活细胞数量,而非用于接种的总细胞数。 - 在24孔板或T75培养瓶中接种Caco-2细胞。
- 对于24孔板,按以下步骤操作:
- 以 1 × 10⁵ 个细胞/孔的浓度接种 Caco-2 细胞5 细胞/mL,使用以下公式:
[(1 × 10⁵ 细胞数(mL)= [每孔细胞数 × (铺板孔数 + 2)] / 活细胞浓度(细胞/mL) - 从步骤 3.2.6 中悬浮的 Caco-2 细胞中移取上述计算体积的细胞至 15 mL 圆锥管中。根据以下公式计算需加入细胞中的完全培养基体积:
(接种孔数 + 2 孔)- 细胞悬液(mL)= 培养基(mL)
注意: "+2 孔" 计算中需考虑移液误差。 - 将上述计算好的培养基体积加入含有 Caco-2 细胞的 15 mL 圆锥形离心管中,通过反复吹打数次混匀。
- 用移液器吸取1 mL Caco-2细胞悬液(完全培养基,终浓度为1 × 10⁵ cells/mL),接种至含盖玻片的24孔板中。5 细胞/mL)加入至每孔已包被胶原的24孔板中。
- 在37℃下孵育培养板 °5% CO₂条件下37°C培养2 待细胞生长至约90%汇合度(3–4天)。
- 以 1 × 10⁵ 个细胞/孔的浓度接种 Caco-2 细胞5 细胞/mL,使用以下公式:
- 对于T75培养瓶,请执行以下步骤:
- 转移 7.5 × 10⁵ 使用以下公式将活细胞接种至T75培养瓶:
[(7.5 × 10⁵ 细胞数) / [活细胞浓度 (cells/mL)] = 细胞数 (mL)
注:添加至T75培养瓶的活细胞数量是根据ATCC关于Caco-2细胞培养的指南确定的。 - 移除上述计算体积的细胞,并转移至T75培养瓶中。根据以下公式计算需添加的完全培养基体积:
15 mL - 加入锥形瓶的细胞体积 = 培养基体积(mL) - 将上述计算好的培养基体积用移液器加入T75培养瓶中。
- 轻轻晃动培养板数次,使细胞均匀分散在培养瓶底部。37 ℃ 培养 °5% CO₂条件下培养2 待细胞生长至约90%汇合度(3–4天)。
- 转移 7.5 × 10⁵ 使用以下公式将活细胞接种至T75培养瓶:
- 从冻存菌种中复苏Caco-2细胞
- 阿米卡星保护实验
注意:确保所有细胞培养基均已预热至 37 °C 实验开始之前。- 细菌的制备
- 使用无菌的木棒或无菌移液器吸头,轻轻刮取保存在 -80 ℃ 的细菌甘油冻存管中的细菌 °C,并在LB琼脂平板上划线以获得单菌落。将平板于37℃培养 °C 过夜。
- 使用无菌的木签或无菌移液器吸头,从琼脂平板上挑取单个菌落,接种至3 mL LB肉汤中。将培养物于37℃培养 °37°C、200 rpm 振荡培养过夜。
- 将过夜培养物在1 mL LB肉汤中进行1:10稀释,并在600 nm处测定光密度(OD600使用分光光度计测定培养物的光密度(OD)。
- 感染复数(MOI)计算
- 转移100 µ将过夜培养物的 L 转移至 1.5 mL 微量离心管中,于 6000 转离心 × g 4℃下离心10分钟 °C.
- 小心吸出上清液,避免扰动细胞沉淀。将沉淀重悬于1 mL无血清且不含抗生素-抗真菌剂的培养基中。
注意:这是细菌过夜培养物的1:10稀释液。在计算MOI时,应使用未经稀释的原始OD值600 步骤4.1.3中计算的稀释后过夜培养物的值,而非OD600 经稀释因子校正的值。 - 根据以下计算公式,计算从步骤 4.2.2 中需添加的细菌悬液体积,以感染复数(MOI)为 10 的条件感染 Caco-2 细胞:
[1 OD单位/2.4 × 109 细菌 × [10 细菌/细胞 × [1 mL × OD 1:10 × 1 ×105 ×103 = 体积(μL)
注意:仔细记录每份样品的计算体积,该数值后续将用于计算接种物的CFU/mL。此细菌悬液体积仅适用于24孔板中的一个孔。 - 将步骤4.2.3中计算好的细菌悬液转移至一支无菌的1.5 mL微量离心管中,制备感染用培养基。加入1 mL不含血清和抗生素-抗真菌剂的培养基,轻轻吹打数次混匀。
- Caco-2 细胞感染
- 从培养箱中取出含有Caco-2细胞单层的24孔板,吸除完全培养基。
- 向每孔加入1 mL无血清且不含抗生素-抗真菌剂的培养基,然后吸除以去除含血清培养基的残留。重复此步骤1次(共洗涤2次)。
注意:抽吸时应降低真空压力,以避免破坏细胞单层。 - 从步骤4.2.4中的感染培养基中吸取1 mL,加入至含有Caco-2细胞的24孔板的每个孔中。
- 将24孔板在500 × g下离心 × g 在室温下孵育15分钟,以同步细菌与上皮细胞的接触。
- 将24孔板在37℃孵育 °5% CO₂条件下培养2 孵育3小时以允许细菌侵入。
- 在孵育期间,通过在无菌1中进行10倍系列稀释,测定步骤4.2.2中稀释的过夜培养物的CFU/mL× 使用96孔板的PBS
- 每个稀释度的制备:转移200 µ将步骤4.2.2中稀释的过夜培养物100 μL加入到平板的第一个孔中。
- 移液20 µ将 1 L 培养物转移至下一列,其中含有 180 µ1 升× PBS。用移液器上下吹打10次混匀。重复操作直至稀释至10⁻⁶。-6 每次转移时使用新的移液器吸头。
- 10孔板 µ三点重复点样稀释的 L 从10-2 到 10-6 稀释液点样至LB琼脂平板。在火焰下静置,使液滴充分渗入琼脂。
- 在 27–30 ℃ 下过夜培养平板 °C 以防止菌落过度生长,确保形成清晰、独立的单个菌落。
注意:每个样本设置三个重复点样,可提高定量准确性,并能在不同细菌浓度范围内进行检测。较低的培养温度可减缓细菌生长,从而更准确地从高浓度样品中估算菌落形成单位(CFU)。
- 通过加入 240 µg/mL 阿米卡星加入预热的无血清且无抗生素-抗真菌剂的培养基中。
- 感染3小时结束后,吸出Caco-2细胞单层中的培养基。每孔加入1 mL无血清且无抗生素-抗真菌剂的培养基。重复此步骤1次(共洗涤2次)。
- 移液1 mL的240 µ含 37°C 培养的每孔加入 g/mL 阿米卡星培养基 °C,5% CO₂2 孵育1小时以清除胞外细菌。
- 吸弃每孔中的培养基,并加入 1 mL 的 1× 用 PBS 洗涤以去除被阿米卡星杀灭的黏附细菌。重复此步骤 1 次(共洗涤 2 次)。
- 移液200 µ1% Triton-X-100 溶液 材料表) 用1稀释× 每孔加入 PBS,置于摇床中,90 rpm 振荡孵育 10 分钟,以裂解上皮细胞。
- 用移液器反复吹打每孔约30次,使细胞从24孔板上脱落。
注意:由于用胶原蛋白包被培养板可增强细胞黏附性,因此需确保单层细胞已从培养板上脱离。可通过视觉观察进行确认,比较裂解孔与未裂解孔以及无Caco-2细胞的孔,后者应呈现透明状态。 - 在96孔板中,用1对细胞裂解液进行10倍系列稀释× PBS
注意:进行连续稀释直至10-3 稀释 - 10号培养皿 µ未稀释至10倍系列稀释的三点重复取样L-3 稀释液点样至LB琼脂平板上。在火焰下使液滴充分渗入琼脂。于27–30℃过夜培养平板 °C 以防止菌落过度生长,确保形成清晰、独立的单个菌落。
- 菌落计数与侵袭率计算
- 过夜培养后,计数来自稀释过夜培养物及回收裂解液的每个点样稀释液中的菌落数。选择每个点样区域含有超过7个独立菌落的稀释度。在三个重复样本中使用相同的稀释度,计算该稀释度下回收细菌菌落的平均数量。
注意:应计数含有分离良好的单个菌落的点样稀释液,避免计数菌落相互接触的稀释液。 - 使用以下公式计算接种菌液的CFU/mL、回收的CFU/mL以及侵袭率(百分比):
接种物菌落形成单位(CFU/mL):
CFU接种物 =(平均菌落数)×(稀释倍数)×(感染培养基中的体积)(µL ×100
回收的菌落形成单位(CFU/mL):
CFU回收 =(平均菌落数)(稀释倍数) ×100
侵袭百分比(%):
侵袭率(%)= [(CFU回收)/(菌落形成单位(CFU)接种物)] × 100
- 过夜培养后,计数来自稀释过夜培养物及回收裂解液的每个点样稀释液中的菌落数。选择每个点样区域含有超过7个独立菌落的稀释度。在三个重复样本中使用相同的稀释度,计算该稀释度下回收细菌菌落的平均数量。
- 细菌的制备
2. 用于共聚焦显微镜的阿米卡星保护实验
- 无菌多聚-L-赖氨酸包被盖玻片的制备
- 在生物安全柜中,使用无菌镊子将多聚-L-赖氨酸包被的盖玻片(见材料表)放置于浸有70%乙醇的纸巾上。
- 用70%乙醇喷洒盖玻片的两面,使用无菌镊子翻转盖玻片以确保两面均被喷洒。
- 将盖玻片置于生物安全柜内紫外光下干燥,直至完全干燥。
- 在6孔板中接种Caco-2细胞
- 在生物安全柜中,将1个经多聚-L-赖氨酸包被的盖玻片放入6孔板的每一孔中。
- 重复“Caco-2细胞接种”部分中的步骤3.2.1–3.2.8。
- 使用以下公式,以1 × 10⁵ 个细胞/mL的浓度在6孔板中接种Caco-2细胞:
[(1 × 10⁵ 个细胞)(接种孔数 + 2)] / [活细胞计数浓度(个细胞/mL)] × 2 = 细胞体积(mL)
注:该数值乘以2是为了补偿使用6孔板时每孔需加入2 mL培养基。 - 将上述计算所得体积的细胞悬液移入15 mL锥形管中。使用以下公式计算需加入的完全培养基体积:
(接种孔数 + 2孔) × 2 - 细胞体积(mL) = 培养基体积(mL) - 将上述计算所得体积的培养基加入含有Caco-2细胞的15 mL锥形管中,并通过反复吹打混匀。
- 向6孔板的每孔中加入2 mL含完全培养基的Caco-2细胞悬液(最终浓度为1 × 10⁵ 个细胞/mL)。
- 将培养板置于37 °C、5% CO2 条件下孵育,直至细胞达到约90%融合度(2–3天)。
- 阿米卡星保护实验
- 按照第1节中4.1–4.3.10步骤所述进行阿米卡星保护实验。
- 免疫荧光染色
- Caco-2细胞的固定与通透
- 向每孔加入1 mL用1× PBS稀释的4%多聚甲醛(见材料表),室温避光孵育10分钟以固定细胞。
- 吸去每孔液体,加入1 mL 1× PBS洗涤细胞。重复此步骤2次(共洗涤3次)。
注:细胞可在4 °C的1X PBS中保存数天。 - 向每孔加入1 mL 0.1% Triton-X-100,室温孵育10分钟以通透细胞。
- 吸去Triton-X-100溶液,向每孔加入1 mL 1× PBS,孵育5分钟。重复此步骤2次(共洗涤3次)。
- 封闭与抗体染色
- 为防止非特异性抗体结合,使用含1%牛血清白蛋白(BSA)、22.52 mg/mL甘氨酸及0.1% Tween20的1× PBS配制封闭液(见材料表)。
- 向每孔加入1 mL封闭液,室温孵育1小时。
注:封闭步骤也可在4 °C孵育16小时完成。 - 吸去封闭液,加入用封闭液稀释的兔抗E. coli一抗(见材料表,推荐稀释比例为1:500),室温孵育1小时。
注:一抗孵育也可在4 °C孵育16小时完成。 - 吸去一抗溶液,向每孔加入1 mL含0.1% Tween20的1× PBS,孵育5分钟。重复此步骤2次(共洗涤3次)。
- 加入用封闭液稀释的山羊抗兔Alexa Fluor 488二抗(见材料表,推荐稀释比例为1:1000),室温孵育1小时。用铝箔包裹培养板以避免荧光染料暴露于光下。
- 吸去二抗溶液,向每孔加入1 mL含0.1% Tween20的1× PBS,孵育5分钟。重复此步骤2次(共洗涤3次)。
- 复染与盖玻片封片
- 为染色宿主与细菌DNA及宿主肌动蛋白,使用10 mg/mL Hoechst(推荐稀释比例1:2000,见材料表)和Rhodamine-phalloidin(推荐稀释比例1:1000,见材料表)在1× PBS中配制混合染液。
- 向每孔加入1 mL染液,孵育10分钟。
- 吸去染液,向每孔加入1 mL 1× PBS。重复此步骤1次(共洗涤2次)。
- 加入1 mL 1× PBS,使细胞保持浸没状态。
- 在标记好的载玻片上滴加一滴封片介质(见材料表)。
- 使用弯针小心从6孔板中取出盖玻片,并翻转盖玻片,使含细胞的一面朝下接触载玻片上的封片介质。
- 将盖玻片放置于封片介质上,确保封片介质均匀覆盖整个盖玻片。
- 将封片后的载玻片置于室温避光条件下过夜孵育。
- 用透明指甲油密封盖玻片边缘,并将载玻片置于4 °C的玻片盒中保存。
- 使用共聚焦显微镜,选择与所用染料/荧光染料相对应的适当通道对封片样本进行成像。
- Caco-2细胞的固定与通透
结果
为了评估阿米卡星治疗清除细胞外细菌的效果并观察细胞内侵袭情况,我们利用Caco-2细胞单层进行了感染实验。如图所示 图1,感染后使用庆大霉素或阿米卡星治疗 E. coli NRG857c(阳性对照)或 E. coli DH5α(阴性对照)产生了相似的侵袭曲线。这些结果表明,阿米卡星在清除胞外细菌方面与庆大霉素同样有效,能够准确反映胞内细菌负荷量,支持其作为侵袭实验中替代抗生素的使用。NRG857c 的回收率范围约为 4–10% <1% 用于 E. coli DH5α 被认为适用于相对于突变菌株或其他临床分离株的侵袭表型的准确解读,与先前的观察结果一致11如果阳性对照和阴性对照的侵袭百分比超出预期回收范围,则应谨慎解读结果,并重复实验。
为了证明阿米卡星能够有效靶向耐庆大霉素的临床E. coli分离株,平行进行了庆大霉素和阿米卡星保护实验,并检测了这些分离株的侵袭特征。如图2所示,使用庆大霉素处理耐庆大霉素分离株后,回收率差异极大,范围从21.52%到2788.50%。相比之下,使用阿米卡星处理后,所有分离株的回收率均显著降低,凸显了其高效性,并使得侵袭程度的测量更加准确和可靠。
最后,为了评估AIEC在侵袭过程中的细胞内表型,用AIEC感染Caco-2细胞 E. coli NRG857c 图3 显示经免疫荧光染色的感染性Caco-2细胞代表性图像,其中细菌(绿色)经免疫荧光标记,宿主肌动蛋白(红色)和DNA(蓝色)分别通过罗丹明-鬼笔环肽(rhodamine-phalloidin)和Hoechst共染显示。感染后4小时,可见NRG857c在细胞质中复制,并定位于细胞核附近及肌动蛋白边界内,证实该细菌具有胞内寄生特性。
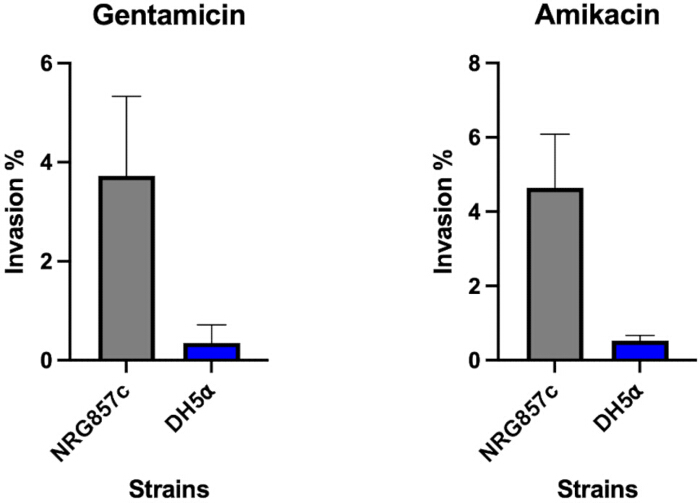
图 1:在感染AIEC菌株NRG857c的Caco-2细胞中添加庆大霉素或阿米卡星,其侵袭曲线具有可比性。 Caco-2细胞单层被AIEC菌株NRG857c和E. coli DH5α以MOI为10的比例感染。感染3小时后,用庆大霉素(100 µg/mL)或阿米卡星(240 µg/mL)处理细胞1小时,以清除细胞外细菌。随后用1% Triton-X-100裂解细胞,裂解液进行系列稀释后涂布于LB琼脂平板,用于CFU计数。侵袭率以相对于初始接种量回收细菌的百分比表示。数据来自三次独立实验(n = 3);误差线表示均值的标准差。请点击此处查看该图的放大版本。
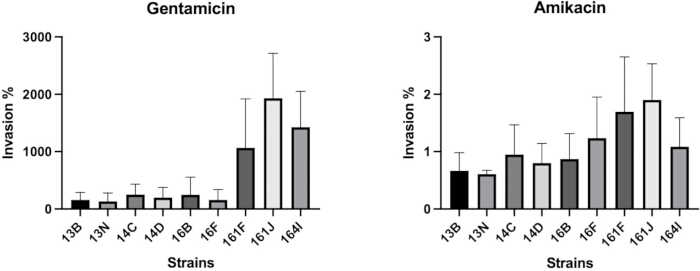
图 2:阿米卡星可有效靶向耐庆大霉素的 E. coli 菌株。 使用从炎症性肠病(IBD)患者中分离的 E. coli 菌株以 10 的感染复数(MOI)感染 Caco-2 细胞单层。感染 3 小时后,用庆大霉素(100 µg/mL)或阿米卡星(240 µg/mL)处理细胞 1 小时,以清除胞外细菌。随后用 1% Triton-X-100 裂解细胞,将裂解液进行系列稀释后涂布于 LB 琼脂平板,用于菌落形成单位(CFU)计数。侵袭率以回收细菌数占初始接种量的百分比表示。数据来自三次独立实验(n = 3);误差线表示均值的标准差。请点击此处查看该图的放大版本。
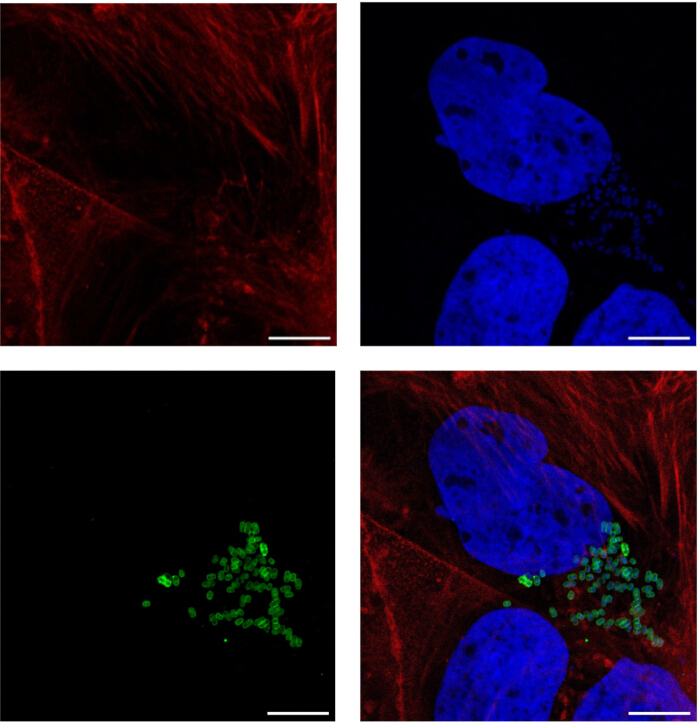
图3:E. coli 侵袭上皮细胞的可视化。感染 E. coli NRG857c 的 Caco-2 细胞的代表性共聚焦显微图像。Caco-2 细胞感染 3 小时后,用阿米卡星(240 µg/mL)孵育 1 小时。宿主肌动蛋白用罗丹明-鬼笔环肽染色(红色),宿主和细菌 DNA 用 Hoechst 染色(蓝色)。E. coli(绿色)使用兔抗 E. coli 一抗和 goat anti-rabbit Alexa Fluor 488 二抗进行检测。图像使用 Leica 共聚焦显微镜,采用 63× 物镜并放大 3 倍获取。比例尺 = 10 µm。请点击此处查看此图的放大版本。
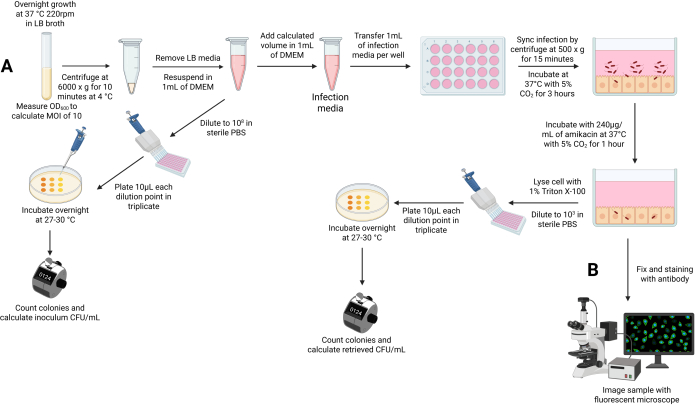
图4研究流程图 (A) AIEC 菌株经培养过夜后,洗涤并以感染复数为 10 的比例加入 Caco-2 单层细胞。感染 3 小时后,经阿米卡星处理 1 小时,收集细胞内细菌,通过三复孔梯度稀释涂布法回收并定量。B感染的单层细胞经固定、抗体染色后,使用荧光显微镜成像。 请点击此处以查看此图的放大版本。
补充图1:阿米卡星处理对上皮细胞的细胞毒性极小。 Caco-2细胞分别用庆大霉素(100 µg/mL)或阿米卡星(240 µg/mL)处理1小时。通过检测培养基中释放的乳酸脱氢酶来评估细胞毒性。误差线表示均值的标准差(n = 3)。请点击此处下载该文件。
讨论
阿米卡星保护实验是一种改良方法,用于评估 E. coli 侵入上皮细胞的能力。该实验成功的关键步骤包括:培养板的胶原包被、维持单层细胞的完整性以及高效的细胞裂解。Caco-2细胞是一种贴壁细胞系,能够附着于组织培养处理过的塑料表面并形成单层细胞20。然而,在感染过程中,无血清培养基的使用以及反复洗涤可能影响细胞的附着,导致细菌侵袭被低估21。为解决这一问题,使用细胞外基质成分(如IV型胶原)对培养板进行包被,可促进细胞附着,并在感染期间形成稳定、融合的单层细胞21。这一点尤为重要,因为AIEC菌株LF82已被证明在侵袭过程中会破坏紧密连接,而单层细胞形成不完全可能绕过这一过程,导致结果偏差22。最后,高效的细胞裂解是影响细菌回收率的另一个关键步骤,裂解不完全可能掩盖细菌的侵袭性,从而干扰实验结果23。为避免此问题,在使用Triton-X-100孵育后,必须充分重悬细胞裂解液。
除了可能导致侵袭实验结果差异的技术挑战外,AIEC菌株LF82在感染后回收的接种物百分比已被证实介于0.61%至17.25%之间8这种变异性可能受到某些环境信号缺失的影响,例如胆盐、黏蛋白以及其他肠道代谢物在此系统中的缺乏 体外 已知有助于AIEC毒力的检测方法24,25,26具体而言,胆盐已被证实可诱导长极性菌毛的表达,从而增加AIEC对M细胞的黏附及其跨M细胞的易位27其他胃肠道病原体,例如 弧菌 和 志贺氏菌已知可响应胆汁调节其III型分泌系统,以介导上皮细胞侵袭28,29使用胆盐传代培养以诱导毒力因子表达是其他病原体在庆大霉素保护实验方案中的常规操作,而利用这些环境信号培养AIEC可能有助于稳定其侵袭性并获得更一致的表达谱型30,31.
该检测方法的另一个局限性在于,细菌侵袭仅在单一时间点进行评估,尽管这在领域内是标准做法,但很可能会过度简化侵袭过程12。细菌侵袭是一个动态过程,包括黏附、内化、胞内复制以及从宿主细胞中逃逸32。由于鉴定参与AIEC侵袭的新基因一直具有挑战性,使用单一时间点检测可能会低估参与该过程的基因数量12。因此,已有研究采用时间进程侵袭实验来评估特定基因在侵袭中的作用,并研究AIEC在I-407和Hep-2细胞中的复制情况8,33。尽管时间进程侵袭实验对于表征单个基因在侵袭中的贡献具有重要价值,但其实验操作较为耗时,尤其是在筛选大量临床分离株时。因此,目前仍采用单一时间点来评估侵袭能力。
此外,AIEC 的胞内生活方式尚未得到充分表征。大多数研究采用侵袭率作为主要检测指标,通过测定不同毒力因子缺失突变株的菌落形成单位(CFU)变化来评估其侵袭能力14,34。对感染的宿主细胞进行可视化观察,能够提供仅通过 CFU 计数所无法获得的 AIEC 生物学独特信息35。因此,为了全面评估不同基因在细胞侵袭中的作用,应将感染细胞的免疫荧光显微镜检测与 CFU 计数联合进行。这一点至关重要,因为该方法有助于识别参与内体存活与逃逸、靶向宿主细胞骨架或在单个细胞内细菌载量方面存在差异的基因,而这些特征可能仅通过 CFU 回收率被忽略。需要注意的是,本文所述的免疫荧光染色方案在检测胞内细菌时,无法区分真正内化进入细胞的细菌与黏附在细胞表面的细菌。采用差异染色法——即在细胞通透化前用特异的二抗标记胞外细菌,通透化后再对胞内细菌进行染色——可克服这一局限性,未来研究中可采用该方法更明确地区分这两类细菌群体36。
该方法的重要意义主要在于能够筛选多重耐药性 E. coli 来自接受不同抗生素治疗的炎症性肠病患者的分离株11庆大霉素用于治疗早发性炎症性肠病(IBD)患者,也可用于治疗其他细菌感染37庆大霉素耐药菌株的出现将使标准检测方法无法适用,因此阿米卡星成为更可靠的替代方案11采用本文所述的实验方案将有助于更全面地表征AIEC感染生物学特性,并有助于鉴定参与侵袭过程的新基因。这些方法在细菌致病机制与宿主-病原体相互作用研究中具有重要意义,能够促进新型毒力因子的发现、细菌胞内生命周期的表征,以及感染过程中被靶向的宿主通路的解析。此外,这些方法也可广泛适用于其他侵袭性病原体的研究 体外 上皮细胞模型
披露
作者声明无利益冲突。
致谢
本工作得到了霍华德·休斯医学研究所新兴病原体计划(K.O.,J.N.)、威尔奇基金会资助项目 I-1561(K.O.)、Once Upon a Time 基金会(K.O.)、美国国立卫生研究院资助项目 R35 GM134945(K.O.)、美国国立卫生研究院国家糖尿病、消化及肾脏疾病研究所资助项目 NIDDK K08-DK-123316(J.N.)、伯克利威尔科姆基金会医学科学家职业奖 1020904(J.N.)以及美国国立卫生研究院 T32 AI007520(S.F.)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 75 cm2 组织培养瓶 | Fisher Scientific | FB012937 | |
| 硫酸阿米卡星 | Research Products International | A20540-25.0 | |
| 抗生素-抗真菌剂(100倍浓缩液) | Gibco | 15240062 | |
| 大肠杆菌抗体 | Abcam | ab137967 | |
| BioLite 微孔板 - 6 孔 | Fisher Scientific | 12-556-004 | |
| 牛血清白蛋白 | Sigma-Aldrich | A7906 | |
| Ⅰ型胶原蛋白,大鼠尾部来源,100 mg | Corning | 354236 | |
| Countess 细胞计数板 | Invitrogen | C10312 | |
| DMEM,高糖 | Gibco | 11965118 | |
| 胎牛血清 | Corning | 35-011-CV | |
| 冰醋酸 | Sigma-Aldrich | A6283 | |
| 超纯甘氨酸 | USBiological | G8165 | |
| 山羊抗兔 IgG(H+L)交叉吸附二抗,Alexa Fluor 488 标记 | Invitrogen | A-11008 | |
| Hoechst 33342,三盐酸盐三水合物 | Invitrogen | H3570 | |
| Liofilchem MTS 阿米卡星 [AK] 0.016–256 μg/mL | Fisher Scientific | 22-777-704 | 阿米卡星 MIC 测定试纸条 |
| 4% 磷酸盐缓冲液(PBS)中的多聚甲醛溶液 | Fisher Scientific | J19943.K2 | |
| PBS,1× | Corning | 21-040-CV | |
| 聚-L-赖氨酸包被的无菌德国玻璃盖玻片,用于细胞培养 | Neuvitro | NC1327375 | |
| ProLong Gold 抗荧光淬灭封片剂 | Invitrogen | P36934 | |
| 罗丹明-鬼笔环肽 | Invitrogen | R415 | 红橙色,540/565 nm |
| 表面处理的无菌组织培养板 | Fisher Scientific | FB012929 | 24 孔板 |
| Triton X-100(电泳级) | Fisher Scientific | BP151-100 | |
| 台盼蓝 | Invitrogen | T10282 | |
| 胰蛋白酶-EDTA(0.25%),含酚红 | Gibco | 25200056 | |
| Tween-20 | Fisher Scientific | BP337-100 |
参考文献
- Bruner, L. P., White, A. M., Proksell, S. Inflammatory bowel disease. Prim Care. 50 (3), 411-427 (2023).
- Richard, N., Savoye, G., Leboutte, M., Amamou, A., Ghosh, S., et al. Crohn's disease: Why the ileum?. World J Gastroenterol. 29 (21), 3222-3240 (2023).
- Hracs, L., et al. Global evolution of inflammatory bowel disease across epidemiologic stages. Nature. 642 (8067), 458-466 (2025).
- Lewis, J. D., Abreu, M. T. Diet as a trigger or therapy for inflammatory bowel diseases. Gastroenterology. 152 (2), 398-414.e6 (2017).
- Khan, S., et al. Dietary simple sugars alter microbial ecology in the gut and promote colitis in mice. Sci Transl Med. 12 (567), (2020).
- Ma, X., et al. Gut microbiota in the early stage of Crohn's disease has unique characteristics. Gut Pathog. 14 (1), 46 (2022).
- Vester-Andersen, M. K., et al. Increased abundance of proteobacteria in aggressive Crohn's disease seven years after diagnosis. Sci Rep. 9 (1), 13473 (2019).
- Boudeau, J., Glasser, A. L., Masseret, E., Joly, B., Darfeuille-Michaud, A. Invasive ability of an Escherichia coli strain isolated from the ileal mucosa of a patient with Crohn's disease. Infect Immun. 67 (9), 4499-4509 (1999).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Barnich, N., et al. Adherent-invasive Escherichia coli in Crohn's disease: the 25th anniversary. Gut. , (2025).
- Kim, J., et al. Genetic and microbial analysis of invasiveness for Escherichia coli strains associated with inflammatory bowel disease. Cell Mol Gastroenterol Hepatol. 19 (4), 101451 (2025).
- Camprubi-Font, C., Martinez-Medina, M. Why the discovery of adherent-invasive Escherichia coli molecular markers is so challenging?. World J Biol Chem. 11 (1), 1-13 (2020).
- Barnich, N., et al. CEACAM6 acts as a receptor for adherent-invasive E. coli, supporting ileal mucosa colonization in Crohn disease. J Clin Invest. 117 (6), 1566-1574 (2007).
- Boudeau, J., Barnich, N., Darfeuille-Michaud, A. Type 1 pili-mediated adherence of Escherichia coli strain LF82 isolated from Crohn's disease is involved in bacterial invasion of intestinal epithelial cells. Mol Microbiol. 39 (5), 1272-1284 (2001).
- Hase, K., et al. Uptake through glycoprotein 2 of FimH(+) bacteria by M cells initiates mucosal immune response. Nature. 462 (7270), 226-230 (2009).
- Chassaing, B., et al. Crohn disease--associated adherent-invasive E. coli bacteria target mouse and human Peyer's patches via long polar fimbriae. J Clin Invest. 121 (3), 966-975 (2011).
- Glasser, A. L., Boudeau, J., Barnich, N., Perruchot, M. H., Colombel, J. F., et al. Adherent invasive Escherichia coli strains from patients with Crohn's disease survive and replicate within macrophages without inducing host cell death. Infect Immun. 69 (9), 5529-5537 (2001).
- Bringer, M. A., Billard, E., Glasser, A. L., Colombel, J. F., Darfeuille-Michaud, A. Replication of Crohn's disease-associated AIEC within macrophages is dependent on TNF-alpha secretion. Lab Invest. 92 (3), 411-419 (2012).
- Ristuccia, A. M., Cunha, B. A. An overview of amikacin. Ther Drug Monit. 7 (1), 12-25 (1985).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., et al. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Vllasaliu, D., Falcone, F. H., Stolnik, S., Garnett, M. Basement membrane influences intestinal epithelial cell growth and presents a barrier to the movement of macromolecules. Exp Cell Res. 323 (1), 218-231 (2014).
- Wine, E., Ossa, J. C., Gray-Owen, S. D., Sherman, P. M. Adherent-invasive Escherichia coli, strain LF82 disrupts apical junctional complexes in polarized epithelia. BMC Microbiol. 9, 180 (2009).
- Jamur, M. C., Oliver, C. Permeabilization of cell membranes. Methods Mol Biol. 588, 63-66 (2010).
- Delmas, J., et al. Metabolic adaptation of adherent-invasive Escherichia coli to exposure to bile salts. Sci Rep. 9 (1), 2175 (2019).
- Zhang, S., et al. Mucosal metabolites fuel the growth and virulence of E. coli linked to Crohn's disease. JCI Insight. 7 (10), (2022).
- Viennois, E., et al. Dietary emulsifiers directly impact adherent-invasive E. coli gene expression to drive chronic intestinal inflammation. Cell Rep. 33 (1), 108229 (2020).
- Chassaing, B., Etienne-Mesmin, L., Bonnet, R., Darfeuille-Michaud, A. Bile salts induce long polar fimbriae expression favouring Crohn's disease-associated adherent-invasive Escherichia coli interaction with Peyer's patches. Environ Microbiol. 15 (2), 355-371 (2013).
- Gotoh, K., et al. Bile acid-induced virulence gene expression of Vibrio parahaemolyticus reveals a novel therapeutic potential for bile acid sequestrants. PLoS One. 5 (10), e13365 (2010).
- Bajunaid, W., et al. The T3SS of Shigella: Expression, structure, function, and role in vacuole escape. Microorganisms. 8 (12), (2020).
- Poore, K., Lenneman, B. R., Faherty, C. S. Epithelial cell infection analyses with Shigella. J Vis Exp. (204), e66426 (2024).
- Chimalapati, S., Lafrance, A. E., Chen, L., Orth, K. Vibrio parahaemolyticus: Basic techniques for growth, genetic manipulation, and analysis of virulence factors. Curr Protoc Microbiol. 59 (1), e131 (2020).
- Rodrigues, E., Marzook, N. B., Pallett, M. A., Sateriale, A. Convergent mechanisms of epithelial cell structure manipulation by intestinal pathogens. PLoS Pathog. 21 (7), e1013367 (2025).
- Jaishankar, J., et al. A critical role for Vibrio parahaemolyticus LPS to mediate evasion of host immune response during infection. Proc Natl Acad Sci U S A. 122 (33), e2426547122 (2025).
- Cieza, R. J., Hu, J., Ross, B. N., Sbrana, E., Torres, A. G. The IbeA invasin of adherent-invasive Escherichia coli mediates interaction with intestinal epithelia and macrophages. Infect Immun. 83 (5), 1904-1918 (2015).
- Liu, H., Semino-Mora, C., Dubois, A. Mechanism of H. pylori intracellular entry: an in vitro study. Front Cell Infect Microbiol. 2, 13 (2012).
- Heesemann, J., Laufs, R. Double immunofluorescence microscopic technique for accurate differentiation of extracellularly and intracellularly located bacteria in cell culture. J Clin Microbiol. 22 (2), 168-175 (1985).
- Lev-Tzion, R., Ledder, O., Shteyer, E., Tan, M. L. N., Uhlig, H. H., et al. Oral vancomycin and gentamicin for treatment of very early onset inflammatory bowel disease. Digestion. 95 (4), 310-313 (2017).
重印与许可
