本方案描述了一种蒽酮比色法,用于定量不同代谢状态下大鼠肝脏和骨骼肌中的糖原含量。
本文内容
摘要
摘要
糖原是肝脏和骨骼肌中主要的细胞内葡萄糖储备物质,在碳水化合物代谢中发挥着基础性作用。肝糖原对维持全身血糖稳态至关重要,而骨骼肌糖原则支持体力活动和运动表现。因此,在糖原代谢发生动态调节或病理性改变的研究中,准确测定组织糖原含量尤为关键。本文介绍一种可靠且灵敏的蒽酮比色法,用于定量大鼠肝脏和骨骼肌中的糖原含量。该方案包括一系列步骤:碱性消化、去蛋白、糖原沉淀、酒精洗涤,以及使用蒽酮试剂显色。本方法的应用性在经历三种生理相关状态的大鼠中得到验证: 随意摄取 进食、过夜禁食以及短期再喂养。这些实验范式可捕捉与糖原储存、耗竭及再合成相关的关键代谢状态。通过蛋白质印迹法对关键酶——糖原合酶和糖原磷酸化酶——进行正交分析,为所观察到的代谢变化提供机制支持。该方法的适用性进一步在经肾上腺素处理以模拟急性应激诱导糖原分解的动物中得到验证。总体而言,该方法具有较宽的动态范围和足够的灵敏度,可用于定量显著不同生理状态下组织中的糖原含量。该方法为体内糖原代谢研究提供了可靠的工具,亦可应用于体外细胞培养模型。
引言
糖原是一种高度分支的多糖,在哺乳动物的骨骼肌和肝脏中作为主要的能量储存物质,其次也存在于脑、肾、心脏和脂肪组织等其他器官中1在摄食过程中,多余的葡萄糖会进行聚合 从头合成 脂质生成,并以糖原或脂质的形式储存。然而,在禁食或体力活动期间,糖原会经历酶促降解,以持续快速地提供葡萄糖,满足能量需求。这种糖原的缓冲能力对于维持生理状态下的禁食–再进食周期中的血糖稳态至关重要。2.
糖原合成由糖原合成酶(glycogen synthase, GYS)催化,该酶在哺乳动物中存在两种同工型:GYS1 和 GYS2。GYS1 主要在骨骼肌中表达,而 GYS2 是肝脏同工型。在禁食条件下,GYS 在多个位点(包括 Ser641)发生磷酸化,导致其催化活性受到抑制;而在进食条件下,去磷酸化可激活其活性。糖原分解由糖原磷酸化酶催化,其肝脏同工型为 PYGL,肌肉同工型为 PYGM。与 GYS 不同,PYGL 和 PYGM 的催化活性在禁食期间因 Ser15 位点的磷酸化而被激活,在进食后去磷酸化则导致其活性被抑制3。
糖原代谢的正常调控对多种生物学过程至关重要,而糖原代谢失调已被确认为多种疾病的致病因素。具体而言,肝脏糖原代谢的异常与多种代谢性疾病相关,包括糖原贮积病4、2型糖尿病5、代谢功能障碍相关性脂肪性肝病6,7以及低血糖反向调节反应受损8。此外,脑内糖原对长期记忆的形成具有重要作用9,而骨骼肌糖原则是耐力能力的关键调节因子10。因此,在糖原代谢处于动态调控或病理改变状态的研究中,准确测定组织糖原含量至关重要,有助于揭示疾病机制并评估调节糖原的干预措施。
已有多种糖原定量方法被报道,包括蒽酮法11,12,淀粉葡萄糖苷酶法13,苯酚-硫酸法14 以及无创性核磁共振波谱法(MRS)15,每种方法均有其特定的优势与局限性。本文中,我们描述了一种利用蒽酮比色法测定大鼠肝脏和骨骼肌中糖原含量的详细实验方案(图1)。本方案包括碱性消化、去蛋白化、糖原沉淀、酒精洗涤以及使用蒽酮试剂显色的连续步骤。该方法简单、经济,且对专用仪器的需求极少。为验证其灵敏度和可重复性,我们通过一系列糖原标准品计算了检测限(LOD)、定量限(LOQ)以及批内和批间变异系数(CV%)。为验证其适用性,我们在三种生理相关条件下测定了肝脏和骨骼肌中的糖原水平: 随意摄取 进食、16小时过夜禁食以及短期重新进食。此外,本方法还通过使用肾上腺素处理的动物来模拟急性应激诱导的糖原分解。为验证所观察到的代谢变化,对糖原代谢相关关键酶进行了正交蛋白质印迹分析。
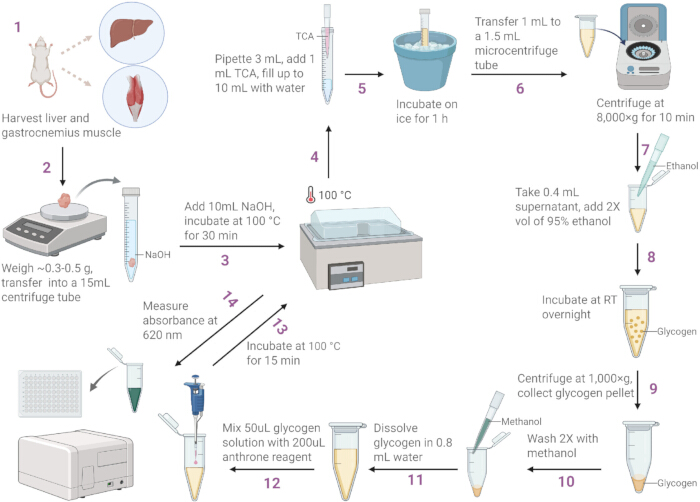
图 1:糖原定量检测流程概览。 肝脏和骨骼肌组织中糖原定量的实验流程示意图。该流程包括组织采集、碱性消化、蛋白质沉淀、糖原分离以及基于蒽酮的比色检测。请点击此处查看此图的放大版本。
方案
所有动物实验方案均经南京医科大学 Institutional Animal Care and Use Committee(IACUC;#1905019)批准。
1. 试剂的准备
- 本研究中使用的所有试剂请参见材料表。
- 实验开始前准备好所有溶液。
- 根据需要调整溶液的体积。
- 配制 1 M 氢氧化钠(NaOH)溶液
- 称取 40 g NaOH 颗粒。
- 将 NaOH 颗粒加入 800 mL 蒸馏水中。
- 用玻璃棒搅拌溶液,直至容器底部无未溶解颗粒。
- 将溶液转移至 1 L 容量瓶中。
- 用蒸馏水定容至 1 L。
- 将溶液储存于密闭瓶中,室温(RT;18°C–23°C)保存。
警告:NaOH 具有腐蚀性。需佩戴安全护目镜、手套和实验服。市售 NaOH 颗粒纯度并非 100%,且易吸水。应避免颗粒长时间暴露于空气中。
- 配制 20% 氯化锂(LiCl)储备液
- 称取 20 g 无水 LiCl 粉末。
- 将 LiCl 粉末加入 80 mL 蒸馏水中。
- 搅拌溶液,直至容器底部无未溶解颗粒。
- 将溶液转移至 100 mL 容量瓶中。
- 用蒸馏水定容至 100 mL。
- 将溶液储存于密闭瓶中,室温(RT)保存。
注意:LiCl 可刺激皮肤、眼睛和呼吸道。需佩戴安全护目镜、手套和实验服。LiCl 具有强吸湿性,应尽量减少暴露于空气,以防吸水。
- 配制蒽酮反应液
- 在 1 L 烧杯中加入 28 mL 蒸馏水。
- 将 72 mL 高纯度浓硫酸(98% H₂SO₄)加入水中。
- 让混合液冷却至室温。
- 向溶液中加入 50 mg 蒽酮。
- 搅拌至蒽酮完全溶解。
- 向溶液中加入 3 g 硫脲。
- 搅拌至硫脲完全溶解。
- 将溶液转移至棕色瓶或用铝箔包裹的玻璃瓶中。
- 将溶液储存于冰箱(2°C–8°C)中,最多保存一周。
警告:硫酸具有强腐蚀性,可导致严重化学灼伤,并与水剧烈反应。需穿戴实验服、耐化学腐蚀手套和面罩。所有操作均应在经认证的化学通风橱中进行。稀释过程会释放大量热量,务必始终将酸加入水中。
- 配制含 0.1% LiCl 的 95% 乙醇
- 向玻璃瓶中加入 95 mL 无水乙醇。
- 加入 4.5 mL 蒸馏水。
- 加入 0.5 mL 20% LiCl 储备液。
- 充分混匀。
- 配制含 0.1% LiCl 的 80% 甲醇
- 向玻璃瓶中加入 80 mL 无水甲醇。
- 加入 19.5 mL 蒸馏水。
- 加入 0.5 mL 20% LiCl 储备液。
- 充分混匀。
- 配制 100%(w/v)三氯乙酸(TCA)溶液
- 称取 100 g TCA 粉末。
- 将 TCA 粉末加入 80 mL 蒸馏水中。
- 搅拌至完全溶解。
- 将溶液转移至 100 mL 容量瓶中。
- 用蒸馏水定容至 100 mL。
- 将溶液储存于密闭玻璃瓶中,室温保存。
- 配制饱和苯甲酸溶液
- 在 250 mL 玻璃烧杯中,将 0.5 g 苯甲酸晶体加入 100 mL 蒸馏水中。
- 在加热板上加热至 90°C,并持续磁力搅拌。
- 继续加热,直至容器底部无未溶解颗粒。
- 让溶液冷却至室温。
- 吸取上层澄清、无可见颗粒的上清液。
- 将溶液储存于密封玻璃瓶中,室温保存。
- 配制葡萄糖标准品
- 将 50 mg 葡萄糖粉末溶于 50 mL 饱和苯甲酸溶液中,配制成 1 mg/mL 储备液。
- 使用饱和苯甲酸溶液对储备液进行系列稀释,在 1.5 mL 微量离心管中配制葡萄糖标准品(0、0.01、0.02、0.05、0.1、0.2、0.5 和 1 mg/mL),具体如下:
- 向 1 号管中加入 500 µL 1 mg/mL 储备液,配制 1 mg/mL 标准品。
- 向 2 号管中加入 250 µL 储备液和 250 µL 饱和苯甲酸溶液,配制 0.5 mg/mL 标准品。
- 向 3 号管中加入 200 µL 2 号管溶液和 300 µL 饱和苯甲酸溶液,配制 0.2 mg/mL 标准品。
- 向 4 号管中加入 250 µL 3 号管溶液和 250 µL 饱和苯甲酸溶液,配制 0.1 mg/mL 标准品。
- 向 5 号管中加入 250 µL 4 号管溶液和 250 µL 饱和苯甲酸溶液,配制 0.05 mg/mL 标准品。
- 向 6 号管中加入 200 µL 5 号管溶液和 300 µL 饱和苯甲酸溶液,配制 0.02 mg/mL 标准品。
- 向 7 号管中加入 250 µL 6 号管溶液和 250 µL 饱和苯甲酸溶液,配制 0.01 mg/mL 标准品。
- 向另一支试管中加入 500 µL 饱和苯甲酸溶液,作为空白对照(0 mg/mL)。
- 盖紧各管,短暂涡旋 10 秒,充分混匀。
2. 动物处理
- 一般饲养管理
- 将雄性Sprague–Dawley大鼠(230–270 g)饲养在特定病原体阴性(SPF)条件下的动物设施中(VAF/Plus健康状态,Charles River Laboratories),确保无常见啮齿类病原体,包括仙台病毒、肺支原体和大鼠细小病毒。
- 提供标准颗粒饲料,并自由饮水。
- 维持12小时光照/12小时黑暗循环(光照时间为08:00至20:00)。
- 维持室温在22°C–23°C。
- 维持相对湿度在30%–70%。
- 过夜禁食
- 将大鼠转移至常规饲养笼中。
- 移除食物,但保持自由饮水。
- 从当天16:30至次日08:30,持续禁食16小时。
- 重新喂食
- 向过夜禁食的大鼠提供常规颗粒饲料(200 g)。
- 允许动物自由进食2小时(ad libitum)。
- 肾上腺素刺激实验
- 配制盐酸肾上腺素溶液。
- 使用校准的分析天平称取5 mg盐酸肾上腺素粉末。
- 将粉末转移至15 mL离心管中,加入10 mL生理盐水。
- 盖紧管盖并倒置10次,配制成0.5 mg/mL的储备液。
- 对非禁食大鼠进行腹腔注射盐酸肾上腺素溶液,剂量为1 mL/kg体重(即0.5 mg/kg体重)3。
- 将动物头部朝下固定,使腹腔内容物向头侧移动。
- 将25号针头以45°角插入腹部右下象限。
- 注射前回抽确认无血液或肠内容物。
- 对对照组动物腹腔注射生理盐水,剂量为1 mL/kg体重。
- 采集尾静脉血样。
- 固定大鼠以暴露尾巴。
- 压迫并加热尾巴约10秒,以促进血液流动。
- 使用无菌25号针头在距尾尖约3 cm处刺破侧尾静脉。
- 用干净纱布弃去第一滴血,避免组织液污染。
- 采集第二滴血用于血糖测定。
- 使用血糖仪每15分钟测量一次血糖,持续60分钟。
- 根据制造商说明书校准血糖仪。
- 每月使用质控液验证血糖仪准确性。
- 将试纸保存在原装容器中,防止受潮。
- 试纸取出后应立即使用。
- 将试纸插入血糖仪,自动启动仪器。
- 通过毛细作用使血样进入试纸。
- 记录仪器显示的血糖值。
- 配制盐酸肾上腺素溶液。
3. 组织采集
- 安乐死与准备
- 通过异氟烷过量实施安乐死。将动物置于诱导室中,在2 L/min的流速下以100%氧气输送5%异氟烷,持续至少3分钟。
- 通过确认呼吸停止来验证动物死亡。
- 确认角膜反射和脚趾夹捏反射消失。
- 使用无菌棉签轻轻接触角膜,确认无眨眼反应。
- 使用钝头镊子用力挤压后肢脚趾间的蹼部,确认无运动反应。
- 将大鼠仰卧位放置于解剖托盘上。
- 使用喷雾瓶将75%乙醇喷洒于腹部皮肤使其湿润。
注意:为减少死后缺血引起的糖原降解,应尽量缩短安乐死后至组织保存之间的时间。
- 肝脏解剖
- 在剑突下方约1 cm处的皮肤做一小切口。
- 将切口向胸骨方向延伸。
- 将皮肤与下方肌肉分离。
- 在剑突下方约1 cm处做一长约4 cm的横向切口,向左右肋缘方向横向延伸,行双侧横行剖腹术,充分暴露腹腔。
- 辨认肝脏。
- 切除右中叶(图2A)。
- 在1分钟内称量组织重量。
- 将组织放入聚丙烯塑料容器中。
- 将组织在干冰中速冻。
- 骨骼肌解剖
- 选用腓肠肌作为代表性样本,因其含有快肌和慢肌纤维的混合群体,可反映后肢的代谢和收缩特性16。
- 将大鼠俯卧位放置。
- 沿后肢后侧从腘窝至跟骨结节处做纵向皮肤切口。
- 分离皮肤。
- 辨认并牵开股二头肌和半腱肌。
- 股二头肌为覆盖大腿后侧上半部、位置偏外侧的大块肌肉。
- 半腱肌为一条窄带状肌肉,沿大腿后侧内侧走行,止于膝关节附近。
- 暴露腓肠肌。
- 使用精细手术剪在跟骨处切断跟腱远端止点。
- 分离比目鱼肌。
- 游离腓肠肌在股骨内、外侧髁处的近端附着点。
- 完整取出腓肠肌(图2B)。
- 在1分钟内称量组织重量。
- 将组织放入聚丙烯塑料容器中。
- 将组织在干冰中速冻。
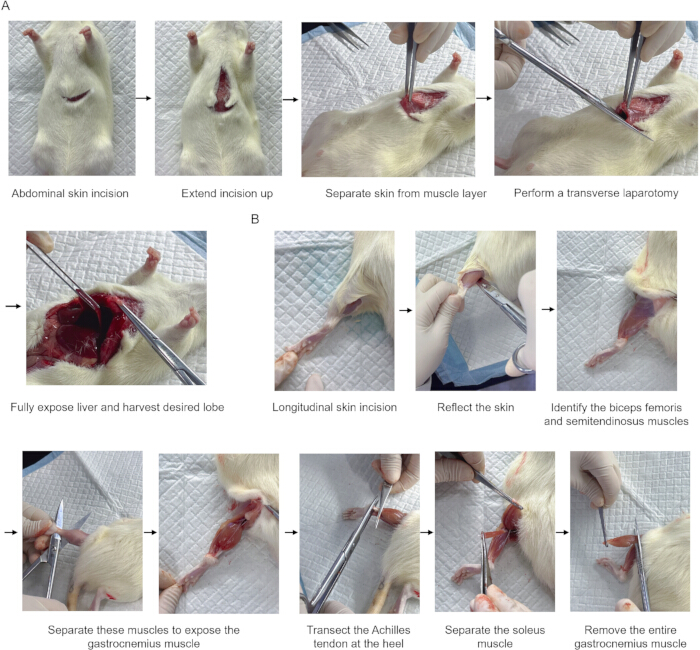
图2:肝脏与骨骼肌组织的解剖步骤。(A)暴露腹腔并采集肝组织的连续步骤,包括皮肤切口、切口延伸、分离皮肤与下方肌肉、横向剖腹。(B)分离腓肠肌的连续步骤,包括纵向切口、翻起覆盖肌肉、识别解剖结构以及肌肉切除。请点击此处查看该图的放大版本。
4. 糖原比色测定法
- 第1天:碱性消化
- 将0.4 g组织加入50 mL离心管中。允许±0.1 g的误差范围,以确保快速处理并最大限度减少组织降解。
- 向管中加入10 mL 1 M NaOH溶液。
- 使用无菌刀片或剪刀切碎组织,直至组织碎片大小约为1–2 mm。
- 将离心管置于95°C ± 5°C的水浴中。
- 孵育30分钟。
- 在孵育期间,每10分钟以2,500 rpm涡旋震荡样品10秒。
- 从水浴中取出离心管。
- 让样品冷却至室温(RT)。
- 蛋白测定用裂解液的制备
- 使用校准的P1000移液器将1 mL碱性裂解液转移至微量离心管中。
- 在8,000 × g下离心10分钟。
- 收集上清液。
- 保留上清液用于BCA蛋白测定。
- 三氯乙酸(TCA)介导的去蛋白化
- 将3 mL碱性裂解液转移至15 mL离心管中。
- 加入1 mL 100% (w/v) TCA溶液。
- 加入6 mL蒸馏水,使总体积达到10 mL。
- 以2,500 rpm涡旋震荡混合物10秒。
- 将离心管置于冰上(0°C–4°C)。
- 孵育1小时以沉淀蛋白质。
- 去蛋白化上清液的收集
- 将1 mL混合液转移至微量离心管中。
- 在室温下以8,000 × g离心10分钟。
- 保留上清液。
- 糖原沉淀
- 将0.4 mL上清液转移至新的微量离心管中。
- 加入0.8 mL含0.1% LiCl的95%乙醇。
- 充分涡旋混合。
- 在室温下孵育16小时。
- 第2天:糖原沉淀
- 在室温下以1,000 × g离心15分钟,获得坚实、半透明的白色糖原沉淀(图3A 和 图3B)。
- 弃去上清液。
- 第一次糖原洗涤
- 向沉淀中加入1.5 mL含0.1% LiCl的80%甲醇。
- 以2,500 rpm涡旋震荡样品10秒。
- 洗涤后离心
- 在室温下以1,000 × g离心5分钟。
- 弃去上清液。
- 第二次糖原洗涤
- 重复洗涤步骤一次。
- 使用带细尖吸头的P200移液器小心吸除残留液体,确保糖原沉淀不受扰动。
- 糖原溶解
- 向沉淀中加入0.8 mL蒸馏水。
- 以2,500 rpm涡旋震荡,直至形成无可见颗粒的澄清均一溶液。
- 标准品与样品的制备
- 准备1.5 mL微量离心管,用于葡萄糖标准品、空白对照及未知样品的三重复实验。
注:根据表1向各管中加入相应试剂。 - 向指定管中各加入50 µL葡萄糖标准品。
- 向空白管中加入50 µL蒸馏水。
- 向每个未知样品管中加入50 µL糖原样品。
- 向每管中加入200 µL蒽酮反应液。
- 准备1.5 mL微量离心管,用于葡萄糖标准品、空白对照及未知样品的三重复实验。
- 蒽酮显色及吸光度测定
- 充分涡旋震荡所有管。
- 将各管置于95°C ± 5°C水浴中。
- 孵育15分钟。
- 取出各管,使其冷却至室温。
- 从每管中转移200 µL至96孔板中。
- 使用酶标仪在620 nm波长下测定吸光度(终点法,25°C),并自动校正光程至1 cm。
- 标准曲线的决定系数(R2)应≥0.995(通过线性回归确定),方可视为合格。
- 在三重复测量中,任何CV% >20%的单个标准品或样品重复应视为不可靠,需重新检测。
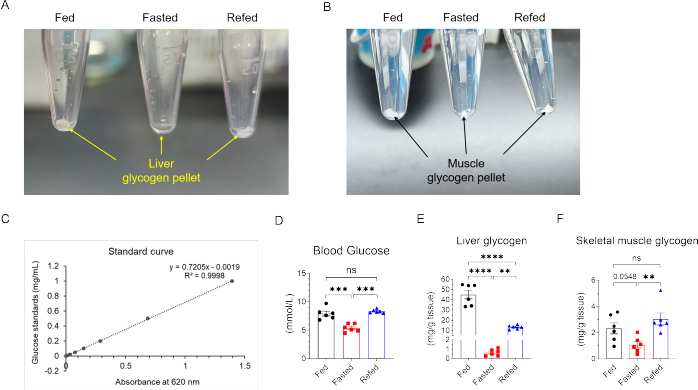
图3:不同营养状态下糖原的分离与定量。(A)进食、禁食和再进食条件下肝脏样本中沉淀糖原颗粒的代表性图像。(B)进食、禁食和再进食条件下骨骼肌样本中沉淀糖原颗粒的代表性图像。(C)由葡萄糖标准品生成的标准曲线,显示在620 nm处吸光度与葡萄糖浓度之间的线性关系。(D)进食、禁食和再进食条件下的血糖水平。(E)进食、禁食和再进食条件下的肝糖原含量。(F)进食、禁食和再进食条件下的骨骼肌糖原含量。数据以均值±标准误表示(n = 6 每组)。采用单因素方差分析(ANOVA)进行统计学分析,并通过Benjamini–Hochberg法校正多重比较。**p < 0.01,***p < 0.001,****p < 0.0001,ns:无显著性差异。请点击此处查看该图的放大版本。
| 试剂 | 0 mg/mL | 0.01 mg/mL | 0.02 mg/mL | 0.05 mg/mL | 0.1 mg/mL | 0.2 mg/mL | 0.5 mg/mL | 1 mg/mL | 空白 | 未知样品 |
| 葡萄糖标准溶液 | 50 µL | 50 µL | 50 µL | 50 µL | 50 µL | 50 µL | 50 µL | 50 µL | – | – |
| 蒸馏水 (H₂O) | – | – | – | – | – | – | – | – | 50 µL | – |
| 糖原样品 | – | – | – | – | – | – | – | – | – | 50 µL |
| 蒽酮反应液 | 200 µL | 200 µL | 200 µL | 200 µL | 200 µL | 200 µL | 200 µL | 200 µL | 200 µL | 200 µL |
表1:糖原比色测定反应体系设置。用于蒽酮比色法测定的葡萄糖标准品、空白及未知糖原样品的反应体系设置。在孵育及吸光度测定前,将已知体积的葡萄糖标准品、蒸馏水或糖原样品与蒽酮反应液混合。
5. 组织糖原含量的计算
注意:将测得的糖原含量归一化为组织湿重或总蛋白质量。
- 标准曲线绘制与浓度测定
- 使用八个葡萄糖标准管的吸光度读数。
- 在将吸光度读数对葡萄糖浓度作图前,需减去空白值。
- 在 Excel 中使用普通最小二乘法回归拟合线性回归曲线(图 3C)。
- 利用步骤 5.1.3 中获得的回归方程,将未知糖原样品经空白校正后的吸光度值代入线性标准曲线,插值得出各样品中葡萄糖的浓度(Cunknown)。
- 以组织湿重为基准进行归一化
- 使用以下公式计算糖原含量:
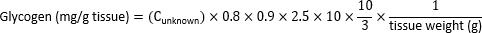
- 定义 Cunknown 为步骤 5.1.4 中测定的未知糖原样品中葡萄糖的浓度(mg/mL)。
- 定义 0.8 为步骤 4.10.1 中溶解糖原样品的体积(mL)。
- 定义 0.9 为将葡萄糖值转换为糖原值的换算系数。
- 定义 2.5 为步骤 4.5 中糖原沉淀过程中引入的稀释倍数。
- 定义 10 为步骤 4.3.3 中制备的总体积为 10 mL 的混合液中取 1 mL 分析所对应的稀释倍数。
- 定义 10/3 为步骤 4.1.2 中制备的总体积为 10 mL 的碱性消化液中取 3 mL 分析所对应的稀释倍数。
- 使用以下公式计算糖原含量:
- 以总蛋白质量为基准进行归一化
- 使用以下公式计算糖原含量:
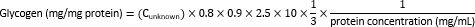
- 定义 Cunknown 为步骤 5.1.4 中测定的未知糖原样品中葡萄糖的浓度(mg/mL)。
- 定义 0.8 为步骤 4.10.1 中溶解糖原样品的体积(mL)。
- 定义 0.9 为将葡萄糖值转换为糖原值的换算系数。
- 定义 2.5 为步骤 4.5 中糖原沉淀过程中引入的稀释倍数。
- 定义 10 为步骤 4.3.3 中制备的总体积为 10 mL 的混合液中取 1 mL 分析所对应的稀释倍数。
- 定义 1/3 为步骤 4.3.1 中从碱性消化液中取 3 mL 所对应的校正系数。
- 定义蛋白浓度为步骤 4.2.4 中通过 BCA 法测定的碱性消化液中总蛋白的浓度(mg/mL)。
- 使用以下公式计算糖原含量:
6. 糖原代谢关键酶的蛋白质印迹分析
- 一般注意事项
- 参考先前描述的标准 Western blot 实验方案17,18.
- 蛋白质提取
- 称取75 mg snap-frozen组织,允许±25 mg的误差,以确保快速处理并尽量减少组织解冻。
- 加入1 mL预冷的RIPA裂解缓冲液(50 mM Tris-HCl,pH 7.4;150 mM NaCl;1% Triton X-100;0.5%脱氧胆酸钠;0.1% SDS;1 mM EDTA),并添加蛋白酶和磷酸酶抑制剂。
- 使用手持式转子-定子匀浆器匀浆组织。
- 裂解液制备
- 将匀浆在冰上孵育30分钟。
- 孵育期间,每隔10分钟以2,500 rpm涡旋振荡样品10秒。
- 在4°C条件下,使用固定角转子以10,000 × g离心5分钟。
- 蛋白质定量
- 收集上清液作为总蛋白裂解液。
- 采用BCA法测定蛋白质浓度。
- 在RIPA裂解缓冲液中配制浓度为0、0.025、0.125、0.25、0.5、0.75和1 mg/mL的BSA标准品。
- 在96孔微孔板中,将每种标准品或待测样本各20 µL加入单独的孔中。
- 向每个孔中加入200 µL BCA工作液(由50份试剂A与1份试剂B混合配制而成)。
- 将反应板在37°C孵育30分钟。
- 冷却至室温(18°C–23°C)后,使用酶标仪在562 nm处测定吸光度(终点法,25°C),并自动校正光程至1 cm。
- SDS-PAGE
- 将15 µg蛋白质与SDS-PAGE上样缓冲液混合。
- 将样品在95°C下加热5分钟。
- 将样品置于冰上冷却。
- 将样品上样至10% SDS-PAGE凝胶中。
- 使用电泳缓冲液(25 mM Tris,192 mM 甘氨酸,0.1% SDS)通过电泳分离蛋白质。
- 以恒定的100 V电压电泳,直至溴酚蓝染料前沿迁移至凝胶底部。
- 蛋白转印与封闭
- 将蛋白质转移至硝酸纤维素膜或PVDF膜上。
- 对于硝酸纤维素膜,将膜在转移缓冲液(25 mM Tris,192 mM 甘氨酸,20% 甲醇,pH 8.3)中平衡 10 分钟。
- 对于PVDF膜,将膜浸入100%甲醇中30秒以活化,然后在转移缓冲液中平衡10分钟。
- 按以下顺序组装转膜三明治结构:海绵、滤纸、凝胶、膜、滤纸、海绵。
- 在4°C条件下,以200 mA恒定电流进行蛋白质转膜90分钟。
- 在 TBST(20 mM Tris-HCl,pH 7.4;150 mM NaCl;0.1% Tween-20)中配制 3% (w/v) BSA 溶液。
- 室温下轻轻振荡孵育膜1小时进行封闭。
注意:检测磷酸化蛋白时,应使用 BSA 而非脱脂奶粉。
- 一抗孵育
- 在封闭缓冲液中按1:1,000的稀释比例配制一抗溶液。
- 4°C 条件下,将膜与一抗在摇床上孵育过夜。
- 洗涤
- 用TBST洗涤膜。
- 重复洗涤三次,每次10分钟。
- 二抗孵育
- 用封闭缓冲液按1:10,000的比例稀释HRP标记的二抗。
- 室温下振荡孵育膜1小时。
- 洗涤
- 用TBST洗涤膜。
- 重复洗涤三次,每次10分钟。
- 化学发光检测
- 通过等体积混合鲁米诺/增强剂溶液与稳定过氧化物溶液来制备化学发光底物。
- 以 0.1 mL/cm 的体积加入底物2 膜表面积,在室温下于旋转摇床(100 rpm)中孵育2分钟。
- 使用化学发光成像仪捕获信号。
- 测试曝光时间,范围为10至300秒,并为每张印迹选择处于线性检测范围内的曝光时间。
- 使用仪器内置软件确认无像素饱和,以验证信号线性。
- 图像分析
- 使用 ImageJ 软件(版本 1.51,NIH)分析条带强度。
- 将图像转换为8位灰度图像,并应用半径为50像素的滚动球背景减除。
- 使用相同尺寸的矩形感兴趣区域定义每条条带,并从相邻的空白区域减去局部背景,以获得原始积分密度值。
- 总蛋白染色
- 在室温下,将膜置于含0.1%印度墨水的TBST溶液中,持续摇动孵育1小时。
- 用 TBST 每次 10 分钟,洗涤膜三次。
- 使用多种染色条带作为上样对照,以标准化免疫印迹信号。
注意:请使用总蛋白染色而非看家基因(HKGs),因为HKG的表达水平在不同实验条件下可能发生变化19.
7. 方法的灵敏度与可重复性
- 糖原标准品的制备
- 用 1 M NaOH 配制 20 mg/mL 的糖原储备液。
- 在 15 mL 离心管中,用 1 M NaOH 逐步稀释,配制一系列糖原标准溶液(0、0.005、0.01、0.02、0.05、0.1、0.2、0.5 和 1 mg/mL),具体步骤如下:
- 通过将 500 µL 糖原储备液与 9.5 mL 1 M NaOH 混合,配制 1 号管(1 mg/mL)。
- 通过将 250 µL 糖原储备液与 9.75 mL 1 M NaOH 混合,配制 2 号管(0.5 mg/mL)。
- 通过将 100 µL 糖原储备液与 9.9 mL 1 M NaOH 混合,配制 3 号管(0.2 mg/mL)。
- 通过将 50 µL 糖原储备液与 9.95 mL 1 M NaOH 混合,配制 4 号管(0.1 mg/mL)。
- 通过将 25 µL 糖原储备液与 9.975 mL 1 M NaOH 混合,配制 5 号管(0.05 mg/mL)。
- 通过将 10 µL 糖原储备液与 9.99 mL 1 M NaOH 混合,配制 6 号管(0.02 mg/mL)。
- 通过将 100 µL 1 号管溶液与 9.9 mL 1 M NaOH 混合,配制 7 号管(0.01 mg/mL)。
- 通过将 50 µL 1 号管溶液与 9.95 mL 1 M NaOH 混合,配制 8 号管(0.005 mg/mL)。
- 通过向 15 mL 离心管中加入 10 mL 1 M NaOH,配制空白管(0 mg/mL)。
- 盖紧各管,以 2,500 rpm 涡旋振荡 10 秒以充分混匀。
- 蒽酮比色法检测
- 提取糖原,并按照步骤 4.1.4–4.12.6 进行蒽酮比色法检测。
- 记录 620 nm 处的吸光度值(A620)。
- 糖原浓度的计算
- 绘制葡萄糖标准曲线,并按照步骤 5.1 的规定,计算每个标准样品中的葡萄糖浓度(Cstandard)。
- 使用以下公式计算每个标准管中糖原的浓度:
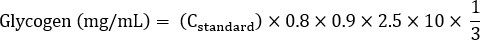
- 定义 Cstandard 为在每个标准样品中测定的葡萄糖浓度(mg/mL)。
- 定义 0.8 为糖原样品的体积(mL)。
- 定义 0.9 为将葡萄糖值转换为糖原值的换算系数。
- 定义 2.5 为稀释倍数。
- 定义 10 为稀释倍数,用于校正步骤 4.3.3 中从总体积为 10 mL 的混合液中取 1 mL 分样进行分析的情况。
- 定义 1/3 为校正系数,用于校正步骤 4.3.1 中从碱性消化液中取 3 mL 分样所导致的稀释。
- 在同一天内重复整个实验流程三次,共完成四次运行。
- 在连续四天内重复四次运行,总共完成 16 次运行。
- 检出限(LOD)和定量限(LOQ)的计算
- 将全部 16 次吸光度读数作为纵坐标(y 轴),各糖原标准浓度作为横坐标(x 轴)作图。
- 计算线性回归曲线及 R2 值。当线性回归的 R2 ≥ 0.995 时,视为可接受。
- 使用以下公式计算 LOD 和 LOQ:
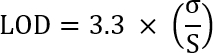
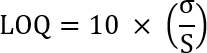
- 定义 σ 为响应值(y 轴截距)的标准误差。
- 定义 S 为线性回归曲线的斜率。
- 日内和日间 CV% 的计算
- 对每个糖原标准品,使用以下公式计算第 1 天四次运行结果的计算值的日内 CV%:
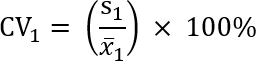
- 定义 s1 为第 1 天四次运行结果的标准差。
- 定义
 为第 1 天四次运行结果的平均值。
- 对第 2、3、4 天重复上述计算,得到 CV2、CV3 和 CV4。
- 使用以下公式计算最终的日内 CV%:
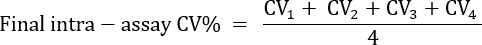
- 使用以下公式计算日间 CV%:
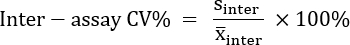
- 定义 sinter 为 CV1、CV2、CV3 和 CV4 的标准差。
- 定义
 为 CV1、CV2、CV3 和 CV4 的平均值。
- 对每个糖原标准品,使用以下公式计算第 1 天四次运行结果的计算值的日内 CV%:
结果
不同营养状态下肝脏和骨骼肌糖原水平
过夜禁食显著降低了血糖水平(均值 ± 均值标准误 [SEM]),从 7.9 ± 0.4 mM 降至 随意摄取喂食大鼠后,血糖水平降至5.4 ± 0.3 mM。重新喂食2小时后,血糖水平恢复至8.3 ± 0.1 mM。图3D)。与这些变化一致,肝脏糖原水平(均值 ± 标准误)在进食状态下为 45.05 ± 3.85 mg/g 组织,经夜间禁食后显著下降至 0.63 ± 0.13 mg/g 组织,再进食 2 小时后回升至 13.29 ± 0.73 mg/g 组织(图3E)。在腓肠肌骨骼肌中也观察到类似趋势。进食状态下糖原含量为 2.33 ± 0.38 mg/g 组织,禁食后下降至 1.08 ± 0.22 mg/g 组织,再喂养后上升至 3.05 ± 0.42 mg/g 组织(图3F)。用于糖原定量的代表性吸光度值及相应组织重量如下所示 表2数据以均值 ± 标准误表示(每组 n = 3 个生物学重复)。
| 营养状态 | 动物编号 | 肝脏吸光度(A620) | 肝脏组织重量(g) | 腓肠肌吸光度(A620) | 腓肠肌组织重量(g) |
| 空白 | – | 0.047 | n/a | 0.055 | n/a |
| 进食 | 1 | 0.723 | 0.5465 | 0.094 | 0.5177 |
| 2 | 0.438 | 0.3128 | 0.08 | 0.4542 | |
| 3 | 0.597 | 0.4363 | 0.092 | 0.4621 | |
| 禁食 | 4 | 0.053 | 0.3194 | 0.062 | 0.5613 |
| 5 | 0.059 | 0.3833 | 0.057 | 0.3797 | |
| 6 | 0.055 | 0.3544 | 0.066 | 0.4714 | |
| 重新喂食 | 7 | 0.141 | 0.339 | 0.083 | 0.4643 |
| 8 | 0.168 | 0.3179 | 0.106 | 0.4308 | |
| 9 | 0.172 | 0.3621 | 0.087 | 0.483 |
表2:不同营养状态下原始吸光度值和组织重量。 代表性的620 nm波长下的吸光度值(A620)以及来自进食、禁食和再进食条件下采集的肝组织和腓肠肌组织样本的相应组织重量。空白值代表背景吸光度。这些数据用于糖原定量和归一化处理。
不同营养状态下糖原合酶和糖原磷酸化酶的调节
为了评估糖原水平的变化是否与糖原代谢通路的预期改变相关,检测了关键代谢酶的蛋白表达及其磷酸化状态。这些酶包括糖原合酶(肝脏中的GYS2和骨骼肌中的GYS1)以及糖原磷酸化酶(肝脏中的PYGL和骨骼肌中的PYGM)。GYS1/2在Ser641位点的磷酸化会抑制糖原合成,而PYGL/PYGM在Ser15位点的磷酸化则促进糖原分解。在肝脏中,过夜禁食增加了PYGL的磷酸化水平,但未改变GYS2的磷酸化状态,表明糖原分解增强(图4A)。在重新喂食2小时后,PYGL和GYS2的磷酸化水平均下降,提示糖原分解减少而糖原合成增加。在腓肠肌中,禁食未引起GYS1磷酸化水平的变化,而重新喂食则显著降低了其磷酸化水平(图4B)。由于缺乏针对PYGM(Ser15)的磷酸化特异性抗体,因此检测了总PYGM蛋白水平,结果显示无显著差异。
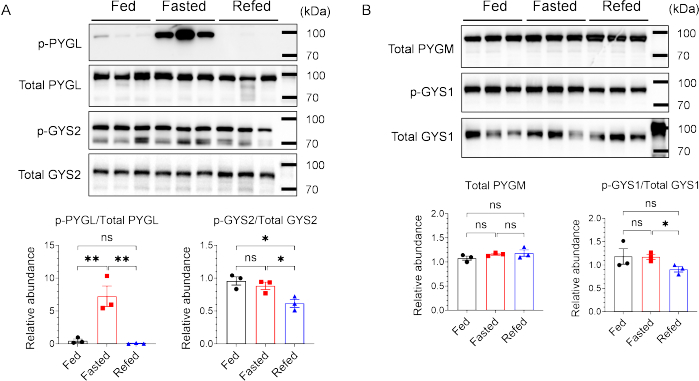
图4:糖原代谢酶的Western印迹分析。(A)在进食、禁食和再进食条件下,肝脏中磷酸化及总PYGL和GYS2的代表性免疫印迹及其定量结果。(B)在进食、禁食和再进食条件下,骨骼肌中磷酸化及总GYS1以及总PYGM的代表性免疫印迹及其定量结果。蛋白质水平以磷酸化蛋白与总蛋白的比值或相对于总蛋白上样量归一化的相对丰度表示。数据以均值±标准误(n = 3,每组)表示。统计分析采用普通单因素方差分析,多重比较通过Benjamini–Hochberg法进行校正。*p < 0.05,**p < 0.01,ns:无显著性差异。请点击此处查看该图的放大版本。
肾上腺素对肝脏和骨骼肌糖原储备的动员
腹腔注射肾上腺素可升高血糖水平及血糖曲线下面积(图5A)。与肾上腺素促进糖原分解的作用一致,肾上腺素处理降低了肝脏和骨骼肌中的糖原水平。组织在注射肾上腺素60分钟后采集。肝糖原水平从57.96 ± 4.14 mg/g 组织降至45.69 ± 2.23 mg/g 组织(图5B)。骨骼肌糖原水平从3.14 ± 0.38 mg/g 组织降至1.09 ± 0.09 mg/g 组织(图5C)。这些结果表明,该实验方案能够捕捉不同代谢状态下具有生理相关性的变化。
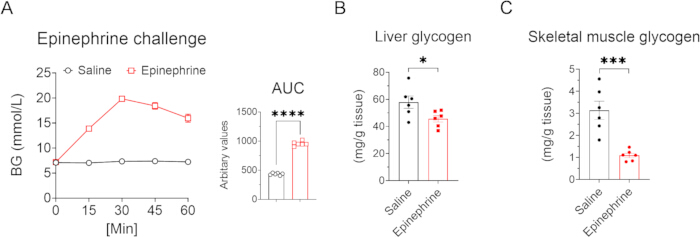
图 5:肾上腺素对血糖和糖原水平的影响。(A)腹腔注射生理盐水或肾上腺素后随时间变化的血糖水平,以及相应的曲线下面积(AUC)。(B)生理盐水或肾上腺素处理后的肝脏糖原含量。(C)生理盐水或肾上腺素处理后的骨骼肌糖原含量。数据以均值 ± 标准误表示(n = 6 每组)。采用非配对 t 检验进行统计分析。*p < 0.05,***p < 0.001,****p < 0.0001。请点击此处查看该图的放大版本。
方法的灵敏度与可重复性
通过将糖原储备液用1 M NaOH稀释,制备一系列糖原标准品(0、0.005、0.01、0.02、0.05、0.1、0.2、0.5 和 1 mg/mL),并对其执行完整的提取与定量流程。这些实验在连续四天内每天进行四次运行,共完成16次运行。将糖原标准品浓度与其扣除空白后的A620吸光度值作图,得到线性回归曲线,回归方程为Y = 0.1700X + 0.002459,R2 = 0.9969(图6A)。对曲线低端进行目视检查发现,0.005、0.01 和 0.02 mg/mL的糖原标准品虽然仍处于回归曲线的95%置信区间内,但难以与空白信号区分(见图6A中的放大图)。计算得到的检出限(LOD)和定量限(LOQ)分别为0.026 mg/mL和0.08 mg/mL(图6B)。0.005、0.01、0.02、0.05、0.1、0.2、0.5 和 1 mg/mL糖原标准品的批内变异系数(CV%)分别为48.89%、44.62%、48.25%、53.04%、18.16%、17.21%、6.00% 和 10.73%;相应的批间CV%分别为15.33%、17.99%、23.84%、11.72%、15.15%、3.12%、5.29% 和 3.93%(图6C)。根据观察到的检测线性、灵敏度和精密度,确定蒽酮比色法在样品提取物中的实际工作范围为0.05–1 mg/mL糖原。
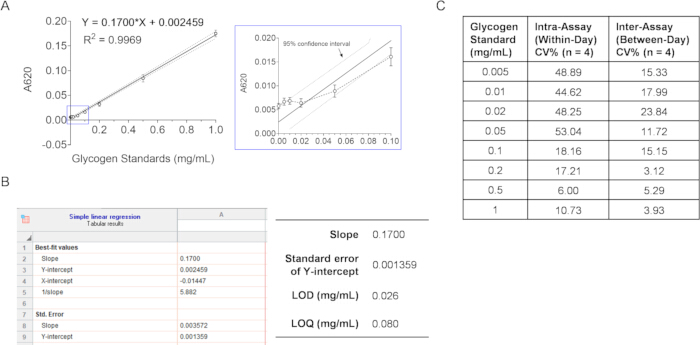
图6:方法的灵敏度与可重复性。(A)以糖原标准品对空白校正后的A620吸光度绘制的线性回归曲线。右侧显示曲线低端线性部分的放大视图。(B)Prism GraphPad中表格结果的截图,显示Y轴截距的斜率和标准误。右侧列出计算得到的检出限(LOD)和定量限(LOQ)。(C)各糖原标准品的批内和批间变异系数(CV%)计算结果。请点击此处查看该图的放大版本。
讨论
本文介绍了一种改良的蒽酮比色法,用于定量动物组织中的糖原含量。该方法在传统的组织采集、碱性消化、糖原沉淀、酒精洗涤及基于蒽酮的显色反应等步骤基础上,增加了一个去蛋白步骤,以减少背景干扰(图1)。我们将该方法应用于不同生理条件下肝脏和腓肠肌中糖原含量变化的检测,验证了其检测糖原代谢中生理相关性变化的能力。通过对糖原合酶和糖原磷酸化酶等糖原代谢关键酶进行正交的蛋白质印迹分析,进一步支持了所观察到的糖原水平变化,证实了该方法的适用性。
采用本方法测得的组织糖原含量处于文献 previously 报道的范围内。在 随意摄取 在进食条件下,肝脏中的糖原水平通常为33–80 mg/g湿重,骨骼肌中为1–8 mg/g湿重;而在禁食条件下, respective值分别下降至0.6–3.3 mg/g和0.8–4.4 mg/g湿重10,11,13,14,20,21,22不同研究之间的差异可能源于动物品系、年龄、昼夜节律、禁食时长以及糖原定量方法的不同。既往研究报道,传统的蒽酮法在未能充分去除游离葡萄糖、糖蛋白或其他多糖的背景信号时,可能高估糖原含量,常导致测定值偏向报道范围的上限。在本改进方法中,通过关键的处理步骤最大限度地减少了这些干扰物质的影响,包括采用碱性煮沸去除游离葡萄糖,以及利用三氯乙酸(TCA)介导的去蛋白化步骤,在糖原沉淀前沉淀糖蛋白及其他多糖。12与这些方法学改进一致,本研究测得的糖原水平处于已报道数值的中低范围,且与采用特异性更高的淀粉葡萄糖苷酶法所得结果相当。10,13.
除了蒽酮法外,已有多种其他分析方法被开发用于定量组织中的糖原含量,包括基于淀粉葡萄糖苷酶的酶法、苯酚-硫酸法和磁共振波谱法(MRS)。在淀粉葡萄糖苷酶法中,糖原被水解为葡萄糖,随后通过基于葡萄糖氧化酶-过氧化物酶的检测方法对葡萄糖进行定量。尽管该酶学方法对糖原检测具有高特异性,但其在低糖原浓度下的灵敏度可能下降23。此外,该方法涉及相对较高的酶成本和较长的孵育时间。先前的研究报道,与淀粉葡萄糖苷酶法相比,蒽酮法在检测糖原变化方面可提供更一致的定量结果,支持其在定量研究中的应用价值24。苯酚-硫酸法是另一种比色法,可生成在490 nm处具有最大吸收峰的黄橙色显色产物。尽管该方法因操作简便且成本较低而被广泛使用,但其重复性可能存在差异,且由于安全问题,在共用实验室环境中使用苯酚可能受到限制25。磁共振波谱法(MRS)能够无创地进行糖原代谢的纵向评估;然而,该方法需要专用仪器,因此并不常用于啮齿类动物组织中总糖原的定量。
蒽酮法存在若干局限性。首先,在浓硫酸产生的强氧化条件下形成的高质子化溶液中,反应性中间体蒽酚不稳定26因此,建议将蒽酮反应液在冰箱中保存不超过一周,以保持其最佳性能。其次,该方法需使用浓硫酸,由于安全或基础设施限制,某些实验室环境可能无法满足操作条件。在此情况下,可采用基于淀粉葡萄糖苷酶的酶法作为替代方案。此外,尽管三氯乙酸(TCA)去蛋白化是降低背景干扰的重要步骤,但在样品处理过程中,较小的糖原颗粒可能随之共沉淀。27这种效应在糖原储备充足时(如进食状态下)可能影响甚微,但在糖原水平显著降低的情况下(如长时间禁食期间)可能导致低估。类似的局限性也可能适用于其他依赖沉淀法分离糖原的酶学或比色测定方法。在这些条件下,可采用互补的 原位 方法如过碘酸-雪夫染色可提供额外验证。为最大限度提高可重复性,必须严格控制组织消化、糖原沉淀及洗涤步骤。若遇到糖原回收率低或背景信号偏高问题,优化样品处理时间、试剂配制及洗涤效率可能改善检测性能。
综上所述,我们提出了一种稳健的蒽酮比色法,具有足够的灵敏度,可对多种生理状态下糖原含量进行定量分析。该方法能够可靠地评估糖原动态变化,支持细胞能量代谢及糖原相关疾病的研究。对该方法的进一步优化和应用可能为人类健康与疾病相关的糖原代谢研究提供新的见解。
披露
作者声明无利益冲突。
致谢
本工作由国家关键研发计划(National Key R&中国国家重点研发计划(2022YFA0806103)和国家自然科学基金(82270871)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | LABGIC | BS-15-M | 用于样品处理和反应体系构建 |
| 15 mL 微量离心管 | LABGIC | BS-150-M-S | 用于裂解液操作和沉淀步骤 |
| 20X TBST | Solarbio Life Sciences | T1082 | Western blot 膜洗涤用缓冲液 |
| 37 oC 培养箱 | 上海精宏仪器 | HWS-150 | BCA 检测板孵育 |
| 50 mL 离心管 | LABGIC | CT-112-50A | 用于组织消化和提取 |
| 96 孔板 | LABGIC | BS-MP-96W-CL | 基于孔板的吸光度测定 |
| 分析天平 | 常州星云 | FA2204N | 称量化学粉末 |
| 蒽酮 | 上海阿拉丁生化科技 | A108571 | 糖原比色检测用试剂 |
| 抗 GYS1 抗体 | Proteintech | 10566-1-AP | 检测糖原合成酶 1 |
| 抗 GYS2 抗体 | Proteintech | 22371-1-AP | 检测糖原合成酶 2 |
| 抗磷酸化 GYS1/2 (Ser641) 抗体 | Cell Signaling Technology | 47043S | 检测磷酸化的 GYS |
| 抗磷酸化 PYGL (Ser15) 抗体 | Abcam | ab227043 | 检测磷酸化的糖原磷酸化酶 |
| 抗 PYGL 抗体 | Proteintech | 15851-1-AP | 检测肝型糖原磷酸化酶 |
| 抗 PYGM 抗体 | Novus Biologicals | NBP2-16689 | 检测肌型糖原磷酸化酶 |
| BCA 检测试剂盒 | 碧云天 | P0012 | 蛋白定量 |
| 苯甲酸 | 上海阿拉丁生化科技 | B116255 | 制备标准品用饱和溶液 |
| 钝头镊子 | 上海金钟 | J42010 | 脚趾夹捏;组织解剖 |
| BSA 第五组分 | 碧云天 | ST023 | Western blot 封闭剂 |
| 化学发光成像仪 | 天能 | Tanon 5200 Multi | Western blot 信号检测 |
| 化学发光底物(ECL) | 碧云天 | P0018S | Western blot 信号显色 |
| 蒸馏水 | 碧云天 | ST872 | 试剂配制用溶剂 |
| 盐酸肾上腺素 | Sigma-Aldrich | E4642 | 体内诱导糖原分解 |
| 乙醇 | Macklin | E809065 | 糖原沉淀和洗涤 |
| 精细手术剪刀 | 上海金钟 | JA2601 | 组织解剖 |
| Fresco 17 离心机 | 赛默飞世尔科技 | 75002402 | 样品离心 |
| 血糖仪 | i-SENS | CareSens N | 血糖测量 |
| 血糖仪 | i-SENS | CareSens N | 测量尾静脉血糖水平 |
| 血糖试纸 | i-SENS | CareSens N Strips | 测量尾静脉血糖水平 |
| 葡萄糖 | Macklin | G6172 | 标准曲线制备 |
| 糖原储备液 | 碧云天 | D0812 | 制备一系列糖原标准品 |
| 山羊抗兔 IgG 二抗 | 赛默飞世尔科技 | 31462 | 检测一抗 |
| 手持式匀浆器 | GreenPrima | PB100 | 组织匀浆 |
| 印度墨水 | Sigma-Aldrich | 198285 | 总蛋白染色用于归一化 |
| 异氟烷 | RWD 生命科学 | R510-22-10 | 动物安乐死 |
| 实验室加热金属块 | 常州国旺 | GWJ300-1 | 检测过程中的样品加热 |
| 氯化锂 | Macklin | 767397 | 增强糖原沉淀 |
| 甲醇 | 上海阿拉丁生化科技 | M116115 | 糖原洗涤步骤 |
| 酶标仪 | BioTek | ELx800 | 测量 620 nm 处的吸光度 |
| 硝酸纤维素膜 | Millipore | HATF04700 | 蛋白转印膜 |
| 旋转摇床 | DLAB 科学有限公司 | SK-O180-S | 化学发光底物孵育 |
| P1000 移液器 | 赛默飞世尔科技 | 4641100N | 溶液转移 |
| P200 移液器 | 赛默飞世尔科技 | 4641080N | 残留液体移除 |
| 磷酸酶抑制剂(PhosSTOP) | 罗氏 | 4906845001 | 维持蛋白磷酸化状态 |
| 塑料容器(用于组织储存) | 赛默飞世尔科技 | 6A0008 | 收获组织的储存 |
| 蛋白酶抑制剂混合液 | MCE | HY-K0011 | 防止蛋白降解 |
| RIPA 裂解缓冲液 | 碧云天 | P0013B | 蛋白提取 |
| SDS-PAGE 凝胶试剂盒 | 碧云天 | P0012A | 蛋白分离 |
| SDS-PAGE 上样缓冲液(6X) | 碧云天 | P0015F | 与蛋白样品混合后上样至 SDS-PAGE 凝胶孔中 |
| SDS-PAGE 电泳缓冲液(5X) | 碧云天 | P0014D | SDS-PAGE 电泳 |
| 小动物麻醉机 | RWD 生命科学 | R500 | 动物安乐死 |
| 氢氧化钠 | Macklin | S817977 | 组织消化和糖原提取 |
| SD 大鼠 | 查尔斯河实验室 | Crl: CD(SD) | 实验动物模型 |
| 喷雾瓶 | 碧云天 | TB6310 | 喷洒 75% 乙醇润湿和消毒动物毛发 |
| 标准维持饲料 | 江苏协通 | XTI01ZJ-009 | 啮齿类动物维持饮食 |
| 手术剪刀 | 上海金钟 | J22010 | 组织解剖 |
| 带 25 号针头的无菌注射器 | 碧云天 | FS801 | 腹腔注射和尾静脉穿刺 |
| 硫脲 | 上海阿拉丁生化科技 | T112512 | 稳定蒽酮试剂 |
| 转膜缓冲液(10X) | Solarbio Life Sciences | D1060 | 蛋白转印至膜上 |
| 三氯乙酸 | 上海源叶生物科技 | W11293 | 蛋白沉淀 |
| 容量瓶(100 mL, 1 L) | 上海阿拉丁生化科技 | V2853 | 精确体积溶液的配制 |
| 涡旋振荡器 | DLAB 科学有限公司 | 8031102000 | 样品混匀 |
| 水浴锅 | 精宏 | DK-S26 | 反应样品加热 |