本文概述了维持Carausius morosus实验室种群的详细方案,包括动物饲养、卵的处理、若虫护理的关键操作步骤、代表性性能指标,以及该物种寿命和生物学特性的综述。
本文内容
摘要
摘要
Carausius morosus,印度竹节虫,是一种原产于印度的细长枝状昆虫。尽管该物种已通过人工饲养被广泛引入世界各地,常用于实验室研究或作为家庭宠物饲养,但目前仍缺乏标准化的实验动物饲养操作规程。本文报道了印度竹节虫的详细实验室培养条件 C. morosus我们维持库存于 23 °C,70% 相对湿度,以及 12:12 小时明暗光周期。该培养体系在上述条件下已成功维持两年以上,并建立了标准化的饲料和笼具设置操作规程。我们还报道了用于支持持续实验的卵和幼体护理方法 C. morosus在我们的培养条件下,105批在相同24小时内产下的卵均在稳定的12天周期内孵化,其中13.9%的若虫成功发育至成虫阶段。这些标准化方法提高了实验的可重复性和可操作性,有助于更广泛地将C. morosus作为实验室模式系统应用于发育、行为和生理学等多个领域的研究。
引言
随着人们对非哺乳动物替代模型系统的兴趣日益增长,昆虫不仅提供了探索广泛生物多样性的机会,而且相较于哺乳动物模型,其研究成本更低、饲养需求更简单,且面临的监管限制更少1。新兴的昆虫模型系统使得研究独特的生物学现象成为可能,例如在竹节虫(Carausius morosus (Sinéty, 1901))中发生的孤雌生殖现象2。尽管果蝇Drosophila melanogaster 自20世纪初以来已深刻影响了我们对发育和遗传过程的理解3,但诸如C. morosus等其他昆虫模型系统不仅为发育生物学研究提供了独特机遇,同时也可用于探究运动控制、运动行为以及受神经激素调控的生理系统4。
此外,在进化发育生物学领域,半变态(直接发育)昆虫的研究代表性仍然不足,而全变态(间接发育或经历变态)昆虫D. melanogaster则是研究最为深入的模式昆虫。研究像C. morosus这样在达到性成熟前经历多个若虫龄期的直接发育昆虫物种,有助于填补进化发育生物学研究中的关键系统发育空白5。这使得我们能够比较在昆虫进化早期即已分化的半变态与全变态昆虫,而这两类昆虫在当前的实验室模式系统中并未得到均衡代表。由于饲养条件不一致、不可重复,以及缺乏明确的发育与存活评估标准,C. morosus作为实验生物的广泛应用受到限制。本文提出了一套包含明确定义培养条件和预期结果的分步操作方案,可在不同实验室中通用,支持包括胚胎发育追踪、纵向发育研究以及繁殖力实验在内的多种应用。
C. morosus 易于在人工饲养条件下繁殖,因此非常适合用于实验室研究和教学环境。其孤雌生殖能力6消除了对复杂繁殖系统的依赖,降低了维护需求,并简化了种群管理。尽管成功的饲养得益于可控的环境条件,但相较于许多其他实验模型,其饲养过程仍然简便且成本较低。C. morosus 可 readily 以常见植物材料为食,例如常春藤(Hedera helix)、黑莓(Rubus fruticosus)或玫瑰叶(Rosa spp.)。该物种的其他优势还包括自切能力、附肢再生能力7、较大的体型以及能够取食多种寄主植物。然而,该物种也存在一些局限性,包括缺乏公开可用的基因组序列、相对较长的发育周期,以及坚硬的胚胎外卵壳,后者可能使显微注射操作变得困难8。尽管存在这些局限性,C. morosus 仍为科研与教学应用提供了一个实用且有效的模型系统。
C. morosus 的标准化饲养方案对于在研究中获得一致且可重复的结果至关重要。尽管文献中已报道了多项关于 C. morosus 的实验室研究6,9,10,11,12,但据我们所知,迄今为止尚未发表任何针对实验室条件下饲养 C. morosus 的详细操作规程。在本研究中,我们成功建立了一整套适用于 C. morosus 实验室种群的标准化饲养方案,涵盖卵、若虫及生殖成熟成虫的饲养。通过这些方法,我们旨在使该昆虫更广泛地应用于生物学研究领域。
方案
1. 环境饲养条件
- 将实验室培养物置于环境参数如下的控温室或培养箱中:23 °温度 25°C,相对湿度 70%,光暗周期 12:12 小时。
注意:在此条件下, C. morosus 卵预计在产下后约74-80天孵化。
2. 围网围栏的建立与维护
注意:建议使用三面带有织物网通风的网眼昆虫饲养笼进行饲养。 C. morosus一个尺寸为61 x 61 x 91.5厘米的饲养箱适合用于维持最多50只成体,或在建立新种群时,容纳最多500只幼体。
- 选择尺寸适宜的网箱。在引入动物前,确保容器清洁且无杂物。
- 要使用成熟成体建立新种群,请放置25只–将 50 只成年雌性个体放入一个清洁的 61 厘米 × 61 厘米 × 91.5 厘米网箱中。
注意:网孔尺寸应在0.2微米范围内。–1.0 毫米,以防止初孵一龄幼虫逃逸。 - 为使用孵化幼体建立新群体,将最多约500只孵化幼体转移至一个清洁的61厘米×61厘米×91.5厘米网箱中。
3. 饲喂与维护
- 在清理饲养笼时,让昆虫留在笼内;轻轻将其从叶片上取下,置于网笼底部,并在其周围进行清洁。
注意:预计清洁过程大约需要10分钟。–每笼20分钟。 - 每周提供一次新鲜枝叶,如常春藤、悬钩子或玫瑰。确保所有植物材料均不含农药。在将枝叶放入饲养笼前,用自来水冲洗以去除表面碎屑和污染物。
- 将茎秆修剪至适合容器(小罐或瓶子)的尺寸,容器内需注满自来水以保持叶片水分。将准备好的枝叶放入饲养箱内,确保叶片被抬高且昆虫易于接触。放置完毕后小心关闭饲养箱。
- 在每周的笼舍清洁过程中,清除枯萎或干燥的枝叶,并清理围栏底部积聚的排泄物。
注意:当叶片出现脱水迹象(如干燥、脆化、萎蔫或变色)时,需更换植物材料。保持清洁的环境对种群健康与福祉至关重要。 - 每日用 1 号水雾轻轻喷洒每个饲养箱。–使用 250 mL 喷雾瓶喷洒两次自来水,以确保充分水化。
注意:这一点在 孵化后第一天。若食物快速消耗,应降低饲养密度。
4. 收集与维护 Carausius morosus 幼体
注意:在本研究中,我们使用 “幼体” 指代刚从卵中孵出的个体(一龄幼虫),而 “若虫” 指 至 幼体阶段,即胚胎后蜕皮后的发育时期。
- 收集装有新孵化幼体的 6 厘米培养皿。
- 使用钝头塑料镊子,将不超过500只初孵幼虫轻轻转移至一个清洁的61厘米×61厘米×91.5厘米网箱中。
注意:仅收集已完成外骨骼扩张、完全羽化并伸展的若虫。若虫在完全从卵中孵出前受到惊扰,可能会损害其身体伸展,并导致过早死亡。出于类似原因,在将若虫转移至网罩后,应尽量减少对其的直接操作。 - 按照第 3 节所述提供新鲜叶片。
- 为新饲养箱标注以下信息:卵批次采集日期、孵化日期或孵化日期范围,以及添加的孵化幼体数量。
注意:本方法追踪圈养年龄并预测生殖成熟起始时间。 - 在转移幼体后立即对每个饲养箱进行轻度喷雾,此后每日一次,使用1–使用 250 mL 喷雾瓶喷洒 2 次自来水,以确保充分水合。
注意:这在孵化后第一天尤为关键。雏鸟可在同一饲养环境中发育直至成年。在第1节所述的实验室条件下,约13%的雏鸟能在4年内存活至成年。–5 个月表 1). - 在每周笼舍清洁过程中,移除所有死亡或受损的幼雏,以防止污染。
5. 收集与维持 C. morosus 卵
- 打开装有成年雌性个体的饲养笼。
- 用戴手套的手,轻轻地将笼底同时含有卵和粪便的垫料向前开口处扫拢。
- 使用戴手套的手将材料小心转移至一个15厘米培养皿中,以便进行卵子收集。
6. 昆虫终止处理与饲养容器废弃物处置
注意:当 C. morosus 实验不再需要、已死亡或无需卵子时:
- 安乐死/昆虫处置将培养或实验不再需要的活体或死亡昆虫转移至可高压灭菌的废物袋中,并储存于 -20°C 环境。 °在 -80°C 冷冻柜中保存至少 72 小时。
- 卵销毁: 为防止种群过度增长,请移除所有卵。 未用于实验的笼具或培养皿,应置于可高压灭菌的废弃物袋中,并于-20°C下储存。 °在至少 72 小时内保持 C。
- 废物处理: 将来自饲养笼或用于卵或昆虫收集材料的任何污染废弃物放入可高压灭菌的废物袋中,并于-20°C储存。 °在至少 72 小时内保持 C。
- 冷冻材料后,将可高压灭菌的废弃物袋转移至生物危害废物箱进行妥善处置。
注意:由于 C. morosus 作为一种在印度以外地区具有入侵性的物种,必须按照上述方法妥善处理所有材料,以防其意外释放到环境中。
7. 取卵
- 使用钝头塑料镊子,小心拾取每个卵,并将其放入洁净的 6 厘米培养皿中。
注意: 成熟的卵被硬化的外卵壳保护,呈深棕色,形似植物种子。在分拣时,使用白色背景有助于区分粪便与虫卵。 - 在培养皿上标注采集日期和时间以便追踪。孵育期间保持盖子敞开以利于通风。
注意:一个 6 cm 培养皿足以储存最多 200 枚卵。 - 在预期孵化窗口(第74天)前约1周–产卵后 80 天;Kovacikova & Extavour,未发表数据),更换培养皿盖。
- 在预期孵化日期前开始每日检查卵容器,以观察正在孵化的幼体。
8. 预期寿命
- 孵化后,监测个体经历五至六次蜕皮直至达到生殖成熟,在本文第1节所述的实验室条件下,此过程平均发生在孵化后第139天。表 1).
- 遵循本方案时,请按以下方式定义该培养条件下的发育时序:胚胎发育期(产卵至孵化)为74小时。–从孵化至性成熟(开始产卵)约需135天,即从产卵至性成熟总计约200天;自产卵至死亡的总寿命约为9.5个月。
结果
我们在2024年9月至2025年11月期间收集了数据,记录了从卵孵化到性成熟成虫的 C. morosus 实验室成功饲养过程。在此14个月期间,我们建立、维持并监测了五个饲养笼,用于观察以下一项或多项指标:成虫死亡率、产卵数量、卵孵化时间以及若虫存活至成虫的情况。本方法支持长期种群维持,未出现明显的病原体相关疾病或繁殖力下降现象,而这些情况均属于非理想结果。在连续培养两年多的时间里,我们未观察到明显的病原体相关大规模死亡事件,且卵和若虫的产量在多代之间保持稳定。
数据如图所示 图1 和 图2 呈现从设置开始至幼体发育为成体期间五个监测笼中的观察结果,包括各笼中产下的卵数及成体死亡情况。当各笼中的创始个体达到性成熟并开始产卵后,我们记录了每笼中成体的数量,以确定产卵初期的起始种群数量。各笼中成体数量随时间的变化如图所示 图1 和 表1我们将生存率的持续下降解释为与年龄相关的死亡率。
我们对用于监测成虫存活率的相同五个笼子中的卵产量进行了平行监测(图1 和 图2)。每个笼子每日的产卵数在产卵开始后的前30–50天内最高,之后逐渐下降。尽管不同笼子之间的总产卵量存在差异(表2),但这一总体趋势在全部五个重复笼子中均保持一致。我们对总共105批卵的孵化动态进行了为期50天的监测,其中每批卵是指在同一笼子中24小时内产下的卵群。对于 图3 中所示的批次大小分析,将75个批次分为小、中、大三类。我们发现,当一批卵中第一个幼虫孵化后,在首个幼虫孵化出现后的12天内即可达到90%的孵化完成率(图3D),且该时间与批次大小无关(图3B)。我们使用“孵化完成率”一词来描述在某一批卵中首个幼虫孵化出现后的特定时间点内已孵化卵所占的比例。我们注意到,以90%孵化完成率对应的天数对卵批次进行分布统计,结果显示大多数批次在首个幼虫孵化出现后的第10至14天之间达到此阈值(图3C)。
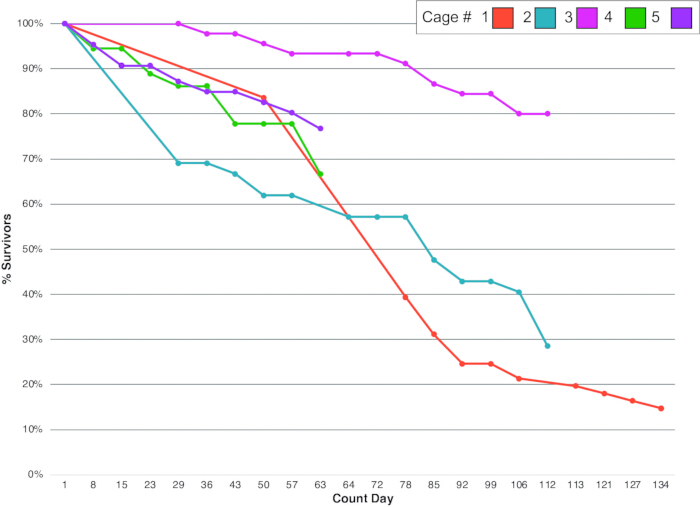
图 1.成虫死亡率动态变化。 随时间推移,五个重复的 C. morosus 实验笼中的存活轨迹。每只被监测个体在各实验笼中的存活率随时间变化情况如图所示。详见表 1中的汇总指标。请点击此处查看该图的放大版本。
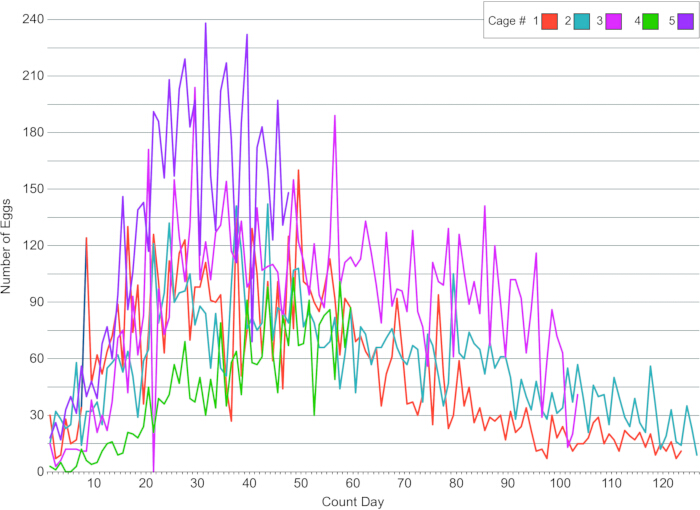
图2卵子产生动态 从持续监测的相同五个笼子中收集的卵子数量 图11至5号笼分别持续监测了47、58、106、129和132天。该图显示了产卵期前126天的数据。详见摘要指标 表 2. 请点击此处以查看此图的放大版本。
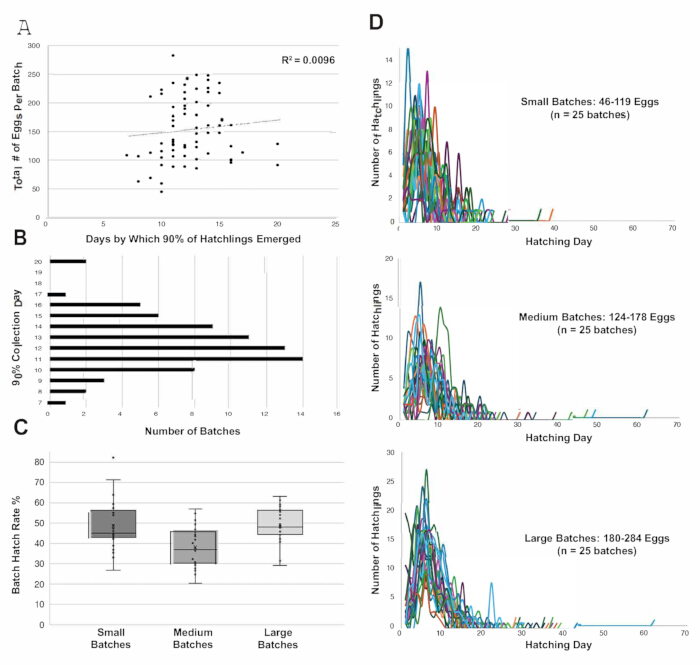
图3.卵孵化动态。(A)每批卵总数与达到90%孵化完成所需天数之间的关系。(B)在第7至第20天达到90%孵化完成的各批卵按天数分布情况。(C)小、中、大三类卵批量的批次孵化率分布。每类批量组n = 25批。(D)用于批量大小分析的75批卵在70天收集期内的孵化轨迹。共监测了105批卵;本图所示分析中,根据总卵数按三分位数截断值将75批卵分组。请点击此处查看此图的放大版本。
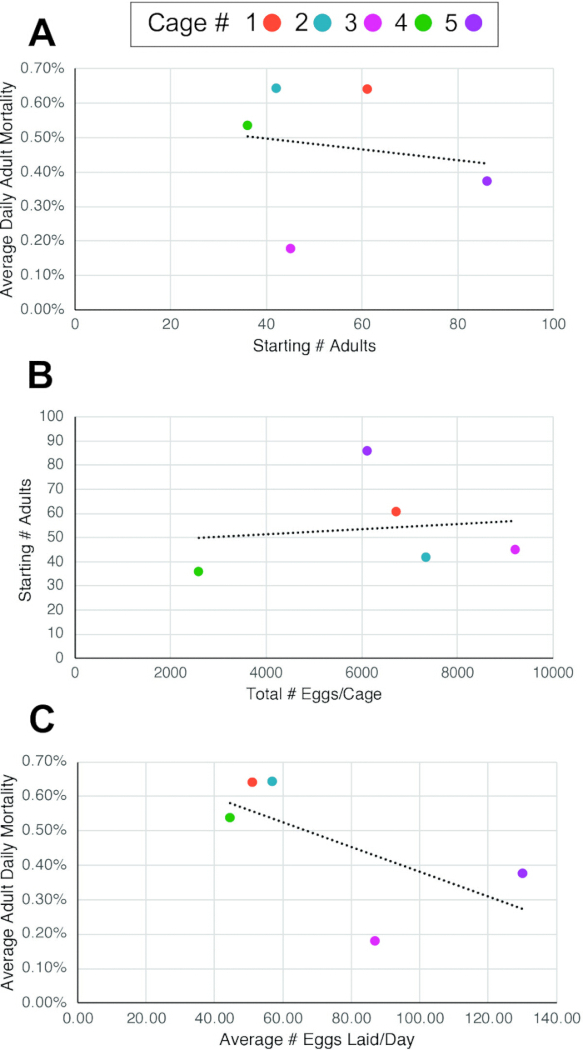
图4.成虫数量、成虫死亡率与每笼产卵量之间的关系。 (A)每笼平均每日成虫死亡率与初始成虫数量之间无显著相关性(R2 = 0.025)。(B)每笼总产卵量与初始成虫数量之间无显著相关性(R2 = 0.017)。(C)平均每日产卵量与平均每日成虫死亡率之间存在中等程度的负相关关系(R2 = 0.411)。平均每日成虫死亡率 =(总死亡率百分比)/(监测总天数)。请点击此处查看该图的放大版本。
| 笼号 # | 旧笼编号 # | 首日孵化 添加至始代饲养笼中的个体 | 末日孵化 添加至创始人笼中的个体 | # 孵化 笼中添加小鼠 | 孵化天数范围 添加了lings | 笼内起始至成虫数量统计的平均时间 | 成虫计数第一天 | 成虫开始产卵的第一天 | 孵化至成体所需时间 | 孵化与产卵之间的时间间隔 | 起始成虫数量 | 幼体存活至成年 通风橱 | 成虫计数的最后一天 | 成人结束编号 | 成年个体被监测的时间长度 [天] | 监测期间平均成年死亡率 [%] | 成年个体平均每日死亡率 [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | ND | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | 未测定 | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | 未检测到 | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | 未提供待翻译内容。 | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | 未检测到 | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | 未检测到 | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| 平均值 | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
表1:各实验笼中成虫的存活与死亡动态。 五个重复实验笼的成虫存活结果。对于每个实验笼,我们报告了笼的建立日期范围、用于建立每个笼的初孵幼虫数量(5个笼中的2个)、幼虫存活至成虫的比例(5个笼中的2个)、笼建立时间与开始成虫计数及产卵时间之间的间隔、成虫监测持续时间、起始和最终的成虫种群数量、监测期间的成虫死亡数量以及平均每日死亡数。幼虫存活至成虫的比例仅针对已知初始幼虫数量的实验笼进行计算。
| 笼号 | 开始收卵日期 | 结束收卵日期 | 收卵持续时间 [天] | 每笼总卵数 | 平均每日产卵数 | 起始成虫个体数 | 总卵数/起始成虫数 | 每只起始成虫每日平均产卵数 |
| 1 | 2025年5月29日 | 2025年10月8日 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 2025年7月4日 | 2025年11月10日 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 2025年7月27日 | 2025年11月10日 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 2025年9月13日 | 2025年11月10日 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 2025年9月24日 | 2025年11月10日 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| 平均值 | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
表2:各实验笼中的产卵量。 包含成熟成虫的五个重复实验笼的产卵情况。针对每个实验笼,我们列出了卵收集的起止日期、卵收集的总持续时间、每个笼子的累计产卵数,以及每日平均产卵数。
讨论
本文详述的饲养方法为实验室种群 C. morosus 的维持提供了一种简单且可重复的框架。尽管 C. morosus 长期以来已被饲养于实验室或作为家庭宠物,但不同研究中用于实验室研究的饲养方案存在差异6,9,10,11,12。确保稳定的环境条件和统一的喂养方式,对于将 C. morosus 发展为可靠的实验室模式生物,用于发育、生理及进化研究至关重要。
相对于其他模式昆虫,C. morosus 的发育时间
与果蝇Drosophila melanogaster等完全变态昆虫相比,C. morosus的发育速度较慢,幼体阶段更长。在25 °C条件下,D. melanogaster约需24小时完成胚胎发育,并在10–12天内达到生殖成熟13;而在我们的饲养条件下,C. morosus的胚胎发育需要74–80天,孵化后还需约135–139天才能达到生殖成熟,即从产卵到生殖成熟总共约需200天(23 °C,数据未显示)。这一较长的发育周期反映了不完全变态昆虫与完全变态昆虫之间基本的生理和进化差异14,15,并且在竹节虫目(Phasmatodea)中普遍存在16,17,18。尽管其他不完全变态昆虫(如双斑蟋蟀Gryllus bimaculatus)在较短时间内即可完成胚胎发育并达到性成熟(在29 °C下分别为10天和6周19),但C. morosus较慢的发育过程为可重复的研究以及对胚胎发育和幼体发育进行细致的纵向观察提供了独特的机会。
叶片来源与饲喂方法
在本实验方案中,我们报告使用常春藤(Hedera helix)作为 C. morosus 种群的主要食物来源,其叶片全年均从校园内固定地点采集。尽管并非所有实验室都能获取常春藤,但已有多种替代植物被证实可用于维持 C. morosus 种群,包括悬钩子(Rubus spp.)、女贞(Ligustrum spp.)、火棘(Pyracantha spp.)、玫瑰(Rosa spp.)、山楂(Crataegus monogyna)、橡树(Quercus spp.)和榛树(Corylus spp.)20。使用从外部来源采集的植物叶片时,一个重要的考虑因素是其营养成分的可控性低于依赖标准化饲料的实验室系统(例如黑腹果蝇 Drosophila melanogaster),可能引入营养成分的变异性。为尽量减少这一问题,我们全年均从同一地点采集同一种植物,并在常规笼具维护期间每周统一为所有笼具提供一次新鲜叶片。用于喂养的常春藤枝条通常包含萌发叶和成熟叶的混合物;我们并未针对特定发育阶段的叶片选择枝条。所有叶片在加入笼具前均经过清洗。我们采用每周更换一次的固定时间表,在同一天清除全部旧叶片并更换新叶片,以确保操作一致性并便于种群规模管理。切割后的常春藤叶片被置于笼内盛水的容器中,以维持其一周内的水分。大多数情况下,叶片可保持良好状态达整整一周,但偶尔也会出现干燥或被取食殆尽的情况,此时我们会提前更换叶片,间隔短于一周。
菌落大小、存活率和成虫繁殖
正确的种群建立和对种群密度的精细管理是保持种群健康的关键。每个61 cm × 61 cm × 91.5 cm的饲养箱中最多饲养约500只幼体或50只成体,有助于维持稳定的环境条件、种群维护以及可重复的发育观察。
将笼内成虫的平均每日死亡率与初始成虫数量进行比较(图4A 和 Table 1)发现,这两个参数之间不存在可预测的关系。同样,初始成虫总数与总产卵数之间也未表现出明显的预测性关系(图4B、Table 1 和 Table 2)。相反,平均每日成虫死亡率较低的笼子倾向于具有较高的平均每日产卵量(图4C)。然而,不同笼子之间的差异表明,成虫之间的产卵量存在变异(Table 1 和 Table 2),这意味着除成虫存活率之外的其他因素可能影响繁殖力模式,且个体雌虫每日产卵数量也可能存在差异。
在实验过程中,所有被监测笼子中的产卵量总体呈下降趋势(图2)。大多数笼子在繁殖期初期(前50天)的日均产卵率最高,随后产卵量逐渐减少(图2)。这一模式与我们的观察结果一致:个体通常在孵化后约135天达到性成熟并开始产卵,死亡率则大约在90天后(即孵化后约225天)开始上升(数据未显示)。
孵化的时间与动态
在监测的各批卵中,大多数孵化事件均发生在开始出现孵化后的稳定12天时间段内(图3D)。同样,批次规模与90%孵化完成时间之间也未观察到相关性(图3A),大多数批次在首只若虫孵化后10至14天内达到90%的孵化完成率(图3B)。这种可预测的孵化周期是 C. morosus 种群管理的一个有益特征,因为它允许将孵化出的若虫按相近年龄分组为同批群体,从而改善发育阶段的判定并减少实验变异。预知集中孵化的发生时间,还有助于更好地规划饲养容器的轮换和资源分配,包括及时准备饲养容器、植物叶片及追踪材料,这对于大规模或长期研究尤为重要。尽管有性生殖和孤雌生殖的竹节虫物种均已被研究,但我们目前尚无证据表明仅繁殖方式的不同即可导致胚胎发育时间上的差异。相反,已有研究报道发育差异具有物种特异性,并受环境条件的影响2。
卵的处理与基质选择
我们的卵处理方法包括直接从饲养箱底部收集卵,并将其置于通风的培养皿中进行孵化。这种方法使得卵易于观察,与那些将卵产在椰壳纤维或棉芯等基质中的蟋蟀系统不同21。C. morosus 卵坚硬的外卵壳在操作过程中提供了保护,并能防止干燥,因此在我们的培养条件下,无需额外基质即可安全地在培养皿中孵化。综上所述,这些标准化的操作流程为维持健康的 C. morosus 种群提供了系统性的方法,适用于可重复的发育、行为、遗传或生理学研究。稳定的环境控制条件(23 °C、70% 相对湿度、12:12 光暗周期)、定期的饲养箱维护以及可预测的发育时间线,使 C. morosus 成为一种易于获取且低成本的模式系统。尤为重要的是,与某些因拥挤、同类相食或病原体负荷而容易迅速崩溃的蟋蟀系统不同22,C. morosus 易于维持,非常适合大规模实验以及跨越多个世代的研究。随着 C. morosus 越来越多地被用作半变态发育的模式物种,采用标准化方法将有助于促进昆虫生物学多个研究领域内实验结果的可重复性和可比性。
从孵化到成体的存活率
在本研究中,从若虫孵化到成虫的存活率(约13%)显著低于另一项关于在受控实验室条件下 C. morosus 若虫存活率的定量研究结果,该研究中在热量限制条件下有68%的个体存活至成虫阶段,在自由摄食(ab libitum)条件下存活率高达87%23。我们推测,与先前研究相比,本实验群体中观察到的较低存活率(约13%)是由于动物饲养方式的差异所致,而这些差异又反映了我们培养体系与先前研究在目标上的不同。我们的实验方案旨在维持大规模、持续繁殖的种群,而非最大化单个群体的存活率。因此,我们以相对较高的密度饲养个体,而先前的研究则将个体从卵开始在单独的笼中隔离饲养23。我们推测,本文所述的高密度培养方法可能比隔离饲养导致更高的死亡率,尤其是在早期若虫阶段,个体可能对拥挤或竞争更为敏感。在我们较大的饲养笼中,植物质量的差异也可能起到一定作用,而先前的个体饲养方法则使用从植物叶片上切割的、大小受控的叶盘进行喂食23。然而,尽管存活率相对较低,我们的种群仍持续产生大量卵,并在时间上保持稳定(图1、图3、表1 和 表2)。这表明,本文所述的方法适用于长期实验室种群的维持。
影响存活率的因素及方案局限性
本方案中有多个因素可能影响存活率,需严格控制。种群密度是一个重要参数,密度过高可能会降低存活率,尤其是在低龄若虫阶段。另一个影响存活率的因素是充足的水分,特别是在低龄若虫阶段尤为重要。本方案中描述的所有操作步骤和时间安排均基于本研究使用的特定环境条件。然而,湿度、温度、气流或植物种类的变化可能会影响喷雾加水的频率、叶片更换频率、卵的孵化时间以及整体存活率。例如,在较干燥的培养条件下,可能需要更频繁地喷雾加水和更换植物以维持水分。不同植物种类也可能影响若虫的取食和发育。应根据实际饲养条件和实验目标对这些因素进行相应调整。对于需要高幼体存活率、个体追踪或行为检测的应用,较低的起始密度可能更为理想。
披露
作者声明无任何利益冲突。
致谢
本项目由美国国家科学基金会(National Science Foundation)资助,项目编号为IOS 22207477,授予CGE,CGE为霍华德·休斯医学研究所(Howard Hughes Medical Institute)研究员。我们认识到,Carausius morosus 据信起源于印度泰米尔纳德邦,且该物种的实验室种群自至少1908年以来已在印度以外地区持续维持。我们诚挚感谢基尔大学(University of Kiel)的Stanislav Gorb和Thies Büscher提供了用于建立本实验室种群的初始成虫群体,并感谢Extavour实验室所有成员的支持,包括前实验室成员Dr. Upendra Bhattarai(现任职单位:布朗大学),其建立了最初的种群群体。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 可高压灭菌的聚丙烯袋,30.5 cm × 61 cm | VWR | 95042-554 | 用于昆虫、卵及饲养容器废弃物的处理 |
| 生物危害废物桶 | N/A | N/A | 冷冻后用于废弃物处置 |
| 钝头塑料镊子 | Amazon | B07YZ5FB27 | 用于收集和操作卵及初孵幼虫 |
| 温湿度可控房间或培养箱 | N/A | N/A | 用于维持 23 °C、70% 相对湿度及 12:12 小时明暗光周期 |
| 一次性手套 | N/A | N/A | 用于卵的收集和废弃物处理 |
| 一次性培养皿,150 × 15 mm | VWR | 25384-326 | 用于卵的收集 |
| 一次性培养皿,60 × 15 mm | VWR | 25384-092 | 用于卵的孵化 |
| 新鲜植物叶片(常春藤、黑莓或玫瑰叶) | N/A | N/A | 无农药的食物来源 |
| 冷冻柜,-20 °C | N/A | N/A | 用于安乐死/处置,以及在丢弃前冷冻卵或废弃物 |
| 网状昆虫饲养笼 | Amazon | B09GS2CH1G | 用于饲养昆虫 |
| 喷雾瓶,250 mL | Amazon | B000H88PCU | 用于向网状饲养笼喷雾 |
| 高玻璃容器,高度 18–23 cm | N/A | N/A | 用于盛水并支撑植物茎秆 |
| 自来水 | N/A | N/A | 用于喷雾及维持植物叶片水分 |
| 白色分拣表面或托盘 | N/A | N/A | 在分拣时用于区分卵与排泄物 |
参考文献
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
重印与许可
