本研究结合大鼠眼压升高模型以及在人巩膜成纤维细胞中进行的体外机械应变、激动剂/抑制剂和siRNA实验,证明Piezo1的表达在巩膜细胞外基质重塑过程中升高,并在功能上参与了肌成纤维细胞的分化。
研究文章
Piezo1通过机械应变诱导的成纤维细胞分化促进巩膜细胞外基质重塑
* These authors contributed equally
本文内容
摘要
摘要
机械应变诱导的肌成纤维细胞分化是青光眼中小梁细胞外基质(ECM)重塑的关键机制。然而,机械应变在巩膜成纤维细胞内转化为生化信号的过程仍不明确。本研究旨在探讨Piezo1在机械应变诱导的巩膜ECM重塑过程中对细胞增殖与分化的作用。研究设计结合了一周大鼠高眼压模型的体内表达观察,以及在原代人巩膜成纤维细胞(HSF细胞)中进行的体外力学机制实验,后者包括周期性机械拉伸(10%拉伸幅度,0.5 Hz,最长24小时)和Piezo1的药理学调控(激动剂Yoda1、抑制剂GsMTx4及siRNA敲低)。研究结果显示,Piezo1在巩膜组织和HSF细胞中均有表达。在体内实验部分,高眼压大鼠巩膜中Piezo1蛋白水平在一周后显著升高,同时伴随Ⅰ型胶原(COL1)和α-平滑肌肌动蛋白(α-SMA)表达上调。在体外实验中,机械拉伸(8–24小时)可上调HSF细胞中Piezo1的表达。此外,使用Yoda1激活Piezo1(24小时)可促进HSF细胞增殖,并增强α-SMA和COL1的表达;相反,敲低或抑制Piezo1则会抑制COL1表达,并阻碍机械应变下的肌成纤维细胞分化。此外,Piezo1的激活导致Yes相关蛋白(YAP)表达上调,而敲低或抑制Piezo1则减弱了机械应变诱导的YAP表达。综上所述,本研究结果提示Piezo1在青光眼背景下参与调控机械应变诱导的巩膜关键ECM成分的表达,可能成为潜在的治疗靶点,但仍需进一步的体内验证。
引言
青光眼是全球不可逆失明的主要原因,其特征是视网膜神经节细胞(RGCs)和视神经乳头(ONH)轴突进行性退变,2020年全球约有7600万人受此影响1,2眼内压升高是青光眼最重要的危险因素3 目前,降低眼压是延缓青光眼发生和进展的唯一有效手段4视神经乳头(ONH)是视网膜神经节细胞(RGC)轴突离开眼球的结构,也是青光眼中主要的损伤部位。眼内压(IOP)升高会在ONH处引起机械应变和位移,导致筛板(LC)内RGC轴突发生退变,最终引发青光眼性视神经病变。5,6.
视盘周围巩膜(PPS)是视神经乳头(ONH)主要的承重组织,其力学特性决定了ONH对眼内压(IOP)引起的机械应变的响应7,8。有限元建模和离体研究表明,筛板(LC)的生物力学应变依赖于巩膜的刚度,而PPS刚度的增加有助于降低LC中的应变9,10。因此,PPS刚度11,12和厚度13的变化可改变ONH与IOP相关的生物力学特性,进一步影响视神经对青光眼性损伤的易感性14,15。在生物力学研究中,青光眼患者死后人眼的巩膜眼刚度高于正常巩膜16,17,且在人类青光眼以及实验性动物模型中均一致观察到视盘周围巩膜的硬化现象18,19,20。这些数据提示,巩膜硬化可能是一种保护性反应,通过减少青光眼期间IOP引起的ONH形变而发挥作用。
巩膜组织的生物力学特性源于成纤维细胞合成的细胞外基质的组成21。最近的研究表明,由眼内压(IOP)升高引起的机械应变能够激活巩膜内驻留的巩膜成纤维细胞22,促进肌成纤维细胞分化23,并导致细胞外基质(ECM)重塑24,25。机械应变诱导的肌成纤维细胞转化是青光眼过程中巩膜ECM重塑的关键环节,但目前尚不清楚机械应变是如何在巩膜成纤维细胞中转化为生化信号和细胞反应的。
Piezo1 是一种新型非选择性阳离子机械敏感通道家族的成员之一,参与包括心脏、肺和皮肤在内的多个器官的纤维化过程26,27。机械应变可激活细胞中的 Piezo1 通道,导致 Ca2+ 内流增加28,从而通过钙依赖性信号通路调控多种细胞活动,包括成纤维细胞的增殖、迁移和分化29,30。近期研究表明,在机械应变条件下,Piezo1 通过促进成纤维细胞的增殖、迁移和分化,推动皮肤纤维化过程31。本研究包含两个互补部分:一是在大鼠高眼压模型中对 Piezo1 表达进行描述性的体内研究,二是在原代人巩膜成纤维细胞上施加周期性机械应变的机制性体外研究。我们假设机械应变可激活 Piezo1,进而促进巩膜成纤维细胞向肌成纤维细胞分化以及细胞外基质成分的表达,这一过程可能通过 YAP 信号通路介导。
方案
雄性Sprague-Dawley大鼠(8周龄)来自复旦大学附属儿童医院实验动物中心。所有大鼠均自由进食饮水,在22±1 ℃、12小时昼夜循环的SPF条件下饲养。所有动物实验均遵循ARVO关于眼科与视觉研究中动物使用的规定,并经复旦大学附属儿童医院机构审查委员会和伦理委员会批准(2022JS-EKYY-019)。用于分离原代人巩膜成纤维细胞的人体巩膜组织,根据机构指南从供体巩膜获取,所有相关操作均经复旦大学机构审查委员会批准(2024-YS-187)。
实验设计
本研究采用体内和体外方法,通过机械应变这一共同概念,探讨Piezo1在巩膜细胞外基质重塑中的作用。在体内实验中,我们利用大鼠高眼压模型检测眼内压升高条件下Piezo1的表达情况。在体外实验中,我们对原代人巩膜成纤维细胞施加周期性机械拉伸,以模拟青光眼状态下巩膜所受的机械应变,并通过药理学激动剂(Yoda1)、抑制剂(GsMTx4)以及siRNA敲低手段调控Piezo1活性。
实验性慢性眼高压(OHT)模型
共使用18只雄性SD大鼠。在每只大鼠中,右眼注射卡波姆以诱导眼内高压(OHT),对侧左眼作为对照组(NT)。整个实验独立重复三次,每组共18只眼。实验单位为单个眼睛。进行眼压(IOP)测量和蛋白质印迹分析的研究人员对分组情况设盲。
按照先前所述方法在大鼠中建立实验性慢性高眼压模型25。简言之,使用10%水合氯醛对大鼠进行麻醉,经托吡卡胺散瞳后,将0.3%卡波姆溶液(20 µL)注入眼前房。使用盐酸氯四环素预防感染。在造模后第3天和第7天使用回弹式眼压计测量眼压。模型建立一周后采集巩膜组织。
巩膜组织的分离方法如前所述25。麻醉后,经心脏灌注含4%甲醛的PBS溶液。去除眼球周围多余的眶内组织,小心移除眼前段结构(角膜、虹膜、晶状体)以及玻璃体。从巩膜内壁轻轻刮除视网膜和脉络膜。收集后部巩膜组织,并通过病理学H&E染色进行鉴定。
细胞培养
原代人巩膜成纤维细胞(HSF细胞)是一种先前建立的人供体巩膜来源的细胞系32每个实验均使用三个独立的生物学重复(来自三位不同供体的细胞)。HSF细胞在DMEM培养基中培养,培养基中添加15%胎牛血清和1%青霉素-链霉素,培养条件为标准环境(37 °C,5% CO₂,湿润 atmosphere)。每四天传代一次,所有实验均使用第5至第9代之间的HSF细胞。通过免疫荧光检测I型胶原和α-平滑肌肌动蛋白细胞标志物对HSF细胞进行鉴定确认。
机械刺激的应用
采用循环机械拉伸系统产生机械性循环拉伸。人皮肤成纤维细胞(HSF细胞)以2×10⁵ cells/mL的接种密度接种于底部涂有胶原蛋白的六孔板中。拉伸组细胞接受10%幅度、0.5 Hz频率的循环拉伸,具体参数如我们先前研究所述32。接种于拉伸板中但未施加拉伸的细胞作为静态对照组。Piezo1 siRNA敲低实验:在机械拉伸前,细胞预先转染Piezo1 siRNA或阴性对照siRNA,持续48小时。转染完成后,细胞接受24小时循环机械拉伸。实验共设四组:(A)转染对照siRNA且无拉伸的细胞;(B)转染对照siRNA并施加拉伸的细胞;(C)转染Piezo1 siRNA且无拉伸的细胞;(D)转染Piezo1 siRNA并施加拉伸的细胞。Piezo1抑制剂(GsMTx4)实验:在机械拉伸前及拉伸过程中,细胞用5 µM GsMTx4处理。实验共设四组:(A)未经处理且无拉伸的细胞;(B)未经处理但施加拉伸的细胞;(C)经GsMTx4处理且无拉伸的细胞;(D)经GsMTx4处理并施加拉伸的细胞(GsMTx4全程存在)。Piezo1激动剂(Yoda1)实验:细胞在含5 µM Yoda1的培养基中培养24小时。实验设两组:(A)未经处理(溶剂对照)的对照组;(B)经Yoda1处理的细胞。
蛋白质印迹法
采用Western印迹法按照常规步骤检测蛋白水平。简言之,使用RIPA缓冲液裂解巩膜组织或培养的成纤维细胞样本。取20 µg蛋白进行SDS-PAGE分离,随后转至硝酸纤维素膜上。将膜在常温下用5% BSA封闭1小时,然后在4 °C下与相应的一抗抗体孵育过夜。所用抗体包括Piezo1、I型胶原、α-平滑肌肌动蛋白、YAP和GAPDH。Piezo1抗体已由生产商验证可用于大鼠和人组织的Western印迹及免疫荧光实验,产品说明书提供了基因敲除/敲低的验证数据。用TBST缓冲液洗涤三次后,将膜与相应的HRP标记的二抗(抗兔或抗鼠)在室温下孵育1小时。使用图像分析软件测定条带强度,并将每个目标条带的信号相对于同一泳道的GAPDH信号进行归一化处理。最终数据以相对于对照组条件的倍数变化形式呈现。
细胞增殖
按照提供的说明书,通过比色法活力检测评估细胞增殖。向每个孔中加入四唑化合物(10 µL/mL),在标准培养条件下(37 °C,5% CO2)孵育 2 小时。随后在 450 nm 处测定吸光度。
小干扰RNA 转染
Piezo1 siRNA 转染操作按先前所述方法进行31。序列如下:Piezo1-siRNA,5’-AGAAGAAGAUCGUCAAGUATT-3’(正义链)和 5’-UACUUGACGAUCUUCUUCUTT-3’(反义链);阴性对照(NC)siRNA,5’-GUGAGCGUCUAUAUACCAUTT-3’(正义链)和 5’-AUGGUAUAUAGACGCUCACTT-3’(反义链)。
免疫荧光
进行免疫荧光染色时,培养的细胞用4%多聚甲醛固定(20分钟,室温),0.1% Triton X‑100透化处理(40分钟),然后用10% BSA封闭。组织切片在4%多聚甲醛中室温固定过夜,随后进行透化和封闭。标本与抗Piezo1和抗α‑SMA的一抗孵育。接着使用荧光染料标记的二抗:绿色标记的抗小鼠抗体(针对α‑SMA)和红色标记的抗兔抗体(针对Piezo1),稀释比例均为1:500。细胞核用DAPI复染,图像使用荧光显微镜采集。
激动剂和抑制剂处理
根据先前的研究33,HSF 细胞用 5 µM GsMTx4 和 5 µM Piezo1 激动剂 Yoda1 进行处理。
统计学分析
每个实验均重复三次。结果以均值 ± 标准差(SD)表示。两组之间的比较采用双尾 Student t 检验。多组比较采用单因素方差分析(one-way ANOVA),随后进行 Tukey 事后检验。数据的正态性通过 Shapiro-Wilk 检验进行检验,方差齐性通过 Levene 检验进行评估。统计学显著性定义为 p < 0.05。所有统计分析均使用专用的统计软件进行。
结果
Piezo1 在大鼠巩膜组织和 HSF 细胞中表达
首先,我们检测了大鼠巩膜组织(体内)和培养的人巩膜成纤维细胞(体外)中 Piezo1 的表达。为探究 Piezo1 的组织特异性表达,使用了 BioGPS 基因注释数据库34。BioGPS 分析显示,Piezo1 在多种眼组织中高表达,包括视网膜色素上皮、虹膜、角膜和眼杯(图 1A)。在体内实验中,免疫荧光证实了 SD 大鼠巩膜组织中存在 Piezo1 表达(图 1B)。在大鼠巩膜组织以及体外培养的 HSF 细胞中,均观察到 Piezo1 与 α-SMA 的共定位,表明 Piezo1 在巩膜成纤维细胞中表达(图 1B)。
在慢性眼高压(OHT)模型中巩膜Piezo1表达增加
本部分展示了来自大鼠高眼压(OHT)模型的体内实验数据。为确保慢性OHT大鼠模型的有效性,在造模后3天和1周时对眼内压(IOP)进行了评估。在第1周时间点,经卡波姆处理的眼睛其平均IOP显著高于对照眼(P < 0.05,图2A)。在IOP升高7天后,通过Western blot检测发现,IOP升高眼的巩膜I型胶原(COL1)和α-平滑肌肌动蛋白(α-SMA)表达水平显著高于对照眼(P < 0.05,图2B、D、E)。已有文献报道,此类变化提示肌成纤维细胞分化及细胞外基质(ECM)重塑25,35。同样,IOP升高眼的巩膜Piezo1水平也显著高于对照眼(图2B、C),这与既往研究结果一致,即机械应力诱导的基质刚度增加可促进Piezo1表达上调31。
机械应变诱导的 HSF 细胞中 Piezo1 的过表达与激活
接下来,我们使用经周期性机械拉伸的HSF细胞进行了体外实验。为了评估基质硬度升高对青光眼巩膜成纤维细胞中Piezo1表达的影响,对HSF细胞施加周期性机械应力(10% 伸长率,0.5 Hz),以模拟高眼压下巩膜成纤维细胞ECM的重塑过程。在拉伸0、4、8、12和24小时后,均检测到Piezo1表达显著增加(图3A、B)。这些结果表明,机械拉伸可促进HSF细胞中Piezo1的过表达及其活化。
Piezo1 调控巩膜肌成纤维细胞在机械应变下的分化
为了检测Piezo1是否参与成肌纤维细胞分化,我们在HSF细胞中进行了功能获得和功能缺失研究。首先,我们将HSF细胞暴露于Piezo1激动剂Yoda1中处理24小时。比色法细胞活力检测显示,与对照组相比,Yoda1处理显著增强了HSF细胞的增殖能力(图4A、B)。此外,Yoda1处理后,HSF细胞中α-SMA和COL1的蛋白表达水平也显著升高(图4C)。
随后,我们使用了 GsMTx436,一种特异性的 Piezo1 阻断剂,用于失活该通道并评估其对牵张力驱动的肌成纤维细胞分化的影响。GsMTx4 处理显著降低了牵张诱导的 HSF 细胞增殖增强(图 5A)。与此同时,GsMTx4 处理还显著抑制了机械应变诱导的 HSF 细胞中 α-SMA 和 COL1 的升高图5C)。与Piezo1的阻断作用一致,机械应变诱导的细胞增殖增加以及α-SMA和COL1的表达均因Piezo1敲低而受到抑制图 5B,D). 在对照(非拉伸)条件下,Piezo1 沉默导致基础水平的 α-SMA 表达略有下降,但无统计学显著性。因此,Piezo1 激活可能是介导机械应变诱导 HSF 细胞成肌成纤维细胞分化的关键因素。
Piezo1 调控机械应变诱导的 HSF 细胞中 YAP 的上调
Yes相关蛋白(YAP)是Hippo信号通路的核心下游效应分子,在这一关键的机械敏感性信号通路中发挥功能。我们之前的研究表明,机械应变可通过上调YAP促进HSF细胞向肌成纤维细胞分化34。近期研究显示,Piezo1可通过YAP信号通路调控细胞分化37;因此,我们推测YAP可能是Piezo1在机械应变诱导的肌成纤维细胞分化过程中的下游效应分子。
Western blot 进一步评估了 Yoda1 诱导的 HSF 细胞中 YAP 表达的变化,如图 6A所示,Yoda1 处理增加了 HSF 细胞中 YAP 的表达。由 YAP 介导的机械应变上调作用可被 Piezo1 沉默和抑制所阻断(图 6B、C)。这些结果表明,在机械应变条件下,Piezo1 的表达与 YAP 的表达相关(图 7)。然而,本研究未检测 YAP 的核转位情况,因此 Piezo1 与 YAP 之间的关系应解释为相关性,而非机制性。
数据可用性:
支持本文结论的原始数据可在 Zenodo 获取,网址为 https://doi.org/10.5281/zenodo.20057246,遵循知识共享零许可(Creative Commons Zero,CC0)。
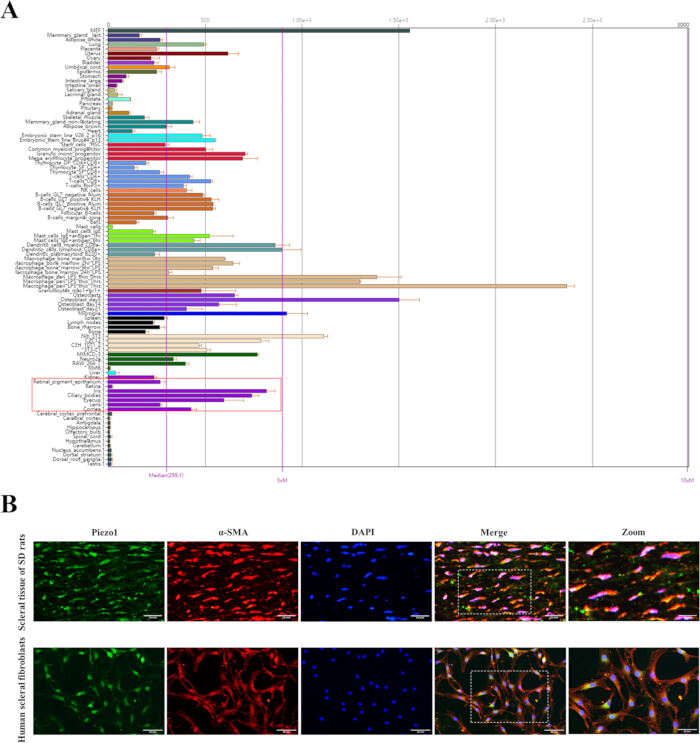
图1:Piezo1在大鼠巩膜及人巩膜成纤维细胞(HSF细胞)中的定位。(A)基于BioGPS数据库获得的Piezo1在多种眼组织中的表达谱。(B)大鼠巩膜(比例尺 = 10 µm)和HSF细胞(比例尺 = 50 µm)中Piezo1(绿色)与α-SMA(红色)的代表性双重免疫荧光图像。数据来自三次独立实验,使用三个不同供体来源的细胞(n = 3)。缩写:α-SMA,α-平滑肌肌动蛋白;DAPI,4′,6-二脒基-2-苯基吲哚。请点击此处查看该图的高清版本。
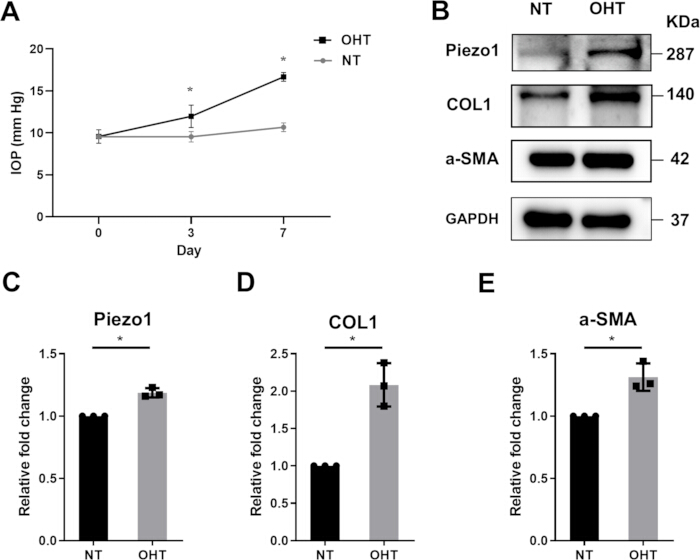
图2:大鼠OHT模型中Piezo1的表达。(A)诱导后3天和1周时测量的眼内压(IOP)。数据表示三次独立实验的平均值±标准差(每组n = 18只眼,每次实验6只大鼠)。*P < 0.05(双尾t检验)。(B)正常眼压(NT)和高眼压(OHT)大鼠(1周)巩膜裂解液中Piezo1、COL1和α-SMA的代表性Western blot图。右侧显示分子量标记(kDa)。(C–E)将(C)Piezo1、(D)COL1和(E)α-SMA蛋白水平相对于GAPDH进行归一化后的定量结果。数据为平均值±标准差(每组n = 18;三次独立实验的重复样本)。*P < 0.05(双尾t检验)。缩写:OHT,ocular hypertension(眼内压升高);SD,Sprague–Dawley(斯普拉格-多利大鼠);NT,normotension(正常眼压);α-SMA,α-smooth muscle actin(α-平滑肌肌动蛋白);GAPDH,glyceraldehyde 3-phosphate dehydrogenase(甘油醛-3-磷酸脱氢酶)。请点击此处查看此图的放大版本。
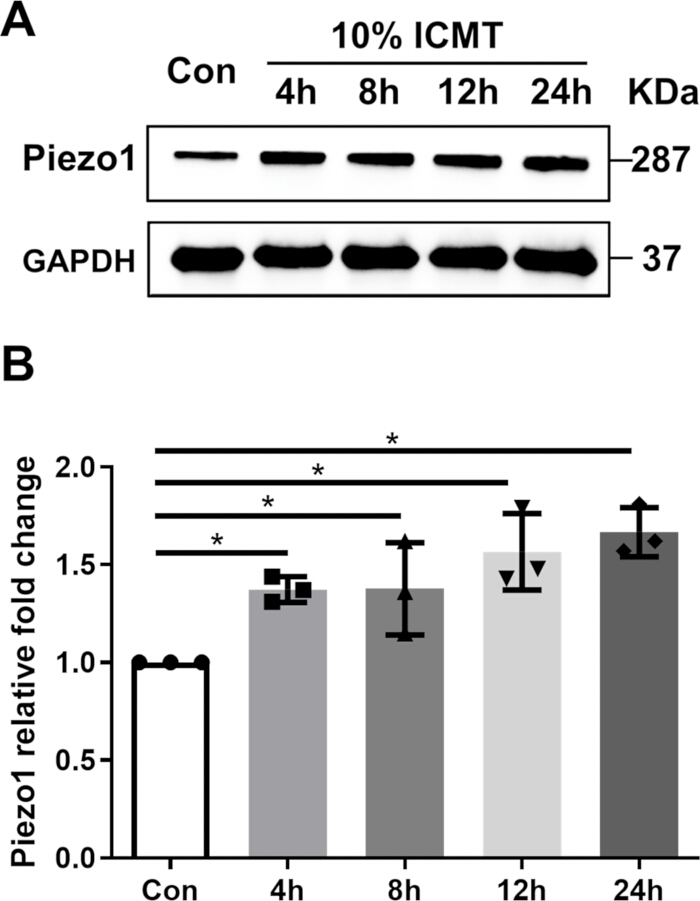
图3:机械应变下HSF细胞中Piezo1的表达。(A)HSF细胞在10%拉伸应变、0.5 Hz条件下作用不同时间(4–24 h)后Piezo1的Western blot分析。培养8 h未施加拉伸的细胞作为对照组(Con)。右侧显示分子量标记(kDa)。(B)Piezo1蛋白水平经GAPDH归一化后的定量结果。数据来自三次独立实验(n = 3),以均值±标准差表示。*P < 0.05,与对照组(0 h)相比,采用单因素方差分析结合Tukey事后检验。请点击此处查看该图的放大版本。
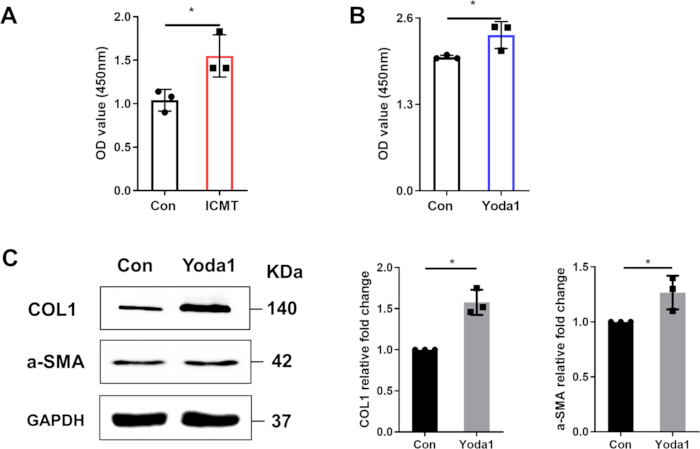
图 4:Piezo1 激活促进 HSF 细胞增殖及肌成纤维细胞标志物的表达。(A,B)通过比色法细胞活力检测评估细胞增殖。(A)HSF 细胞接受 10% 的周期性牵张刺激,频率为 0.5 Hz,持续 8 小时。(B)HSF 细胞用 Piezo1 激动剂 Yoda1(5 µM,24 小时)处理。数据来自三次独立实验,以均值 ± 标准差表示。*P < 0.05(A 采用单因素方差分析,B 采用双尾 t 检验)。(C)通过 Western blot 定量分析经或未经 Yoda1 刺激的 HSF 细胞中 COL1 和 α‑SMA 的表达。数据来自三个独立样本,以均值 ± 标准差表示(n = 3)。*P < 0.05(双尾 t 检验分析 COL1 和 α‑SMA)。 请点击此处查看本图的放大版本。
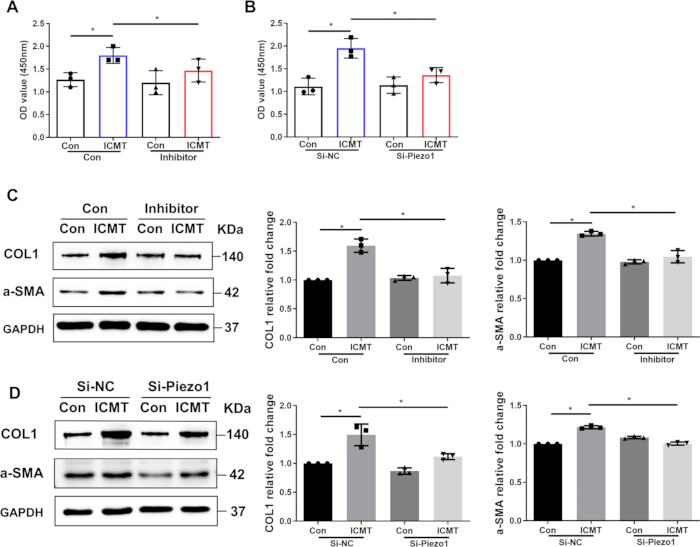
图 5:Piezo1 调控机械应变诱导的巩膜肌成纤维细胞分化。(A,B)通过比色法活力检测评估细胞增殖。(A)人巩膜成纤维细胞(HSF)未经处理(Con)或使用 Piezo1 抑制剂 GsMTx4 处理(Inhibitor)。(B)HSF 细胞转染阴性对照 siRNA(Si‑NC)或 Piezo1 siRNA(Si‑Piezo1)。数据来自三次独立实验,以均值 ± 标准差表示。*P < 0.05(A 采用单因素方差分析,B 采用双尾 t 检验)。(C,D)COL1 和 α‑SMA 的 Western 印迹分析。(C)细胞未经处理(Con)或经 GsMTx4 处理(Inhibitor),随后在 0.5 Hz 条件下接受 10% 的周期性应变 8 小时(Strain),或保持静态。(D)细胞转染 Si‑NC 或 Si‑Piezo1 后进行拉伸(Strain)或不拉伸。每个印迹下方显示相对于 GAPDH 标准化的蛋白水平定量结果。数据来自三次独立实验(n = 3),以均值 ± 标准差表示。*P < 0.05(C 和 D 采用单因素方差分析,Tukey 事后检验)。缩写:Con,对照;α‑SMA,α‑平滑肌肌动蛋白;COL1,I 型胶原;GAPDH,甘油醛-3-磷酸脱氢酶;ICMT,间歇性周期性机械张力。右侧标注了分子量标记(kDa)。 请点击此处查看该图的放大版本。
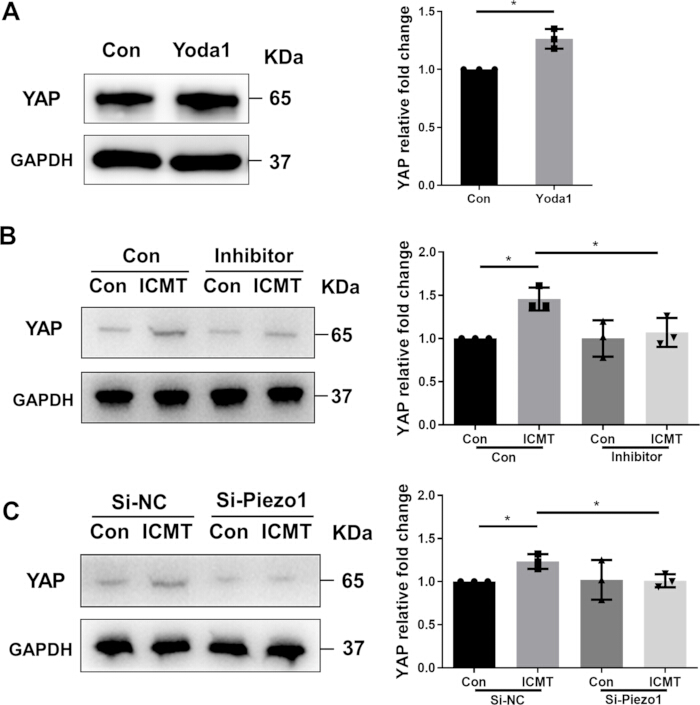
图6:Piezo1调节机械应变诱导的HSF细胞中YAP的上调。(A) 在有或无Piezo1激动剂Yoda1(5 µM,24 h)处理的HSF细胞中,通过Western印迹及定量分析检测YAP表达。数据来自三次独立实验,以均值±标准差表示。*P < 0.05(双尾t检验)。(B) HSF细胞在无(Con)或有GsMTx4(抑制剂)处理后,接受10%、0.5 Hz的循环应变8小时(应变),或保持静态培养。通过Western印迹检测YAP蛋白水平,并以GAPDH为内参进行相对定量。数据以均值±标准差表示(n = 3)。*P < 0.05(单因素方差分析)。(C) HSF细胞转染阴性对照siRNA(Si‑NC)或Piezo1 siRNA(Si‑Piezo1),随后按(B)中条件施加循环应变。YAP表达的检测与定量方法同上。数据以均值±标准差表示(n = 3次独立实验)。*P < 0.05(单因素方差分析)。缩写:Con,对照;GAPDH,甘油醛-3-磷酸脱氢酶;ICMT,间歇性循环机械张力(仅在适用处标明)。右侧显示分子量标记(kDa)。请点击此处查看该图的放大版本。
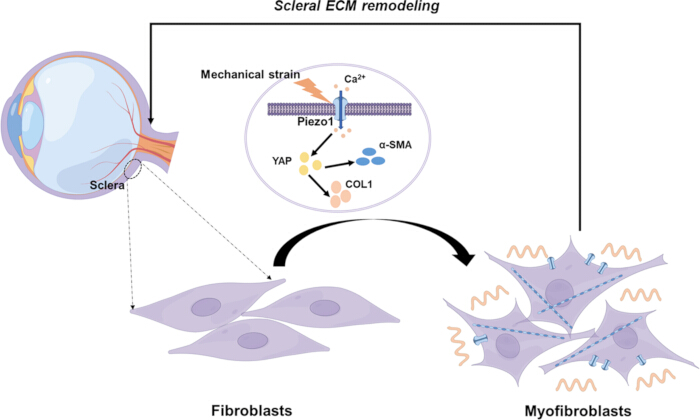
图7:总结主要发现的机制模型示意图。机械应变诱导Piezo1表达,进而激活YAP信号通路,促进肌成纤维细胞分化及细胞外基质重塑的示意图。箭头表示基于实验结果提出的因果关系方向。请点击此处查看该图的放大版本。
讨论
眼内压(IOP)升高会在视神经头和筛板处引起机械应变,从而导致视网膜神经节细胞退化38,39。乳斑周巩膜(PPS)是影响视神经头(ONH)生物力学的主要承重组织40。既往研究表明,机械应变可诱导巩膜成纤维细胞向肌成纤维细胞分化,并引起细胞外基质(ECM)重塑,进而导致巩膜硬化41。由眼内压相关机械力诱导的细胞外基质重塑可能是青光眼治疗的一个有前景的靶点,但机械力诱导细胞外基质重塑的分子机制尚未完全阐明。眼内压在眼球壁内产生流体静压力和壁张力(拉伸)。在本研究中,我们选择使用Flexcell系统施加周期性机械拉伸,因为该方法可单独分离出眼内压诱导的机械负荷中的拉伸组分,并能精确控制应变的幅度、频率和持续时间。
我们承认,基质硬度作为一种重要的力学信号,可通过细胞与基质之间的相互张力(细胞对基质的牵拉)影响细胞行为,但在本实验中并未被独立调控。Flexcell 系统主要向黏附于可变形膜上的细胞施加单轴或双轴拉伸,而基质硬度通常通过改变基底的顺应性来调节。因此,本研究重点关注巩膜成纤维细胞对周期性拉伸的响应,这种拉伸是眼内压相关力学应变的主要组成部分。未来将拉伸刺激与可控的基质硬度相结合的研究,将有助于更全面地理解青光眼背景下巩膜重塑过程中的力学微环境。在本研究中,我们从力学角度探讨了相关机制,首先证实了 Piezo1 在巩膜组织中表达,并且在慢性高眼压大鼠的巩膜组织中 Piezo1 表达升高。机械应变可诱导人巩膜成纤维细胞(HSF 细胞)中 Piezo1 的过表达。Piezo1 的活性可促进 HSF 细胞在机械拉伸条件下的分化与增殖。我们进一步证实,Piezo1 诱导的 YAP 上调参与了机械拉伸引起的 HSF 细胞分化和增殖过程。我们的数据表明,Piezo1 通过调控 YAP 促进机械应变下关键细胞外基质(ECM)成分的表达。
Piezo 最初于2010年被发现是一种机械敏感性离子通道,能够感知多种机械刺激27。Piezo1 在多种细胞中广泛表达,包括上皮细胞42、内皮细胞28、髓系细胞43 和心肌细胞44。近期研究表明,Piezo1 在角膜、小梁网、晶状体、视网膜以及视神经乳头(ONH)等多种眼部组织中均有广泛表达42,45,46。本文中,我们首次提供了 Piezo1 存在于巩膜组织及人巩膜成纤维细胞(HSF细胞)中的证据。此外,在大鼠眼内压(IOP)持续升高一周后,其巩膜中 Piezo1 的表达水平显著上调。早期研究报道,机械力可导致 Piezo1 过表达,且 Piezo1 在长期承受机械刺激的组织中高表达31。作为眼球主要的承重结构,巩膜持续受到来自眼内压的机械应变47。眼内压升高是参与青光眼发病机制的关键因素3;因此,我们提出假说:在青光眼过程中,巩膜成纤维细胞中的 Piezo1 参与了机械应变诱导的关键细胞外基质(ECM)成分的表达。
成纤维细胞是一类对机械力敏感的细胞,能够调控细胞外基质(ECM)的合成、分泌和重塑48,49,50。在眼内压(IOP)所诱导的机械力作用下,巩膜成纤维细胞可分化为表达α-SMA的肌成纤维细胞,并产生过量的ECM22。机械应变诱导的肌成纤维细胞分化是青光眼进展过程中巩膜硬化的重要环节之一24,25。近期研究表明,Piezo1在肌成纤维细胞与成纤维细胞相互作用促进纤维化组织扩展中发挥关键介导作用51,并调控皮肤和心脏中机械应变诱导的肌成纤维细胞分化31,52。为了验证Piezo1是否参与青光眼眼中机械应变驱动的肌成纤维细胞分化过程,我们采用了一种机械应变拉伸模型,在体外模拟IOP诱导的机械应变。在施加10%应变后,人巩膜成纤维细胞(HSF)中Piezo1的表达水平升高,并随着机械应变时间的延长进一步增加。Piezo1水平的升高与α-SMA/COL1表达上调以及HSF增殖能力增强相关。当前研究结果重现了我们先前的研究发现,即机械应变可促进HSF细胞向肌成纤维细胞分化并增加ECM分泌32,34。He等31指出,机械应变可通过上调Piezo1表达并激活成纤维细胞向肌成纤维细胞分化,从而促进增生性瘢痕形成,该结论与本研究结果一致。当HSF细胞经GsMTx4处理或Piezo1基因敲低后,机械应变诱导的肌成纤维细胞分化及ECM分泌受到抑制。相反,Piezo1激动剂Yoda1可促进HSF细胞向肌成纤维细胞分化,表明Piezo1可能是机械应变驱动的肌成纤维细胞分化以及关键巩膜ECM成分上调所必需的因子。
YAP 是Hippo信号通路的主要下游组分,该通路在多种细胞类型中是机械信号传导的关键媒介55,56。在我们之前的研究中,通过生物信息学分析发现Hippo-YAP信号通路是青光眼巩膜细胞外基质(ECM)重塑的关键信号通路57。随后,我们证实机械应变可通过YAP促进人巩膜成纤维细胞(HSF细胞)向肌成纤维细胞分化,并推动巩膜ECM重塑34。YAP是Piezo1通道的下游效应分子58,并与Piezo1协同调控细胞增殖和分化37。我们的数据显示,在机械应变条件下,Piezo1的表达与YAP的表达呈相关性。先前的研究已建立了Piezo1与YAP信号之间的调控联系59,60。然而,由于本研究未检测YAP的核转位情况,因此无法得出Piezo1在本实验体系中直接调控Hippo通路活性的结论。Piezo1与YAP表达之间的关联应视为相关性关系,其背后的分子机制尚需进一步研究加以阐明。
巩膜是视神经乳头(ONH)的重要结构,与筛板(LC)共同承受眼内压(IOP)相关的机械应变5。IOP引起的ONH形变由巩膜的生物力学特性决定7,8;因此,巩膜硬化作为青光眼的一个主要结构特征,被认为在青光眼性视神经病变的发病机制中起重要作用16,17。机械应变诱导的巩膜成纤维细胞向肌成纤维细胞分化及其引发的细胞外基质(ECM)重塑,是巩膜硬化过程中的关键环节22,23,25。我们的研究结果表明,Piezo1作为机械感受器,在介导青光眼巩膜重塑过程中机械应变诱导的肌成纤维细胞转化中发挥重要作用。因此,Piezo1可能成为青光眼治疗的一个潜在靶点。
解释我们的研究结果时应考虑若干局限性。Piezo1 siRNA 沉默效率未进行独立验证;因此,尽管多个实验中功能上的一致性支持所观察到的效应,但仍不能完全排除残留的脱靶效应。在大鼠高眼压模型中,Western blot 分析使用了全巩膜裂解物。由于巩膜包含多种细胞类型,所观察到的 Piezo1、COL1 和 α-SMA 的增加不能完全归因于成纤维细胞。这意味着我们的体内数据反映的是组织水平的变化,而非成纤维细胞特异性的反应。未检测 YAP 的核转位情况;因此,Piezo1 与 YAP 之间的关系应视为相关性而非机制性,我们无法得出 Piezo1 在本系统中直接激活 Hippo 通路的结论。所有体外实验均使用 n=3 的独立生物学重复。尽管该样本量检测到了一致的表型变化,但限制了我们检测较小效应量或进行广泛统计推断的能力;因此,定量估计应视为初步结果。这些注意事项削弱了我们结论的强度,并指出了需要进一步验证的研究方向。
由于缺乏对动物模型中 Piezo1 的体内操控,目前尚无法从该动物模型得出明确的因果结论。然而,体外功能缺失与功能获得实验的趋同性结果为此提供了有力支持。未来的研究将在高眼压(OHT)模型中采用条件性基因敲除或特异性抑制剂。本研究所用的大鼠 OHT 模型仅包含一周的眼压升高过程,可能未能充分模拟人类慢性青光眼的病理过程。选择这一时间点是基于我们先前的观察结果,即在一周内已出现显著的巩膜细胞外基质(ECM)重塑;未来仍需开展长期研究,以明确 Piezo1 在慢性状态下的动态变化。成纤维细胞向肌成纤维细胞的分化仅通过全细胞裂解液中 α-平滑肌肌动蛋白(α-SMA)和 I 型胶原(COL1)的 Western 印迹检测进行评估。尚未进行免疫荧光染色,而该方法可提供空间定位和单细胞分辨率。因此,不能排除细胞间分化反应存在异质性的可能。最后,尚未开展细胞外基质的功能性功能检测。然而,COL1 和 α-SMA 表达的改变以及细胞增殖数据均与促纤维化表型一致。未来的工作将纳入对细胞外基质重塑的直接功能性评估。
综上所述,我们的结果表明,在大鼠高眼压模型中,Piezo1 的表达在巩膜关键细胞外基质成分表达升高时也相应上调,且 Piezo1 的活性可促进人巩膜成纤维细胞在机械应变下向肌成纤维细胞分化并增殖。阻断或敲低 Piezo1 可抑制这些效应。尽管这些结果提示 Piezo1 可能参与了与青光眼相关的巩膜重塑过程,但在将其视为潜在治疗靶点之前,仍需开展更多的体内实验及机制研究。
披露
作者声明不存在任何竞争利益。
致谢
本工作得到国家自然科学基金(项目编号:82401257)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.3% 卡波姆溶液(卡波姆 940 聚合物) | Solarbio, 上海, 中国 | — | 20 μL |
| 10% 水合氯醛 | Macklin, 上海, 中国 | — | 3 mL/kg |
| Alexa Fluor 488 标记的山羊抗小鼠二抗 | Thermo Fisher Scientific, Waltham, MA, USA | — | |
| Alexa Fluor 594 标记的山羊抗兔二抗 | Thermo Fisher Scientific, Waltham, MA, USA | — | |
| BioFlex 六孔培养板(包被 I 型胶原) | Flexcell Int Corp, Hillsborough, NC, USA | — | |
| 盐酸金霉素 | 震华制药, 云南, 中国 | — | |
| COL1 一抗 | Novus Biologicals, CO, USA | — | |
| DMEM | Gibco, Grand Island, NY, USA | — | |
| FBS | Gibco Life Technologies, 澳大利亚 | — | |
| GAPDH 一抗 | Bioworld, MN, USA | — | |
| GraphPad Prism 8.4 版 | Inc., San Diego, CA, USA | — | |
| Nikon Eclipse E800 显微镜 | Nikon, Melville, NY, USA | — | |
| 硝酸纤维素膜 | Pierce, Rockford, IL, USA | — | |
| 青霉素-链霉素 | Hyclone, South Logan, UT, USA | — | |
| Piezo1 一抗 | Novus Biologicals, CO, USA | — | |
| 回弹式眼压计(TonoLab) | Icare, Espoo, 芬兰 | — | |
| RIPA 裂解液 | Thermo Fisher Scientific, 上海, 中国 | — | |
| Flexcell FX-5000 张力系统 | Flexcell International Corporation | — | 用于对 HSF 细胞施加机械性周期性拉伸。 |
| 托吡卡胺 | Bausch Lomb Freda, 山东, 中国 | — | |
| YAP 一抗 | Cell Signaling Technology, Danvers, USA | — | |
| α-SMA 一抗 | Abcam, Cambridge, 英国 | — |
参考文献
- Weinreb RN, Aung T, Medeiros FA. The pathophysiology and treatment of glaucoma: a review. JAMA. 2014;311:1901-1911.
- Tham YC, et al. Global prevalence of glaucoma and projections of glaucoma burden through 2040: a systematic review and meta-analysis. Ophthalmology. 2014;121:2081-2090.
- The AGIS Investigators. The Advanced Glaucoma Intervention Study (AGIS): 7. The relationship between control of intraocular pressure and visual field deterioration. Am J Ophthalmol. 2000;130:429-440.
- Kass MA, et al. The Ocular Hypertension Treatment Study: a randomized trial determines that topical ocular hypotensive medication delays or prevents the onset of primary open-angle glaucoma. Arch Ophthalmol. 2002;120:701-713.
- Wang R, Seifert P, Jakobs TC. Astrocytes in the optic nerve head of glaucomatous mice display a characteristic reactive phenotype. Invest Ophthalmol Vis Sci. 2017;58:924-932.
- Burgoyne CF, Downs JC, Bellezza AJ, Suh JK, Hart RT. The optic nerve head as a biomechanical structure: a new paradigm for understanding the role of IOP-related stress and strain in the pathophysiology of glaucomatous optic nerve head damage. Prog Retin Eye Res. 2005;24:39-73.
- Sigal IA. Interactions between geometry and mechanical properties on the optic nerve head. Invest Ophthalmol Vis Sci. 2009;50:2785-2795.
- Nguyen C, et al. Measuring deformation in the mouse optic nerve head and peripapillary sclera. Invest Ophthalmol Vis Sci. 2017;58:721-733.
- Sigal IA, Flanagan JG, Tertinegg I, Ethier CR. Finite element modeling of optic nerve head biomechanics. Invest Ophthalmol Vis Sci. 2004;45:4378-4387.
- Coudrillier B, et al. Effects of peripapillary scleral stiffening on the deformation of the lamina cribrosa. Invest Ophthalmol Vis Sci. 2016;57:2666-2677.
- Sigal IA, Flanagan JG, Ethier CR. Factors influencing optic nerve head biomechanics. Invest Ophthalmol Vis Sci. 2005;46:4189-4199.
- Sigal IA, et al. IOP-induced lamina cribrosa deformation and scleral canal expansion: independent or related? Invest Ophthalmol Vis Sci. 2011;52:9023-9032.
- Norman RE, et al. Finite element modeling of the human sclera: influence on optic nerve head biomechanics and connections with glaucoma. Exp Eye Res. 2011;93:4-12.
- Thornton IL, Dupps WJ, Sinha Roy A, Krueger RR. Biomechanical effects of intraocular pressure elevation on optic nerve/lamina cribrosa before and after peripapillary scleral collagen cross-linking. Invest Ophthalmol Vis Sci. 2009;50:1227-1233.
- Wu HJ, Kuchtey J, Kuchtey RW. Increased susceptibility to glaucomatous damage in microfibril deficient mice. Invest Ophthalmol Vis Sci. 2020;61:28.
- Hommer A, et al. Estimation of ocular rigidity based on measurement of pulse amplitude using pneumotonometry and fundus pulse using laser interferometry in glaucoma. Invest Ophthalmol Vis Sci. 2008;49:4046-4050.
- Ebneter A, Wagels B, Zinkernagel MS. Non-invasive biometric assessment of ocular rigidity in glaucoma patients and controls. Eye (Lond). 2009;23:606-611.
- Quigley HA, Dorman-Pease ME, Brown AE. Quantitative study of collagen and elastin of the optic nerve head and sclera in human and experimental monkey glaucoma. Curr Eye Res. 1991;10:877-888.
- Coudrillier B, et al. Biomechanics of the human posterior sclera: age- and glaucoma-related changes measured using inflation testing. Invest Ophthalmol Vis Sci. 2012;53:1714-1728.
- Downs JC, et al. Viscoelastic material properties of the peripapillary sclera in normal and early-glaucoma monkey eyes. Invest Ophthalmol Vis Sci. 2005;46:540-546.
- Boote C, et al. Scleral structure and biomechanics. Prog Retin Eye Res. 2020;74:100773.
- Oglesby EN, et al. Scleral fibroblast response to experimental glaucoma in mice. Mol Vis. 2016;22:82-99.
- Qu J, et al. High-magnitude and/or high-frequency mechanical strain promotes peripapillary scleral myofibroblast differentiation. Invest Ophthalmol Vis Sci. 2015;56:7821-7830.
- Shelton L, Rada JS. Effects of cyclic mechanical stretch on extracellular matrix synthesis by human scleral fibroblasts. Exp Eye Res. 2007;84:314-322.
- Qiu C, et al. The dynamic scleral extracellular matrix alterations in chronic ocular hypertension model of rats. Front Physiol. 2020;11:682.
- Poole K, et al. Tuning Piezo ion channels to detect molecular-scale movements relevant for fine touch. Nat Commun. 2014;5:3520.
- Coste B, et al. Piezo1 and Piezo2 are essential components of distinct mechanically activated cation channels. Science. 2010;330:55-60.
- Li J, et al. Piezo1 integration of vascular architecture with physiological force. Nature. 2014;515:279-282.
- Berridge MJ, Lipp P, Bootman MD. The versatility and universality of calcium signalling. Nat Rev Mol Cell Biol. 2000;1:11-21.
- Ranzato E, et al. Platelet lysate promotes in vitro wound scratch closure of human dermal fibroblasts: different roles of cell calcium, P38, ERK and PI3K/AKT. J Cell Mol Med. 2009;13:2030-2038.
- He J, et al. Mechanical stretch promotes hypertrophic scar formation through mechanically activated cation channel Piezo1. Cell Death Dis. 2021;12:226.
- Qiu C, et al. Mechanical strain induces distinct human scleral fibroblast lineages: differential roles in cell proliferation, apoptosis, migration, and differentiation. Invest Ophthalmol Vis Sci. 2018;59:2401-2410.
- Cinar E, et al. Piezo1 regulates mechanotransductive release of ATP from human RBCs. Proc Natl Acad Sci U S A. 2015;112:11783-11788.
- Wu C, et al. BioGPS: building your own mash-up of gene annotations and expression profiles. Nucleic Acids Res. 2016;44:D313- D316.
- Hu D, et al. Mechanical strain regulates myofibroblast differentiation of human scleral fibroblasts by YAP. Front Physiol. 2021;12:712509.
- Bae C, Sachs F, Gottlieb PA. The mechanosensitive ion channel Piezo1 is inhibited by the peptide GsMTx4. Biochemistry. 2011;50:6295-6300.
- Liu S, et al. Piezo1 impairs hepatocellular tumor growth via deregulation of the MAPK-mediated YAP signaling pathway. Cell Calcium. 2021;95:102367.
- Crawford Downs J, Roberts MD, Sigal IA. Glaucomatous cupping of the lamina cribrosa: a review of the evidence for active progressive remodeling as a mechanism. Exp Eye Res. 2011;93:133-140.
- Sigal IA, et al. Predicted extension, compression and shearing of optic nerve head tissues. Exp Eye Res. 2007;85:312-322.
- Bellezza AJ, Hart RT, Burgoyne CF. The optic nerve head as a biomechanical structure: initial finite element modeling. Invest Ophthalmol Vis Sci. 2000;41:2991-3000.
- Girard MJ, et al. Biomechanical changes in the sclera of monkey eyes exposed to chronic IOP elevations. Invest Ophthalmol Vis Sci. 2011;52:5656-5669.
- Morozumi W, et al. Piezo channel plays a part in retinal ganglion cell damage. Exp Eye Res. 2020;191:107900.
- Solis AG, et al. Mechanosensation of cyclical force by PIEZO1 is essential for innate immunity. Nature. 2019;573:69-74.
- Wong TY, et al. Mechanical stretching simulates cardiac physiology and pathology through mechanosensor Piezo1. J Clin Med. 2018;7:410.
- Choi HJ, Sun D, Jakobs TC. Astrocytes in the optic nerve head express putative mechanosensitive channels. Mol Vis. 2015;21:749-766.
- Morozumi W, et al. Piezo 1 is involved in intraocular pressure regulation. J Pharmacol Sci. 2021;147:211-221.
- Watson PG, Young RD. Scleral structure, organisation and disease. A review. Exp Eye Res. 2004;78:609-623.
- Hinz B. Myofibroblasts. Exp Eye Res. 2016;142:56-70.
- Bergmeier V, et al. Identification of a myofibroblast-specific expression signature in skin wounds. Matrix Biol. 2018;65:59-74.
- DeLeon-Pennell KY, Barker TH, Lindsey ML. Fibroblasts: the arbiters of extracellular matrix remodeling. Matrix Biol. 2020;91-92:1-7.
- Liu L, et al. Matrix-transmitted paratensile signaling enables myofibroblast-fibroblast cross talk in fibrosis expansion. Proc Natl Acad Sci U S A. 2020;117:10832-10838.
- Blythe NM, et al. Mechanically activated Piezo1 channels of cardiac fibroblasts stimulate p38 mitogen-activated protein kinase activity and interleukin-6 secretion. J Biol Chem. 2019;294:17395-17408.
- Berridge MJ, Bootman MD, Roderick HL. Calcium signalling: dynamics, homeostasis and remodelling. Nat Rev Mol Cell Biol. 2003;4:517-529.
- Chung CC, et al. Vascular endothelial growth factor enhances profibrotic activities through modulation of calcium homeostasis in human atrial fibroblasts. Lab Invest. 2020;100:285-296.
- Wada K, et al. Hippo pathway regulation by cell morphology and stress fibers. Development. 2011;138:3907-3914.
- Codelia VA, Sun G, Irvine KD. Regulation of YAP by mechanical strain through Jnk and Hippo signaling. Curr Biol. 2014;24:2012-2017.
- Hu D, et al. Identification of key genes and pathways in scleral extracellular matrix remodeling in glaucoma: potential therapeutic agents discovered using bioinformatics analysis. Int J Med Sci. 2021;18:1554-1565.
- Pathak MM, et al. Stretch-activated ion channel Piezo1 directs lineage choice in human neural stem cells. Proc Natl Acad Sci U S A. 2014;111:16148-16153.
- Fu Y, et al. Targeting mechanosensitive Piezo1 alleviated renal fibrosis through p38MAPK-YAP pathway. Front Cell Dev Biol. 2021;9:741060.
- Zhu L, Ren S, He S, Liu M, Hou F. Piezo in the eye: expression, distribution and roles in ocular diseases. Front Physiol. 2025;16:1651258.