本文综述了重度哮喘的机制和生物标志物,旨在阐明其在指导生物制剂治疗选择中的作用。文章结合了已确立和新兴的生物标志物,整合当前的生物制剂疗法以及针对2型高炎症和2型低炎症哮喘的不断发展的精准治疗策略。
综述文章
重度哮喘的生物治疗:生物标志物引导的精准治疗与免疫病理机制
* These authors contributed equally
本文内容
摘要
摘要
重度哮喘是一种难以控制的气道疾病,其临床表现和潜在的炎症机制均具有显著的异质性。本文综述了重度哮喘的发病机制、生物标志物及生物制剂治疗,重点讨论基于生物标志物指导的治疗选择,以及针对2型炎症高表达(T2-high)和2型炎症低表达(T2-low)哮喘的新兴精准治疗策略。生物制剂的开发已改变了治疗模式,尤其对T2-high炎症患者具有重要意义。通过靶向免疫球蛋白E(IgE)、白细胞介素-5(IL-5)、白细胞介素-4受体α(IL-4Rα)以及胸腺基质淋巴细胞生成素(TSLP)相关通路,这些药物可减少哮喘急性加重,改善肺功能和症状控制,并提高生活质量。包括外周血嗜酸性粒细胞、呼出气一氧化氮分数(FeNO)、总IgE和痰嗜酸性粒细胞在内的生物标志物已被纳入临床决策,以支持患者的分层管理。其他新兴标志物,如骨膜蛋白(periostin)、上皮警报素、基因表达谱、微小RNA(microRNAs)以及多组学特征,正在研究中,旨在实现更精确的表型分类和疗效预测。尽管取得了上述进展,当前的生物标志物仍不能始终提供足够的预测准确性,针对T2-low哮喘的靶向治疗选择仍然有限,生物制剂价格昂贵,且长期结局数据尚不完善。总体而言,将生物标志物结果与临床表型、共病情况及治疗史相结合,仍是实现个体化生物制剂选择的核心。
引言
哮喘是一种以气道炎症、可变的呼气气流受限和气道反应性增高为特征的慢性气道炎症性疾病,仍是全球重大的公共卫生负担1。据估计,全球约有4.4%的人口受其影响,许多国家报告的患病率呈上升趋势2,3。大多数患者可通过标准吸入治疗有效管理,尤其是吸入性糖皮质激素(ICS)联合长效β₂-受体激动剂(LABA)的治疗方案。然而,有一部分患者属于难治性哮喘,定义为尽管接受了中高剂量ICS-LABA治疗或维持性口服糖皮质激素(OCS)治疗,哮喘仍无法控制,或需要高剂量治疗才能维持充分控制。根据全球哮喘防治倡议(GINA)的定义,重度哮喘(SA)是指在规范使用优化的高剂量ICS-LABA治疗并妥善处理相关影响因素后,哮喘仍无法控制,或需持续高剂量治疗才能维持良好控制的亚群4。因此,当可调节因素(如吸入装置使用技术不当、依从性差、吸烟或未治疗的共病)得到纠正后哮喘控制改善时,不应将其归类为重度哮喘。SA患者常持续出现呼吸道症状、反复急性加重,并偶尔需长期依赖OCS5。尽管他们在哮喘患者中所占比例相对较小,但却造成了哮喘相关发病率、死亡率和医疗费用的大部分负担6。
SA在临床和免疫学水平上均具有高度异质性。2型炎症(T2-high)是最常见的内型,在大多数重症成人患者中均有报道7,8。对哮喘分子基础的深入理解推动了生物制剂的应用,这些制剂可选择性阻断主要的炎症通路。本文综述的生物制剂已在美国、欧盟或两地均获批用于哮喘治疗。然而,不同地区的批准适应证、适用年龄组、给药方案及可及性存在差异。奥马珠单抗(omalizumab)靶向免疫球蛋白E(IgE)9;美泊利单抗(mepolizumab)和瑞利珠单抗(reslizumab)中和白细胞介素-5(IL-5),而贝那利珠单抗(benralizumab)靶向白细胞介素-5受体α亚基(IL-5Rα)10,11。度普利尤单抗(dupilumab)阻断白细胞介素-4受体α亚基(IL-4Rα),替泽贝利单抗(tezepelumab)抑制胸腺基质淋巴细胞生成素(TSLP)12。对于奥马珠单抗,治疗前的总IgE水平与体重的组合必须位于当地批准的剂量表范围内;否则无法确定推荐剂量13。Depemokimab是一种超长效抗IL-5抗体,每6个月给药一次14。在部分选定患者中,生物制剂治疗可减少急性加重事件,改善肺功能,并增强疾病控制能力15,16,17,18,19,20。
尽管如此,不同个体对生物制剂的治疗效果存在显著差异,凸显了优化治疗匹配的必要性。由于严重哮喘(SA)涵盖多种炎症模式,单一的治疗策略难以对所有患者均有效。在此背景下,生物标志物在识别疾病亚型和指导治疗决策方面正变得越来越重要。外周血嗜酸性粒细胞、呼出气一氧化氮分数(FeNO)、总IgE以及痰嗜酸性粒细胞是目前临床实践中最常用的标志物,尤其用于评估2型(T2)炎症状态及预测对生物制剂治疗的反应性21。与此同时,转录组学、基因组学、蛋白质组学以及基于人工智能(AI)的分析模型等新兴方法,为更精确的患者分型提供了新的机遇。本文综述了严重哮喘的免疫病理发生机制,概述了现有生物制剂的作用机制,并探讨了生物标志物在精准治疗中的当前应用及未来发展方向。
本文不仅概述了疾病机制及各类生物制剂,还根据生物标志物在炎症表型分型、疗效预测、生物制剂选择和长期监测中的临床作用,整合了已确立和新兴的生物标志物。同时,本文比较了不同生物制剂类别之间的候选标志物谱型,并探讨了可能影响治疗选择的重叠或随时间变化的炎症模式。最后,本文探讨了复合生物标志物策略、多组学技术以及人工智能辅助表型分析如何提升未来精准治疗水平,特别是针对2型炎症低度表达(T2-low)疾病及生物标志物谱型不一致的患者。
综述与观点
文献检索与筛选
通过 PubMed/MEDLINE、Embase 和 Web of Science 数据库,从建库至 2026 年 5 月,开展了一项聚焦的叙述性文献检索。检索词包括“SA”、“生物制剂治疗”、“生物标志物”、“血液嗜酸性粒细胞”、“FeNO”、“IgE”、“T2 高型”、“T2 低型”以及各单个生物制剂的名称。优先纳入以英文发表的指南、系统综述、关键性临床试验以及探讨疾病机制、生物标志物、生物制剂治疗和精准治疗的具有临床意义的原始研究。在筛选文章标题、摘要和全文的基础上选择相关文献,并通过手动查阅关键文章的参考文献列表进行补充。由于本文为叙述性综述,未进行正式的偏倚风险评估或定量整合分析。
金黄色葡萄球菌的免疫病理学机制
主要炎症内型:
哮喘(SA)大致可分为两种主要的炎症内型:T2高型和T2低型疾病。T2高型哮喘以T辅助2细胞(Th2)和2型固有淋巴细胞(ILC2s)介导的免疫反应为主,并伴有白细胞介素-4(IL-4)、IL-5和白细胞介素-13(IL-13)等细胞因子的产生增加22。这些介质可促进嗜酸性粒细胞气道炎症,刺激IgE合成,并增加黏液分泌,从而形成典型的T2炎症特征23。IL-4和IL-13信号通路还可诱导气道上皮细胞产生一氧化氮,导致呼出气一氧化氮分数(FeNO)升高。因此,FeNO应被视为T2型气道炎症的无创性标志物,而非嗜酸性粒细胞炎症的直接指标。由于这些生物学特征,T2高型哮喘已成为目前可用的生物制剂治疗的主要靶向内型23。
相比之下,T2低型哮喘是一个异质性的统称,包括中性粒细胞型和寡颗粒细胞型炎症模式,可能涉及T辅助细胞1(Th1)和T辅助细胞17(Th17)相关通路及其介质,如白细胞介素-17(IL-17)、γ-干扰素(IFN-γ)、白细胞介素-1β(IL-1β)和白细胞介素-8(IL-8)。由于缺乏经过验证、稳定且易于获取的生物标志物,目前的分型仍然困难;诱导痰表型分析需要专业技能;且炎症模式可能受到糖皮质激素暴露、呼吸道感染、吸烟、肥胖和环境因素的影响而发生改变。因此,当前的管理策略强调确诊、纠正可调控因素,以及基于表型的共病治疗。上游警报素阻断策略,包括胸腺基质淋巴细胞生成素(TSLP)和白细胞介素-33(IL-33)/ST2靶向干预,可能提供更广泛的机制覆盖;而IL-17/白细胞介素-23(IL-23)信号通路、C-X-C基序趋化因子受体2(CXCR2)介导的中性粒细胞募集,以及核苷结合寡聚化结构域样受体、富含亮氨酸重复序列和pyrin结构域蛋白3(NLRP3)/IL-1β炎性小体的激活仍是处于研究阶段的靶点,其临床证据有限或不一致24。重要的是,不应将T2高型和T2低型哮喘视为固定或互斥的类别,因为在临床实践中可能出现混合性炎症谱型,且诸如外周血嗜酸性粒细胞、呼出气一氧化氮(FeNO)和痰中粒细胞计数等生物标志物可能随疾病活动度、糖皮质激素暴露、呼吸道感染及环境诱因而随时间变化21,24。
关键免疫细胞:
SA 中的炎症反应涉及多种结构细胞和免疫细胞,这些细胞共同参与了疾病的启动和慢性持续过程。气道上皮细胞是最早响应环境触发因素的细胞之一,这些因素包括过敏原、病毒感染和空气污染物。一旦被激活,这些细胞会释放上皮来源的细胞因子,如 TSLP、IL-33 和白细胞介素-25(IL-25)25,这些细胞因子在气道炎症中发挥上游警报信号的作用。这些介质可激活下游效应细胞群,特别是 Th2 细胞和 ILC2s,后者继而产生 IL-4、IL-5 和 IL-13。IL-5 对嗜酸性粒细胞的成熟、募集和存活至关重要,而 IL-4 和 IL-13 则促进 B 细胞的 IgE 类别转换,并放大 2 型气道炎症26。此外,肥大细胞和嗜碱性粒细胞通过释放组胺、白三烯及其他炎症介质,促进疾病恶化。前列腺素 D2(PGD2)是一种主要由肥大细胞产生的脂质介质,可进一步促进支气管收缩和 2 型炎症细胞的活化,从而加剧气道炎症27。
关键细胞因子与信号通路:
SA 由复杂的细胞因子环境和相互关联的细胞内信号通路驱动。其中最重要的介质包括 IL-4、IL-5、IL-13 和 IFN-γ,它们均参与调控不同类型的炎症反应28。IL-4 促进 Th2 细胞的分化以及 B 细胞产生 IgE29。IL-5 主要负责嗜酸性粒细胞的扩增与持续存在30。IFN-γ 更常与非 Th2 型炎症相关,在其中促进巨噬细胞向 M1 型极化,增强促炎活性,推动偏向 Th1 的免疫反应,同时抑制 Th2 的分化31。IL-13 参与哮喘的多种特征性病理改变,包括黏液过度分泌、气道高反应性以及气道结构重塑32。
除了这些下游细胞因子外,上皮细胞产生的警报素(alarmins)如TSLP、IL-33和IL-25在炎症级联反应的早期阶段发挥作用,可通过激活2型固有淋巴细胞(ILC2s)和Th2细胞来启动或放大2型免疫应答33。这些介质的生物学效应通过多个主要信号通路传递,包括Janus激酶/信号转导子与转录激活子(JAK/STAT)、核因子-κB(NF-κB)以及丝裂原活化蛋白激酶(MAPK)通路。随着对这些机制的深入理解,已推动了针对关键炎症靶点的生物制剂的研发。SA的主要免疫病理学特征如图1所示。
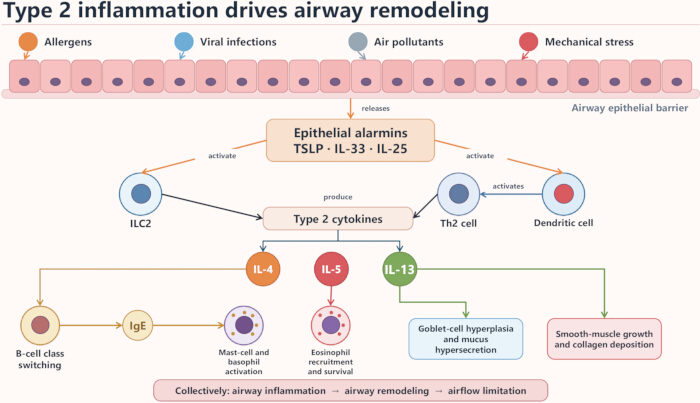
图 1.驱动重度哮喘中 2 型气道炎症与重塑的细胞及细胞因子网络。 环境触发因素(包括过敏原、病毒感染、空气污染物和机械应力)刺激气道上皮屏障,促进上皮警报素的释放,如胸腺基质淋巴生成素(TSLP)、白细胞介素-33(IL-33)和 IL-25。这些警报素激活 2 型固有淋巴细胞(ILC2s),并通过直接作用或树突状细胞活化,激活辅助性 T 细胞 2(Th2)细胞,促进 2 型细胞因子 IL-4、IL-5 和 IL-13 的产生。IL-4 促进 B 细胞类别转换及免疫球蛋白 E(IgE)介导的肥大细胞和嗜碱性粒细胞活化;IL-5 促进嗜酸性粒细胞的募集与存活;IL-13 则参与杯状细胞增生、黏液过度分泌、平滑肌增生和胶原沉积。这些过程共同促进气道炎症、气道重塑及气流受限。缩写:IgE,免疫球蛋白 E;IL,白细胞介素;ILC2,2 型固有淋巴细胞;Th2,辅助性 T 细胞 2;TSLP,胸腺基质淋巴生成素。 请点击此处查看该图的放大版本。
精准治疗的生物标志物
近年来,生物标志物指导的治疗已成为脓毒症精准管理的核心组成部分。已有若干生物标志物被纳入常规临床实践,同时越来越多的候选标志物正在研究中,以实现更精确的疾病分类和治疗决策。
已确立的生物标志物:
目前在SA中使用的生物标志物中,血液嗜酸性粒细胞计数、FeNO、IgE和痰嗜酸性粒细胞是最常应用的21。血液嗜酸性粒细胞计数在临床实践中被广泛使用,因其易于获取且易于解读21。外周血嗜酸性粒细胞水平升高通常反映持续存在的2型炎症,且与急性加重风险、疾病严重程度以及嗜酸性气道炎症活动相关34,35。越来越多的临床证据进一步表明,血液嗜酸性粒细胞升高的患者更可能从靶向IL-5或IL-5Rα的生物制剂治疗中获益36。在实际应用中,通常将血液嗜酸性粒细胞计数≥150个/µL和≥300个/µL作为治疗适用性或疗效富集的阈值,较高的计数通常与嗜酸性粒细胞靶向治疗更高的获益可能性相关4,36。然而,这些阈值在不同临床试验、指南、支付方标准以及不同生物制剂说明书之间并不通用,存在差异。此外,该标志物并非完全稳定,近期感染、全身性糖皮质激素暴露以及昼夜节律变化均可能影响其检测值37。
FeNO 是另一种常用的标志物,可无创地评估气道 T2 型炎症38。其升高主要与 IL-4 和 IL-13 介导的气道上皮细胞一氧化氮生成诱导作用相关39。在临床实践中,FeNO 升高反映的是活跃的 2 型气道炎症,特别是 IL-4/IL-13 通路的活性,而非直接测量嗜酸性粒细胞炎症;因此,FeNO 已被用于辅助预测急性加重风险以及对靶向 IL-4Rα 疗法的治疗反应40,41。通常以 FeNO 值约 ≥20–25 十亿分之一(ppb)作为支持存在 2 型炎症或富集治疗反应人群的参考标准;然而,不同指南、临床研究及不同生物制剂说明书所采用的临界值有所不同。此外,FeNO 水平还可受到吸烟状态、上气道共病(如鼻炎或鼻窦炎)以及吸入性糖皮质激素(ICS)依从性的影响42。因此,FeNO 在结合其他生物标志物共同解读时,通常比单独使用更具临床信息价值。
IgE 与气道过敏性炎症密切相关。通过与肥大细胞和嗜碱性粒细胞上的高亲和力受体结合,IgE 促进炎症介质的释放,从而参与下游气道炎症反应43。然而,仅总IgE水平不应被视为治疗选择的生物标志物。在考虑抗IgE治疗时,应结合临床相关的过敏病史,以及通过特异性过敏原IgE检测和/或皮肤点刺试验所证实的致敏证据,综合解读总IgE水平。对于奥马珠单抗(omalizumab),主要依据总IgE水平和体重,按照相应地区的药品说明书来确定治疗资格和给药剂量,而非用于预测治疗反应的程度13。相比之下,痰嗜酸性粒细胞计数可更直接地评估气道内的嗜酸性粒细胞炎症44。尽管在群体水平上,血液嗜酸性粒细胞计数与痰液嗜酸性粒细胞百分比常呈相关性,但在个体患者层面二者不可互换。可能出现不一致的情况,例如血液嗜酸性粒细胞升高而痰液嗜酸性粒细胞百分比较低,或相反,血液嗜酸性粒细胞计数较低而痰液嗜酸性粒细胞百分比升高。痰液中嗜酸性粒细胞比例升高与哮喘急性加重风险增加相关,也可辅助调整治疗方案,包括吸入性糖皮质激素(ICS)的剂量滴定以及生物制剂治疗反应的评估45。尽管具有上述优势,痰液诱导技术操作要求较高,并非所有患者均能提供合格样本,且样本处理需要经过培训的人员、标准化的操作流程以及专门的实验室设施。这些技术和后勤方面的要求限制了痰嗜酸性粒细胞检测在常规临床实践中的可行性。
新兴生物标志物:
分子生物学和组学技术的进步拓展了可用于哮喘(SA)的候选生物标志物范围,可能提高炎症表型分型的精确性。这些候选标志物可根据其临床成熟度分为不同阶段。其中,periostin 和部分 2 型炎症(T2)基因表达特征已积累了一定的转化医学证据,但尚未广泛应用于常规临床实践;而对上皮警报素、微小 RNA(miRNAs)以及基于多组学分析得出的标志物特征的直接检测仍主要处于研究阶段。Periostin 是目前研究最广泛的新兴标志物之一。该蛋白是一种由气道上皮细胞和成纤维细胞产生的细胞外基质蛋白,其表达受 IL-4 和 IL-13 信号通路的调控46。血清中 periostin 水平升高与嗜酸性粒细胞炎症及气道重塑相关,提示其在识别活动性 T2 型疾病患者以及预测针对 IL-13 通路治疗反应方面具有潜在应用价值47。然而,由于年龄相关变异以及骨代谢干扰等因素,其在更广泛临床实践中的应用仍受限,凸显出进一步标准化的必要性。
其他上游介质,特别是上皮细胞来源的细胞因子,如TSLP、IL-33和IL-25,也引起了广泛关注48。尽管这些警报素在生物学上是具有重要意义的治疗靶点,但由于缺乏标准化的检测方法和经过验证的解释性阈值,其作为临床生物标志物的直接检测仍处于研究阶段。由于这些分子可通过激活ILC2和Th2细胞参与气道炎症的早期阶段,因此它们不仅可能作为疾病活动的指标,还可能作为具有生物学意义的治疗靶点。
基因表达谱分析也为哮喘异质性提供了新的认识。对气道上皮样本和外周血的转录组学分析发现,与嗜酸性粒细胞炎症及2型免疫(T2)激活相关的基因表达升高,例如 POSTN、CLCA1 和 SERPINB249。这些基因表达特征在分子表型分型方面展现出转化应用潜力,但目前尚缺乏足够的标准化,无法常规用于临床。此外,整合的2型基因表达特征可能有助于更精确地区分炎症内型,并提高对治疗反应的预测准确性,尤其是针对IL-4/IL-13通路的治疗方案50,51,52。
miRNA 由于在免疫和炎症通路中的调控作用,已成为另一类极具前景的生物标志物,尽管目前其应用仍主要处于研究阶段。一些分子如 miR-21、miR-155、miR-146a 和 miR-223 已被证实参与SA中T2型炎症及免疫细胞功能的调控53。例如,miR-21 似乎促进Th2型免疫极化并增强与T2相关的炎症反应,而 miR-155 则更广泛地参与免疫激活和炎症信号的调控54,55。然而,不同样本类型之间的差异性以及缺乏标准化的分析方法,仍然阻碍了基于miRNA的生物标志物向临床应用的转化。
高通量测序技术的发展进一步加速了哮喘的多组学研究。基因组学研究已鉴定出与哮喘易感性相关的多个基因变异,包括 IL33、IL1RL1、TSLP 和 ORMDL3,这些基因均与气道炎症的调控相关56,57。与此同时,转录组学和蛋白质组学研究揭示了与炎症活性及疾病异质性相关的更广泛的分子网络52。最终,整合基因组、转录组、蛋白质组和代谢组信息,可能有助于开发出比单一生物标志物更具稳健性的复合生物标志物组合。此类整合模型有望更全面地表征严重哮喘(SA),并促进精准治疗中的患者更准确分层。然而目前,基于多组学的生物标志物组合仍属于研究工具,在常规临床应用之前,尚需进行前瞻性临床验证、分析方法的标准化以及对实际应用可行性的评估。
生物标志物的临床作用与解读:
从临床角度来看,严重哮喘(SA)中的生物标志物具有三种相辅相成但各不相同的用途。首先,表型生物标志物用于识别潜在的炎症模式。结合过敏致敏证据,通过检测外周血和痰液中的嗜酸性粒细胞、呼出气一氧化氮(FeNO)以及总IgE水平,有助于界定嗜酸性粒细胞型、2型炎症型及过敏型表型。其次,预测性生物标志物用于评估患者对特定生物制剂治疗产生应答的可能性。例如,较高的外周血嗜酸性粒细胞计数与抗IL-5或抗IL-5Rα治疗更显著的预期疗效相关,而升高的FeNO水平则可能提示对IL-4Rα阻断治疗有更好的应答。第三,监测性生物标志物需在随访过程中进行纵向评估。连续检测外周血嗜酸性粒细胞计数和FeNO可为炎症活动提供辅助信息,但其解读必须结合急性加重频率、症状控制情况、肺功能及口服糖皮质激素(OCS)使用情况综合判断。这些功能可能存在重叠,且生物标志物的数值可受到糖皮质激素暴露、呼吸道感染、吸烟、合并症及治疗依从性等因素的影响。因此,任何单一生物标志物均不应孤立解读21,36,40,41。表1总结了在严重哮喘中已确立和新兴生物标志物的样本类型或检测方法、临床相关性以及当前临床应用现状,从而为基于生物标志物的临床评估和治疗选择提供了实用框架。
| 生物标志物 | 样本类型 / 检测方法 | 在重度哮喘中的临床意义 | 当前临床应用状态 | |
| 血嗜酸性粒细胞 | 外周血细胞计数 | T2型高炎症/嗜酸性粒细胞炎症的标志物;可用于评估急性加重风险、患者分型以及选择靶向嗜酸性粒细胞的生物制剂。 | 常规临床实践。 | |
| FeNO | 使用FeNO分析仪检测呼出气中的一氧化氮 | IL-4/IL-13驱动的气道炎症的无创标志物;有助于识别T2型高炎症疾病,并可用于治疗监测和疗效评估。 | 常规临床实践,但取决于当地设备可及性。 | |
| 总IgE | 血清免疫测定 | 在结合致敏证据进行解读时,用于评估过敏表型;有助于判断生物制剂的适用性和选择。 | 在结合过敏致敏证据时为常规临床实践。 | |
| 痰嗜酸性粒细胞 | 诱导痰细胞学检查 | 可直接反映气道嗜酸性粒细胞炎症;有助于表型确认及长期炎症控制的评估。 | 临床应用有限;主要在专业中心提供。 | |
| 骨膜蛋白(Periostin) | 血清酶联免疫吸附测定(ELISA);目前在常规实践中应用有限 | IL-13相关T2炎症活性及气道重塑的候选标志物;目前主要用于研究领域。 | 尚在研究阶段;未常规使用。 | |
| 上皮源性警报素(TSLP/IL-33/IL-25) | 基于气道样本、血清或痰液的研究性检测方法 | 反映上皮细胞免疫活化上游事件,可能支持炎症内型分型;目前主要用于研究。 | 研究或探索性应用。 | |
| T2基因表达谱(如POSTN、CLCA1、SERPINB2) | 转录组学分析,包括RNA测序(RNA-seq)或微阵列 | 可能支持T2型高炎症疾病的分子分型,并在研究中为患者分型提供辅助信息。 | 研究或探索性应用。 | |
| 微小RNA(如miR-21、miR-155) | 定量聚合酶链式反应(qPCR)或测序;主要用于研究 | 与免疫调节相关,未来可能在诊断、表型分型及治疗反应预测中具有价值。 | 研究或探索性应用。 | |
表1:重症哮喘的已确立及新兴生物标志物:检测方法、临床相关性及当前临床应用状态。 本表总结了重症哮喘的已确立及新兴生物标志物的标本类型或检测方法、临床相关性以及当前临床应用状态。这些生物标志物可用于支持炎症表型分型、生物制剂的选择、急性加重风险评估及治疗监测。大多数新兴生物标志物仍处于研究阶段,应结合临床特征和治疗史进行解读。缩写:ELISA,酶联免疫吸附测定;FeNO,呼出气一氧化氮分数;IgE,免疫球蛋白E;IL,白细胞介素;miRNA,微小RNA;qPCR,定量聚合酶链反应;RNA-seq,RNA测序;T2,2型;TSLP,胸腺基质淋巴细胞生成素。
已批准的生物制剂疗法及其作用机制
与传统的抗炎治疗相比,生物制剂通过阻断驱动气道炎症的特定细胞因子或免疫通路,发挥更为选择性的作用。目前严重哮喘(SA)中的生物制剂治疗策略主要集中于IgE、IL-5/IL-5受体轴、IL-4/IL-13通路以及上皮来源的上游介质。通过靶向炎症级联反应中的不同组分,这些药物为具有不同炎症特征的患者提供了更具个体化的治疗选择。
抗IgE治疗:
奥马珠单抗是首个获批用于哮喘治疗的生物制剂,主要用于中重度过敏性哮喘患者58。IgE 在过敏性气道炎症中起核心作用,因其可结合肥大细胞和嗜碱性粒细胞表面表达的高亲和力 IgE 受体(FcεRI),从而促进介质释放,引发后续的支气管收缩和炎症反应。奥马珠单抗是一种重组人源化单克隆抗体,可结合循环中的游离 IgE,限制其与 FcεRI 的相互作用,从而减少效应细胞的活化,减轻过敏性炎症59。在临床应用中,奥马珠单抗最适合总 IgE 水平处于适用治疗和剂量范围内的患者,且需有过敏致敏证据;研究已证实该药可降低哮喘急性加重频率,同时改善肺功能和与健康相关的生活质量60。
抗IL-5/IL-5R通路治疗:
IL-5 通路是嗜酸性粒细胞炎症的核心调节因子,因为 IL-5 能促进嗜酸性粒细胞的成熟、动员、募集和持续存在。这使得 IL-5 轴成为嗜酸性粒细胞性重度哮喘(SA)的重要治疗靶点。美泊利单抗、雷珠单抗和贝那利珠单抗均可减轻嗜酸性粒细胞驱动的炎症,但其作用机制各不相同61,62,63。美泊利单抗和雷珠单抗直接结合 IL-5,阻止其激活 IL-5 受体,从而限制嗜酸性粒细胞的生成和活性61。相比之下,贝那利珠单抗结合 IL-5Rα,并通过抗体依赖性细胞介导的细胞毒性(ADCC)几乎完全清除嗜酸性粒细胞62,63。这些疗法可减少急性加重事件,并改善症状控制和肺功能;美泊利单抗和贝那利珠单抗在部分患者中还具有明确的口服糖皮质激素(OCS)节约作用证据64。雷珠单抗需每 4 周根据体重进行一次静脉输注,可能在某些患者中影响使用的便利性和依从性65。相比之下,德普利珠单抗的半衰期延长,可每 6 个月给药一次14。
抗IL-4Rα通路治疗:
IL-4 和 IL-13 是 2 型炎症的关键介质,参与 IgE 合成、气道炎症、黏液分泌以及结构重塑。Dupilumab 靶向作用于 IL-4 和 IL-13 信号通路共有的 IL-4Rα 亚基,因此抑制 IL-4Rα 可同时阻断这两种细胞因子的信号传导66。临床证据表明,dupilumab 可快速改善哮喘控制,减轻急性加重负担,并改善肺功能67。对于存在持续性 2 型炎症或与 2 型炎症相关共病(包括伴有鼻息肉的慢性鼻-鼻窦炎和特应性皮炎)的患者,dupilumab 可能尤为适用68,69。Dupilumab 每 2 周皮下注射一次,相对频繁的给药方案可能影响部分患者的便利性或依从性66。
抗上皮细胞因子:
上皮细胞来源的上游介质已成为哮喘治疗的重要靶点。其中,胸腺基质淋巴细胞生成素(TSLP)被认为是气道炎症的主要启动因子48,70。在过敏原、病毒感染或环境刺激物作用下,气道上皮细胞释放TSLP,继而激活树突状细胞、2型固有淋巴细胞(ILC2s)和Th2细胞,促进下游IL-4、IL-5和IL-13的产生。Tezepelumab通过阻断TSLP与其受体复合物的结合,抑制TSLP信号通路,从而减少哮喘急性加重事件71,72,73。该疗法在传统2型炎症生物标志物水平较低的患者中也可产生临床获益,但基线血嗜酸性粒细胞计数较高和/或FeNO水平较高的患者通常获益更为显著74,75,76。其他上游靶点,包括IL-33/ST2信号轴和IL-25,目前仍在研究中48,70。
关键的III期证据及临床应用:
多项关键的III期随机对照试验已确立了生物制剂治疗在SA中的临床作用。在INNOVATE试验中,与安慰剂相比,奥马珠单抗使临床显著加重事件的校正发生率降低了26%,严重加重事件发生率降低了50%77。在MENSA试验中,皮下注射美泊利单抗使临床显著加重事件发生率降低了53%,并使给药前第一秒用力呼气容积(FEV1)较安慰剂改善了98 mL78。在SIROCCO试验中,每8周给药一次的贝那利珠单抗使血液嗜酸性粒细胞计数≥300个/µL的患者年加重率降低了51%,给药前FEV1较安慰剂提高了159 mL79。在LIBERTY ASTHMA QUEST试验中,度普利尤单抗在第12周时使严重加重事件的年发生率降低了47.7%,FEV₁较安慰剂增加了0.14 L80。同样,在NAVIGATOR试验中,泰泽利尤单抗在第52周时使年加重率降低了56%,给药前FEV1较安慰剂提高了0.13 L81。在SWIFT-1和SWIFT-2试验中,每年两次给予德佩莫单抗使年加重率较安慰剂降低了54%14。其他关键性及延长研究——包括DREAM82、SIRIUS83、COMET84、III期瑞利珠单抗研究85、CALIMA86、ZONDA87、BORA88、VENTURE89和DESTINATION90——为基于生物标志物定义的入选标准、口服糖皮质激素节约效应以及长期安全性和有效性提供了补充证据。各研究的具体入组标准总结于表2中。
| 药物 | 治疗靶点/通路 | 重度哮喘中的典型候选患者特征 | 常见生物标志物指标 | 代表性III期及扩展研究 | 关键临床特征/备注 | 给药途径及常规频率 | |||
| Omalizumab | IgE | 具有临床相关致敏性且总IgE/体重在适用的本地剂量表范围内的过敏性重度哮喘 | 皮肤点刺试验阳性和/或特异性IgE阳性;治疗前总IgE水平和体重 | INNOVATE77:总IgE 30–700 IU/mL,且体重在剂量表范围内 | 超出本地IgE/体重限制时可能无推荐剂量 | 皮下注射,每2或4周一次 | |||
| Mepolizumab | IL-5 | 嗜酸性粒细胞型重度哮喘 | 筛选时外周血嗜酸性粒细胞≥150个/μL,或前一年内≥300个/μL | DREAM82; MENSA78; SIRIUS83; MUSCA17; COMET84 | 通过中和IL-5减轻嗜酸性粒细胞炎症,在嗜酸性粒细胞驱动的疾病中已有充分证据支持 | 皮下注射,每4周一次 | |||
| Reslizumab | IL-5 | 成人嗜酸性粒细胞性重度哮喘 | 关键性加重试验中,外周血嗜酸性粒细胞≥400个/μL | III期Reslizumab研究65˒85 | 需每4周静脉输注一次,可能影响部分患者的便利性和使用 | 静脉注射,每4周一次 | |||
| Benralizumab | IL-5Rα | 嗜酸性粒细胞型重度哮喘 | 主要SIROCCO/CALIMA人群中外周血嗜酸性粒细胞≥300个/μL | SIROCCO79; CALIMA86; ZONDA87; BORA88 | 通过抗体依赖性细胞介导的细胞毒性(ADCC)实现显著的嗜酸性粒细胞耗竭 | 皮下注射,前3剂每4周一次,之后每8周一次 | |||
| Depemokimab | IL-5 | 具有嗜酸性粒细胞/2型炎症表型的重度哮喘 | 筛选时外周血嗜酸性粒细胞≥150个/μL,或前一年内≥300个/μL | SWIFT-1和SWIFT-214 | 超长效抗IL-5生物制剂,每年给药两次 | 皮下注射,每6个月一次 | |||
| Dupilumab | IL-4Rα,从而抑制IL-4/IL-13信号通路 | 2型炎症高表达或依赖口服糖皮质激素的重度哮喘,尤其伴有鼻息肉或特应性皮炎者 | QUEST/VENTURE研究中无最低生物标志物阈值要求;嗜酸性粒细胞或FeNO水平越高,获益更显著 | LIBERTY ASTHMA QUEST80; VENTURE89 | 每2周一次皮下注射可能影响部分患者的便利性或依从性 | 皮下注射,每2周一次 | |||
| Tezepelumab | TSLP(上游上皮警报素) | 多种炎症表型的重度哮喘 | 无最低外周血嗜酸性粒细胞或FeNO阈值要求;水平越高,预测疗效越佳 | NAVIGATOR81; DESTINATION90 | 即使T2生物标志物水平较低的患者也可能获益,但总体疗效在T2高表达疾病中更显著 | 皮下注射,每4周一次 | |||
表2:用于重度哮喘的已批准生物制剂:治疗靶点、适用患者特征、相关生物标志物及关键III期临床试验。 本表总结了在美国和/或欧洲联盟已获批用于哮喘治疗的主要生物制剂,包括其治疗靶点、适用患者人群、相关生物标志物、代表性III期临床试验及扩展研究、关键临床特征,以及常规给药途径和给药频率。在选择治疗方案时,应将生物标志物检测结果与患者的临床表型相结合。
从比较临床的角度来看,奥马珠单抗具有最长的临床应用经验,最适合具有明确过敏表型且经证实存在过敏原致敏的患者。抗IL-5和抗IL-5Rα药物可直接靶向嗜酸性粒细胞,对于反复发生嗜酸性粒细胞增多急性加重或依赖口服糖皮质激素(OCS)的患者可能尤为适用。度普利尤单抗可同时抑制IL-4和IL-13信号通路,在呼出气一氧化氮分数(FeNO)升高、伴有鼻息肉的慢性鼻-鼻窦炎或特应性皮炎患者中可能更具优势。替泽佩鲁单抗作用位点更上游,可能覆盖更广泛的生物标志物定义的表型。由于过敏致敏、外周血嗜酸性粒细胞增多和FeNO升高常同时存在,不同生物制剂的适用人群可能存在较大重叠。鉴于目前直接比较的临床证据仍然有限,治疗选择应优先考虑占主导地位的可治疗特征、相关共病、给药方案、安全性、患者偏好、成本及可及性77,78,79,80,81。
生物标志物指导的治疗策略
生物标志物的应用已成为精准治疗严重哮喘(SA)的关键组成部分。通过识别潜在的炎症模式,生物标志物可辅助生物制剂的选择,改善治疗方案的匹配性,并有助于避免对无效疗法的不必要暴露。同时,不应孤立地解读生物标志物结果。当将其与疾病表型、既往急性加重频率、共病情况以及治疗相关因素(如ICS或OCS的使用)相结合时,其临床价值最大。这种整合性方法可能有助于识别可治疗的特征,从而实现更灵活、个体化的疾病管理。
基于生物标志物的患者分层:
在目前公认的炎症表型中,T2型高炎症表型的重度哮喘(T2-high SA)是研究最为充分的一种。本综述中,过敏性哮喘是指通过皮肤点刺试验和/或特异性IgE检测证实存在临床相关致敏的疾病。为便于描述,当出现以下一项或多项指标时,即认为存在T2型高炎症特征:外周血嗜酸性粒细胞计数≥150个/µL、呼出气一氧化氮(FeNO)≥20 ppb、诱导痰嗜酸性粒细胞比例≥2%,或临床表现为由过敏原驱动的哮喘。嗜酸性粒细胞性哮喘的定义依据各研究中设定的血嗜酸性粒细胞阈值,最常见为≥150、≥300或≥400个/µL;这些阈值不能与各地监管机构或支付方的准入标准互换使用4,21。T2型低炎症哮喘(T2-low asthma)患者缺乏上述典型的生物标志物特征,尽管其指标值可能波动,并可能因糖皮质激素暴露而受到抑制。由于目前尚未建立针对T2型低炎症哮喘的统一标准化生物标志物框架,其管理仍依赖于重复的生物标志物评估、可调节的临床因素以及可治疗的表型特征24。
生物制剂的选择:
对于血清总IgE水平处于适用治疗和剂量范围内的过敏性哮喘患者,且伴有过敏致敏证据时,奥马珠单抗仍是一种确立良好的治疗选择9。其长期有效性和安全性在儿童哮喘中也已得到支持91。在嗜酸性粒细胞疾病中,靶向IL-5通路的生物制剂——包括美泊利单抗78、瑞利珠单抗65、德佩莫金单抗14和贝那利珠单抗92——是合适的治疗选择。对于嗜酸性粒细胞显著升高且反复加重的患者,贝那利珠单抗可能尤为适用,因其可通过抗体依赖性细胞介导的细胞毒性(ADCC)诱导嗜酸性粒细胞耗竭92,93。当呼出气一氧化氮(FeNO)升高,或存在2型炎症相关共病(如伴有鼻息肉的慢性鼻窦炎或特应性皮炎)时,可优先选用度普利尤单抗94。替泽佩鲁单抗作用于更上游的通路,可能使部分传统2型生物标志物表达较低的患者获益74,75,76。
实用临床决策框架:
以下框架旨在作为实用指南,而非严格的治疗分级,应始终考虑当地的监管、报销及产品标签标准。在确认严重哮喘(SA)诊断并优化治疗依从性、吸入装置使用技巧及共病管理后:(1)对于具有明确致敏证据且总IgE水平与体重在适用剂量表范围内的临床相关过敏表型患者,可优先选择抗IgE治疗9,13;(2)当嗜酸性粒细胞炎症占主导时,尤其是外周血嗜酸性粒细胞计数≥150或≥300个/µL、频繁急性加重或依赖口服糖皮质激素(OCS)时,可优先选择抗IL-5或抗IL-5Rα治疗65,78,92;(3)当呼出气一氧化氮(FeNO)升高和/或外周血嗜酸性粒细胞升高,尤其合并慢性鼻窦炎伴鼻息肉或特应性皮炎时,可优先选择抗IL-4Rα治疗94;(4)当传统2型炎症生物标志物水平较低或不一致时,可考虑使用抗TSLP治疗,尽管基线嗜酸性粒细胞计数和/或FeNO较高者通常治疗反应更佳76。当存在多种适用的生物制剂时,应根据共病情况、既往治疗反应、给药途径与频率、安全性、患者偏好、成本及可及性等因素确定最终选择。
联合生物标志物与个体化治疗:
越来越多的证据表明,通过联合多种生物标志物而非依赖单一指标,可改善重度哮喘(SA)的治疗方案选择95。将外周血嗜酸性粒细胞计数、呼出气一氧化氮(FeNO)、过敏致敏状态、急性加重病史以及维持性口服糖皮质激素(OCS)暴露等因素纳入多维评估,可能更全面地反映炎症活动状态,从而优化治疗分层95。基线外周血嗜酸性粒细胞计数较高者,通常对抗IL-5或抗IL-5Rα治疗的反应更佳93,96;而FeNO水平升高则提示对IL-4Rα阻断治疗的应答更显著,且部分效应独立于外周血嗜酸性粒细胞水平97。对于频繁急性加重但传统2型炎症生物标志物水平较低或不典型的患者,tezepelumab可能带来临床获益;然而,这并不意味着所有T2炎症低型哮喘患者对抗该药物均具有一致的疗效76。其他新兴候选标志物,如periostin、基因变异以及基于多组学分析的特征指标,尚需进一步的前瞻性验证,才能考虑常规应用于临床98。
结论
尽管生物制剂改善了重症哮喘(SA)的治疗效果,但仍存在若干障碍,阻碍了精准治疗的完全实现。目前的生物标志物,尤其是血液嗜酸性粒细胞、呼出气一氧化氮(FeNO)和总IgE,仍不够理想,因其预测价值有限,且其水平会受到临床状况和治疗相关因素的影响98。T2低型哮喘仍是一个重大的未满足临床需求,因为有效的靶向治疗手段稀缺99,100,101。然而,在传统T2生物标志物未升高时,仍可考虑使用tezepelumab,尽管基线嗜酸性粒细胞和/或FeNO水平较高时获益通常更显著76,102。对于部分持续性控制不佳的成人哮喘患者,包括非嗜酸性粒细胞性哮喘,附加使用低剂量阿奇霉素也是一种公认的治疗选择,但需考虑校正QT间期延长、非结核分枝杆菌感染及抗菌药物耐药性等问题102。生物异质性以及缺乏可靠的分层标志物进一步增加了T2低型哮喘管理的复杂性99,100,101。生物制剂的成本高昂且治疗周期较长,导致其可及性依赖于医保报销和患者经济承受能力103,104。此外,对治疗反应、超反应、缓解及无反应的定义不一致,也使治疗的持续、转换或停用变得复杂。部分患者即使选择了看似合适的生物制剂,仍无法获得充分应答,而应答不完全的机制目前仍不明确105,106。
严重哮喘(SA)领域的未来进展可能取决于新靶点、治疗策略和技术的进步。诸如IL-33/ST2、IL-25以及下一代靶向胸腺基质淋巴细胞生成素(TSLP)的机制等上游通路目前正处于积极研究之中,其中astegolimab在减少哮喘急性加重方面已显示出初步疗效107。生物制剂的转换使用以及经过谨慎选择的治疗降级策略正受到越来越多关注,而联合生物制剂治疗仍处于研究阶段102,108。随着更多生物制剂进入临床应用,这些策略可能变得愈发重要。新兴技术也有望加速生物标志物的创新。多组学方法可更全面地刻画哮喘的异质性,有助于识别新的疾病亚型和治疗靶点109。下一步关键任务是将这些发现转化为具有稳健性、可解释性并经过临床验证的复合生物标志物组合。与此同时,机器学习模型有望通过提升哮喘内型分类和预后预测的准确性,从而辅助临床实践110。
总体而言,生物标志物已可用于支持重度哮喘(SA)的表型评估和生物靶向治疗选择,但目前尚无单一标志物能够充分反映临床实践中所遇到的重叠性、异质性和动态性炎症模式。因此,未来的精准治疗应优先采用经过验证的多维框架,将血液和气道生物标志物与临床表型、合并症、急性加重史、治疗负担及长期治疗反应相结合。由于生物标志物水平可能随疾病活动度和糖皮质激素暴露而波动,重复评估将至关重要。未来还需开展更多前瞻性研究,以进一步明确T2高炎症型与T2低炎症型疾病的定义,验证复合预测模型,并确定新兴生物标志物和数字化工具如何指导生物靶向药物的选择、转换及治疗降级策略。
研究人群与表型标准:INNOVATE 研究纳入患有重度过敏性哮喘、对至少一种常年性气传变应原致敏、且治疗前总 IgE 水平为 30–700 IU/mL 的患者。DREAM 研究要求患者患有重度嗜酸性粒细胞性哮喘,并具备嗜酸性粒细胞炎症的证据,需满足以下至少一项标准:痰液嗜酸性粒细胞比例 ≥3%,FeNO ≥50 ppb,外周血嗜酸性粒细胞计数 ≥300 个/µL,或在糖皮质激素减量后迅速恶化。MENSA 和 MUSCA 研究要求患者在筛选时外周血嗜酸性粒细胞计数 ≥150 个/µL,或在过去一年中曾 ≥300 个/µL;SIRIUS 研究在需要维持口服糖皮质激素(OCS)治疗的患者中应用相同的嗜酸性粒细胞标准。COMET 研究纳入了已连续接受美泊利单抗治疗 ≥3 年的患者。关键性的瑞利珠单抗研究要求外周血嗜酸性粒细胞计数 ≥400 个/µL。在 SIROCCO 和 CALIMA 研究中,主要嗜酸性粒细胞人群的外周血嗜酸性粒细胞计数 ≥300 个/µL;ZONDA 研究纳入依赖 OCS 且外周血嗜酸性粒细胞计数 ≥150 个/µL 的患者,BORA 研究纳入已完成 SIROCCO 或 CALIMA 研究的患者。QUEST 和 VENTURE 研究未设定最低 2 型(T2)生物标志物要求,但排除了外周血嗜酸性粒细胞计数 >1,500 个/µL 的患者;VENTURE 研究特别纳入了依赖 OCS 的哮喘患者。NAVIGATOR 研究要求患者患有重度未控制哮喘,且在过去一年中发生 ≥2 次急性加重,但未设定最低生物标志物阈值,而 DESTINATION 研究纳入的是从 NAVIGATOR 或 SOURCE 研究继续入组的患者。SWIFT-1 和 SWIFT-2 研究纳入年龄 ≥12 岁、在筛选时外周血嗜酸性粒细胞计数 ≥150 个/µL,或在过去一年中 ≥300 个/µL,且尽管接受中高剂量吸入性糖皮质激素治疗仍有过急性加重病史的患者。上述标准均为各研究特有,不应被解读为通用的表型定义或当前的监管准入标准。缩写:ADCC,抗体依赖性细胞介导的细胞毒性;FeNO,呼出气一氧化氮分数;IgE,免疫球蛋白 E;IL,白细胞介素;IL-4Rα,白细胞介素-4 受体 α;IL-5Rα,白细胞介素-5 受体 α;IU/mL,国际单位/毫升;IV,静脉注射;OCS,口服糖皮质激素;ppb,十亿分之一;SC,皮下注射;T2,2 型;TSLP,胸腺基质淋巴细胞生成素。
披露
作者声明不存在利益冲突。在本稿件的撰写和修改过程中,仅使用了ChatGPT(OpenAI)协助进行英文语言润色,包括改进语法、清晰度和表达风格。所有经人工智能辅助生成的文本均已被作者严格审阅并修改,作者对稿件内容的准确性、完整性和最终版本负全部责任。
致谢
作者感谢所有同事和合作者在准备本稿件期间提供的宝贵建议和意见。本研究、作者工作或本文发表未获得任何资助。
参考文献
- Papi A, Brightling C, Pedersen SE, Reddel HK. Asthma. Lancet. 2018;391(10122):783-800.
- Wang Z, et al. Global, regional, and national burden of asthma and its attributable risk factors from 1990 to 2019: a systematic analysis for the Global Burden of Disease Study 2019. Respir Res. 2023;24(1):169.
- Global Asthma Network Phase I Study Group. Worldwide trends in the burden of asthma symptoms in school-aged children: Global Asthma Network Phase I cross-sectional study. Lancet. 2021;398(10311):1569-1580.
- Global Initiative for Asthma. Global strategy for asthma management and prevention. 2026. Available at: https://ginasthma.org/2026-gina-strategy-report/. Accessed August 16, 2026.
- Reibman J, Tan L, Ambrose C, Tkacz J. Clinical and economic burden of severe asthma among US patients treated with biologic therapies. Ann Allergy Asthma Immunol. 2021;127(3):318-325.e2.
- Larenas-Linnemann D, et al. International Severe Asthma Registry (ISAR): 2017–2024 status and progress update. Tuberc Respir Dis (Seoul). 2025;88(2):193-215.
- Wenzel SE. Asthma phenotypes: the evolution from clinical to molecular approaches. Nat Med. 2012;18(5):716-725.
- Schleich F, et al. Biomarker profile and disease burden associated with intermittent and long-term oral corticosteroid use in patients with severe asthma prior to biologic initiation in real-life (STAR). World Allergy Organ J. 2025;18(7):101066.
- Cheng SL. Immunologic pathophysiology and airway remodeling mechanism in severe asthma: focused on IgE-mediated pathways. Diagnostics (Basel). 2021;11(1):83.
- García G, et al. Severe asthma: Adding new evidence - latin american thoracic society. ERJ Open Res. 2021;7(1):00318-2020.
- Brusselle GG, Koppelman GH. Biologic therapies for severe asthma. N Engl J Med. 2022;386(2):157-171.
- Pelaia C, et al. Biologics in severe asthma. Minerva Med. 2022;113(1):51-62.
- Genentech, Inc. Xolair (omalizumab) prescribing information. 2024. Available at: https://www.gene.com/download/pdf/xolair_prescribing.pdf. Accessed August 17, 2026.
- Jackson DJ, et al. Twice-yearly depemokimab in severe asthma with an eosinophilic phenotype. N Engl J Med. 2024;391(24):2337-2349.
- Cabrejos S, et al. FENOMA study: Achieving full control in patients with severe allergic asthma. J Asthma Allergy. 2020;13:159-166.
- Pelaia C, et al. Omalizumab lowers asthma exacerbations, oral corticosteroid intake and blood eosinophils: Results of a 5-year single-centre observational study. Pulm Pharmacol Ther. 2019;54:25-30.
- Chupp GL, et al. Efficacy of mepolizumab add-on therapy on health-related quality of life and markers of asthma control in severe eosinophilic asthma (MUSCA): A randomised, double-blind, placebo-controlled, parallel-group, multicentre, phase 3b trial. Lancet Respir Med. 2017;5(5):390-400.
- Varricchi G, et al. Reslizumab and eosinophilic asthma: One step closer to precision medicine? Front Immunol. 2017;8:242.
- Pelaia C, et al. Benralizumab in the treatment of severe asthma: Design, development and potential place in therapy. Drug Des Devel Ther. 2018;12:619-628.
- Corren J, et al. Tezepelumab in adults with uncontrolled asthma. N Engl J Med. 2017;377(10):936-946.
- Lee Y, Quoc QL, Park HS. Biomarkers for severe asthma: Lessons from longitudinal cohort studies. Allergy Asthma Immunol Res. 2021;13(3):375-389.
- Lambrecht BN, Hammad H, Fahy JV. The cytokines of asthma. Immunity. 2019;50(4):975-991.
- Fahy JV. Type 2 inflammation in asthma—present in most, absent in many. Nat Rev Immunol. 2015;15(1):57-65.
- Quoc QL, Choi Y, Hur GY, Park HS. New targets for type 2-low asthma. Korean J Intern Med. 2024;39(2):215-227.
- Hammad H, Lambrecht BN. The basic immunology of asthma. Cell. 2021;184(6):1469-1485.
- Holgate ST. Innate and adaptive immune responses in asthma. Nat Med. 2012;18(5):673-683.
- Fajt ML, et al. Prostaglandin D2 pathway upregulation: relation to asthma severity, control, and TH2 inflammation. J Allergy Clin Immunol. 2013;131(6):1504-1512.e12.
- Lambrecht BN, Hammad H. The immunology of asthma. Nat Immunol. 2015;16(1):45-56.
- Paul WE, Zhu J. How are T helper 2-type immune responses initiated and amplified? Nat Rev Immunol. 2010;10(4):225-235.
- Rothenberg ME, Hogan SP. The eosinophil. Annu Rev Immunol. 2006;24:147-174.
- Raundhal M, et al. High IFN-γ and low SLPI mark severe asthma in mice and humans. J Clin Invest. 2015;125(8):3037-3050.
- Wills-Karp M, et al. Interleukin-13: central mediator of allergic asthma. Science. 1998;282(5397):2258-2261.
- Roan F, Obata-Ninomiya K, Ziegler SF. Epithelial cell-derived cytokines: more than just signaling the alarm. J Clin Invest. 2019;129(4):1441-1451.
- Koefoed HJL, Gehring U, Vonk JM, Koppelman GH. Blood eosinophils associate with reduced lung function growth in adolescent asthmatics. Clin Exp Allergy. 2021;51(4):556-563.
- Price DB, et al. Blood eosinophil count and prospective annual asthma disease burden: a UK cohort study. Lancet Respir Med. 2015;3(11):849-858.
- Dhariwal J, et al. Real-world effectiveness of anti-IL-5/IL-5R therapy in severe atopic eosinophilic asthma with fungal sensitization. J Allergy Clin Immunol Pract. 2021;9(6):2315-2320.e2311.
- Spector SL, Tan RA. Is a single blood eosinophil count a reliable marker for eosinophilic asthma? J Asthma. 2012;49(8):807-810.
- Ulrik CS, Lange P, Hilberg O. Fractional exhaled nitric oxide as a determinant for the clinical course of asthma: A systematic review. Eur Clin Respir J. 2021;8(1):1891725.
- Maniscalco M, et al. Fractional exhaled nitric oxide in monitoring biological treatment for severe asthma in adults: Clinical implications and future perspectives. Respir Med. 2026;252:108647.
- Dweik RA, et al. An official ATS clinical practice guideline: interpretation of exhaled nitric oxide levels (FeNO) for clinical applications. Am J Respir Crit Care Med. 2011;184(5):602-615.
- Pianigiani T, et al. Exploring the interaction between fractional exhaled nitric oxide and biologic treatment in severe asthma: a systematic review. Antioxidants (Basel). 2023;12(2):400.
- Taylor DR, Pijnenburg MW, Smith AD, De Jongste JC. Exhaled nitric oxide measurements: clinical application and interpretation. Thorax. 2006;61(9):817-827.
- Galli SJ, Tsai M. IgE and mast cells in allergic disease. Nat Med. 2012;18(5):693-704.
- Hastie AT, et al. Biomarker surrogates do not accurately predict sputum eosinophil and neutrophil percentages in asthmatic subjects. J Allergy Clin Immunol. 2013;132(1):72-80.e12.
- Green RH, et al. Asthma exacerbations and sputum eosinophil counts: a randomised controlled trial. Lancet. 2002;360(9347):1715-1721.
- Licari A, et al. Measuring inflammation in paediatric severe asthma: Biomarkers in clinical practice. Breathe (Sheff). 2020;16(1):190301.
- Jia G, et al. Periostin is a systemic biomarker of eosinophilic airway inflammation in asthmatic patients. J Allergy Clin Immunol. 2012;130(3):647-654.e10.
- Pelaia C, et al. Monoclonal antibodies targeting alarmins: A new perspective for biological therapies of severe asthma. Biomedicines. 2021;9(9):1108.
- Woodruff PG, et al. T-helper type 2-driven inflammation defines major subphenotypes of asthma. Am J Respir Crit Care Med. 2009;180(5):388-395.
- Diver S, et al. FeNO differentiates epithelial gene expression clusters: Exploratory analysis from the MESOS randomized controlled trial. J Allergy Clin Immunol. 2022;150(4):830-840.
- Badi YE, et al. IL1RAP expression and the enrichment of IL-33 activation signatures in severe neutrophilic asthma. Allergy. 2023;78(1):156-167.
- Agache I, et al. Multidimensional endotyping using nasal proteomics predicts molecular phenotypes in the asthmatic airways. J Allergy Clin Immunol. 2023;151(1):128-137.
- Shaik NA, et al. Identification of miRNA-mRNA-TFs regulatory network and crucial pathways involved in asthma through advanced systems biology approaches. PLoS One. 2022;17(10):e0271262.
- Mao Z, et al. miR-21-5p modulates airway inflammation and epithelial-mesenchymal transition processes in a mouse model of combined allergic rhinitis and asthma syndrome. Int Arch Allergy Immunol. 2024;185(8):775-785.
- Pua HH, Ansel KM. MicroRNA regulation of allergic inflammation and asthma. Curr Opin Immunol. 2015;36:101-108.
- Moffatt MF, et al. A large-scale, consortium-based genomewide association study of asthma. N Engl J Med. 2010;363(13):1211-1221.
- Koh KD, et al. Genomic characterization and therapeutic utilization of IL-13-responsive sequences in asthma. Cell Genom. 2023;3(1):100229.
- Pelaia C, et al. Omalizumab, the first available antibody for biological treatment of severe asthma: more than a decade of real-life effectiveness. Ther Adv Respir Dis. 2018;12:1753466618810192.
- Chung KF, et al. Characteristics, phenotypes, mechanisms and management of severe asthma. Chin Med J (Engl). 2022;135(10):1141-1155.
- Huang WC, et al. The long-term effectiveness of omalizumab in adult patients with severe allergic asthma: Continuous treatment versus boosting treatment. J Clin Med. 2021;10(4):707.
- Principe S, et al. Treating severe asthma: targeting the IL-5 pathway. Clin Exp Allergy. 2021;51(8):992-1005.
- Menzella F, Lusuardi M, Galeone C, Zucchi L. Anti-IL-5 therapies for severe eosinophilic asthma: literature review and practical insights. J Asthma Allergy. 2020;13:301-313.
- Numata T, et al. Long-term efficacy and clinical remission after benralizumab treatment in patients with severe eosinophilic asthma: A retrospective study. J Asthma Allergy. 2022;15:1731-1741.
- Maglio A, et al. Real-life effectiveness of mepolizumab on forced expiratory flow between 25% and 75% of forced vital capacity in patients with severe eosinophilic asthma. Biomedicines. 2021;9(11):1550.
- Castro M, et al. Reslizumab for inadequately controlled asthma with elevated blood eosinophil counts: Results from two multicentre, parallel, double-blind, randomised, placebo-controlled, phase 3 trials. Lancet Respir Med. 2015;3(5):355-366.
- Ricciardolo FLM, Bertolini F, Carriero V. The role of dupilumab in severe asthma. Biomedicines. 2021;9(9):1096.
- Renner A, et al. Dupilumab rapidly improves asthma control in predominantly anti-IL-5/IL-5R pretreated Austrian real-life severe asthmatics. Immun Inflamm Dis. 2021;9(3):624-627.
- Canonica GW, et al. Defining type 2 asthma and patients eligible for dupilumab in Italy: A biomarker-based analysis. Clin Mol Allergy. 2021;19(1):5.
- Campisi R, et al. Real-world experience with dupilumab in severe asthma: One-year data from an Italian named patient program. J Asthma Allergy. 2021;14:575-583.
- Akenroye A, Boyce JA, Kita H. Targeting alarmins in asthma: from bench to clinic. J Allergy Clin Immunol. 2025;155(4):1133-1148.
- Dorey-Stein ZL, Shenoy KV. Tezepelumab as an emerging therapeutic option for the treatment of severe asthma: Evidence to date. Drug Des Devel Ther. 2021;15:331-338.
- Matera MG, Ora J, Rogliani P, Cazzola M. An overview of the preclinical discovery and development of tezepelumab for the treatment of asthma. Expert Opin Drug Discov. 2023;18(9):951-963.
- Roy P, et al. The impact of tezepelumab in uncontrolled severe asthma: A systematic review of randomized controlled trials. Cureus. 2022;14(12):e32156.
- Menzella F, et al. Tezepelumab: Patient selection and place in therapy in severe asthma. J Int Med Res. 2024;52(4):3000605241246740.
- Venegas Garrido C, Nair P, Dávila I, Pérez De Llano L. Role of thymic stromal lymphopoietin in the pathophysiology of asthma and clinical and biological effects of blockade with tezepelumab. J Investig Allergol Clin Immunol. 2024;34(5):293-302.
- Corren J, et al. Efficacy of tezepelumab in severe, uncontrolled asthma: pooled analysis of the PATHWAY and NAVIGATOR clinical trials. Am J Respir Crit Care Med. 2023;208(1):13-24.
- Humbert M, et al. Benefits of omalizumab as add-on therapy in patients with severe persistent asthma who are inadequately controlled despite best available therapy (GINA 2002 step 4 treatment): INNOVATE. Allergy. 2005;60(3):309-316.
- Ortega HG, et al. Mepolizumab treatment in patients with severe eosinophilic asthma. N Engl J Med. 2014;371(13):1198-1207.
- Bleecker ER, et al. Efficacy and safety of benralizumab for patients with severe asthma uncontrolled with high-dosage inhaled corticosteroids and long-acting β2-agonists (SIROCCO): A randomised, multicentre, placebo-controlled phase 3 trial. Lancet. 2016;388(10056):2115-2127.
- Castro M, et al. Dupilumab efficacy and safety in moderate-to-severe uncontrolled asthma. N Engl J Med. 2018;378(26):2486-2496.
- Menzies-Gow A, et al. Tezepelumab in adults and adolescents with severe, uncontrolled asthma. N Engl J Med. 2021;384(19):1800-1809.
- Pavord ID, et al. Mepolizumab for severe eosinophilic asthma (DREAM): A multicentre, double-blind, placebo-controlled trial. Lancet. 2012;380(9842):651-659.
- Bel EH, et al. Oral glucocorticoid-sparing effect of mepolizumab in eosinophilic asthma. N Engl J Med. 2014;371(13):1189-1197.
- Moore WC, et al. Stopping versus continuing long-term mepolizumab treatment in severe eosinophilic asthma (COMET study). Eur Respir J. 2022;59(1):2100396.
- Corren J, et al. Phase 3 study of reslizumab in patients with poorly controlled asthma: Effects across a broad range of eosinophil counts. Chest. 2016;150(4):799-810.
- FitzGerald JM, et al. Benralizumab, an anti-interleukin-5 receptor α monoclonal antibody, as add-on treatment for patients with severe, uncontrolled, eosinophilic asthma (CALIMA). Lancet. 2016;388(10056):2128-2141.
- Nair P, et al. Oral glucocorticoid-sparing effect of benralizumab in severe asthma. N Engl J Med. 2017;376(25):2448-2458.
- Busse WW, et al. Long-term safety and efficacy of benralizumab in patients with severe, uncontrolled asthma: 1-year results from the BORA phase 3 extension trial. Lancet Respir Med. 2019;7(1):46-59.
- Rabe KF, et al. Efficacy and safety of dupilumab in glucocorticoid-dependent severe asthma. N Engl J Med. 2018;378(26):2475-2485.
- Menzies-Gow A, et al. Long-term safety and efficacy of tezepelumab in people with severe, uncontrolled asthma (DESTINATION): A randomised, placebo-controlled extension study. Lancet Respir Med. 2023;11(5):425-438.
- Nakamura N, et al. Real-life long-term safety and effectiveness of omalizumab in japanese pediatric patients with severe allergic asthma: A post-marketing surveillance. Allergol Int. 2021;70(3):319-326.
- Jackson DJ, et al. Safety of eosinophil-depleting therapy for severe, eosinophilic asthma: Focus on benralizumab. Drug Saf. 2020;43(5):409-425.
- Fitzgerald JM, et al. Predictors of enhanced response with benralizumab for patients with severe asthma: Pooled analysis of the SIROCCO and CALIMA studies. Lancet Respir Med. 2018;6(1):51-64.
- Cottin S, Doyen V, Pilette C. Upper airway disease diagnosis as a predictive biomarker of therapeutic response to biologics in severe asthma. Front Med (Lausanne). 2023;10:1129300.
- Fouka E, et al. Recent insights in the role of biomarkers in severe asthma management. Front Med (Lausanne). 2022;9:992565.
- Yancey SW, Bradford ES, Keene ON. Disease burden and efficacy of mepolizumab in patients with severe asthma and blood eosinophil counts of ≥150–300 cells/µL. Respir Med. 2019;151:139-141.
- Pavord ID, et al. Baseline FeNO independently predicts the dupilumab response in patients with moderate-to-severe asthma. J Allergy Clin Immunol Pract. 2023;11(4):1213-1220.e2.
- Ray A, et al. Are we meeting the promise of endotypes and precision medicine in asthma? Physiol Rev. 2020;100(3):983-1017.
- Kyriakopoulos C, Gogali A, Bartziokas K, Kostikas K. Identification and treatment of T2-low asthma in the era of biologics. ERJ Open Res. 2021;7(2):00309-2020.
- Niessen NM, Fricker M, McDonald VM, Gibson PG. T2-low: What do we know? Past, present, and future of biologic therapies in noneosinophilic asthma. Ann Allergy Asthma Immunol. 2022;129(2):150-159.
- Chung KF. Type-2-low severe asthma endotypes for new treatments: the new asthma frontier. Curr Opin Allergy Clin Immunol. 2023;23(3):199-204.
- Global Initiative for Asthma. Difficult-to-treat and severe asthma in adolescent and adult patients: diagnosis and management. Version 7.0. 2026. Available at: https://ginasthma.org/2026-gina-severe-asthma-guide/. Accessed August 17, 2026.
- McQueen RB, et al. Cost-effectiveness of biological asthma treatments: a systematic review and recommendations for future economic evaluations. Pharmacoeconomics. 2018;36(8):957-971.
- Anderson WC III, Szefler SJ. Cost-effectiveness and comparative effectiveness of biologic therapy for asthma: to biologic or not to biologic? Ann Allergy Asthma Immunol. 2019;122(4):367-372.
- Khaleva E, et al. Definitions of non-response and response to biological therapy for severe asthma: a systematic review. ERJ Open Res. 2023;9(3):00444-2022.
- Papaioannou AI, et al. Defining response to therapy with biologics in severe asthma: from global evaluation to super-response and remission. Expert Rev Respir Med. 2023;17(6):481-493.
- Kelsen SG, et al. Astegolimab (anti-ST2) efficacy and safety in adults with severe asthma: a randomized clinical trial. J Allergy Clin Immunol. 2021;148(3):790-798.
- Keow S, et al. Patient outcomes and safety of combination biologic therapy with dupilumab: a systematic review. Ann Allergy Asthma Immunol. 2025;135(1):23-30.
- Kermani NZ, et al. Endotypes of severe neutrophilic and eosinophilic asthma from multi-omics integration of U-BIOPRED sputum samples. Clin Transl Med. 2024;14(7):e1771.
- Ray A, Das J, Wenzel SE. Determining asthma endotypes and outcomes: complementing existing clinical practice with modern machine learning. Cell Rep Med. 2022;3(12):100857.