CAR T细胞在实体瘤中的应用受限于复杂的微环境 离体 制造与安全方面的考虑。本方案描述了一种方法 原位 瞬时CAR-T细胞的制备 通过 LNP介导的CAR编码mRNA递送,提供了一种可重复且适用于其他基于mRNA的免疫细胞工程应用的平台。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
原位 生成 Claudin18.2 特异性 CAR-T 细胞通过脂质纳米颗粒介导的 mRNA 递送
* These authors contributed equally
本文内容
摘要
摘要
嵌合抗原受体(CAR)T细胞疗法在血液系统恶性肿瘤中已取得显著的临床成功;然而,其更广泛的应用仍受限于高昂的制备成本以及对实体瘤疗效不足。为克服这些挑战,一种 原位 基于脂质纳米颗粒(LNP)介导的靶向Claudin18.2的CAR mRNA递送策略,开发了在肿瘤组织内直接瞬时生成CAR-T细胞的方法。经LNP转染后,活化的T细胞可高效表达表面CAR。这些瞬时性CAR-T细胞对Claudin18.2阳性的胃癌细胞系(包括NUGC4和NCI-N87)表现出强烈的细胞毒活性,并在荷瘤小鼠模型中产生显著的抗肿瘤效果。本方案详细描述了以下操作步骤: 体外 CAR mRNA转录、LNP制剂、T细胞激活与转染、CAR表达分析 体外 和 体内 CAR-T细胞介导的细胞毒性的功能评估。综上所述,该策略提供了一种经济高效且多功能的平台,用于生成瞬时性CAR-T细胞,并为实体瘤的治疗提供了有前景的方法。
引言
全球范围内,癌症的发病率和死亡率正在迅速上升,对人类生存和社会发展构成严重威胁。胃癌是全球癌症相关死亡的第三大原因,具有很高的发病率1。由于早期诊断率较低,大量患者在确诊时已处于晚期阶段。传统治疗方法包括手术、放疗和化疗。对于中晚期或复杂性胃癌患者,手术切除可能不完全;此外,手术创伤大、术后恢复时间长,可能影响患者的生活质量并导致并发症。放疗和化疗在治疗过程中会对正常组织造成严重损害,产生多种副作用。相比之下,靶向治疗和细胞治疗具有更高的精准性和疗效,已成为现代治疗的重要手段,并代表了未来治疗策略选择的主要趋势。
嵌合抗原受体T细胞(CAR-T)疗法的出现推动细胞治疗实现了里程碑式的突破,在治疗血液系统恶性肿瘤方面展现出强大的疗效2,3CAR-T 疗法利用患者自身的 T 细胞,这些 T 细胞经过基因修饰 体外 通过插入特定的嵌合抗原受体(CAR)实现。该受体可识别肿瘤细胞表面的特异性抗原,并激活T细胞以攻击癌细胞。近年来,针对胃癌的CAR-T疗法研究也取得了进展。治疗靶点的选择尤为关键,因其直接决定了CAR-T细胞的靶向精确性和治疗效果。继HER2之后,Claudin18.2已成为胃癌中另一个重要的治疗靶点,在患者中的表达率为40%至87%。Claudin18.2通常埋藏于胃黏膜内部,当恶性肿瘤破坏介导细胞间分子交换的紧密连接结构时,Claudin18.2便暴露于肿瘤细胞表面,从而成为这类肿瘤的特异性治疗靶点。4.
通常,CAR-T细胞的标准制备流程包括细胞采集、T细胞筛选与富集、T细胞激活、CAR基因构建、基因转导、扩增、质量控制、储存与运输,最后进行患者回输。整个CAR-T细胞制备过程高度复杂,需要无菌环境,并对实验环境和设备提出严格要求,导致CAR-T治疗成本高昂,限制了其在临床的广泛应用。为解决这些复杂性问题 离体 CAR-T细胞制备,概念 体内 CAR-T细胞的体内制备已被提出。该方法旨在患者体内直接对CAR-T细胞进行编程,从而无需体外操作 离体 细胞的收集、修饰与扩增。该策略旨在降低成本,提高安全性与可及性,并推动疾病治疗的更广泛应用5.
关键在于 体内 CAR-T制备的关键在于选择最佳的递送载体。目前,载体可分为病毒性和非病毒性两大类。在病毒性载体中,慢病毒(LV)和腺相关病毒(AAV)载体为主要应用类型。然而,病毒载体伴随的重大风险及其有限的有效载荷容量,为临床研究带来了主要障碍。6. 病毒载体的一个主要缺点是 体内 递送系统的一个潜在问题是其可能发生的基因组整合,这可能导致遗传毒性及插入突变。既往已有报道显示,少数患者在接受治疗后出现致命性免疫反应或癌症。此外,病毒固有的毒性和免疫原性严重限制了其在重复给药中的应用 体内 给药。另一个挑战是病毒载体的有效载荷容量有限,这阻碍了多个基因的同步递送。
非病毒mRNA递送系统能有效克服上述缺陷。这类系统不会整合到宿主基因组中,从而规避了许多潜在风险。其瞬时作用特性可防止脱靶毒性,实现短期、可控的CAR-T细胞表达,进而降低副作用和安全风险。在非病毒系统中,脂质纳米颗粒(LNPs)提供了一种更安全的策略。LNPs克服了病毒载体的尺寸限制,同时解决了插入突变和免疫原性等问题。因此,LNPs成为CAR-T细胞治疗中极具前景的候选方案,有望降低毒性、提高安全性并减少成本7。
目前针对实体瘤的免疫治疗研究主要集中在不同癌症模型(包括黑色素瘤)中的脂质纳米颗粒(LNP)制剂优化、靶向修饰以及mRNA序列工程。8乳腺癌和结直肠癌9. 研究工作还致力于构建嵌合抗原受体巨噬细胞(CAR-M)10 和树突状细胞(CAR-DC)11 通过 LNP递送系统可突破实体瘤复杂的物理屏障及免疫抑制性肿瘤微环境(TME)。本文所述平台提供了一种多功能、非病毒性的mRNA递送系统,具有高度模块化特性。通过简单更换mRNA序列,该平台可快速适配靶向其他抗原的实体瘤模型,或拓展至自身免疫、心血管及纤维化疾病等非肿瘤治疗领域。
然而,利用这些平台治疗胃癌仍存在技术空白:先前的研究主要集中在髓系细胞的编辑,而针对高效编辑的策略仍显不足 体内 T细胞重编程目前仍处于探索阶段。为填补这一空白,本实验方案详细描述了一种生成瞬时表达CAR的T细胞的方法 通过 LNP介导的mRNA递送。该方法旨在克服传统CAR-T细胞疗法固有的局限性,包括高昂的成本、复杂的生产工艺以及系统性毒性,从而为患者提供一种更有效且易于获取的治疗替代方案。研究证实,利用编码靶向Claudin18.2特异性CAR的优化mRNA序列转染T细胞,可实现CAR在细胞表面的高效表达,引导经修饰的T细胞对特定肿瘤细胞发挥靶向杀伤作用。本实验方案分为五个独立部分: 体外 CAR mRNA转录、LNP制备与表征、T细胞激活与转染、CAR表达检测以及CAR-T细胞溶细胞效应评估 体外 和 在体.
与现有的mRNA-LNP递送技术相比,本方案的核心方法学创新在于对瞬时表达动力学的优化。通过对5'非翻译区(5' UTR)、3'非翻译区(3' UTR)、5'帽结构以及120 bp的poly(A)尾进行协同优化,实现了对mRNA在肿瘤微环境中半衰期的精确调控,进而在限定的治疗时间窗内实现高效翻译,随后安全降解。该平台以快速且瞬时的CAR表达为特征,可作为 "现成的" 用于立即使用,可在传统疗法所需的漫长制造周期内防止疾病进展。此外,这种瞬时表达特性在靶向具有潜在安全风险的抗原时,提供了可控的安全优势 "靶向肿瘤内,非靶向肿瘤外" 毒性,或无法耐受与传统CAR-T疗法相关的严重细胞因子释放综合征(CRS)的患者。
尽管存在显著的优势 在体 原位 CAR-T细胞制备,即消除复杂性 离体 制造成本较低且经济负担减轻,但某些局限性仍然存在。在体循环中,脂质纳米颗粒(LNPs)易于在肝脏非特异性蓄积,并被巨噬细胞和树突状细胞快速内化。若缺乏针对T细胞的特异性靶向基团,目标T细胞群体的转染效率必然受到影响。此外,进入肿瘤组织后 原位 生成的CAR-T细胞会暴露于恶劣的肿瘤微环境(TME)中;在缺氧、酸性及免疫抑制条件下,这些T细胞极易发生免疫耗竭,从而限制其细胞毒活性。此外,尽管mRNA表达的瞬时性增强了安全性,但也限制了治疗时间窗的持续时间。为实现持续的抗肿瘤疗效,通常需要间歇性重复给药。因此,未来的研究将聚焦于优化脂质纳米颗粒(LNP)的递送效率,以实现精准、谱系特异性的靶向,从而克服上述局限。
访问受限。请登录或开始试用以查看此内容。
方案
所有动物实验均经上海市第十人民医院实验动物伦理委员会批准(批准号:SHDSYY-2025-P0085;批准日期:2025年1月1日)。本研究符合当地法律法规及机构相关要求。实验使用6–8周龄的NSG雌性小鼠。本研究中使用的外周血单个核细胞(PBMCs)来源于商业渠道。本研究中使用的试剂和设备列于材料表中。
1. CAR mRNA 的制备
- 线性化DNA模板的制备
注意:含有CAR序列的质粒使用BspQI限制性内切酶进行线性化。所选的限制性内切酶应在启动子区域右侧将DNA片段插入,并且在插入的DNA片段内部不含有该酶的识别位点。- 加入双蒸水(ddH₂O)2O)、10× 缓冲液、DNA 模板和 BspQI 酶,按指定顺序加入 表1. 37°C 培养 50 °C 2 h后,使酶失活 80 °C 20 分钟。线性化质粒可在 4 °C.
- 在无菌微量离心管中设置限制性酶切反应。按指定顺序和体积依次加入重蒸水、限制性内切酶缓冲液、质粒DNA模板和BspQI限制性内切酶 表1.
- 用移液器轻轻吹打混匀反应体系,然后在微量离心机中短暂离心。将混合物在指定温度下孵育 50 °C 在热循环仪中孵育2小时,以确保完全消化。通过将混合物在指定温度下孵育,使限制性内切酶失活。 80 °C 20 分钟。
注意:可选——将线性化质粒保存在 4 °C 用于短期使用,或立即进行质量控制。
- 称取0.25 g琼脂糖,溶于25 mL 1× Tris–乙酸–EDTA(TAE)缓冲液中,制备1%琼脂糖凝胶。加入 2.5 µL 加入Gel Green并充分混匀。加热至沸腾,然后剧烈振荡。重复此过程三次,再将混合物倒入凝胶制备槽中。先以110 V电泳10分钟,随后以130 V电泳20分钟。
- 通过紫外(UV)成像检测以确认完全酶切。与DNA标记物及未切割质粒的条带位置进行比较,线性化质粒仅显示两条对应于其预测分子量的清晰条带:目标序列约为1,791 bp,剩余片段约为2,535 bp。
- 使用DNA纯化磁珠纯化消化产物。
- 涡旋磁珠以确保充分混匀。用移液器将指定体积的磁珠加入DNA样本中,并轻轻混匀。室温(RT)孵育10分钟,使DNA与磁珠结合。
- 将样品置于磁力架上静置 5 min。小心移除上清液。加入 200 µL 用新配制的80%乙醇洗涤。室温孵育30秒,小心去除上清液。重复此步骤两次。
- 将样本置于磁力架上,室温下打开管盖干燥5分钟。从磁力架上取下样本。加入 11 µL 无核酸酶的ddH₂O2O. 用移液器上下吹打充分混匀。室温孵育2 min。将溶液置于磁力架上静置5 min,直至溶液澄清。
- 小心将上清液转移至新的无核酸酶离心管中。使用分光光度计测定DNA浓度;所得DNA必须立即用于后续实验。 体外 转录。根据纯化后获得的DNA量除以初始加入的DNA量,计算回收率。
- 加入双蒸水(ddH₂O)2O)、10× 缓冲液、DNA 模板和 BspQI 酶,按指定顺序加入 表1. 37°C 培养 50 °C 2 h后,使酶失活 80 °C 20 分钟。线性化质粒可在 4 °C.
- 体外 体外转录(IVT)
- 解冻基于T7 RNA聚合酶试剂盒的所有组分 体外 转录和RNA加帽试剂盒置于冰上(T7 RNA聚合酶混合液除外,应保存在-20 °C 直至使用前。短暂涡旋振荡缓冲液,然后离心沉淀。
- 在室温下,按照指定体积,在无菌、无核酸酶的微量离心管中配制体外转录(IVT)反应混合物 表2按照列表顺序依次加入各组分,最后加入T7酶混合物。
- 轻轻 flick 轻弹试管或反复吹打,充分混匀反应体系。短暂离心,使液体全部沉降至管底。将混合物于指定温度孵育 37 °C 在热循环仪中孵育2小时。
- 添加 2 µL 将DNase I酶直接加入体外转录(IVT)反应中,以降解残留的DNA模板。轻轻混匀后孵育于 37 °C 再继续孵育15分钟。立即进入纯化步骤。
- 使用RNA分离磁珠纯化所得RNA产物,纯化步骤与DNA消化产物的纯化方法相同。
- 溶解于 20 µL 无酶水。使用 NanoDrop 分光光度计测定 mRNA 浓度及吸光度(OD)比值。使用 1 µL 以无核酸酶水作为空白对照。OD260/280比值应在1.8至2.1之间,OD260/230比值应在2.0至2.4之间。
注意:如果比值超出这些范围,则表明存在污染,样品必须重新纯化。 - 使用自动化毛细管电泳系统对合成的CAR mRNA进行核酸分析,以检测其长度和完整性。电泳图谱应显示单一、尖锐的峰,对应于预期的全长CAR mRNA大小(约1800 nt),无拖尾现象,基线平坦且干净。不应出现明显的低分子量弥散条带或多峰;否则,提示RNA已发生降解。
- 将已验证的CAR mRNA分装,以避免反复冻融,并于-80℃保存。80 °C 用于长期保存。
- 溶解于 20 µL 无酶水。使用 NanoDrop 分光光度计测定 mRNA 浓度及吸光度(OD)比值。使用 1 µL 以无核酸酶水作为空白对照。OD260/280比值应在1.8至2.1之间,OD260/230比值应在2.0至2.4之间。
2. LNP 的制备与表征
- 将 SM102、胆固醇、1,2-二硬脂酰基-sn-甘油-3-磷酸胆碱(DSPC)和 DMG-PEG2000 溶于无水乙醇中,配制浓度为 10 mg/mL 的储备液。按照 1:50:38.5:10:1.5 的比例配制有机相。
- 根据阳离子氨基氮(N)与阴离子磷酸根磷(P)的 8:1 摩尔比计算所需 mRNA 量。将 mRNA 溶于柠檬酸钠溶液中以制备水相。保持有机相与水相体积比为 1:3,流速均为 1.5 mL/min。使用人字形微流控混合器制备脂质纳米颗粒(LNP)。
- 首先,用无水乙醇和柠檬酸钠溶液各冲洗一次输液管路和微流控芯片(人字形混合器)。将配制好的有机相和水相混合液排空后,用 1 mL 注射器吸取混合液,其中有机相与水相体积比为 1:3。将两相分别装入注射泵的两个通道中。
- 设定有机相和水相的流速。向连接出口的离心管中加入 5 mL 柠檬酸钠缓冲液(50 mM)。冲洗掉管路中残留的清洗液后,启动装置并收集流出液。
- 将分散在柠檬酸钠溶液中的 LNPs 转移至 100 kDa 超滤管中,在 4000 × g 条件下离心 5–10 分钟,随后加入 2.5 mL 柠檬酸钠溶液和 2.5 mL 1× TBS 溶液重新分散颗粒,并重复离心一次。
- 加入 1 mL 柠檬酸钠溶液和 4 mL 1× TBS 溶液重新分散颗粒,再次离心。将浓缩后的 LNPs 储存在 1 mL TBS 溶液中,短期保存于 4 °C。
- 使用基于荧光的 RNA 定量试剂盒测定乳化状态及破乳后 LNP 中的 mRNA 含量;两者之差用于计算 LNP 的包封效率。
- 配制 1× TE 缓冲液、探针工作液和 2% Triton X-100 溶液。用 1× TE 缓冲液将 mRNA 标准品(100 µg/mL)稀释至 2 µg/mL,并配制包含空白、10、20、100、500 和 1000 ng/mL 浓度的标准曲线。取 4 µL LNP 溶液与 16 µL 2% Triton X-100 溶液涡旋混合,室温静置 10 分钟。
- 取 5 µL 破乳后的 LNP 溶液加入 95 µL 1× TE 缓冲液中。向标准品孔和样品孔中各加入 100 µL 探针工作液,充分混匀,避光处理后转移至黑色底板的 96 孔板中。
- 孵育后,使用酶标仪测定荧光强度(Ex480/Em520)。分别从标准曲线孔和样品孔的吸光度值中减去空白孔的值,绘制标准曲线。
- 利用标准曲线计算破乳前后 LNP 溶液中的 mRNA 浓度,将测得浓度乘以 200 得到稀释前的原始浓度,并代入以下公式进行计算:
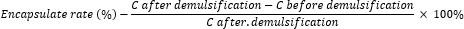
- 取 10 µL LNP 样品,用 1 mL TBS 溶液稀释。使用 Malvern 粒径分析仪测定颗粒的粒径、Zeta 电位及多分散系数(PDI)值。
3. T细胞激活与转染
- T 细胞分选
- 取外周血单个核细胞(PBMCs),浓度为 1 × 10⁷/mL,在 37 °C 下重悬,加入 10 mL 免疫磁珠细胞分离缓冲液,充分混匀,于 500 × g 离心 8 min,计数。
- 重悬细胞并调整密度至 5 × 10⁷ 个细胞/mL,每毫升细胞悬液中加入 50 µL 分离混合液,在室温下孵育 5 min;每毫升细胞悬液中加入 40 µL 用于免疫磁珠细胞分离的磁性微粒,混匀;将离心管置于磁力架上,在室温下孵育 10 min。
- 用移液器小心将富集后的细胞悬液转移至新的离心管中。将离心管从磁力架上取下,加入 4 mL 新鲜免疫磁珠细胞分离缓冲液,再孵育 5 min,进行第二轮分离。
- 用 T 细胞培养基(RPMI 1640 GlutaMAX + 10% 胎牛血清 + 1% 青霉素/链霉素 + 100 IU/mL 重组人 IL-2 + 5 ng/mL 重组人 IL-7 + 5 ng/mL 重组人 IL-15)洗涤细胞,离心并计数。加入 T 细胞培养基,调整细胞密度至 1 × 10⁶/mL,并加入 12.5 µL 人 T 细胞激活剂 CD3/CD28 磁珠。在 37 °C、5% CO₂ 培养箱中孵育 48 h 以激活细胞。
- T 细胞激活参数检测
- 将激活 48 h 的 T 细胞 200 µL 转移至 1.5 mL 微量离心管中。去除 CD3/CD28 激活磁珠,加入 1 mL FACS 缓冲液洗涤,用移液器轻轻混匀,然后在 500 × g、4 °C 条件下离心 5 min。小心吸除上清液,重复洗涤 2–3 次。
- 将细胞重悬于 100 µL FACS 缓冲液中。每管加入抗人 CD3、抗人 CD25 和抗人 CD69 抗体各 1 µL。轻轻混匀样品,在冰上避光孵育 30 min。
- 加入 1 mL FACS 缓冲液洗涤细胞,离心后小心吸除上清液,加入 100 µL FACS 缓冲液和 0.1 µL 可固定活/死细胞染料(LIVE/DEAD),在冰上避光孵育 10 min。
- 将细胞重悬于 1 mL FACS 缓冲液中,在 500 × g、4 °C 条件下离心 5 min,小心吸除上清液,重复洗涤 2–3 次。弃去上清液,将细胞重悬于 200 µL FACS 缓冲液中。使用流式细胞术分析细胞。
- 使用 FSC-A 和 SSC-A 选择目标细胞,利用 FSC-A 和 FSC-H 分选单细胞,并使用活/死细胞鉴别染料(LIVE/DEAD)鉴定活细胞。比较非激活与激活 T 细胞中 CD25 和 CD69 的表达比例。
- T 细胞的 LNP 转染
- 根据包封效率计算结果,按 mRNA 用量取所需体积的 LNP。首先将分散在 TBS 中的 LNP 离心分离,然后转移至 RPMI 1640 培养基中。
- 48 h 后,使用磁力架去除 CD3/CD28 激活磁珠。在 500 × g 条件下离心 8 min,计数后加入 T 细胞培养基,调整细胞密度至 2 × 10⁶ 个细胞/mL。每 1 × 10⁵ 个细胞加入 1 µg LNP-mRNA。用移液器轻轻混匀,在 37 °C、5% CO₂ 培养箱中孵育 4–6 h。
4. CAR 表达检测
- 转染后 4–6 小时,轻轻吹打 CAR-T 细胞以充分混匀。将至少 2 × 10⁵ 个细胞转移至 1.5 mL 微离心管中。
- 向 1.5 mL 微离心管中加入 1 mL FACS 缓冲液。吹打混匀,然后在 4 °C 下以 500 × g 离心 5 分钟。小心吸除上清液。重复此步骤 2–3 次。
- 将细胞沉淀重悬于 100 µL FACS 缓冲液中,并将样品分为对照组和实验组,每组各含 50 µL。向实验组细胞悬液中加入 1 µL CAR 检测抗体 G4S-linker,轻轻混匀后置于冰上避光孵育 30 分钟。对照组不加抗体,同样置于冰上孵育。
- 取 0.2 µL LIVE/DEAD 可固定死细胞染料(1000×),用 100 µL FACS 缓冲液稀释;然后向对照组和实验组中各加入 50 µL,轻轻混匀,置于冰上避光孵育 10 分钟。
- 用 1 mL FACS 缓冲液洗涤细胞。在 4 °C 下以 500 × g 离心 5 分钟。小心吸除上清液。重复洗涤 2–3 次。
- 弃去上清液,将细胞重悬于 200 µL FACS 缓冲液中。使用流式细胞仪分析细胞。
- 采用以下设门策略评估 CAR 表达:利用 FSC-A 与 SSC-A 图选目标细胞,利用 FSC-A 与 FSC-H 图选单细胞,利用 LIVE/DEAD 可固定死细胞染料选活细胞。
注:根据对照组活细胞群体最右栏中 G4S-linker 抗体染色阳性细胞的选择情况,实验组所示百分比代表 CAR 阳性率。
5. 体外 CAR-T细胞的细胞毒性分析
- 用胰蛋白酶消化表达荧光素酶的 NUGC4 和 NCl-N87 肿瘤细胞。在 300 × g 条件下离心 5 分钟。加入 1 mL RPMI 1640 培养基,计数并调整细胞密度至 5 × 10⁴ 个细胞/mL。将 100 µL 细胞悬液分装至 96 孔板的每个孔中。向其余孔中加入等体积的磷酸盐缓冲液(PBS)以防止蒸发。在 37 °C、含 5% CO₂ 的培养箱中孵育 24 小时。
- 根据流式细胞术结果计算 CAR 阳性率。按照效应细胞与靶细胞比例为 10:1、5:1、3:1、1:1、1:3 和 1:5,将 CAR-T 细胞或 T 细胞加入含有肿瘤细胞的孔中(每孔 100 µL)。在 37 °C、5% CO₂ 条件下孵育 24 小时。
- 使用萤火虫荧光素酶报告基因检测试剂盒,按照产品说明书检测残留肿瘤细胞的荧光素酶信号,并计算杀伤率:(1 - (效应细胞 RLU 值 / 靶细胞 RLU 值)) × 100%。
6. 体内 CAR-T细胞的功能验证
- 经过接种前1周的适应期后,将每只小鼠在腋窝处皮下注射5 × 10⁶ NUGC4 细胞。每天测量肿瘤大小,并使用以下公式计算肿瘤体积: V 毫米3) = L × W2/2(其中L为肿瘤的最长直径,W为最短直径),直至肿瘤达到100 mm3.
- 将小鼠随机分为四组:三个给予不同剂量的处理组和一个给予PBS的对照组,每组三只小鼠。
注:《盲人法案》未被实施。 - 孵育后 10 µg mRNA 与 1 × 10⁶ 活化的T细胞孵育4小时,制备5 × 10的剂量5 细胞/小鼠,1 × 106 细胞/小鼠,以及 2 × 10⁶ 细胞/小鼠。将LNP与T细胞的混合物给予小鼠 通过 尾静脉注射,每只小鼠接受一次 100 µL 细胞或PBS的体积。给药时间分别为第1、4、7和10天,共给药四次。
- 在第0、2、4、6、8、10、12和14天测量小鼠的肿瘤大小,计算肿瘤体积,并绘制生长曲线。数据以均值±标准差(SD)表示。使用双向方差分析(two-way ANOVA)结合Tukey多重比较检验,通过统计与绘图软件对组间差异进行分析。ns:无统计学显著性;*P < 0.05; **P < 0.01; ***P < 0.001; ****P < 0.0001.
访问受限。请登录或开始试用以查看此内容。
结果
靶向Claudin18.2的CAR序列由人源化抗Claudin18.2单克隆抗体的单链可变区片段(scFv)、CD8铰链区、CD28跨膜区、共刺激结构域以及CD3ζ激活结构域组成。基于该序列构建了包含T7启动子和poly A尾的DNA模板,用于 体外 CAR mRNA转录(图1A)。CAR mRNA 长度约为 1800 bp,经毛细管电泳验证(图1B一条具有尖锐峰形且无拖尾的单一条带,以及平直干净的基线,表明mRNA未发生降解。
然后,使用微流控装置制备脂质纳米颗粒(LNPs)。LNPs分散于TBS中,在4 °C下可稳定保存1周。采用定量检测试剂盒检测mRNA的包封效率(图2A),同时测定颗粒大小、zeta电位和多分散系数(PDI)(图2B)。结果显示,LNP的包封效率超过90%,粒径约为150 nm,PDI低于0.2,表明颗粒...
访问受限。请登录或开始试用以查看此内容。
讨论
本方案提供了一种非病毒性mRNA递送系统,可避免整合到宿主基因组中,从而规避包括免疫排斥在内的多种风险。其瞬时功能还可防止脱靶毒性,实现CAR-T细胞中短期、可控的表达,以降低副作用和安全风险。
优化CAR mRNA序列设计以调控其翻译效率和表达持续时间。mRNA分子的5'非翻译区(5'UTR)、3'非翻译区(3'UTR)、5'端帽结构(5'-Cap)和多聚腺苷酸尾(poly(A)尾)协同调控mRNA的翻译效率与稳定性12在序列设计中采用了T7启动子,该启动子与T7 RNA聚合酶可形成高度特异且高效的转录系统13,实现大规模 体外 RNA合成。随后加入一个120个碱基对的poly(A)尾14,延长mRNA半衰期并延长蛋白质表达持续时间。同时, 体外 转录在mRNA的5'端添加了5'-帽子结构。5'-帽子相对于3'-poly(A)尾的正确位置和完整性对于确保mRNA的翻译活性和效率至关重要
访问受限。请登录或开始试用以查看此内容。
致谢
我们感谢上海大学和上海市第十人民医院中心实验室为本研究提供了科研平台。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 无水乙醇 | Sigma-Aldrich | 459836 | 有机相 |
| 琼脂糖 | Beyotime | ST004L | 凝胶电泳 |
| anti-G4S linker (B02H1) mAb PE | Hycells | GS-ARPE100 | CAR 检测 |
| BspQI 限制性内切酶 | NEB | R0712 | 质粒线性化 |
| BV421 小鼠抗人 CD25 | BD Biosciences | 564033 | 活化标志物 |
| CD3/CD28 活化磁珠 | Thermo Fisher Scientific | 11161D | T 细胞活化 |
| 胆固醇 | Sigma-Aldrich | C8667 | 结构脂质 |
| CO2 细胞培养箱 | Thermo Fisher / 等效产品 | 250i | 用于 T 细胞和肿瘤细胞培养 |
| DMG-PEG2000 | Avanti Polar Lipids | 880151 | 聚乙二醇化脂质 |
| DNA 提取磁珠 | SYNTHGENE | 10501-005 | DNA 纯化 |
| DNase I(无 RNase) | NEB | M0303L | 去除 DNA 模板 |
| DSPC | Avanti Polar Lipids | 850365 | 磷脂 |
| 动态光散射分析仪 | Malvern Panalytical | Zetasizer | 用于 LNP 粒径、PDI、zeta 电位分析 |
| EasySep 缓冲液 | STEMCELL Technologies | 20144 | 磁性分离 |
| 胎牛血清(FBS) | Gibco | 10099-141 | 培养补充剂 |
| FITC 小鼠抗人 CD3 | BD Biosciences | 555332 | T 细胞鉴定 |
| 流式细胞仪 | BD Biosciences / 等效产品 | FACSCelesta / LSRFortessa | 用于 CAR 和活化标志物检测 |
| GelGreen 核酸染料 | Biotium | 41005 | DNA 可视化 |
| LIVE/DEAD 可固定染料 | Invitrogen | L34955 | 活力染色 |
| 荧光素酶检测试剂盒 | Promega | E1500 | 细胞毒性读数 |
| 磁性分离架 | STEMCELL Technologies / 等效产品 | 18000 | 用于 PBMC 和 T 细胞分离 |
| Nanodrop 分光光度计 | Thermo Fisher Scientific | NanoDrop 2000 | 用于 DNA/RNA 定量 |
| NSG 雌性小鼠(6–8 周龄) | Jackson Laboratory | 5557 | 体内模型 |
| PBMCs | 上海赛立生物科技有限公司 | ||
| PCR 热循环仪 | Bio-Rad / 等效产品 | T100 | 用于 DNA 扩增 |
| PE 小鼠抗人 CD69 | BD Biosciences | 557050 | 早期活化 |
| 青霉素-链霉素 | Gibco | 15140-122 | 抗生素 |
| Qsep 核酸分析仪 | BiOptic Inc. | Qsep100 | 用于 mRNA 大小/完整性分析 |
| Quant-iT RiboGreen RNA 检测试剂盒 | Invitrogen | R11490 | 包封效率 |
| RapidSpheres | STEMCELL Technologies | 15061 | 磁性标记 |
| 重组人 IL-15 | PeproTech | 200-15 | 记忆表型支持 |
| 重组人 IL-2 | PeproTech | 200-02 | T 细胞扩增 |
| 重组人 IL-7 | PeproTech | 200-07 | T 细胞存活 |
| 冷冻离心机 | Eppendorf / 等效产品 | 5425R | 用于 LNP 浓缩和细胞处理 |
| RNA 6000 Ladder | Thermo Fisher Scientific | AM7152 | RNA 表征 |
| RNA 芯片试剂盒(1 个) | Bioptic | C105110 | RNA 质量控制 |
| RNA 提取磁珠 | SYNTHGENE | 10511-005 | mRNA 纯化 |
| 无 RNase 水 | Thermo Fisher Scientific | AM9937 | 体外转录和 RNA 操作 |
| RPMI 1640 GlutaMAX | Gibco | 61870-036 | T 细胞培养 |
| SM-102 | MedChemExpress / 等效产品 | HY-112563 | 可电离脂质 |
| T 细胞分离混合液 | STEMCELL Technologies | 15061 | CD3+ T 细胞分离 |
| T7 共转录与加帽试剂盒 | SYNTHGENE | 10111-3011 | 体外转录 mRNA 合成 |
| TBS 缓冲液 | Gibco | 3005 | LNP 储存 |
| 胰蛋白酶-EDTA | Gibco | 25200-056 | 细胞解离 |
| 紫外凝胶成像系统 | Syngene / 等效产品 | NuGenius/NuGenius+ | 用于 DNA 消化验证 |
参考文献
- Bray F, Ferlay J, Soerjomataram I, Siegel RL, Torre LA, Jemal A. Global cancer statistics 2018: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2018;68(6):394-424.
- Saez-Ibañez AR, Upadhaya S, Partridge T, Shah M, Correa D, Campbell J. Landscape of cancer cell therapies: trends and real-world data. Nat Rev Drug Discov. 2022;21(9):631-632.
- Dunbar CE, High KA, Joung JK, Kohn DB, Ozawa K, Sadelain M. Gene therapy comes of age. Science. 2018;359(6372):eaan4672.
- Jiang H, Shi Z, Wang P, Li X, Hou W, Zhang H, et al. Claudin18.2-specific chimeric antigen receptor engineered T cells for the treatment of gastric cancer. J Natl Cancer Inst. 2019;111(4):409-418.
- Baker DJ, Arany Z, Baur JA, Epstein JA, June CH. CAR T therapy beyond cancer: the evolution of a living drug. Nature. 2023;619(7971):707-715.
- Raguram A, Banskota S, Liu DR. Therapeutic in vivo delivery of gene editing agents. Cell. 2022;185(15):2806-2827.
- Khawar MB, Afzal A, Si Y, Sun H. Steering the course of CAR T cell therapy with lipid nanoparticles. J Nanobiotechnology. 2024;22(1):380.
- Hamilton AG, Thatte AS, Xu J, Mai D, Billingsley MM, Mitchell MJ, et al. High-throughput in vivo screening using barcoded mRNA identifies lipid nanoparticles with extrahepatic tropism for in situ immunoengineering. Adv Mater. 2026;38(13):e14370.
- Żak MM, Yoo J, Utrero-Rico A, Kim J, Smith R, Wang L, et al. A tumor-selective mRNA system enables precision cancer treatment. Mol Ther. 2026;34(2):1066-1083.
- Han JH, Fagan E, Yeom K, Park JH. In situ chimeric antigen receptor macrophage therapy via co-delivery of mRNA and immunostimulant. ACS Nano. 2025;19(48):40798-40816.
- Chen X, Li X, Yan Y, Wang J, Liu Y, Zhang Q, et al. Splenic dendritic cell-targeting mRNA transfection of H-type ionizable lipid-based LNPs for enhancing tumor immunotherapy. Bioact Mater. 2026;61:429-447.
- Roundtree IA, Evans ME, Pan T, He C. Dynamic RNA modifications in gene expression regulation. Cell. 2017;169(7):1187-1200.
- Ikeda RA, Richardson CC. Interactions of the RNA polymerase of bacteriophage T7 with its promoter during binding and initiation of transcription. Proc Natl Acad Sci U S A. 1986;83(11):3614-3618.
- Holtkamp S, Kreiter S, Selmi A, Simon P, Koslowski M, Huber C, et al. Modification of antigen-encoding RNA increases stability, translational efficacy, and T-cell stimulatory capacity of dendritic cells. Blood. 2006;108(13):4009-4017.
- Tada M, Abe N, Inagaki M, Sato K, Yamaguchi T, Tanaka H, et al. The effect of cap structure and poly(A) positioning on mRNA translation efficiency. Angew Chem Int Ed Engl. 2025;64(50):e202514124.
- Ye Z, Chen J, Zhao X, Li Y, Wang X, Zhang Y, et al. In vitro engineering chimeric antigen receptor macrophages and T cells by lipid nanoparticle-mediated mRNA delivery. ACS Biomater Sci Eng. 2022;8(2):722-733.
- Billingsley MM, Singh N, Ravikumar P, Zhang R, June CH, Mitchell MJ. Ionizable lipid nanoparticle-mediated mRNA delivery for human CAR T cell engineering. Nano Lett. 2020;20(3):1578-1589.
- Billingsley MM, Hamilton AG, Mai D, Singh N, Zhang R, Lee Y, et al. Orthogonal design of experiments for optimization of lipid nanoparticles for mRNA engineering of CAR T cells. Nano Lett. 2022;22(1):533-542.
- Zong Y, Lin Y, Wei T, Cheng Q. Lipid nanoparticle (LNP) enables mRNA delivery for cancer therapy. Adv Mater. 2023;35(51):e2303261.
- Sun D, Lu ZR. Structure and function of cationic and ionizable lipids for nucleic acid delivery. Pharm Res. 2023;40(1):27-46.
- Su FY, Zhao QH, Dahotre SN, Li X, Wang Y, Zhang Z, et al. In vivo mRNA delivery to virus-specific T cells by light-induced ligand exchange of MHC class I antigen-presenting nanoparticles. Sci Adv. 2022;8(8):eabm7950.
- Herrera-Barrera M, Ryals RC, Gautam M, Patel A, Kim S, Wilson J, et al. Peptide-guided lipid nanoparticles deliver mRNA to the neural retina of rodents and nonhuman primates. Sci Adv. 2023;9(2):eadd4623.
- Kheirolomoom A, Kare AJ, Ingham ES, Mahakian LM, Tam SM, Silvestrini MT, et al. In situ T-cell transfection by anti-CD3-conjugated lipid nanoparticles leads to T-cell activation, migration, and phenotypic shift. Biomaterials. 2022;281:121339.
- Tombácz I, Laczkó D, Shahnawaz H, Muramatsu H, Natesan A, Yadegari A, et al. Highly efficient CD4+ T cell targeting and genetic recombination using engineered CD4+ cell-homing mRNA-LNPs. Mol Ther. 2021;29(11):3293-3304.
- Rurik JG, Tombácz I, Yadegari A, Méndez Fernández PO, Shewale SV, Li L, et al. CAR T cells produced in vivo to treat cardiac injury. Science. 2022;375(6576):91-96.
- Shi D, Toyonaga S, Anderson DG. In vivo RNA delivery to hematopoietic stem and progenitor cells via targeted lipid nanoparticles. Nano Lett. 2023;23(7):2938-2944.
访问受限。请登录或开始试用以查看此内容。
重印与许可
本文已发表
视频即将推出