本方案提供了一种标准化的室内切割方法,用于解析伤口诱导的挥发性物质释放的起始时间、峰值时间及动力学过程,同时进行气体交换测量。
方法文章
一种室内切割法用于实时定量测定叶片损伤挥发物与气体交换
31 次观看
⸱
2026年9月11日
本文内容
摘要
摘要
植物叶片释放的挥发性有机化合物(VOCs)在胁迫信号传递、植物-大气相互作用以及植物防御过程中发挥着关键作用。其中,机械损伤诱导的挥发性有机化合物(wVOCs)在机械损伤、植食性动物取食或环境扰动发生后的数秒内即开始释放。其释放动态强烈依赖于组织损伤的时间、严重程度和破坏方式。然而,由于机械干扰、暴露条件不一致以及损伤与测量之间存在时间延迟,准确定量仍然具有挑战性。本研究提出了一种标准化的密闭腔室内叶片切割方法,用于实时监测wVOCs释放及气体交换过程。将外科级切割装置集成到便携式气体交换腔室中,可在密闭腔室内稳定光照、湿度、CO2和温度条件下实现干净且可控的切割操作。通过质子转移反应飞行时间质谱仪(PTR-TOF-MS)持续监测腔室出口处的挥发性物质排放,最大限度地减少了延迟和信号失真。该系统能够高时间分辨率地解析wVOCs的释放起始时间、峰值时间、最大上升速率及总释放量。将该方法应用于红栎(Quercus rubra)、挪威枫(Acer platanoides)和陆地棉(Gossypium hirsutum)表明,其可有效分辨不同类型叶片间差异显著的损伤诱导排放模式。通过消除传统采样方法中存在的测量延迟,该技术能够完整解析损伤诱导排放的全动力学轨迹,克服了以往方法的主要局限性。该方法为研究植物生理学、生态生物化学及植物-大气相互作用中的快速胁迫响应提供了可靠的实验框架。
引言
植物在受到损伤时会释放出快速的化学信号,但准确捕捉这一信号在技术上仍然具有挑战性。在食草动物取食、风害或机械扰动发生后的数秒内,植物会瞬时释放大量挥发性有机化合物(VOCs),从而激活内部防御机制并启动邻近植物的防御准备1,2,3,4。这些由伤口诱导产生的挥发性有机物(wVOCs)包括绿色叶片挥发物(GLVs)、甲醇、短链醇和醛类、萜类化合物以及氧化脂质衍生物。它们或来源于叶肉细胞中的从头合成,或源于树脂道、毛状体等储存结构的破裂。作为即时的胁迫信号,wVOCs可协调生理防御反应,介导植物间的通讯,并与大气化学过程相互作用1,5,6,7。
由于自然植食性取食结合了机械损伤以及唾液和微生物诱导物,实验研究常采用模拟损伤来单独分离对物理伤害的响应8。然而,挥发性有机物(wVOCs)具有瞬时性,使其本身难以捕获。传统方法(如静态顶空取样结合气相色谱-质谱联用技术(GC-MS))通常会遗漏初始的释放高峰,并扭曲其动力学特征9,10。平衡延迟、升高的孵育温度以及延长的采样管路会增加滞留时间,从而扭曲记录信号,尤其影响倍半萜等反应性化合物9,11,12。这些人为因素共同导致信号强度降低,并掩盖了伤口诱导挥发物释放的时间动态,从而增加了植物胁迫响应解释的复杂性。
许多研究还会中断测量,将叶片从叶室中取出进行创伤处理。这种中断会破坏气流的稳定性,改变创伤时间,并降低切口精度的可控性13,14,15因此,受伤后的最初几分钟往往丢失或失真13,即在发射速率达到峰值且特征性动力学模式显现时3,6,16,17一些方法采用聚四氟乙烯刀片或机械打孔器,在大容量密闭室内部进行叶片切除。12,18,19然而,这些装置常因切割器偏移或叶片韧性差异,导致密封不稳定、切段长度不一致以及切口不平整。较大的腔室体积进一步延缓了空气交换,扩大了挥发性信号。16这些实验局限性共同导致无法在稳定的生理条件下准确表征伤口诱导释放物的时间动态特征。
为克服这些挑战,本研究提出了一种实时原位损伤方案,该方案将外科级切割器整合到与质子转移反应飞行时间质谱仪(PTR-TOF-MS)耦合的气体交换系统中。该方案可在受控环境条件下同步实现叶片损伤与挥发物检测,同时以高时间分辨率测量挥发物通量和气体交换。通过在测量室内部进行叶片切除,该方案显著减少了传统方法中存在的采样延迟,保留了损伤诱导挥发物快速释放的时间动态特征,并针对具有不同机械特性的叶片建立了标准化的切割流程。这种高时间分辨率使得能够直接表征损伤诱导挥发物释放的起始时间、峰值时刻以及物种特异性的动力学过程。
本方案通过三种具有不同解剖和生理特征的物种(Quercus rubra、Acer platanoides 和 Gossypium hirsutum)进行评估,以证明其适用于多种叶片类型。在所有物种中应用相同的测量条件表明,该方案能够解析广泛排放模式下创伤诱导的挥发性有机化合物(VOC)动态变化,同时最大限度地减少实验变异性。该方法广泛适用于在受控环境条件下需要对创伤诱导VOC进行高时间分辨率测量的研究。上述特点共同为研究植物快速应激反应提供了标准化框架,并有助于在不同物种和实验系统中推广应用该方案。
方案
所有植物均在生长室的受控环境条件下培养。所用试剂和设备列于材料表中。
1. 室内叶片切割装置的构建与安装
- 制造一个旋转式叶片切割器,设计尺寸需适配标准测量头的内部尺寸(4 cm × 2 cm)。
- 使用银焊料将剃须刀片固定在不锈钢杆(直径 1 mm)上,以确保机械稳定性。
警告:剃须刀片极为锋利。操作时需佩戴防割手套。使用后,应根据机构实验室关于锐器的安全处理程序处置剃须刀片。银焊操作应在适当通风条件下进行,并佩戴护目镜。 - 将固定刀片的金属杆插入不锈钢注射针头(外径 1.6 mm)中,以实现自由的轴向旋转。
- 使用低释放聚四氟乙烯(PTFE)塞子密封针头两端,以在保持旋转功能的同时维持气密性。
- 在金属杆近端安装手动旋转旋钮,以便控制内部切割器的转动。
- 在针头外表面安装两个由弹簧黄铜片(厚度 0.2 mm)制成的柔性支撑件,将切割器固定在下腔体半部。
- 在下腔体垫圈上制作一个三角形切口,以便刀片插入时不会接触叶片表面。
- 使用低释放密封腻子密封插入点,防止气体泄漏。
注意:在继续操作前,需确认切割器的安装未影响腔体的密封性。应确认腔体能够完全闭合,热电偶仍与叶片表面保持接触,且气体交换系统显示气流稳定、无泄漏迹象。仅在确认腔体条件稳定后方可继续操作。选择合适的刀片长度,以产生约 10 mm 的切口。集成切割机构及其在叶室中的位置如图 1B所示。
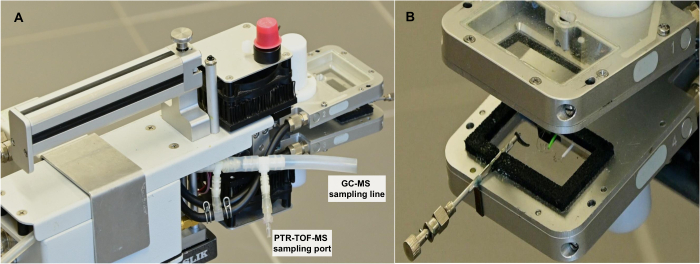
图1:改进的气体交换系统,集成腔内叶片切割装置和挥发物采样管线。(A)改进型气体交换系统的整体示意图,显示了PTR-TOF-MS采样口以及靠近腔室出口处的GC–MS采样管线,用于挥发物采集。(B)打开状态下的腔室特写图,展示集成的切割机构及叶片在机械损伤过程中所处的位置。切割装置被严密地集成于腔室内,可在不打开密闭环境的情况下完成叶片损伤操作。该配置可在受控环境条件下实现对挥发物释放和气体交换的实时监测。请点击此处查看该图的高清版本。
2. 挥发性物质采样通路的配置
- 在腔室出口附近安装一个特氟龙T型接头(1/16″ 或 1/8″ 内径)(图1A),以尽量缩短腔室与挥发性物质分析仪之间的管路长度。
- 使用惰性管路(例如FEP或PTFE;内径1.6 mm)将出口连接至挥发性有机化合物(VOC)采集系统。T型接头应紧邻腔室出口安装,使腔室与挥发性物质分析仪之间的管路尽可能短,从而最大限度减少内部体积、停留时间以及吸附损失。
- 保持腔室气流速率为750 µmol s-1。
注意:较短的惰性管路可减少反应性化合物的吸附和停留时间。
3. 植物材料的制备
- 在人工气候室中种植Quercus rubra、Acer platanoides和Gossypium hirsutum,条件为:白天25 °C、夜间20 °C,相对湿度60%,光照强度1000 µmol m-2 s-1,光周期16 h/8 h,持续4个月。
- 整个实验期间,植物均维持在环境大气CO2浓度(约430 ppm)条件下。
- 每两天浇水一次,直至土壤达到田间持水量。
- 选择完全展开且未衰老、发育阶段相似的叶片进行实验。
4. 叶片损伤与挥发性有机化合物采集实验
- 将叶片包裹并设置环境条件
- 将一片完全展开的附着叶片放入配备内置切割器的比色皿中。
- 将模块温度设置为 25 °C,相对空气湿度调至60%,激发光强度调至 1000 µmol m-2 s-1 (90% 红色,10% 蓝色),以及气流 750 µmol s-1.
- 让叶片在选定的环境条件下适应,直至净CO₂交换速率达到稳态值。2 气孔导度、同化作用以及基础挥发性有机物信号达到稳定,通常在叶片封闭后20–30分钟内实现。
- 进行气体交换、荧光和挥发性有机化合物监测
- 以1 Hz分辨率开始同步测量气体交换和挥发性有机化合物(VOCs)。
- 完成气体交换测量后,记录稳态荧光产量(Fs)然后施加一个饱和脉冲(8000 µmol m-2 s-1,0.6 s 通过 使用腔室式荧光仪(3055-FL)测定最大荧光产量(Fm′)在光适应叶片中。
- 关闭测量光,并将叶片暗适应 20 分钟。
- 记录叶片暗呼吸速率。
- 测量初始荧光(F₀)使用弱调制测量光(0.03 µmol m-2 s-1),随后施加饱和脉冲以获得暗适应叶片的最大荧光Fm).
- 重新打开激发光。
- 在相同的环境条件下继续进行挥发性有机化合物和气体交换的测量,直至创伤前基线稳定。
注意:在进行损伤处理前,需确认所选环境条件保持稳定,并且净CO₂同化速率、蒸腾速率以及基础挥发性有机化合物(VOC)信号已达到稳态值。只有在这些条件于所选测量设置下维持稳定后,方可继续后续操作。
- 叶片损伤与挥发性有机化合物采集
- 将第一个VOC采样管插入出口管路,并连接至便携式恒流空气采样泵。以200 mL min⁻¹的恒定流速抽取腔室空气通过采样管。-1使用多段不锈钢吸附管(长度10.5 cm,内径3 mm),适用于C3–C17挥发性化合物的捕集,填料按吸附强度由弱至强沿采样方向依次为Carbotrap C 20/40目(0.2 g)、Carbopack B 40/60目(0.1 g)和Carbotrap X 20/40目(0.1 g)。
注意:采样前,需使用高纯度氦气以 200 mL/min 的流速通过 cartridge 进行活化处理。-1 3小时 250 °C. 当实验目标需要进行化合物鉴定时,可采用吸附管采样,以便后续进行离线气相色谱-质谱(GC-MS)分析。尽管吸附管采样属于本文所述工作流程的一部分,但本研究中展示的代表性结果均来自连续质子转移反应-飞行时间质谱(PTR-TOF-MS)测量。应根据目标挥发性有机化合物(VOCs)的挥发性范围、极性以及采样条件,选择匹配的吸附剂。 - 在200 mL/min条件下收集伤口前挥发性有机物15分钟-1.
- 更换色谱柱并收集挥发性有机化合物2分钟。
- 旋转内切刀 360° 在不打开叶室的情况下切除叶片,并将刀片恢复至初始位置。
注意:将叶片置于叶室中,使切口位于封闭的叶肉组织内,同时确保叶室完全密封。在叶片大小和形态允许的情况下,应避免切穿主脉,并尽量保持各样本间切口位置的一致性。由于主脉损伤可能显著增加创伤诱导的挥发性物质释放,因此切口位置的一致性有助于提高实验的可重复性5.
警告:切割前请确保腔室完全密封。 - 继续使用同一根色谱柱采集挥发性有机物13分钟。
- 插入第三个 cartridge,收集 VOCs 15 分钟。
- 所有时段均需持续运行PTR-TOF-MS以实现实时检测。
注意:每次植物测量前后,均需在相同环境条件下采集空室背景样本。在数据分析过程中,使用这些背景测量值对挥发性有机化合物(VOC)排放数据进行基线校正。
- 将第一个VOC采样管插入出口管路,并连接至便携式恒流空气采样泵。以200 mL min⁻¹的恒定流速抽取腔室空气通过采样管。-1使用多段不锈钢吸附管(长度10.5 cm,内径3 mm),适用于C3–C17挥发性化合物的捕集,填料按吸附强度由弱至强沿采样方向依次为Carbotrap C 20/40目(0.2 g)、Carbopack B 40/60目(0.1 g)和Carbotrap X 20/40目(0.1 g)。
5. 挥发性物质检测与仪器操作
- 将PTR-TOF-MS的进样口和漂移管温度设为80 °C,进样流量设为100 mL min-1,水蒸气流量设为4.0 mL min-1,离子电流设为4.0 mA,漂移室压力设为2.1 mbar,漂移管场强密度比设为115 Td,飞行时间质谱模块压力设为1.2 × 10⁻⁷ mbar。
- 以1 Hz的时间分辨率和400 ps的采样间隔记录挥发性物质信号。
- 每次实验前使用含有主要植物挥发性有机化合物类别代表性VOCs的认证气体标准混合物对PTR-TOF-MS进行校准。使用PTR-MS Viewer软件处理校准数据,并按照文献所述方法13,16计算VOC浓度。
6. 离线 色谱-质谱联用分析小柱样品
注意: 以下步骤描述了对上述流程中采集的色谱柱样品进行的离线分析。气相色谱-质谱(GC-MS)分析可提供互补的化合物鉴定信息,而本研究中展示的代表性结果则基于连续的质子转移反应-飞行时间质谱(PTR-TOF-MS)测量。
- 按照 Kännaste 等人20所述方法,使用与气相色谱-质谱联用系统(GC-MS)连接的自动热脱附仪对吸附管进行热脱附。
- 通过与标准品及 NIST 质谱库比对来鉴定化合物。采用电子轰击电离(70 eV)方式进行质谱检测,并在有标准品可用时,通过比对保留时间和质谱图来确认化合物的鉴定结果。
注意:吸附管采样采用 Kännaste 等人20所述的改进方案,用于捕获 C3–C17 挥发性物质。
7. 数据分析
- 在分析前,从所有发射信号中减去空腔背景。将每次监测质量的伤前基线定义为切割前固定时间段内的平均信号。
- 以切割时间作为所有监测质量的共同参考点。将排放起始时间确定为叶片切割后基线校正后的挥发性有机化合物(VOC)信号首次可检测到的上升点。
注意:排放起始定义为持续上升并进入排放爆发上升阶段的首个连续性高于伤前基线的信号增长,从而排除因仪器噪声引起的孤立波动。 - 将达峰时间计算为从切割时刻至最大排放信号之间的时间间隔。通过基线校正信号的一阶导数计算排放爆发的最大斜率,采用相邻数据点间前后向斜率的平均值13。将峰值幅度定义为爆发期间观测到的最大排放值。
结果
为了评估挥发性物质采样位置是否影响信号检测,我们通过向叶室进行受控气体注入,比较了两种配置。在一种设置中,挥发性物质直接在改装后的气体交换室出口处采样(图1);而在另一种设置中,空气在到达检测器之前需先经过气体交换分析仪的管路。同时记录两个信号,从而能够直接比较其时间动态特征。
注入纯挥发性化合物后,检测器迅速响应,并出现明显的发射峰(图2)。在直接采集反应室出口处的样品时,信号在注入后立即上升,达到尖锐的峰值后迅速衰减;而在经过分析仪管路后采集时,相同化合物产生的信号则出现延迟且强度减弱。
对于异戊二烯(m/z 69),不同采样位置之间的时间延迟极小,峰强度保持相似(图 2A)。对于Z-3-己烯-1-醇(m/z 83),气体经过管路后导致峰高降低,且衰减曲线较直接采样更为宽缓(图 2B)。该效应在α-蒎烯(m/z 137)中最为显著,相较于在反应室出口直接测得的信号,经过管路后峰强明显减弱(图 2C)。
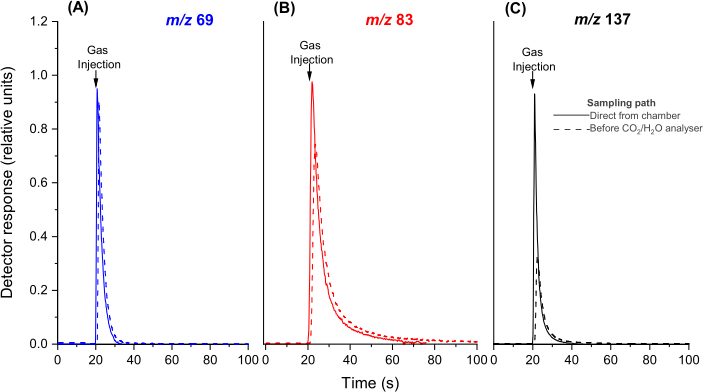
图2:采样位置对挥发性物质检测时间响应的影响。 记录了在两个不同采样位置对纯(A)异戊二烯(m/z 69)、(B)Z-3-己烯-1-醇(主要以其碎片离子 m/z 83 检测)和(C)α-蒎烯(m/z 137)注入的响应。实线表示紧接在腔室出口后的采样,而虚线表示标准采样位置,即气体经过气体交换系统管路后,在进入 CO₂/H₂O 分析仪之前的采样点。箭头指示气体注入时刻。响应信号已归一化至腔室旁PTR-QMS检测到的最大信号值。为便于观察响应形态的差异,标准采样时间曲线相对于直接采样时间曲线整体前移了0.9秒。本图改编自Rasulov等.16。请点击此处查看此图的放大版本。
在所有物种(Quercus rubra、Acer platanoides 和 Gossypium hirsutum)中,叶片切割均引发了快速且具有化合物特异性的挥发性物质释放,系统在数秒内即检测到这些释放。由于腔室内装置可直接解析挥发性物质释放的起始时间和峰值时间,因此能够在不中断测量的情况下,实现对化合物特异性动力学参数的定量分析。
在所有物种中,创伤诱导的 PTR-TOF-MS 主导信号均出现在 m/z 99,根据先前的 PTR-TOF-MS 研究,暂定归属于 LOX 途径产生的己烯醛类化合物(图3, 图4,以及 图5)。峰值排放范围为24–300 nmol m-2 s-1 在三个物种间展示了该方案解析伤口诱导的挥发性有机物动态变化的能力,覆盖了广泛的排放强度(图3, 图4,以及 图5)。在所有情况下,m/z 99 在切割后数秒内即开始上升,在约39–57秒内达到峰值,其上升速率在所监测的质量峰中最为陡峭(表1),将其确定为伤口爆发性反应中的主要急性组分。
A. platanoides(图4B)和G. hirsutum(图5B)在切割前质量69的信号可忽略不计,损伤后仅略有增加。相比之下,Q. rubra在切割前即有显著的基础排放,损伤后出现短暂而适度的升高,随后趋于稳定,表明其异戊二烯的组成型释放与损伤响应叠加(图3B)。
其他监测到的质量峰在切割后呈现出明显的时间序列。在不同物种中,m/z 43、57、69 和 99 定义了爆发的早期阶段,而 m/z 45 和 83 则在较晚时间达到峰值(图3、图4 和 图5;表1)。这一模式在 A. platanoides 中最为显著,其中 m/z 45 在切割后立即开始上升,但直到约 155 秒后才达到峰值,表明其响应比早期与脂氧合酶(LOX)相关的碎片更缓慢且持续时间更长(图4A;表1)。类似地,m/z 83 在所有物种中的峰值均晚于早期碎片,且在 G. hirsutum 中尤为延迟,直到约 223 秒后才达到最大值(图5A;表1)。
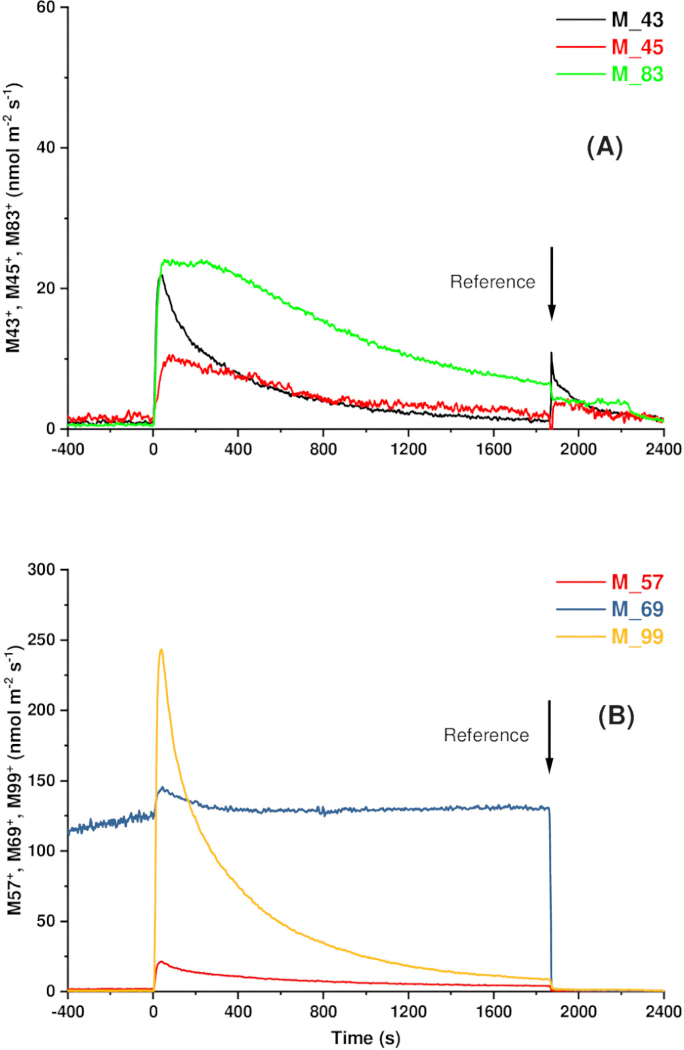
图3:一株代表性北美红橡(Quercus rubra)叶片在机械损伤后随时间变化的挥发性物质释放。(A)质荷比(m/z)为43、45和83的离子信号。(B)质荷比(m/z)为57、69和99的离子信号。在 t = 0 时,使用如图1所示的密闭腔室内叶片切割器对叶片进行切割,形成一个10 mm的切口。挥发性物质的释放通过质子转移反应飞行时间质谱仪(PTR-TOF-MS)连续监测,气体交换速率则使用Walz GFS-3000系统测定。图中信号为经过基线校正的代表性排放曲线,展示了本实验方案可达到的时间分辨率。有关从这些排放曲线中提取的代表性动力学参数,请参见表1。请点击此处查看该图的放大版本。
尽管具有这些共同特征,代表性测量结果表明,不同物种之间的释放轨迹可能存在差异。Q. rubra 中,m/z 43 和 m/z 57 在初期迅速上升,但在衰减阶段出现分化,其中 m/z 57 的下降速度比 m/z 43 更慢(图 3A、B)。在 A. platanoides 中,该模式相反,m/z 43 在后期表现出更缓慢的衰减速率(图 4A)。在 G. hirsutum 中,所有信号强度均较低,释放曲线表现为初始快速峰值后接更平缓的衰减过程。值得注意的是,m/z 45 在衰减阶段出现轻微的二次上升(图 5A)。
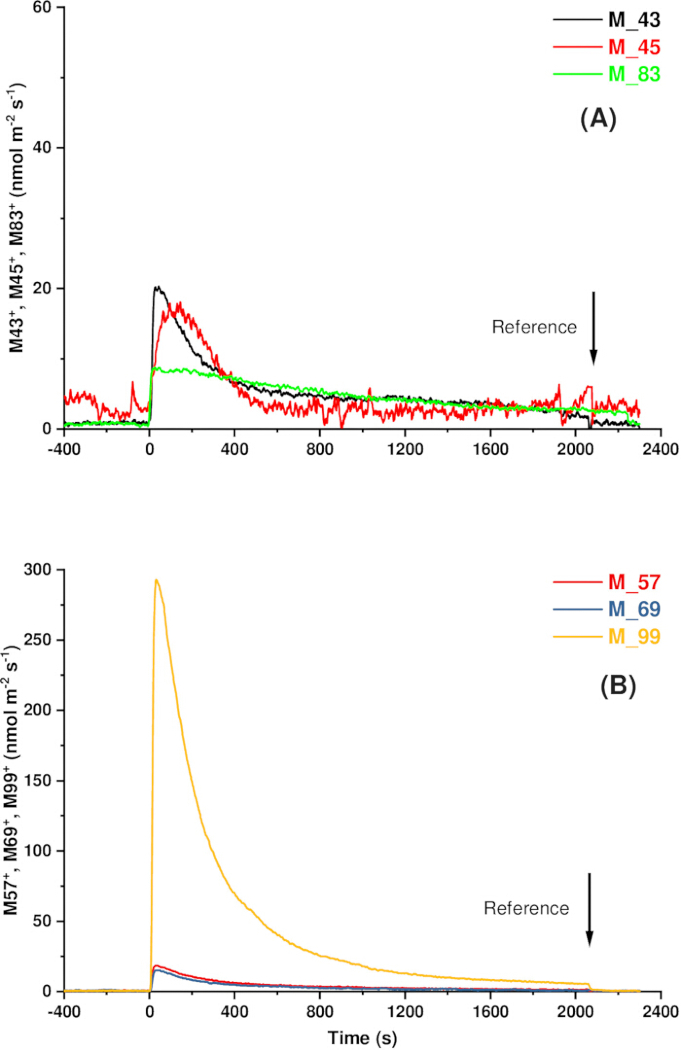
图4: 一株代表性的挪威槭(Acer platanoides)叶片在受伤后随时间变化的挥发性物质释放情况。 (A)质荷比(m/z)43、45 和 83。(B)质荷比(m/z)57、69 和 99。在 t = 0 时使用腔室内切割器对叶片进行切割(图1;切口长度10 mm)。采用质子转移反应飞行时间质谱仪(PTR-TOF-MS)连续测定挥发性物质的释放,同时使用Walz GFS-3000系统测量气体交换。图中信号为经过基线校正的代表性排放曲线,展示了本实验方案可达到的时间分辨率。有关从这些排放曲线中提取的代表性动力学参数,请参见表1。请点击此处查看该图的放大版本。
这些模式共同表明,伤口诱导的释放遵循一种特定化合物的级联反应,而非单一的同步爆发,其特点是先出现明显的早期组分,随后是更广泛且延迟的响应。
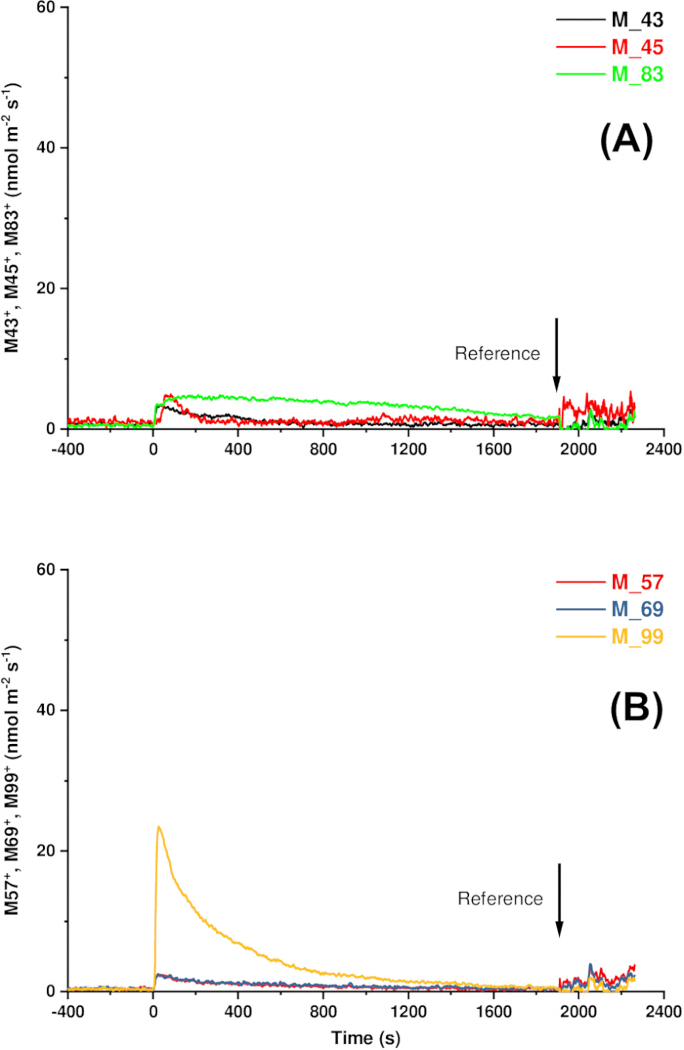
图5:陆地棉(Gossypium hirsutum)代表性叶片中随时间分辨的创伤诱导挥发物释放。(A)质荷比(m/z)43、45 和 83。(B)质荷比(m/z)57、69 和 99。在 t = 0 时使用腔室内切割器对叶片进行切割(图1;切口长度 10 mm)。采用质子转移反应飞行时间质谱仪(PTR-TOF-MS)连续测定挥发物释放,同时使用 Walz GFS-3000 系统测量气体交换。图中信号为经基线校正的代表性排放曲线,展示了本实验方案可实现的时间分辨率。有关从这些排放曲线中提取的代表性动力学参数,请参见表1。请点击此处查看该图的放大版本。
讨论
本方案可在受控实验条件下实现对伤口诱导的挥发物释放进行高时间分辨率的分析。通过将切割事件直接整合到叶片室中并持续监测挥发性信号(图1),该系统能够在不引入延迟采样、开启腔室或在测量装置外操作叶片所导致的干扰的情况下,捕捉挥发物释放的响应过程。这些干扰因素可能改变基于封闭系统的测量中释放峰的表观出现时间和峰值强度3,6,13,17。通过将创伤处理与测量过程保持在同一封闭环境中,本方案可真实保留释放的时间序列,从而实现对胁迫诱导的挥发性物质响应进行可靠的时间分辨定量分析。
| 物种 | 质子化分子质量 | 峰值幅度(nmol m-2 s-1) | 切割后开始(秒) | 峰值时间(s) | 最大斜率 (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
表1:叶片损伤后通过连续PTR-TOF-MS测量提取的释放峰值强度、释放起始时间、达峰时间及最大斜率的代表性数值。 这些数值包括峰值强度、释放起始时间、达峰时间以及最大斜率。这些数据展示了本实验方案所生成的动力学参数类型,仅作为概念验证示例,而非物种间的统计学比较。释放起始时间定义为切割后首次检测到高于损伤前基线的信号上升点,达峰时间为从切割至信号达到最大值的时间间隔,最大斜率为基线校正后信号的一阶导数的最大值。
不同采样位置的比较表明,采样构型显著影响所记录的信号(图2)。在反应室出口处直接采样可保留快速峰形形成过程,而在分析仪管路后端采样则导致峰形形成延迟且信号强度减弱。该效应在异戊二烯(m/z 69)中可忽略,在m/z 83中为中等程度,在α-蒎烯(m/z 137)中最显著,这与较重或更具反应活性的化合物在传输过程中产生的失真增加一致10,21。吸附至管壁表面、采样管路中的传输延迟以及传输过程中的化学相互作用均可能导致释放峰展宽或衰减,从而改变对挥发性物质动力学的解读9,12,21。
本方案的一个核心优势在于能够解析伤口诱导的挥发物释放的最初阶段。在所有物种中,这一早期阶段在切割后数秒内即出现,并以质荷比 m/z 99 处的爆发为主导,该信号峰不仅峰值最高,且最大斜率最陡(图3、 图4 和 图5; 表1)。峰值最大值出现在切割后约 40–57 秒内,显著早于以往研究中通常报道的 100–280 秒13,19,22。这一变化可能反映了在密闭腔室内实现了损伤与检测的同步化,从而最大限度减少了叶片操作和采样管路传输所导致的延迟。
通过在同一封闭环境中同步进行损伤与检测,本方案还揭示了一种片段水平的级联反应:切割后,m/z 43 和 57 立即上升,而 m/z 45 则较晚达到峰值,并表现出更广泛的衰减动力学(图3、 图4 和 图5; 表1)。尽管与气相色谱-质谱联用技术(GC-MS)相比,缺乏化合物水平的分离能力,但该顺序仍与此前基于质子转移反应(PTR)的研究结果一致。在GC-MS中,早期释放物主要由脂氧合酶途径产生的C6醛类主导,随后是下游的醇类及相关产物19,22。与此前PTR-TOF-MS研究一致,主导信号m/z 99对应于己烯醛类化合物,其在m/z 81处的脱水碎片已被确认为主要的早期信号,而m/z 83则反映了己烯醇和己醛的贡献22。这一序列进一步支持了基于分子大小和生物合成途径的释放层级关系,即较小且快速生成的含氧化合物早于较大或更复杂的分子释放13,23。
除了脂氧合酶来源的片段外,归属于异戊二烯的 m/z 69 信号在代表性样本中表现出明显的释放轨迹差异图3, 图4,以及 图5). Q. rubra 显示出显著的基线排放,而 A. platanoides 和 G. hirsutum 仅产生痕量水平,与其已知的排放特性一致24,25在不同物种中,异戊二烯对机械损伤的响应均较弱,这与它的 从头合成 合成 通过 MEP途径依赖于光合作用代谢,因此仅间接受到机械损伤的影响15.
这些快速动态反映了叶片对机械损伤已确立的生化响应。机械损伤会迅速激活脂氧合酶途径,通过膜脂质氧化产生C6挥发性物质及相关含氧化合物的瞬时脉冲5,7,17,22,23。这些释放表现出显著的非对称动态特征:组织破坏后迅速上升,随后进入较慢的衰减阶段16。在此系统中,这种非对称模式在数秒至数分钟的时间尺度上展开,如表1中总结的代表性动力学参数所示;而对离体叶片进行创伤处理的研究则报告了延迟的峰值13。本方法更早的时间分辨率能够捕捉信号起始阶段,减少时间上的信号弥散,并实现对上升相和衰减相的直接定量。这些动力学特征共同定义了完整的释放轨迹,而离散采样或延迟采样方法往往低估该过程5,15。
通过确保切口几何形状和损伤程度的一致性,进一步标准化密闭室内的切割操作可提高实验的可重复性,而切口长度直接决定了上述两个因素,并影响挥发性有机化合物(VOC)释放的强度5,18,22。然而,由于切割刀片在密闭室内的位置是固定的,切口的位置会受到叶片大小、形态以及维持气密性密封需求的影响。在条件允许的情况下,切口应位于侧脉之间的叶肉区域,同时避开中脉和其他主要叶脉。但是,对于较窄或较小的叶片,完全避开主要叶脉并不总能实现。由于主要叶脉受损会显著改变伤口诱导的VOC释放5,因此在同一实验的不同样品之间,切口位置应尽可能保持一致。
保持稳定的环境条件对于获得可重复的创伤诱导挥发性有机化合物(VOC)测量结果同样至关重要。由于VOC的生成、释放和运输受环境条件的影响,实验过程中所有测量均保持恒定的腔室温度、湿度、光照强度、CO2浓度和气流。对这些变量进行标准化可进一步最小化实验变异,提高创伤诱导VOC动力学的可重复性。此外,由于该方案完全兼容同步进行气体交换测量,未来应用可在相同实验条件下直接关联VOC排放动态与光合作用和蒸腾作用的变化26。此类测量有助于区分VOC生成的生化调控机制与影响挥发物释放的物理过程,包括创伤组织中水溶性含氧化合物蒸发增强的现象16。因此,只有在整个实验过程中环境条件、创伤几何形状以及植物材料(包括叶片发育阶段)均实现标准化的情况下,才应对不同处理或物种间的差异进行解释12。
尽管先前的室内实验方法证明了实时测量伤口诱导的挥发性有机化合物(VOC)的可行性,但也揭示了重要的技术局限性。不规则的切割、不一致的伤口大小以及对室内密封性的干扰导致了测量结果之间的变异性18,19。此外,这些方法通常依赖相对较大的室内体积,这会减缓空气交换速度,延迟峰值形成,并拓宽挥发性信号谱型22,27。这些效应在挥发性较低的化合物中更为显著,并可能随温度变化而改变21。相比之下,本实验方案中使用的较小室内(约8 mL的内部体积)减少了空气停留时间,从而促成了我们在测量中观察到的更 sharp 的信号起始(图1)。
该方案旨在用于受控的生理学实验,而非直接 原位 森林生态系统的监测。在环境条件明确定义的情况下,对附着的叶片进行测量,从而最大限度地减少实验变异性,并实现对伤口诱导的挥发性有机化合物(VOC)动力学的精确表征。该方法的野外应用将取决于便携式气体交换与VOC检测系统的可用性。然而,由于集成的切割机制只需少量修改即可适配不同的叶室构型,因此随着相关技术的发展,该方法应可轻松转移至便携式气体交换平台及其他实验平台。这种灵活性拓展了研究植物快速胁迫响应的机会,同时保持了准确表征VOC排放动态所需的时间分辨率,从而促进对叶片损伤后最早期生理与生化响应机制的深入研究。
披露
作者声明无利益冲突。
致谢
感谢爱沙尼亚研究理事会(PRG2207)以及爱沙尼亚教育与研究部(卓越研究中心 Agro-CropFuture,“未来气候下的农业生态与新型作物”,TK200U1)提供的经费支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 配备TD-20热脱附仪的气相色谱-质谱联用系统 | Shimadzu | GCMS-QP2010 Plus; TD-20 | 配备TD-20热脱附仪的气相色谱-质谱联用系统。www.shimadzu.com |
| GFS-3000气体交换系统 | Walz GmbH | GFS-3000 | 用于叶片气体交换测量。www.walz.com |
| 高纯度氦气(99.999%) | 本地供应商 | N/A | 用于吸附管 cartridge 的活化及气相色谱-质谱联用仪的热脱附。www.airliquide.com(或同等供应商)。 |
| 异戊二烯校准标准品 | Sigma-Aldrich Chemie GmbH | 定制 | 定制异戊二烯校准标准品(3.43 ppm)。www.sigmaaldrich.com |
| 低释放密封腻子 | 本地供应商 | N/A | 用于密封叶室上的切割器插入点。 |
| 多层不锈钢吸附管 cartridge | Supelco | 定制 | 长度10.5 cm × 内径3 mm;填充Carbotrap C(0.2 g,20–40目)、Carbopack B(0.1 g,40–60目)和Carbotrap X(0.1 g,20–40目)。用于挥发性有机化合物(VOCs)的可选离线气相色谱-质谱联用鉴定。www.sigmaaldrich.com |
| 便携式恒流空气采样泵 | SKC Inc. | 210-1003MTX | 便携式恒流空气采样泵。 |
| PTR-TOF 8000质谱仪 | Ionicon Analytik GmbH | PTR-TOF 8000 | 用于挥发性有机化合物(VOC)检测。www.ionicon.com |
| 银焊丝 | 本地供应商 | N/A | 用于将剃须刀片固定在不锈钢杆上。 |
| 弹簧黄铜片(0.2 mm厚度) | 本地供应商 | N/A | 用于固定切割器的柔性支撑件。 |
| 不锈钢杆(1 mm直径) | 本地供应商 | N/A | 切割器支撑杆。 |
| 不锈钢注射器针头(1.6 mm外径) | 本地供应商 | N/A | 用于容纳旋转切割刀片的外壳。 |
| 聚四氟乙烯(Teflon)塞子 | 本地供应商 | N/A | 用于密封切割器外壳,同时允许其旋转。 |
| 聚四氟乙烯(Teflon)T型接头 | 本地供应商 | N/A | 安装在叶室出口附近,以缩短管路长度。 |
| 聚四氟乙烯(Teflon)管(FEP或PTFE) | 本地供应商 | N/A | 连接叶室与检测器之间的挥发性有机化合物(VOC)采样管线。 |
| 挥发性有机化合物(VOC)校准气体混合物 | Ionimed GmbH | 定制 | 每种化合物浓度为1 ppm,溶于N2中;用于PTR-TOF-MS校准。www.ionimed.com |
参考文献
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
重印与许可
本文已发表
视频即将推出