糖尿病肾病(DN)涉及线粒体功能障碍。通过转录组学、网络药理学和机器学习,我们鉴定出 CAT、FABP1、MAOA 和 MAOB 为与女贞子(Ligustri Lucidi Fructus)相关的候选线粒体生物标志物。在 db/db 小鼠中,女贞子上调了 CAT 和 MAOA 的表达,支持进一步开展机制研究。
本文内容
摘要
摘要
线粒体功能障碍及线粒体内过度的氧化应激是驱动糖尿病肾病(DN)肾小管损伤的关键病理因素。尽管 女贞子 (LLF)传统上被用于治疗糖尿病肾病(DN),但其涉及的机制,特别是与线粒体相关基因和通路相关的机制,目前仍知之甚少。本研究通过对GSE142025数据集进行差异表达分析,鉴定与DN相关的差异表达基因(DEGs)。通过整合四种机器学习模型的输出结果筛选特征基因。在两个数据集中均表现出显著差异表达且表达模式一致的基因进一步通过受试者工作特征(ROC)曲线分析进行评估。曲线下面积(AUC) > 在两个数据集中,筛选出的候选生物标志物定义为0.7。随后进行了功能富集分析、免疫浸润分析、网络构建分析以及分子对接分析。采用DN小鼠模型评估血糖、尿微量白蛋白、组织病理学变化以及候选生物标志物的RT-qPCR表达水平。 CAT 和 MAOA 显著上调 在体候选生物标志物富集于核糖体功能、缬氨酸、亮氨酸和异亮氨酸降解、细胞因子-细胞因子受体相互作用以及过氧化物酶体相关通路。这些标志物与CD8+ T细胞和活化肥大细胞呈负相关,而与活化自然杀伤细胞和初始B细胞呈正相关。杨梅素、β-谷甾醇和埃里奥狄克替醇与候选生物标志物的结合能均低于-5 kcal/mol。CAT和MAOA是具有潜力的候选分子,值得进一步开展机制研究。
引言
糖尿病肾病(DN)是全球终末期肾病的主要病因,也是糖尿病最常见的并发症之一。其病理特征表现为肾小球和肾小管间质中细胞外基质过度积聚,以及肾内血管的增厚和硬化2。DN 常伴随蛋白尿和高血压3。该病的发生发展与长期高血糖引起的血管内皮细胞损伤、炎症反应加剧以及氧化应激水平升高密切相关4。目前,DN 的发病率在全球范围内呈上升趋势,尤其在中老年糖尿病患者中更为显著。随着病情进展,DN 可导致终末期肾功能衰竭,甚至引发心血管并发症,显著影响患者的生活质量和预后5。尽管在 DN 的诊断和治疗方面已取得一定进展,但仍缺乏可用于早期准确诊断的候选生物标志物,且尚无有效逆转其病理进程的治疗策略。因此,迫切需要开发新型、靶向性的抗 DN 药物。
线粒体对细胞生物能量学、代谢前体合成、钙稳态、活性氧(ROS)生成、免疫信号传导以及细胞凋亡至关重要,这些过程对于维持细胞和机体的稳定性均不可或缺6。作为细胞的“能量工厂”,线粒体在糖酵解、三羧酸循环和氧化磷酸化等基本过程中发挥关键作用7。肥胖会破坏三羧酸循环(Krebs循环)和线粒体呼吸链,导致线粒体功能障碍并增加ROS的产生。线粒体呼吸链中ROS水平升高可诱导氧化应激,从而加剧与肥胖相关的炎症反应,并促进细胞凋亡8。近期研究表明,线粒体功能障碍在糖尿病肾病(DN)的发生和发展中具有重要作用,包括能量代谢紊乱、过量ROS生成以及细胞凋亡信号通路的增强9。持续性线粒体功能障碍会加速肾脏疾病的进展10。因此,改善线粒体功能可能成为对抗糖尿病肾病的一种关键保护策略。
女贞子 (LLF)是一种干燥成熟的果实,来自 黄杆菌科 以滋补肝肾、乌发明目著称的家族,从该家族植物中提取的一种天然杂多糖已被鉴定,显示出其在防治肾纤维化方面的潜力11近年来,低强度聚焦超声(LLF)在糖尿病肾病(DN)治疗中的应用受到越来越多关注,并已显示出显著的肾脏保护作用11,12,13此外,LLF与线粒体之间复杂的相互关系已得到广泛研究和验证。值得注意的是,一项研究表明,LLF通过激活AMPK信号通路调节线粒体功能,从而发挥其有益作用。14该机制能有效保护线粒体免受氧化应激造成的损伤。这些发现进一步强调了LLF在维持细胞能量代谢和增强细胞对氧化应激的抵抗能力方面的重要作用。然而,其确切的治疗机制,特别是关于线粒体功能恢复的机制,目前仍不甚清楚。
本研究旨在阐明六味地黄丸(LLF)对糖尿病肾病(DN)线粒体功能治疗作用的生物学机制。通过使用生物信息学工具检索公共数据库,结合转录组数据和活性成分信息,筛选出与LLF肾脏保护作用相关的候选生物标志物。进一步的分析,包括免疫浸润、与临床特征的关联、m6A RNA修饰、功能富集、调控网络构建以及分子对接,提示这些候选生物标志物在DN治疗过程中调控线粒体功能中发挥关键作用。体内验证实验进一步证实了这些标志物的重要性。该综合性分析加深了我们对LLF治疗DN机制的理解,并为基于线粒体功能障碍开发新型治疗靶点提供了坚实基础。
方案
数据收集
与糖尿病肾病(DN)相关的 GSE142025 和 GSE96804 数据集的基因表达矩阵及相应的临床数据,均从基因表达综合数据库(Gene Expression Omnibus, GEO)获取(https://www.ncbi.nlm.nih.gov/geo/)15。训练集(GSE142025)包含来自27名DN患者和9名对照个体的肾组织样本,测序平台为GPL20301。验证集(GSE96804)包含41名DN患者和20名对照个体的测序数据,处理平台为GPL17586。两个数据集均聚焦于肾组织;其中GSE96804数据集特别针对肾小球,即肾脏的主要滤过单位(图1)。GSE142025数据集(训练集)包含全肾组织样本,提供了DN转录组景观的全面视图;而GSE96804数据集(验证集)则专门针对肾小球组织,即肾小球滤过损伤的主要发生部位。由于两个数据集在平台和组织类型上存在差异,未进行直接合并,因此未实施批次效应校正,而是独立进行跨数据集验证。筛选在两个数据集中具有方向一致的变化且曲线下面积(AUC)大于0.7的基因作为稳健候选基因,以支持其在不同肾组织区室间的可推广性。
从 MitoCarta3.0 数据库(https://www.broadinstitute.org/mitocarta)中提取了共计 1,136 个线粒体相关基因(MRGs)。利用中医药系统药理学(TCMSP)数据库(http://sm.nwsuaf.edu.cn/lsp/tcmsp.php),根据口服生物利用度(OB)阈值 ≥30% 和类药性(DL)阈值 ≥0.18 的标准,预测了 LLF 的活性成分。随后,使用 Swiss Target Prediction 数据库(http://www.swisstargetprediction.ch/)预测这些活性成分的潜在靶基因。
差异表达分析
使用limma软件包(v3.54.1)对GSE142025(DN vs. 对照)进行差异表达分析,显著性标准设定为 P.adj < 0.05 和 |log2FoldChange| > 0.516 使用 ggplot2(v 3.3.6)和 ComplexHeatmap(v 2.14.0)软件包绘制火山图和热图17,18分别。 将差异表达基因(DEGs)、代谢相关基因(MRGs)及活性成分的潜在靶基因取交集,交集基因定义为候选基因。利用Cytoscape软件(v 3.9.0)构建活性成分与候选基因之间的网络关系。19.
功能富集分析与蛋白质-蛋白质相互作用(PPI)网络构建
使用 clusterProfiler 软件包(v 4.6.2)对候选基因进行基因本体(Gene Ontology, GO)和京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes, KEGG)通路富集分析,以探索其生物学功能及相关信号通路(P.adjust < 0.05)。随后将候选基因导入 STRING 数据库(https://cn.string-db.org/)获取蛋白质-蛋白质相互作用关系(置信度 ≥ 0.4),并利用 Cytoscape(v 3.9.0)20构建PPI网络。
机器学习
基于 GSE142025 数据集,使用 caret 软件包(v6.0-93)实现了四种机器学习算法,包括随机森林(RF)、k-最近邻(KNN)、偏最小二乘法(PLS)以及基于径向基核函数的支持向量机(SVM)。将前期分析中鉴定出的候选基因作为预测变量,疾病状态(DN 或对照)作为结局变量。对于 KNN 模型,采用 trainControl 函数进行 10 折交叉验证,并设置 tuneLength = 10。RF 模型设置为 20 棵树(ntree = 20);PLS 和 SVM 模型则采用 caret 原始工作流程中的默认参数进行拟合。
使用 DALEX 软件包(v2.4.3)评估模型残差分布。随后利用 DALEX 的 variable_importance 函数进行基于置换的变量评估,并指定均方根误差(RMSE)作为损失函数。所得的 dropout_loss 表示在对相应变量进行置换后获得的 RMSE 值21,22。在原始分析流程中,保留所有模型中 dropout_loss < 0.281 的变量,并将四个模型共有的基因定义为后续验证的共识特征基因。
四种机器学习模型主要用于特征优先排序,而非构建最终的临床分类器。因此,在发现数据集和验证数据集中,均通过ROC分析在单个基因水平上进一步评估诊断区分能力。
候选生物标志物的鉴定
在 GSE142025 和 GSE96804 中,采用 Wilcoxon 检验评估特征基因在 DN 样本与对照样本之间的表达差异。仅包含具有显著差异表达的基因(P < 0.05)且在两个数据集中表达趋势一致的基因被选用于受试者工作特征(ROC)曲线分析。使用pROC软件包(v1.18.0)绘制ROC曲线并计算曲线下面积(AUC),筛选出AUC > 两组数据集中均为0.7,被分类为候选生物标志物23.
基因集富集分析(GSEA)
使用GSE142025数据集,通过GSEA进一步探究候选生物标志物相关的生物学功能及信号通路。首先,利用psych包(v2.2.9)对候选生物标志物与所有其他基因进行Spearman相关性分析。24. 计算并排序相关系数(从高到低)。参考基因集为分子特征数据库(Molecular Signatures Database,MSigDB,https://www.gsea-msigdb.org/gsea/msigdb/)中的 c2.cp.kegg.v2023.1.Hs.symbols.gmt。随后使用 clusterProfiler 软件包(v4.6.2)进行基因集富集分析(GSEA),以评估排序后的基因在背景基因集中的富集情况。应用了多重检验校正 通过 FDR 方法,以及校正后的 P-值(表示为 P.adjust)若满足以下条件则被视为具有显著性: < 0.05.
m6A 修饰分析
为研究候选生物标志物的 RNA 甲基化修饰,利用 SRAMP 数据库(http://www.cuilab.cn/sramp/)预测候选生物标志物上的 m6A 修饰位点,重点关注其二级结构中的高置信度位置。随后使用 ENCORI 数据库(https://starbase.sysu.edu.cn/)鉴定与候选生物标志物相互作用的 m6A 修饰蛋白,采用 |HepG2 (shRNA)| > 1 参数筛选关键蛋白。再利用 RPISeq 数据库(http://pridb.gdcb.iastate.edu/RPISeq/)预测关键蛋白与候选生物标志物之间相互作用的可能性。将两者的 RNA 序列以纯文本格式上传,以生成 RF 和 SVM 分类器的预测得分。当得分超过 0.525 时,认为存在显著相互作用。SRAMP 分析采用“高”阈值进行 m6A 位点预测,使用“转录本”模式及默认参数。ENCORI 分析使用“miRNA-mRNA”相互作用功能,并设置“HepG2 (shRNA)”参数 > 1。RPISeq 分析采用 RF 分类器及默认参数;得分 > 0.5 表示存在正向相互作用。以上均为计算预测结果,并非肾脏组织中 m6A 修饰或 RNA-蛋白相互作用的实验验证证据。HepG2 shRNA 筛选标准源自 ENCORI 预计算数据集,可能无法反映肾脏特异性的调控情况。
免疫浸润分析
采用CIBERSORT算法估算GSE142025数据集中对照组和DN样本中22种免疫细胞类型的相对比例,并利用ggplot2软件包(v3.3.6)生成热图进行可视化展示26使用LM22特征矩阵运行CIBERSORT,设定1,000次置换检验,并禁用分位数归一化(微阵列数据推荐设置)。CIBERSORT p值小于0.05的样本 < 0.05 的样本被保留用于进一步分析。CIBERSORT 通过整体肾脏组织表达数据估算免疫细胞比例,但无法区分特定区室的浸润情况(例如肾小球与肾小管间质区),也无法区分浸润性白细胞与常驻免疫细胞。因此,所报告的相关性均基于组织水平,需通过空间分析方法加以验证。不同丰度免疫细胞与候选生物标志物之间的斯皮尔曼相关性分析使用 psych 软件包进行。
网络构建与分子对接
利用 miRNet 数据库(https://www.mirnet.ca)预测与候选生物标志物相互作用的微小 RNA(miRNA)。随后,通过 TarBase(http://www.diana.pcbi.upenn.edu/tarbase)和 starbase(http://starbase.sysu.edu.cn/)数据库预测靶向上述 miRNA 的长链非编码 RNA(lncRNA)。筛选两个数据库共同预测的 lncRNA 用于构建调控网络。使用 Cytoscape 软件构建 lncRNA-miRNA-mRNA 调控网络。选择可靶向候选生物标志物的潜在活性成分,构建活性成分-生物标志物网络。此外,将 GSEA 分析中鉴定出的活性成分、候选生物标志物及信号通路整合至 Cytoscape,构建活性成分-生物标志物-通路网络。
采用分子对接分析评估潜在活性成分与候选生物标志物之间的结合亲和力。生物标志物蛋白的三维结构从结构生物信息学研究协作实验室蛋白质数据库(RCSB PDB,https://www.rscb.org/pdb)获取,格式为PDB文件。潜在活性成分的二维结构从PubChem数据库(http://pubchem.ncbi.nlm.nih.gov)以SDF格式获取。分子对接使用CB-Dock平台(http://clab.labshare.cn/cb-dock/php/blinddock.php)进行。结合能低于-5 kcal/mol表示具有较强的结合亲和力27。
制备与鉴定 女贞子
此处, 女贞子 (LLF)指该植物的干燥成熟果实 女贞 W. T. Aiton (木犀科). 植物材料根据《中华人民共和国药典》进行鉴定,凭证标本编号为20240506、20240911、20241103,保存于山西中医药大学。
制备煎剂时,取200 g合格的LLF饮片,加入1,000 mL蒸馏水,于室温下浸泡30 min。混合物先武火煮沸,再文火煎煮60 min。收集滤液,药渣再加1,000 mL蒸馏水重复煎煮60 min。合并两次滤液,过滤、离心,并减压浓缩,得到终浓度为1 g生药/mL的储备液(总体积为100 mL)。制备好的煎剂短期使用可储存于4 °C,长期保存则置于−20 °C。LLF及其煎剂的质量均严格按照《中国药典》标准进行鉴定与验证,以确保实验的可靠性与可重复性。
为进行定性鉴定,采用薄层色谱法。简言之,取适量制备好的煎液离心,上清液用甲醇萃取。滤过后,将供试品溶液与齐墩果苷对照品溶液点于同一硅胶G薄层板上。展开、干燥后,在紫外光下检视,供试品溶液的斑点颜色和位置与对照品一致,证实了连翘(LLF)特征性生物活性成分的存在。
为进行定量质量控制,采用高效液相色谱法进行检测。分析使用C18色谱柱,以甲醇-水为流动相。检测波长设定为224 nm。根据标准曲线测定煎液中特女贞苷的含量。结果表明所制备的煎液化学成分稳定且均一,确保了动物干预实验期间药物质量的一致性。
动物实验
十二只SPF级雄性db/db小鼠(8–9周龄)和六只同龄的db/m小鼠饲养于山西中医药大学SPF级动物实验中心。实验前,动物在12小时光照/12小时黑暗循环条件下适应环境7天, 随意摄取 可自由获取食物和水。本研究经山西中医药大学伦理委员会批准(批准号:2022DW167)。出现以下表现的动物 >体重减轻20%、出现濒死状态或无法接触食物和水的小鼠,均在预定实验终点前实施人道安乐死。实验结束时,所有剩余小鼠均按照机构规程,先通过腹腔注射戊巴比妥钠实施安乐死,随后进行颈椎脱位处死。
在适应期结束后,通过尾静脉血糖水平≥16 mmol/L以及尿微量白蛋白试纸检测呈阳性所提示的微量白蛋白尿,确认db/db小鼠糖尿病肾病(DN)模型建立成功。DN模型成功建立后,将db/db小鼠随机分为两组(每组n = 6):DN模型组(DN)和LLF治疗组(Treatment)。此外,以db/m小鼠(n = 6)作为对照组(Control)。给药剂量的选择基于既往在糖尿病大鼠中进行的LLF药效学研究,并通过体表面积标准化法换算为人体等效剂量28。对照组和DN模型组给予蒸馏水,治疗组则给予3.5 g/kg的LLF,连续给药8周。给药8周后,处死所有小鼠,收集血清、尿液和肾组织用于后续检测。
血液和尿液指标
使用全自动血液生化分析仪检测血清葡萄糖水平。根据试剂盒说明书(补充文件1)测定尿液微量白蛋白浓度。
小鼠肾脏组织的病理学观察
肾脏组织经处理后进行组织病理学检查。组织经4%多聚甲醛固定后,进行洗涤、脱水、石蜡包埋并切片。随后进行苏木精-伊红(HE)染色,并在光学显微镜下观察染色切片,以评估病理变化。
逆转录定量聚合酶链式反应(RT-qPCR)
采用RT-qPCR检测小鼠肾组织中候选生物标志物的表达水平。按照试剂盒说明书提取总RNA,并测定RNA浓度和质量(表1)。使用cDNA合成试剂盒将提取的RNA反转录为cDNA。根据表1中列出的引物对进行扩增,以GAPDH作为内参基因。相对表达水平采用2−ΔΔCt法进行计算13,26。
统计分析
所有统计分析均使用 R 软件(版本 4.2.2)以及相应实验步骤所需的软件完成。除非另有说明,所有统计检验均为双侧检验,当 P < 0.05 时认为差异具有统计学显著性。转录组差异表达分析使用 limma 软件包进行。将调整后 P < 0.05 且绝对 log2 倍数变化大于 0.5 的基因定义为差异表达基因。
对于独立的DN样本与对照样本之间候选基因表达的比较,在原始分析流程中指定的情况下,采用非参数Wilcoxon秩和检验。候选生物标志物与免疫细胞比例之间的相关性通过Spearman秩相关分析进行评估。
实验数据以均值 ± 标准差表示。当满足参数分析的假设条件时,采用单因素方差分析对三个独立动物组之间进行比较。对于事后比较,当方差齐性时使用最小显著性差异检验,而当方差不齐时则使用Dunnett's T3检验。基线和第8周的药效学测量结果被分别分析和呈现;未对组别与时间的交互作用进行推断。用于生物信息学和机器学习分析的R脚本及原始数据见补充文件1。
结果
为了系统地研究LLF在治疗DN过程中与线粒体相关的潜在候选生物标志物,我们设计了一个四阶段分析工作流程(图1)。在第一阶段,我们将来自GSE142025数据集(训练集,全肾组织,n=36)和GSE96804数据集(验证集,肾小球,n=61)的转录组数据与来自MitoCarta 3.0数据库的1,136个线粒体相关基因以及来自TCMSP数据库的9种活性成分的517个预测靶基因进行整合。通过这三个基因集的交集分析,获得9个候选基因。在第二阶段,采用四种机器学习模型(RF、KNN、PLS和SVM),以RMSE < 0.281为阈值,对特征基因进行优先排序。通过ROC分析进行跨数据集验证(两个数据集的AUC > 0.7),最终确定四个候选生物标志物:CAT、FABP1、MAOB和MAOA。在第三阶段,我们进行了GSEA分析以识别富集的KEGG通路,使用CIBERSORT进行免疫浸润分析,预测m6A修饰,并构建了lncRNA-miRNA-mRNA、活性成分–生物标志物以及活性成分–生物标志物–通路网络,随后进行分子对接分析。在第四阶段,我们在db/db糖尿病肾病小鼠模型中评估了LLF的药效学作用以及四个候选生物标志物mRNA表达水平的变化。
LLF 治疗 DN 的候选基因筛选
在 GSE142025 数据集中,共鉴定出糖尿病肾病(DN)组与对照组之间 3,810 个差异表达基因(DEGs),其中包括 1,904 个上调基因和 1,906 个下调基因 (图 2A,B)。通过 TCMSP 数据库预测出 LLF 的 13 种活性成分,分别为 β-谷甾醇(beta-sitosterol)、山奈酚(kaempferol)、二氢槲皮素(taxifolin)、灵芝苷 D(Lucidumoside D)、灵芝苷 D_qt(Lucidumoside D_qt)、(20S)-24-烯-3,20-二醇-3-乙酸酯((20S)-24-ene-3,20-diol-3-acetate)、柚皮素(eriodictyol)、丁香脂素二葡萄糖苷_qt(syringaresinol diglucoside_qt)、灵芝碱(Lucusculine)、奥里托苷(Olitoriside)、奥里托苷_qt(Olitoriside_qt)、木犀草素(luteolin)和槲皮素(quercetin)(表 2)。其中,灵芝苷 D_qt、(20S)-24-烯-3,20-二醇-3-乙酸酯、丁香脂素二葡萄糖苷_qt 和奥里托苷_qt 这四种成分未预测到任何潜在靶基因,其余九种成分共预测出 517 个潜在靶基因。通过将 3,810 个差异表达基因、1,136 个代谢相关基因(MRGs)与 517 个潜在靶基因取交集,最终确定了 9 个候选基因:GPX1、BAX、CASP8、MAOA、MAOB、CAT、AKR1B10、ALDH2 和 FABP1 (图 2C)。随后构建了活性成分-候选基因相互作用网络 (图 2D)。这 9 个候选基因共富集到 341 个 GO 条目,包括对有毒物质的响应、有机羟基化合物分解代谢过程以及细胞解毒作用等 (图 2E)。此外,它们还关联了 52 条 KEGG 通路,如色氨酸代谢、神经退行性疾病相关通路和组氨酸代谢等 (图 2F)。
LLF中DN治疗候选生物标志物的筛选
蛋白质-蛋白质相互作用(PPI)网络显示了七个节点和八条边,其中MAOA、ALDH2、MAOB和AKR1B10存在相互作用(图3A)。在四种机器学习模型中,RMSE值均小于0.281的基因为特征基因:CAT、MAOB、MAOA、BAX和FABP1(图3B-E)。表达分析显示,在DN组与对照组之间,CAT、FABP1、MAOB和MAOA的表达水平存在显著差异,且在GSE142025和GSE96804两个数据集中具有一致性(图3F,G)。此外,这两个数据集中ROC曲线分析的AUC值均超过0.7,表明这些基因能够有效区分DN样本与对照样本,可作为LLF中DN治疗的候选生物标志物(图4A-H)。
候选生物标志物在炎症和免疫相关通路中显著富集
GSEA 鉴定出四个候选生物标志物,在趋化因子信号通路及细胞因子-细胞因子受体相互作用中显著富集 (图 5A-D)。其中,过氧化物酶信号通路与 CAT、MAOA 和 MAOB 基因表现出显著相关性。
候选生物标志物与免疫细胞的相关性
在DN样本与对照样本之间,观察到九种免疫细胞类型的表达存在显著差异——初始B细胞、M0型巨噬细胞、M1型巨噬细胞、M2型巨噬细胞、活化肥大细胞、活化自然杀伤(NK)细胞、静息记忆CD4+ T细胞、初始CD4+ T细胞以及CD8+ T细胞(P < 0.05)(图6A,B)。初始B细胞与活化NK细胞之间存在显著正相关(cor = 0.6),而初始B细胞与活化肥大细胞之间则存在显著负相关(cor = -0.69)(图6C)。所有候选生物标志物均与CD8+ T细胞和活化肥大细胞呈强负相关,而与活化NK细胞和初始B细胞呈正相关(图6D)。
关键m6A修饰蛋白与候选生物标志物的相互作用
m6A RNA甲基化修饰深刻影响RNA的合成与代谢,并参与多种疾病的发病机制29。候选生物标志物中m6A修饰位点的位置及其在二级结构中的高置信度位置如图7A-H所示。进一步分析发现,与CAT 相互作用的关键m6A修饰蛋白包括AQR和RBM22,而FABP1 与SF3A3和AQR均存在相互作用。MAOA 被发现与IGF2BP3和IGF2BP2相互作用,MAOB 则与TIA1相互作用(表3)。
有利的 计算机模拟 LLF治疗DN中对杨梅素、β-谷甾醇和埃里奥苷的结合预测
在 miRNet 中, CAT 预测可与24个miRNA相互作用,而 FABP1 与5种miRNA相关。此外, MAOB 和 MAOA 分别与29个和26个miRNA相关。其中,23个lncRNA在TarBase和Starbase数据库中均有记录。随后构建了包含4个候选生物标志物、74个miRNA和23个lncRNA的lncRNA-miRNA-mRNA调控网络 (图8A)潜在活性成分包括木犀草素、β-谷甾醇、柚皮素、山奈酚、槲皮素和花旗松素,这些成分可作用于候选生物标志物 (图8B)此外,基于活性成分、候选生物标志物以及GSEA分析中鉴定出的前五条通路,构建了活性成分-生物标志物-通路网络。 (图8C)例如,花旗松素靶向 CAT 在过氧化物酶体途径中。过氧化物酶体途径中各组分之间的结合能 CAT 和紫杉醇(-8.8 kcal/mol), FABP1 和 β-谷甾醇(-8.1 kcal/mol),以及 MAOB 且埃里奥多罗醇(-9.8 kcal/mol)均低于 -5 kcal/mol,表明这些候选生物标志物与其相应活性成分之间具有较强的亲和力27. 税皮枫、β-谷甾醇和埃里奥苷被鉴定为具有理想特性的潜在活性成分 计算机模拟 LLF 治疗 DN 中的结合预测 (图8D-F)然而,这些成分是作为数据库预测的组分呈现的,而非观察到的生物活性中间产物的确认形式 体内 效应。
在 DN 小鼠模型中验证候选生物标志物
LLF 治疗 DN 小鼠的药效动力学评价
在给药期间,监测小鼠的血糖和尿微量白蛋白水平(图 9A-D)。与对照组相比,DN 模型组小鼠的血糖和尿微量白蛋白显著升高(P < 0.01);与 DN 模型组相比,给药 4 周后治疗组小鼠的血糖显著降低(P < 0.01),给药 8 周后治疗组小鼠的尿微量白蛋白显著降低(P < 0.05)。结果表明,LLF 对治疗 DN 具有潜在益处。
LLF治疗糖尿病肾病小鼠的病理学评价
经HE染色后,对照组肾组织中肾小球结构清晰。相比之下,糖尿病肾病(DN)模型组与正常组相比,出现肾小球核固缩和嗜碱性增强,并伴有肾小球周围炎性细胞浸润。LLF治疗可减轻db/db小鼠肾脏的病理损伤(图9E)。
DN 小鼠中候选生物标志物表达的 RT-PCR 分析
在成功建立 DN 小鼠模型并观察到 LLF 治疗显著改善症状后,进一步采用 RT-qPCR 分析候选生物标志物的变化。与对照组相比,DN 组中 CAT 和 MAOA 的表达显著降低(P < 0.05 或 P < 0.001)。相反,治疗组的 CAT 和 MAOA 表达水平显著高于 DN 组(P < 0.05)。然而,各组之间 MAOB 和 FABP1 的表达未见统计学显著差异 (图 9F-I)。
数据可用性
本研究中分析的基因表达数据集可从基因表达综合数据库(Gene Expression Omnibus, GEO)公开获取,登录编号为 GSE142025 和 GSE96804。用于生物信息学分析的 R 脚本以及实验原始数据(血糖、尿微量白蛋白和 RT-qPCR 数据)均提供于补充文件 1中。本研究中使用的其他所有数据库、软件和网络资源均列于材料表中。
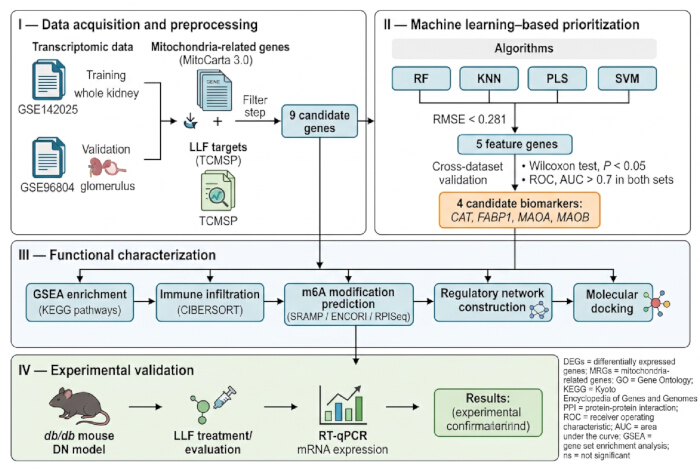
图1:研究的工作流程。 整合转录组数据集、线粒体相关基因以及Ligustri Lucidi Fructus的预测靶基因,以鉴定候选基因。随后采用四种机器学习算法对特征基因进行排序,并在db/db小鼠中进行跨数据集验证、功能表征和实验验证。缩写:DN = 糖尿病肾病;DEGs = 差异表达基因;MRGs = 线粒体相关基因;LLF = Ligustri Lucidi Fructus;RF = 随机森林;KNN = k-最近邻;PLS = 偏最小二乘法;SVM = 支持向量机;RMSE = 均方根误差;GSEA = 基因集富集分析;RT-qPCR = 反转录定量聚合酶链式反应。请点击此处查看该图的放大版本。
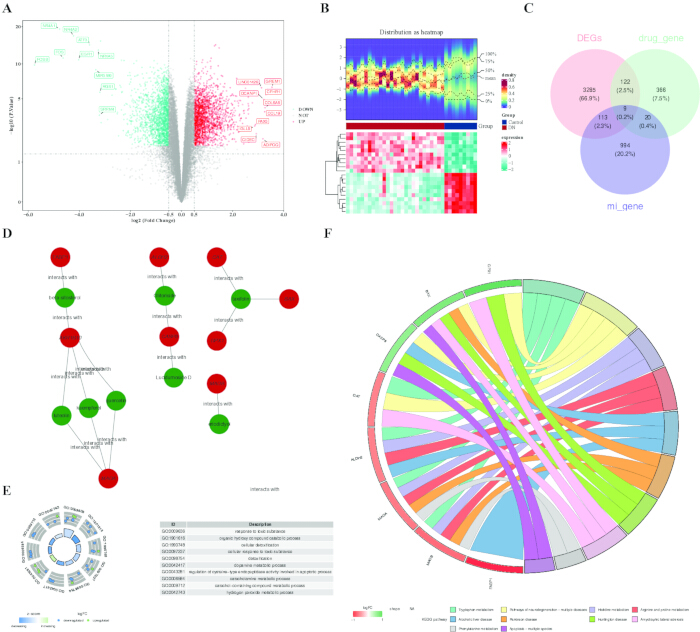
图2LLF治疗DN候选基因的筛选与功能鉴定 (A) 火山图显示 GSE142025 中 DN 样本与对照样本之间差异表达的基因。B|log2FC| 排序的前 10 个上调基因和前 10 个下调基因的热图。C维恩图显示差异表达基因(DEGs)、甲基化相关基因(MRGs)与预测的LLF靶基因的交集。D) 活性成分-候选基因网络。E) 候选基因的基因本体富集分析。柱状图高度表示富集显著性,z 分数表示功能调控的预测方向。F京都基因与基因组百科全书(KEGG)通路富集分析候选基因。缩写:DN = 糖尿病肾病;LLF = 女贞子;DEGs = 差异表达基因;MRGs = 线粒体相关基因;GO = 基因本体;KEGG = 京都基因与基因组百科全书。 请点击此处以查看此图的放大版本。
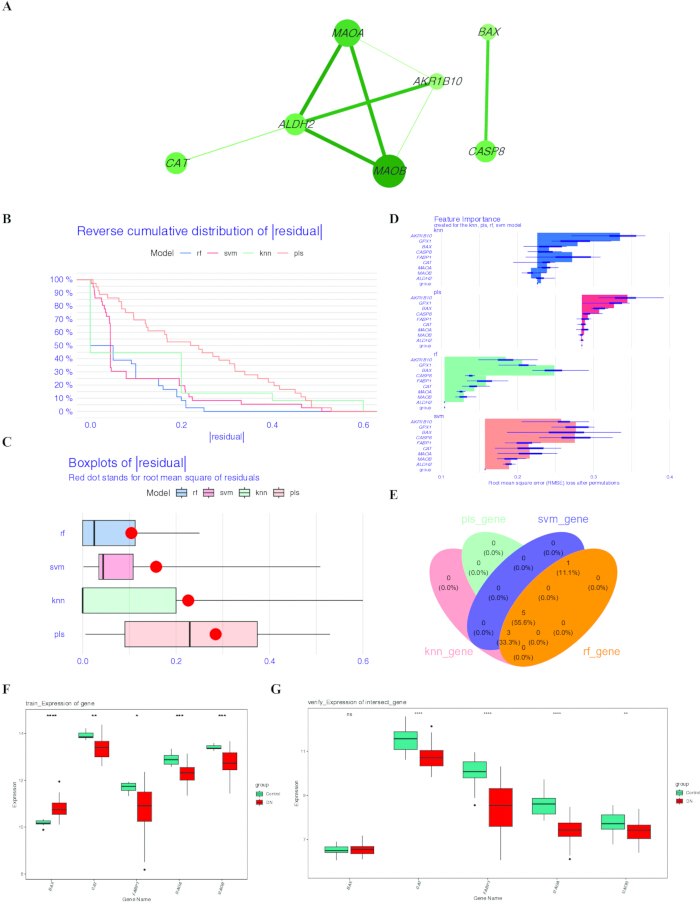
图3:基于机器学习的候选生物标志物鉴定。(A)候选基因编码蛋白的蛋白质–蛋白质相互作用网络。(B)RF、KNN、PLS和SVM模型残差的逆累积分布。(C)四个模型残差分布的箱线图;红点表示均方根误差。(D)基于均方根误差(RMSE)的候选基因在四种机器学习模型中的重要性。(E)在所有四种模型中满足RMSE < 0.281标准的特征基因的交集。(F,G)所选特征基因在GSE142025和GSE96804中的表达情况。缩写:RF = 随机森林;KNN = k-最近邻;PLS = 偏最小二乘法;SVM = 支持向量机;RMSE = 均方根误差。请点击此处查看该图的放大版本。
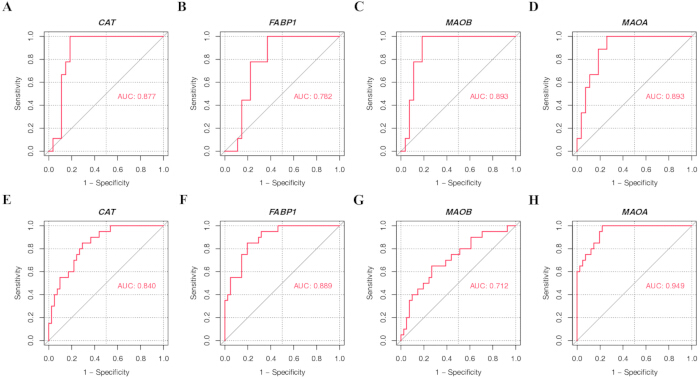
图4:四种候选生物标志物的受试者工作特征曲线。 CAT、FABP1、MAOB 和 MAOA 在(A-D)GSE142025 训练数据集和(E-H)GSE96804 验证数据集中的 ROC 曲线。AUC 表示受试者工作特征曲线下面积。缩写:ROC = 受试者工作特征;AUC = 曲线下面积。 请点击此处查看该图的放大版本。
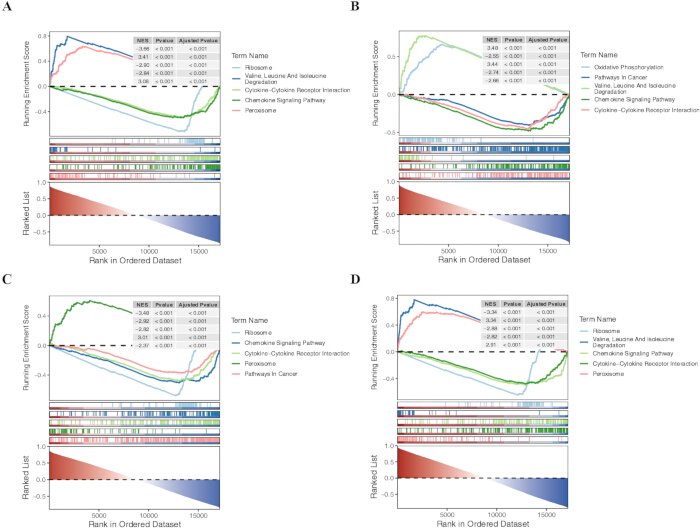
图5:候选生物标志物的基因集富集分析。 GSEA结果显示在GSE142025数据集中与(A)CAT、(B)FABP1、(C)MAOA 和(D)MAOB 显著相关的KEGG通路富集情况。缩写:GSEA = 基因集富集分析;KEGG = 京都基因与基因组百科全书。 请点击此处查看该图的放大版本。
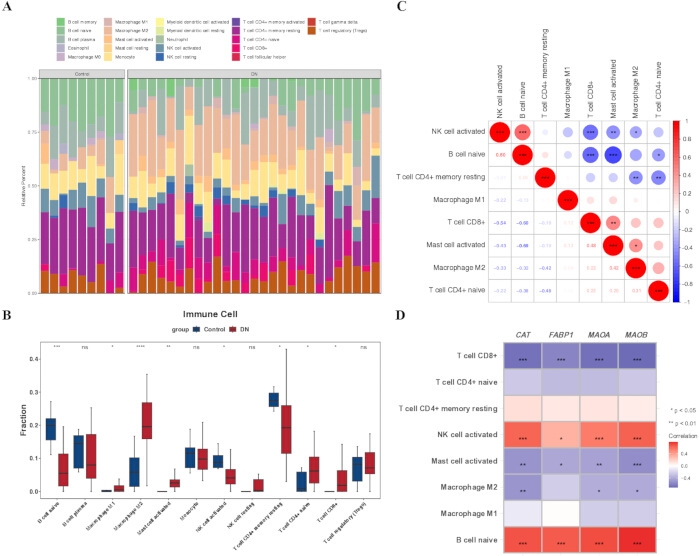
图6:糖尿病肾病中免疫细胞浸润及其与候选生物标志物的关联。 (A)通过CIBERSORT算法估算的糖尿病肾病(DN)样本与对照样本中22种免疫细胞类型的相对比例。(B)DN组与对照组之间显著差异的免疫细胞组分比较。(C)差异富集免疫细胞类型之间的相关性矩阵。(D)CAT、FABP1、MAOA和MAOB的表达水平与差异富集免疫细胞类型之间的Spearman相关性。缩写:DN = diabetic nephropathy。请点击此处查看该图的高清版本。
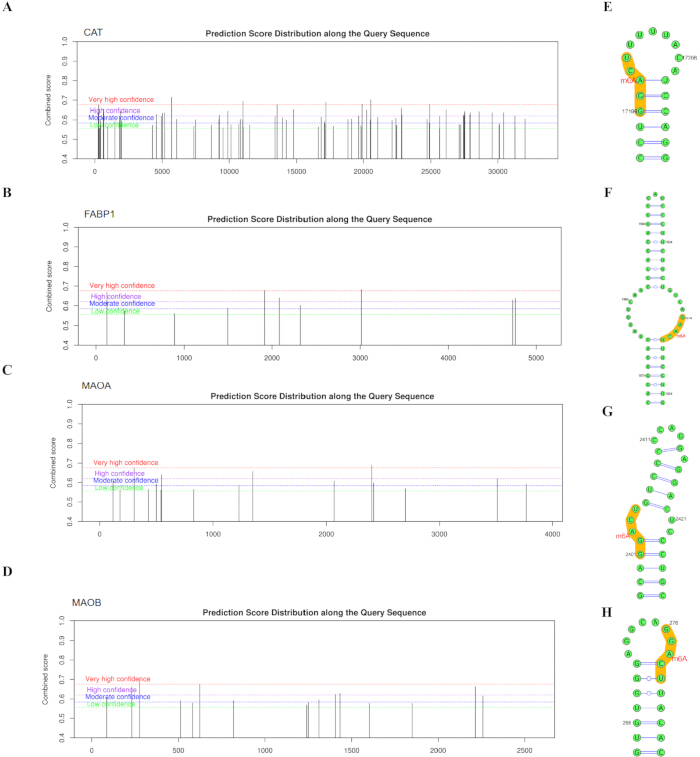
图7:候选生物标志物转录本的预测m6A修饰位点及RNA二级结构。 预测的m6A修饰位点位于(A)CAT、(B)FABP1、(C)MAOA 和(D)MAOB。预测的RNA二级结构显示了与m6A高度相关的区域,分别为(E)CAT、(F)FABP1、(G)MAOA 和(H)MAOB。黄色高亮区域表示预测含有m6A修饰位点的序列区域。缩写:m6A = N6-甲基腺苷。请点击此处查看该图的放大版本。
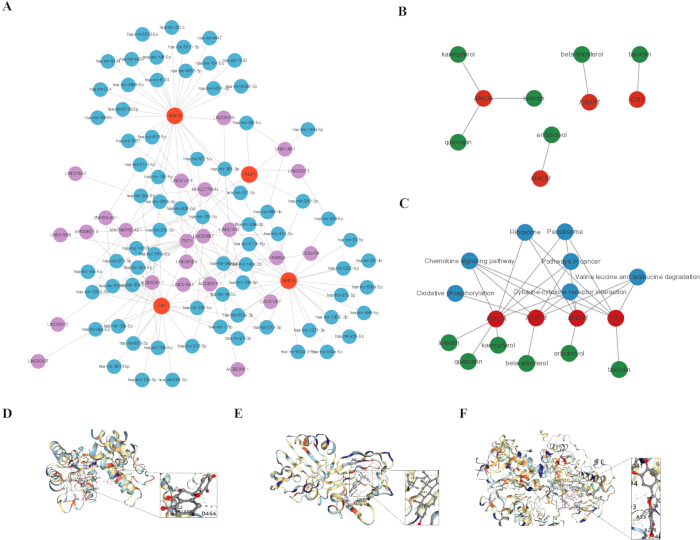
图8:LLF潜在活性成分的调控网络及分子对接分析。(A)候选生物标志物相关的lncRNA–miRNA–mRNA调控网络预测。(B)LLF潜在活性成分与候选生物标志物的相互作用网络。(C)基于GSEA结果的活性成分–生物标志物–通路网络。(D–F)(D)CAT与花旗松素、(E)FABP1与β-谷甾醇、(F)MAOB与木犀草素的分子对接构象预测。缩写:LLF = Ligustri Lucidi Fructus;lncRNA = 长链非编码RNA;miRNA = 微小RNA;GSEA = 基因集富集分析。请点击此处查看该图的高清版本。
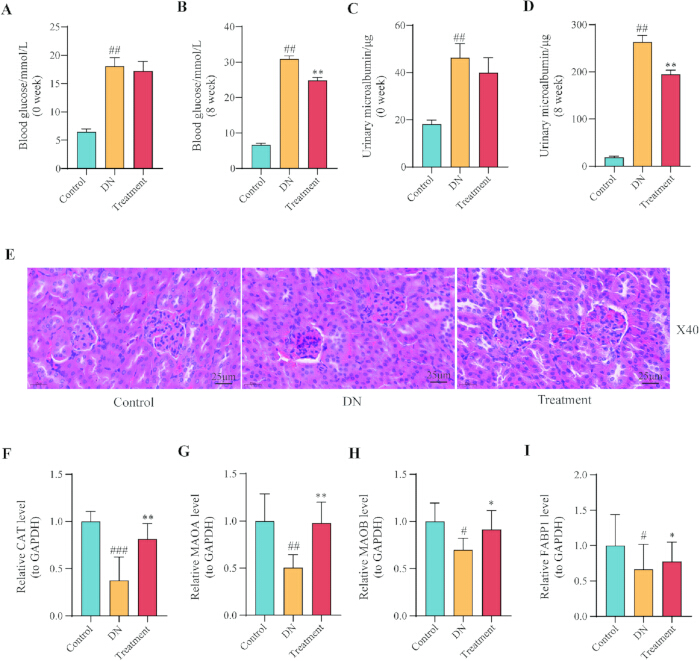
图9:LLF处理对db/db小鼠生化指标、肾脏组织病理学及候选生物标志物表达的影响。 (A,B)基线和第8周时的血糖水平。(C,D) 基线和第8周时的尿微量白蛋白水平。(E)对照组、糖尿病肾病组(DN)和治疗组代表性肾脏组织的苏木精-伊红染色切片(放大倍数:×40;比例尺 = 25 µm)。(F-I)通过RT-qPCR检测的肾脏组织中Cat、Maoa、Maob和Fabp1的相对mRNA表达水平。与对照组相比,#P < 0.05,##P < 0.01,###P < 0.001;与DN组相比,*P < 0.05,**P < 0.01,***P < 0.001。缩写:LLF = Ligustri Lucidi Fructus;DN = 糖尿病肾病;RT-qPCR = 反转录定量聚合酶链反应。 请点击此处查看该图的高清版本。
| 引物 | 序列 |
| CAT F | TCACTGACGAGATGGCACAC |
| CAT R | ATCGAACGGCAATAGGGGTC |
| FABP1 F | CAATAGGTCTGCCCGAGGAC |
| FABP1 R | GTCATGGTCTCCAGTTCGCA |
| MAOB F | GCACTGAAACAGCCTCACAC |
| MAOB R | TCGTGCAGGGACATCCAAAG |
| MAOA F | ACTTACCCATTCCGTGGTGC |
| MAOA R | ACCACAGGGCAGATACCTCA |
| M-GAPDH F | CCTTCCGTGTTCCTACCCC |
| M-GAPDH R | GCCCAAGATGCCCTTCAGT |
表1:用于小鼠肾脏组织RT-qPCR分析的引物序列。 缩写:F = 正向引物;R = 反向引物;RT-qPCR = 逆转录定量聚合酶链式反应。
| MOL ID | 分子名称 | OB (%) | DL | 靶点数量 |
| MOL000358 | beta-sitosterol | 36.91 | 0.75 | 100 |
| MOL000422 | kaempferol | 41.88 | 0.24 | 103 |
| MOL004576 | taxifolin | 57.84 | 0.27 | 92 |
| MOL005146 | Lucidumoside D | 48.87 | 0.71 | 104 |
| MOL005147 | Lucidumoside D_qt | 54.41 | 0.47 | 0 |
| MOL005169 | (20S)-24-ene-3,20-diol-3-acetate | 40.23 | 0.82 | 0 |
| MOL005190 | eriodictyol | 71.79 | 0.24 | 101 |
| MOL005195 | syringaresinol diglucoside_qt | 83.12 | 0.8 | 0 |
| MOL005209 | Lucidusculine | 30.11 | 0.75 | 105 |
| MOL005211 | Olitoriside | 65.45 | 0.23 | 100 |
| MOL005212 | Olitoriside_qt | 103.23 | 0.78 | 0 |
| MOL000006 | luteolin | 36.16 | 0.25 | 102 |
| MOL000098 | quercetin | 46.43 | 0.28 | 103 |
表2:十三种活性成分 女贞子 使用TCMSP数据库进行鉴定。 缩写:OB = 口服生物利用度;DL = 药物相似性。
| mRNA | 蛋白质 | RF | SVM |
| CAT | AQR | 0.7 | 0.98 |
| CAT | RBM22 | 0.8 | 0.97 |
| FABP1 | AQR | 0.65 | 0.94 |
| FABP1 | SF3A3 | 0.7 | 0.8 |
| MAOA | IGF2BP2 | 0.75 | 0.97 |
| MAOA | IGF2BP3 | 0.75 | 0.97 |
| MAOB | TIA1 | 0.85 | 0.89 |
表3:四种线粒体生物标志物mRNA与m6A相关RNA结合蛋白之间的预测相互作用。 CAT、FABP1、MAOA 和 MAOB 表示人类生物标志物 mRNA;AQR、RBM22、SF3A3、IGF2BP2、IGF2BP3 和 TIA1 表示 RNA 结合蛋白。RF 和 SVM 评分 > 0.5 表示预测的 RNA-蛋白质相互作用。缩写:RF = 随机森林;SVM = 支持向量机。
补充文件 1. 生物信息学脚本和实验原始数据。 本压缩包包含用于数据处理、差异表达分析、功能富集分析、机器学习、受试者工作特征曲线分析、基因集富集分析、斯皮尔曼相关性分析以及 CIBERSORT 免疫细胞浸润分析的 R 脚本,同时包含血糖、尿微量白蛋白和 RT-qPCR 实验的原始数据。 请点击此处下载该文件。
讨论
荔枝核(LLF)是一种常用的中药,主要用于滋补肝肾,治疗糖尿病及其并发症。目前尚无针对糖尿病肾病(DN)的特异性药物或疗法,其治疗主要依赖降血糖、降血脂和降压治疗30,31,32。然而,这些治疗方法仅能在少数患者中延缓肾损伤的进展33。研究表明,LLF在DN大鼠模型中可通过纠正糖脂代谢紊乱和缓解氧化应激发挥肾脏保护作用34。值得注意的是,肾脏是线粒体含量极高且耗氧量大的器官,其线粒体动力学异常在DN的发病机制中起关键作用35。本研究揭示了LLF可能通过特定候选生物标志物(CAT、FABP1、MAOB 和 MAOA)影响线粒体功能,从而治疗DN的新机制。
既往研究表明,过氧化氢酶(CAT)、脂肪酸结合蛋白1(FABP1)、单胺氧化酶B(MAOB)和单胺氧化酶A(MAOA)在不同程度上参与了糖尿病肾病(DN)的发生发展。CAT 参与机体抗氧化防御系统,保护肾脏免受氧化应激所致损伤36。CAT作为体内核心抗氧化酶,通过调控线粒体相关生理过程,在糖尿病肾病的发生与进展中发挥调节作用37。CAT特异性催化过氧化氢(H₂O₂)分解为水和氧气,有效清除来源于线粒体的活性氧(ROS),从而减轻氧化应激对线粒体结构与功能的损伤,维持线粒体膜电位稳定性和氧化磷酸化效率,进而缓解高糖诱导的肾细胞损伤,延缓糖尿病肾病的进展38。此外,CAT表达下调会导致线粒体ROS清除能力不足,加重线粒体碎片化及嵴结构破坏,抑制线粒体融合并促进其分裂,进一步破坏线粒体动态平衡。最终导致系膜细胞和足细胞等固有肾细胞出现代谢紊乱,加速肾组织纤维化进程39。
FABP1 作为脂肪酸结合蛋白家族的一员,主要参与长链脂肪酸的转运、代谢及细胞内信号传导。其异常表达已被证实与多种代谢性疾病及肾脏损伤密切相关,在糖尿病肾病(DN)的发生和发展过程中发挥重要的调控作用40。研究表明,FABP1通过干扰脂质代谢来调节DN的进展。在糖尿病状态下,FABP1的异常表达会破坏脂肪酸的转运与代谢过程,导致过量的游离脂肪酸及其代谢产物在肾组织中积聚,直接损伤肾小球内皮细胞和肾小管上皮细胞,从而加剧肾脏炎症反应和纤维化41。同时,FABP1还可通过介导氧化应激和缺氧诱导的损伤,进一步加重肾组织损害。其尿液排泄量可能在尿白蛋白水平异常之前即已升高,为DN的早期筛查与诊断提供了新的潜在靶点41,42。此外,FABP1在线粒体脂肪酸代谢中发挥核心调控作用43。研究指出,FABP1的上调可显著增强脂肪酸向线粒体的转运效率,提高线粒体β-氧化活性及三羧酸循环相关酶的活性,从而改善细胞能量代谢44。然而,FABP1通过参与线粒体相关过程影响DN发病机制的具体机制仍不明确。在其他与DN相关的因素中,MAOB 和 MAOA 作为参与神经递质代谢的酶类,也被发现与DN进展相关,可导致组织氧化还原状态失衡。本研究进一步证实了这四个候选生物标志物在DN中的关键作用,其在DN组中的表达水平均呈下降趋势。推测调节这些候选生物标志物的表达可能有助于减轻DN中的炎症反应和氧化应激。
根据GSEA富集分析,四个候选生物标志物——CAT、FABP1、MAOB 和 MAOA——在多个通路中显著富集,包括趋化因子信号通路、细胞因子-细胞因子受体相互作用以及过氧化物酶体通路。趋化因子是免疫反应的关键组分,可促进炎症反应。过氧化物酶(POD)通路与氧化应激相关45。已有研究报道,黄芩苷可通过减轻氧化应激和炎症反应来缓解糖尿病肾病(DN),其机制可能涉及激活NrF2介导的抗氧化信号通路以及抑制MAPK介导的炎症通路45。此外,FABP1 在脂质代谢中的失调可能参与糖尿病肾病中肾小球硬化和间质纤维化的发生9。这些发现表明,这些候选生物标志物在DN的炎症反应和氧化应激过程中发挥关键作用。靶向这些候选生物标志物以调控其影响的通路,可能减轻与DN相关的炎症和氧化应激,从而延缓疾病进展。
生物信息学分析显示,糖尿病肾病(DN)肾组织中免疫细胞亚群(如CD8+ T细胞)的浸润水平发生显著变化,且CD8+ T细胞的增加与四个线粒体相关候选生物标志物(CAT, FABP1, MAOB, MAOA)的表达呈显著负相关。这些计算预测结果与动物实验的病理观察结果一致:DN模型组小鼠肾脏的HE染色切片显示肾小球周围存在明显的炎性细胞浸润;经LLF干预后,治疗组肾组织中炎性细胞的浸润显著减少,病理损伤得到改善。这表明炎性细胞浸润增加是DN肾损伤的关键特征,而LLF可能通过调控免疫浸润发挥保护作用。该发现与既往研究一致:CD8+ T细胞的浸润与DN的发展相关,抑制其反应可缓解疾病进程46,在阿霉素肾病中亦会加重肾损伤47。此外,多种免疫细胞(如B细胞、M1/M2型巨噬细胞及NK细胞)在DN病理过程中均发生改变48。生物标志物CAT可能影响DN中免疫细胞的功能49,而MAOA也可能通过调控巨噬细胞极化影响免疫微环境。这些结果提示,LLF的肾保护作用与其调控异常免疫浸润(包括CD8+ T细胞)从而减轻炎症损伤密切相关。四个候选生物标志物与CD8+ T细胞及活化肥大细胞之间的负相关关系表明,这些基因可能调节肾脏免疫微环境。已有研究报道CAT的表达与代谢组织中巨噬细胞极化及T细胞活性相关。然而,本研究的CIBERSORT估算基于整体肾组织转录组数据,无法区分浸润至肾小球与肾小管间质区室的免疫细胞亚型。因此,所观察到的相关性应视为产生假设的关联,而非因果性免疫调控的证据。未来需通过多重免疫组化或单细胞RNA测序等技术进一步研究,以定位这些免疫-生物标志物相互作用的具体位置。
既往研究已报道了与糖尿病肾病(DN)相关的线粒体生物标志物,包括OPA1、MFN2、DRP1、PGC-1α和SOD2。我们的CAT和MAOA研究结果补充了现有文献,突出了在DN线粒体背景下较少受到关注的过氧化物酶体和单胺氧化酶通路。值得注意的是,尽管SOD2和GPX1是经典的活性氧清除酶,但CAT特异性作用于过氧化物酶体内的H2O2,提示氧化应激调控存在独特的亚细胞区室化特征。
作为一种天然黄酮类化合物,二氢槲皮素(TA)已被证明可显著降低糖尿病大鼠的血糖、尿酸、肌酐和血清胰岛素水平,同时减轻这些动物的肾脏病理改变50. β-sitosterol 可能通过调节脂质平衡和发挥抗炎作用间接改善 DN。 β-sitosterol 成分参与黄芪葛根汤(HGD)中与糖尿病肾病(DN)相关的通路,作用靶点包括血管内皮生长因子A(VEGFA)和白细胞介素-6(IL-6)。这些作用涵盖抗炎、抗凋亡、抗氧化及调节自噬等效应,可减轻肾纤维化和肾皮质损伤,改善肾功能,从而延缓DN的进展51另一种天然黄酮类化合物木犀草素已被证明可通过平衡氧化应激和炎症反应,对缺血性脑卒中(IS)起到保护作用52尽管关于木犀草素在糖尿病肾病(DN)背景下的研究较为有限,但鉴于该疾病与炎症和氧化应激密切相关,推测其可能通过类似机制缓解DN。本研究中的药物预测结果也提示,Taxifolin β-sitosterol 和木犀草素在糖尿病肾病(DN)中具有潜在的治疗作用。分子对接可预测可能的结合构象和亲和力,但不能确定 体内 靶点结合、生物利用度或药理活性。这些结果应被视为生成假设性的,而非确证性的。
既往关于糖尿病肾病(DN)的网络药理学研究主要集中于单个信号通路(如 AGE-RAGE、PI3K-AKT 和 MAPK),尚未考虑线粒体功能障碍,也未采用多模型机器学习方法对生物标志物进行优先排序。本研究提出了三项方法学与生物学上的进展:(1)将全转录组差异表达基因(DEGs)与线粒体基因集及药物靶点预测结果相整合;(2)应用四种不同的机器学习模型并结合跨数据集验证,以筛选出稳健的候选分子;(3)鉴定出过氧化物酶体(CAT)和单胺氧化酶(MAOA/MAOB)通路——这些通路在 DN 的线粒体相关研究中较少被关注——作为潜在的治疗靶向轴心。
小鼠肾脏中 MaoB 和 Fabp1 表达缺乏具有统计学意义的变化,可能由多种因素导致。首先,用于候选基因优先排序的两个基因表达综合数据库(GEO)数据集来源于人类肾脏样本(分别为全肾脏和肾小球),而我们的动物实验使用的是小鼠肾组织。基因调控的物种特异性差异可能影响基因的基础表达水平和对药物的反应性。其次,样本量相对较小(每组 n = 6),可能限制了检测中等效应大小的统计效能。第三,组织样本是在处理后8周采集的,可能未能捕捉到检测 MaoB 和 Fabp1 转录组变化的最佳时间窗口,因为这些基因可能在蛋白质水平或活性水平上受到调控,而非mRNA水平。第四,全肾脏与特定肾区室之间的组织异质性也可能导致结果差异。上述可能性值得进一步研究。
本研究采用整合生物信息学与机器学习的方法,鉴定出 CAT、FABP1、MAOA 和 MAOB 为糖尿病肾病(DN)中低线粒体丰度(LLF)的潜在线粒体候选基因。体内实验验证表明,LLF 显著上调肾组织中的 CAT 和 MAOA 表达,提示这些基因是进一步开展机制研究和治疗探索的有前景靶点。相比之下,MAOB 和 FABP1 在相同方向上仅呈现无统计学意义的变化趋势,凸显了在优先筛选计算预测结果时进行实验验证的重要性。这些发现为未来研究探索糖尿病肾病中与线粒体相关的治疗策略提供了理论依据。
披露
作者声明无任何利益冲突。
致谢
我们衷心感谢所有在本研究过程中给予支持和帮助的个人与机构。本研究得到了国家自然科学基金(编号:81973486 和 82173974)、山西省中医药管理局科研项目(编号:2024ZYYA021)、山西中医药大学学科建设项目(编号:2026XK24)以及山东中医药大学科研基金项目(编号:KYZK2024Q13)的资助。感谢山西中医药大学副教授 Qinqing Li 对植物材料的鉴定。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 4% 多聚甲醛组织固定液 | Saiyin Biotechnology Co., Ltd. | 71033600 | |
| 无水乙醇 | Sinopharm Chemical Reagent Co., Ltd. | 10009218 | |
| 血糖仪 | Sinocare Inc. | GA-3 | |
| 血尿素氮(BUN)检测试剂盒 | 南京建成生物工程研究所 | C03-2-1 | |
| C57BLKS/J db/db 小鼠 | 常州卡文斯实验动物有限公司 | SCXK (苏) 2021-0013 | |
| C57BLKS/J db/m 小鼠 | 常州卡文斯实验动物有限公司 | SCXK (苏) 2021-0013 | |
| 离心机 | 湖南湘仪实验室仪器开发有限公司 | HI650 | |
| 水合氯醛 | 上海阿拉丁生化科技股份有限公司 | 302-17-0 | |
| Cytoscape (v3.9.0) | https://cytoscape.org | ||
| m6A 修饰预测数据库 | http://www.cuilab.cn/sramp/ | ||
| 中药活性成分数据库 | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| ENCORI / Starbase | https://starbase.sysu.edu.cn/ | ||
| 基因表达综合数据库(Gene Expression Omnibus, GEO) | https://www.ncbi.nlm.nih.gov/geo/ | ||
| 苏木精-伊红(HE)染色试剂盒 | Servicebio | C0105S | |
| 高速离心机 | Labnet, USA | C2500-R-230V | |
| 免疫浸润分析工具 | https://cibersort.stanford.edu/ | ||
| 女贞子 | 四川全益润生物科技有限公司 | 20240506 | |
| 磁力搅拌器 | 江苏金坛中天仪器厂 | T8-1 | |
| 显微镜 | Olympus | BX53 | |
| 切片机 | Leica, Germany | RM 2016 | |
| 微量分光光度计 | 杭州奥盛仪器有限公司 | Nano-300 | |
| miRNet | https://www.mirnet.ca | ||
| MitoCarta 3.0 | https://www.broadinstitute.org/mitocarta | ||
| 模型解释 R 软件包 | https://cran.r-project.org/package=DALEX | ||
| 分子对接平台 | http://clab.labshare.cn/cb-dock/ | ||
| 小鼠微量白蛋白尿 ELISA 试剂盒 | Fine Test | EM0632 | |
| 小鼠微量白蛋白尿检测试纸 | 广州华都高尔宝生物科技有限公司 | 20211203 | |
| 小鼠血清肌酐 ELISA 试剂盒 | Abmart | AB5990A | |
| MSigDB | https://www.gsea-msigdb.org/gsea/msigdb/ | ||
| PCR 扩增仪 | Roche | Roche LightCycler 480 | |
| R 软件(v4.2.2)+ R 软件包 | https://www.r-project.org / CRAN/Bioconductor | ||
| RCSB 蛋白质数据库(RCSB PDB) | https://www.rcsb.org | ||
| RNA 提取试剂盒 | 北京巨美生物科技有限公司 | MF-036-01 | |
| RPISeq | http://pridb.gdcb.iastate.edu/RPISeq/ | ||
| RT-qPCR 试剂盒 | 北京巨美生物科技有限公司 | MF949-T | |
| 红景天苷 | 四川全益润生物科技有限公司 | 20211009 | |
| 血清肌酐检测试剂盒 | 南京建成生物工程研究所 | C011-2-1 | |
| SPF 级动物房 | 山西中医药大学 | ||
| SRAMP | http://www.cuilab.cn/sramp/ | ||
| STRING | https://cn.string-db.org/ | ||
| SwissTargetPrediction | http://www.swisstargetprediction.ch/ | ||
| TCMSP | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| 泽脂皮甘 | 四川全益润生物科技有限公司 | 20210602 | |
| 组织漂浮浴 | 武汉俊杰 | JK-6 |
参考文献
- Thipsawat S. Early detection of diabetic nephropathy in patient with type 2 diabetes mellitus: a review of the literature. Diabetes Vasc Dis Res. 2021;18(6):14791641211058856.
- Kanwar YS, Sun L, Xie P, Liu FY, Chen S. A glimpse of various pathogenetic mechanisms of diabetic nephropathy. Annu Rev Pathol. 2011;6:395-423.
- Santulli G, et al. Prediabetes increases the risk of frailty in prefrail older adults with hypertension: beneficial effects of metformin. Hypertension. 2024;81(7):1637-43.
- Jin Q, et al. Oxidative stress and inflammation in diabetic nephropathy: role of polyphenols. Front Immunol. 2023;14:1185317.
- Alicic RZ, Rooney MT, Tuttle KR. Diabetic kidney disease: challenges, progress, and possibilities. Clin J Am Soc Nephrol. 2017;12(12):2032-45.
- Harrington JS, et al. Mitochondria in health, disease, and aging. Physiol Rev. 2023;103(4):2349-422.
- Peña FJ, et al. An integrated overview on the regulation of sperm metabolism (glycolysis-Krebs cycle-oxidative phosphorylation). Anim Reprod Sci. 2022;246:106805.
- de Mello AH, Costa AB, Engel JDG, Rezin GT. Mitochondrial dysfunction in obesity. Life Sci. 2018;192:26-32.
- Shen Y, et al. Notoginsenoside Fc, a novel renoprotective agent, ameliorates glomerular endothelial cells pyroptosis and mitochondrial dysfunction in diabetic nephropathy through regulating HMGCS2 pathway. Phytomedicine. 2024;126:155445.
- Zhang PN, et al. Mitochondrial dysfunction and diabetic nephropathy: nontraditional therapeutic opportunities. J Diabetes Res. 2021;2021:1010268.
- Zhang JL, et al. Structural characterization and protective effect against renal fibrosis of polysaccharide from Ligustrum lucidum Ait. J Ethnopharmacol. 2023;302(Pt A):115898.
- Luan R, et al. The protective effect of ethyl acetate and n-butanol fractions of wine-steamed Ligustri Lucidi Fructus on diabetic nephropathy in rats. Evid Based Complement Alternat Med. 2021;2021:6512242.
- Luan R, et al. Pharmacodynamics, pharmacokinetics, and kidney distribution of raw and wine-steamed Ligustri Lucidi Fructus extracts in diabetic nephropathy rats. Molecules. 2023;28(2):791.
- Seo HL, et al. Liqustri lucidi Fructus inhibits hepatic injury and functions as an antioxidant by activation of AMP-activated protein kinase in vivo and in vitro. Chem Biol Interact. 2017;262:57-68.
- Yan M, et al. Identification of pyroptosis-related genes and potential drugs in diabetic nephropathy. J Transl Med. 2023;21(1):490.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Gustavsson EK, et al. ggtranscript: an R package for the visualization and interpretation of transcript isoforms using ggplot2. Bioinformatics. 2022;38(15):3844-6.
- Gu Z, Eils R, Schlesner M. Complex heatmaps reveal patterns and correlations in multidimensional genomic data. Bioinformatics. 2016;32(18):2847-9.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-504.
- Wu T, et al. clusterProfiler 4.0: a universal enrichment tool for interpreting omics data. Innovation (Camb). 2021;2(3):100141.
- Dong H, et al. Identification through machine learning of potential immune-related gene biomarkers associated with immune cell infiltration in myocardial infarction. BMC Cardiovasc Disord. 2023;23(1):163.
- Pei B, et al. The development of prediction model for cuffed tracheal tube size from the middle finger in pediatrics: a concise and feasible approach. Transl Pediatr. 2023;12(12):2222-31.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77.
- Robles-Jimenez LE, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review. Animals (Basel). 2021;12(1):60.
- Wang Y, et al. Bioinformatics analysis combined with clinical sample screening reveals that leptin may be a biomarker of preeclampsia. Front Physiol. 2022;13:1031950.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2^−ΔΔCT method. Methods. 2001;25(4):402-8.
- Klejborowska G, et al. Synthesis, anticancer activity and molecular docking studies of N-deacetylthiocolchicine and 4-iodo-N-deacetylthiocolchicine derivatives. Bioorg Med Chem. 2021;32:116014.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659-61.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Mazzieri A, Porcellati F, Timio F, Reboldi G. Molecular targets of novel therapeutics for diabetic kidney disease: a new era of nephroprotection. Int J Mol Sci. 2024;25(7):3969.
- Breyer MD, Susztak K. The next generation of therapeutics for chronic kidney disease. Nat Rev Drug Discov. 2016;15(8):568-88.
- Leoncini G, et al. Blood pressure reduction and RAAS inhibition in diabetic kidney disease: therapeutic potentials and limitations. J Nephrol. 2020;33(5):949-63.
- Pofi R, et al. Diabetic nephropathy: focus on current and future therapeutic strategies. Curr Drug Metab. 2016;17(5):497-502.
- Arellano Buendía AS, et al. Immunomodulatory effects of the nutraceutical garlic derivative allicin in the progression of diabetic nephropathy. Int J Mol Sci. 2018;19(10):3107.
- Zhang X, Agborbesong E, Li X. The role of mitochondria in acute kidney injury and chronic kidney disease and its therapeutic potential. Int J Mol Sci. 2021;22(20):11253.
- Liu Y, et al. DsbA-L interacting with catalase in peroxisome improves tubular oxidative damage in diabetic nephropathy. Redox Biol. 2023;66:102855.
- Zhong Y, et al. Jujuboside A ameliorates high fat diet and streptozotocin induced diabetic nephropathy via suppressing oxidative stress, apoptosis, and enhancing autophagy. Food Chem Toxicol. 2022;159:112697.
- Zhong Y, et al. Dioscin relieves diabetic nephropathy via suppressing oxidative stress and apoptosis, and improving mitochondrial quality and quantity control. Food Funct. 2022;13(6):3660-73.
- Issac PK, et al. Protective effect of morin by targeting mitochondrial reactive oxygen species induced by hydrogen peroxide demonstrated at a molecular level in MDCK epithelial cells. Mol Biol Rep. 2022;49(6):4269-79.
- Abo El-Asrar M, Ismail EAR, Elnhrawy AM, Thabet RA. Fatty acid binding protein 1 (FABP1) and fatty acid binding protein 2 (FABP2) as a link between diabetic nephropathy and subclinical atherosclerosis in children and adolescents with type 1 diabetes. J Diabetes Complications. 2023;37(3):108414.
- Gholaminejad A, Fathalipour M, Roointan A. Comprehensive analysis of diabetic nephropathy expression profile based on weighted gene co-expression network analysis algorithm. BMC Nephrol. 2021;22(1):245.
- Tanaka M, et al. Urinary fatty acid-binding protein 4 is a promising biomarker for glomerular damage in patients with diabetes mellitus. J Diabetes Investig. 2025;16(4):670-9.
- Liu Y, et al. Gastric cancer adapts high lipid microenvironment via suppressing PPARG-FABP1 axis after arriving in the lymph node. Redox Biol. 2025;85:103759.
- Borús DL, et al. Fatty acid binding protein 1 (FABP1) depletion promotes an oxidative metabolic shift in Caco-2 colorectal cancer cells. Biochim Biophys Acta Mol Cell Biol Lipids. 2025;1870(7):159661.
- Chu Y, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress, and improves pathology and proteome remodeling in the kidneys of old mice. Aging Cell. 2020;19(6):e13154.
- Zhang F, et al. Mesenchymal stem cells alleviate rat diabetic nephropathy by suppressing CD103+ DCs-mediated CD8+ T cell responses. J Cell Mol Med. 2020;24(10):5817-31.
- Cao Q, et al. Renal F4/80+ CD11c+ mononuclear phagocytes display phenotypic and functional characteristics of macrophages in health and in adriamycin nephropathy. J Am Soc Nephrol. 2015;26(2):349-63.
- Zhou W, et al. The landscape of immune cell infiltration in the glomerulus of diabetic nephropathy: evidence based on bioinformatics. BMC Nephrol. 2022;23(1):303.
- Bloch K, Shichman E, Vorobeychik M, Bloch D, Vardi P. Catalase expression in pancreatic alpha cells of diabetic and non-diabetic mice. Histochem Cell Biol. 2007;127(2):227-32.
- Zhao Y, et al. Taxifolin attenuates diabetic nephropathy in streptozotocin-induced diabetic rats. Am J Transl Res. 2018;10(4):1205-10.
- Ding S, Wang W, Song X, Ma H. Based on network pharmacology and molecular docking to explore the underlying mechanism of Huangqi Gegen Decoction for treating diabetic nephropathy. Evid Based Complement Alternat Med. 2021;2021:9928282.
- Guo S, et al. Correction: Eriodictyol: a review of its pharmacological activities and molecular mechanisms related to ischemic stroke. Food Funct. 2023;14(10):4949.